Endojen retrovirüs kaynaklı cis-regülatör elementler, erken embriyonik gen ekspresyonunu düzenler. Bu protokol, gen düzenlemesindeki ve implantasyon dönemi gelişimsel süreçlerdeki rollerini değerlendirmek amacıyla, insan naif pluripotent kök hücrelerinde bu elementlerin CRISPR-Cas9 aracılı delesyonunu tanımlamaktadır.
Yöntem makalesi
İnsan Preimplantasyon Modellerinde Kodlamayan Genomun Fonksiyonunu Çözmek İçin Cis-Düzenleyici Elementlerin Genetik Delesyonu
91 görüntülenme
⸱
11 Eylül 2026
* These authors contributed equally
Bu makalede
Özet
Özet
Cis-düzenleyici elementler, gen ekspresyonunu mekansal ve zamansal olarak kontrollü bir şekilde koordine eder ve gelişim sırasında belirgin hücresel durumların oluşmasına katkıda bulunur. Primat embriyolarındaki transkripsiyonel olarak aktif cis-düzenleyici elementlerin önemli bir kısmı, germ hattına gerçekleşmiş antik retroviral entegrasyonlardan köken almıştır. Uzun terminal tekrar retrotranspozonları olarak da bilinen bu endojen retrovirüsler, içsel düzenleyici aktivitelerini korurlar ve genellikle türe özgüdürler; bu da onları embriyonik gelişimin türe göre farklılaşan yönlerini düzenlemede güçlü adaylar haline getirir. İnsan embriyosu araştırmaları üzerindeki etik ve yasal kısıtlamalar, tarihsel olarak insan embriyogenezi sırasında gen düzenlemesinin doğrudan incelenmesini sınırlamıştır. İnsan naif pluripotent kök hücreler ve üç boyutlu kök hücre tabanlı blastokist modelleri, erken gelişim süreçlerini incelemek için alternatif sistemler sunar. Bu protokol, insan naif pluripotent kök hücrelerde endojen retrovirüs kaynaklı cis-düzenleyici elementlerin CRISPR-Cas9 aracılı delesyonunu tanımlamaktadır. Önceden birleştirilmiş Cas9 ve tek kılavuz RNA ribonükleoprotein kompleksleri nukleofeksiyon ile iletilir ve ardından tek hücre klonlaması, PCR tabanlı genotipleme, Sanger sekanslama, ekspansiyon, kriyoprezervasyon ve düzenlenen hatların genomik stabilite değerlendirmesi gerçekleştirilir. Elde edilen yabani tip, heterozigot ve homozigot veya hemizigot delesyon klonları, tekil endojen retrovirüs kaynaklı elementlerin insan implantasyon öncesi modellerdeki gen düzenlemesine katkısını araştırmak için bir platform sağlar. Bu yöntem, türe özgü kodlamayan düzenleyici dizilerin doğrudan fonksiyonel sorgulamasını mümkün kılar ve erken insan gelişiminde rol oynayan transkripsiyonel mekanizmaların incelenmesini destekler.
Giriş
Gelişim sırasında gen ekspresyonunun hassas düzenlemesi, karmaşık biyolojik sistemlerin kurulması için temel teşkil eder. Bu düzenleyici bilgilerin büyük bir kısmı, transkripsiyonel aktiviteyi kontrol eden transkripsiyon faktörü bağlanma bölgelerini içeren kodlamayan DNA dizileri olan cis-düzenleyici elementler (CRE'ler) tarafından kodlanır1. Primate embriyogenezi sırasında, aktif CRE'lerin önemli bir kısmı, uzun terminal tekrar (LTR) retrotranspozonları olarak da bilinen endojen retrovirüslerden (ERV'ler) türetilmiştir2,3. ERV'ler, popülasyonda sabitlenmiş olan germ hattındaki antik retroviral enfeksiyonlardan köken almıştır. Evrimsel süreçte, çoğu ERV insersiyonu viral proteinleri kodlayan açık okuma çerçevelerini bozan mutasyonlar biriktirmiş ve bu durum sıklıkla solo LTR'lerin oluşumuyla sonuçlanmıştır4. Bu dejenerasyona rağmen, birçok ERV türevli dizi içsel düzenleyici aktivitesini korumaktadır ve genellikle türe özgüdür; bu da onları türe göre farklılaşan gelişimsel süreçleri yönlendirmek için güçlü adaylar haline getirir. ERV'ler; enhancerlar, promoterlar veya kromatin sınır elementleri olarak işlev görebilir ve böylece gen ekspresyon programlarını ve üç boyutlu genom organizasyonunu düzenleyebilirler5,6.
Evrimsel olarak genç olan birçok ERV ailesi, memeli implantasyon öncesi gelişimi sırasında evreye özgü bir şekilde transkripsiyonel olarak aktif hale gelir. Bu aktivasyon, erken embriyogenezin karakteristik özelliği olan yaygın DNA hipometilasyonu ile kolaylaşır ve bu durum LTR'ler içindeki transkripsiyon faktörü bağlanma bölgelerini açığa çıkarır7,8,9,10. Biriken kanıtlar, ERV'lerin CRE'ler olarak benimsenmesinin memeli embriyogenezine önemli ölçüde katkıda bulunduğunu göstermektedir. Farelerde, murine endojen retrovirüs-L elementleri iki hücreli evrede yüksek düzeyde eksprese edilir ve gen promotörleri olarak işlev görerek zigotik genom aktivasyonuna katkıda bulunur11. Fareye özgü retrotranspozona MT2B2 de, embriyonik proliferasyon için gerekli olan korunumlu bir CDK2AP1 izoformunun ekspresyonunu yönlendiren bir promotör olarak işlev görür12. İnsanlarda, farklı ERV aileleri trofoblast gen ekspresyonunu düzenleyen enhancerlar veya promotörler olarak hareket edebilir13. İnsan endojen retrovirüs K (HML-2) ailesine ait ERV'ler, özellikle LTR5_Hs alt tipleri, sekiz hücreli evreden blastokist evresine kadar transkripsiyonel olarak aktiftir9. LTR5_Hs elementleri enhancer olarak işlev görebilir14,15,16,17 ve en az bir insana özgü insersiyon, insan naif pluripotent kök hücrelerinde (hnPSCs) yüzlerce housekeeping-gen promotörünü düzenleyen bir transkripsiyon faktörü olan ZNF729'un aktivasyonu yoluyla implantasyon öncesi gelişim için temel öneme sahiptir14. Birlikte, bu bulgular ERV'lerin gelişimsel gen düzenleyici ağları yeniden şekillendirdiğini ve peri-implantasyon gelişiminin türe özgü yönlerine katkıda bulunabileceğini göstermektedir.
İnsan naif pluripotent kök hücreleri; transkriptomları, DNA metilasyon durumları ve dişi hücrelerde X kromozomu aktivasyon durumu bakımından insan preimplantasyon epiblastına benzerler18. hnPSC'lerin stabil propagasyonu için lösemi inhibitör faktörü, mitojenle aktive olan protein kinaz inhibitörü PD0325901, atipik protein kinaz C inhibitörü Gö6983 ve Wnt sinyal yolunun inhibisyonu gereklidir; bu kombinasyon toplu olarak PXGL kültür koşulları olarak adlandırılır19. Bu koşullar altında hnPSC'ler, trofoblast ve hipoblast lignajlarına farklılaşma kapasitesini korurlar20,21,22. Ayrıca, insan blastosistinin temel özelliklerini yeniden oluşturan, üç boyutlu kök hücre tabanlı modeller olan blastoidler üretebilirler23,24,25,26,27,28,29. Blastoidler, insan embriyolarının kullanımıyla ilişkili etik ve yasal kısıtlamaları azaltırken, erken embriyogenezin insana özgü özelliklerini araştırmak için ölçeklenebilir bir deneysel sistem sunarlar. Sonuç olarak hnPSC'ler ve blastoidler, insanın preimplantasyon ve peri-implantasyon gelişiminde rol oynayan düzenleyici dizilerin fonksiyonel olarak incelenmesi için değerli bir platform sağlarlar.
Kümeli düzenli aralıklı kısa palindromik tekrarla ilişkili protein 9 (CRISPR-Cas9) teknolojisi, memeli hücrelerde genomik lokusların hedeflenmiş düzenlenmesine olanak tanır ve fonksiyonel genomik çalışmalarda yaygın olarak kullanılır30Sistem, Cas9'u bir protospacer-adjacent motif (protospacer komşu motifi) bitişiğindeki tamamlayıcı bir genomik diziye yönlendirmek için genellikle 17–24 baz çifti uzunluğunda olan tek bir kılavuz RNA (sgRNA) kullanır. Cas9 daha sonra her iki DNA zincirini de keserek çift zincirli bir kırık oluşturur. Homolog bir onarım şablonunun yokluğunda, onarım aracılığıyla homolog olmayan uç birleşmesi, nükleotid eklemelerine veya delesyonlarına yol açabilir30İki sgRNA, bir CRE'yi çevreleyecek şekilde tasarlandığında, eşzamanlı kesilme aradaki diziyi uzaklaştırabilir ve bir CRE fonksiyon kaybı aleli oluşturabilir. Ancak, plasmid temelli iletimin düşük düzenleme verimliliğine yol açabilmesi, korumasız sgRNA'ların degradasyona yatkın olması ve geleneksel hnPSC kültürünün sıklıkla fare embriyonik fibroblast besleyici hücrelerine bağımlı olması nedeniyle, hnPSC'lerde ERV kaynaklı CRE'lerin fonksiyonel sorgulaması teknik olarak zor olmaya devam etmektedir.
Mevcut protokol, önceden monte edilmiş Cas9-sgRNA ribonükleoprotein komplekslerinin nükleofeksiyon yoluyla hnPSC'lere iletilmesiyle bu kısıtlamaları gidermektedir31,32. Bu yaklaşım, plazmid entegrasyonunu önler, Cas9 aktivitesinin süresini sınırlar ve ERV kaynaklı CRE'lerin verimli bir şekilde silinmesini sağlar. Bu iş akışı kullanılarak, yaklaşık %10-78,9 oranında ERV tam silme verimlilikleri elde edilmiş ve izole edilen klonların ortalama %43,6'sında homo- veya hemizigot silmeler gerçekleştirilmiştir. Ortaya çıkan düzenlenmiş hnPSC hatları, bireysel ERV kaynaklı düzenleyici elementlerin gen ekspresyonuna ve erken gelişimsel fenotiplere katkısını araştırmak için kullanılabilir (Şekil 1). Bu yöntemin özgünlüğü, ribonükleoprotein tabanlı genom düzenlemesini insan naif pluripotent kök hücre modelleriyle birleştirerek, insan implantasyon öncesi gelişimi sırasında türe özgü kodlamayan düzenleyici elementlerin doğrudan fonksiyonel sorgulamanıza olanak sağlamasıdır.
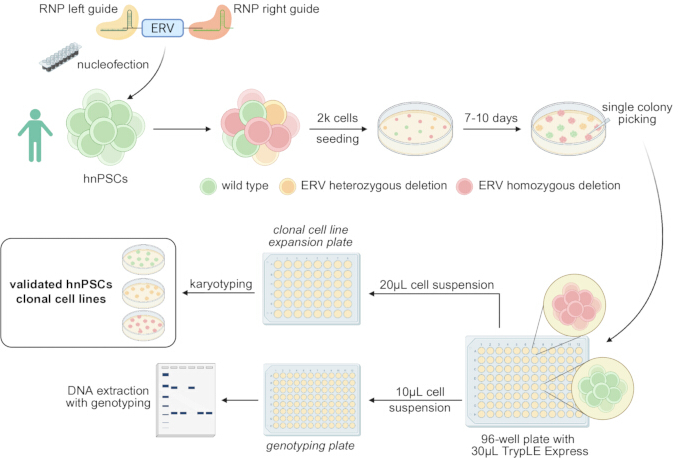
Şekil 1: İnsan naif pluripotent kök hücrelerinde ERV delesyon iş akışının genel görünümü.Endojen retrovirüs (ERV) kaynaklı cis-düzenleyici elementler, nükleofeksiyon yoluyla insan naif pluripotent kök hücrelerine (hnPSC'ler) aktarılan eşli Cas9-tek kılavuz RNA (sgRNA) ribonükleoprotein kompleksleri kullanılarak delesyonla uzaklaştırılır. İyileşme ve düşük yoğunluklu ekim sonrası, vahşi tip, heterozigot ve homozigot delesyon klonlarını belirlemek amacıyla tekil koloniler izole edilir, genişletilir, genotiplenir ve karyotiplenir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Protokol
PB004 insan naif pluripotent kök hücre hattı, ilgili kurumsal ve ulusal kılavuzlara uygun olarak ve ilgili kurumsal etik kurulun onayıyla (Tokyo Üniversitesi Tıp Bilimleri Enstitüsü, onay numarası 21-68-0409), yazılı bilgilendirilmiş onam veren gönüllü donörlerden alınan periferik kan hücrelerinin yeniden programlanmasıyla oluşturulmuştur33. Bu hücrelerin STR doğrulaması yapılmış ve rutin olarak mikoplazma enfeksiyonu açısından test edilmiştir. Bu protokolde kullanılan araştırma araçları Materyal Tablosu'nda listelenmiştir.
1. İnsan naif pluripotent kök hücrelerinin kültürü
- Kültür ortamlarını hazırlayın
NOT: İşleme, inaktive edilmiş fare embriyonik fibroblast (MEF) besleyici tabakalarda tutulan insan naif pluripotent kök hücreleri (hnPSC'ler) ile başlayın. Genom düzenlemesi gerçekleştirmeden önce, hücreleri çözdükten sonra en az bir kez pasajlayın.
NOT: PXGL ortamının sadece hemen kullanım için gerekli olan hacmini 37 °C'ye ısıtın. Stok çözeltinin tamamını tekrar tekrar ısıtmayın.- N2B27 bazal ortamını ve PXGL ortamını hazırlayın
- 500 mL yüksek glikozlu DMEM/F-12'yi 500 mL Neurobasal ortam ile birleştirin. Final konsantrasyonu 2 mM olacak şekilde L-glutamin ve final konsantrasyonu 100 µM olacak şekilde 2-merkaptoetanol ekleyin.
DİKKAT: 2-merkaptoetanolü kurumsal kimyasal güvenlik prosedürlerine uygun olarak kullanın. - Gerekirse 5 mL N2 suplementi, 10 mL B27 suplementi ve 10 mL antibiyotik-antimikotik çözeltisi ekleyin. Gerekirse ortamı 0,22 µm veya 0,45 µm gözenek boyutuna sahip bir filtre ünitesinden süzün.
- Elde edilen N2B27 bazal ortamını 4 °C'de, karanlıkta 1 aya kadar saklayın.
- 1 hafta için gerekli PXGL ortamı hacmini tahmin edin. N2B27 bazal ortamını 1 µM PD0325901, 2 µM XAV939, 2 µM Gö6983 ve 10 ng/mL rekombinant insan lösemi inhibitör faktörü ile takviye edin.
- hnPSC'leri çözerken, pasajlarken, nukleofekte ederken veya tek hücre olarak ekerken PXGL ortamına 10 µM Y-27632 ekleyin. PXGL ortamını 4 °C'de, karanlıkta 1 haftaya kadar saklayın.
- 500 mL yüksek glikozlu DMEM/F-12'yi 500 mL Neurobasal ortam ile birleştirin. Final konsantrasyonu 2 mM olacak şekilde L-glutamin ve final konsantrasyonu 100 µM olacak şekilde 2-merkaptoetanol ekleyin.
- Yıkama ortamını hazırlayın
NOT: Santrifüj sırasında, hnPSC'lerin plastik sarf malzemelerine yapışarak kaybını azaltmak için sığır serum albümini (BSA) içeren yıkama ortamı kullanın.- Final konsantrasyonu %0,1 olacak şekilde 500 mL DMEM/F-12'ye BSA ekleyin. Yıkama ortamını 4 °C'de 2 aya kadar saklayın.
- MEF ortamını hazırlayın
- 500 mL yüksek glikozlu Dulbecco modifiye Eagle ortamına 50 mL fetal sığır serumu, 1 mM sodyum piruvat ve 5 mL stabilize L-glutamin suplementi ekleyin.
- Gerekirse antibiyotik-antimikotik çözeltisi ekleyin. Gerekirse ortamı 0,22 µm veya 0,45 µm gözenek boyutuna sahip bir filtre ünitesinden süzün ve MEF ortamını 4 °C'de 1 aya kadar saklayın.
- N2B27 bazal ortamını ve PXGL ortamını hazırlayın
- MEF besleyici tabakalarını hazırlayın
NOT: MEF'ler, hnPSC'ler için büyüme desteği sağlar34. Gama radyasyonu veya mitomisin C tedavisi ile inaktive edilmiş MEF'ler kullanın. MEF'leri kurum bünyesinde üretin35 veya ticari bir kaynaktan temin edin. CD1 veya CF1 farelerinden türetilen MEF'ler bu protokol için uygundur. Burada açıklanan deneyler, satın alınan CF1 MEF'ler kullanılarak gerçekleştirilmiştir.- hnPSC'leri çözmeden veya pasajlamadan 48 saat önce gerekli sayıda MEF kaplı kuyucuk hazırlayın. Doku kültürü yüzeyini 0,05–0,1 mL/cm2 %0,1'lik jelatin çözeltisi ile kaplayın ve 37 °C'de 30 dakika inkübe edin.
- Jelatin çözeltisini aspire edin ve MEF ortamında 2–3 × 10⁴ inaktive MEF/cm2 ekleyin.
- MEF'leri kullanmadan önce en az 48 saat boyunca 37 °C, %95 nem ve %5 CO₂'de inkübe edin. Besleyici tabakalar hemen kullanılmadığında MEF ortamını her 3 günde bir değiştirin.
- MEF besleyici tabakalarını ekimden sonraki 7 gün içinde kullanın. hnPSC'leri eklemeden önce besleyici tabakaları inceleyin ve yaygın ayrılma veya bozulma gösteren kuyucukları atın.
- hnPSC'leri pasajlayın
- hnPSC kültüründeki PXGL ortamını aspire edin. 0,05–0,1 mL/cm2 hücre ayırma reaktifi ekleyin ve hücreleri 37 °C'de 5 dakika inkübe edin.
- Hücre süspansiyonu oluşturmak için kolonileri 1.000 µL'lik bir pipet kullanarak nazikçe birkaç kez pipetleyin. Süspansiyonu 5–10 mL yıkama ortamı içeren 15 mL'lik konik bir tüpe aktarın ve tüpü üç kez ters çevirin.
- Hücreleri 250 × g hızında 3 dakika santrifüjleyin. Santrifüj sırasında, hazırlanmış bir MEF besleyici tabakasındaki ortamı aspire edin, besleyici tabakayı bir kez fosfat tamponlu salin ile yıkayın ve yıkama çözeltisini aspire edin.
- Yıkama ortamını, peleti rahatsız etmeden hnPSC peletinden aspire edin. Hücreleri 10 µM Y-27632 içeren PXGL ortamında resüspande edin ve hücreleri 1:3 veya 1:4 ayırma oranıyla hazırlanmış MEF besleyici tabakasına ekleyin.
- Hücreleri her 3–4 günde bir pasajlayın ve 37 °C, %7 CO₂ ve %5 O₂'de inkübe edin.
2. Endojen bir retrovirüs türevli cis-düzenleyici elementin tanımlanması ve delesyonunun tasarlanması
NOT: Aşağıdaki prosedür, endojen retrovirüs (ERV)-türevli cis-düzenleyici elementler (CRE'ler) için optimize edilmiştir, ancak diğer tanımlanmış CRE'ler için de uyarlanabilir.
- ERV'nin genomik koordinatlarının belirlenmesi
- Biyolojik soruya ve promotör, enhancer veya kromatin sınırı aktivitesine ilişkin mevcut kanıtlara göre bir ERV adayı seçin.
- UCSC Genom Tarayıcısını (15 Mayıs 2026 tarihinde erişildi) açın, uygun türü ve genom dizilimini36 seçin ve Repeats bölümüne gidin.
- RepeatMasker kanalını Full olarak ayarlayın (kanal en son 18 Ekim 2022 tarihinde UCSC'de güncellenmiştir). Tarayıcıyı yenileyin ve bir LTR retrotranspozonu olarak görüntülenen aday ERV'yi bulun.
NOT: RepeatMasker, RepBase ve Dfam37–39 gibi küratörlü kaynakları kullanarak transpoze olabilen elementleri tanımlar ve sınıflandırır. - Genomik koordinatlarını görüntülemek için aday LTR'yi seçin. ERV koordinatlarını ve elementin hemen yukarısındaki (upstream) ve aşağısındaki (downstream) 100 bp bölgeleri kaydedin.
NOT: hg38 diziliminde chr1:207635112–207636074 konumunda bulunan bir LTR5_Hs elementi için, sol kılavuzu tasarlamak üzere chr1:207635012–207635112 ve sağ kılavuzu tasarlamak üzere chr1:207636074–207636174 koordinatlarını kullanın.
- Benchling kullanarak kılavuz RNA'ların tasarlanması
- Bir Benchling projesi açın (15 Mayıs 2026 tarihinde erişildi). + simgesini seçin, CRISPR'ye gidin ve CRISPR guides seçeneğini belirleyin.
- Import from chromosomal coordinates seçeneğini belirleyin, uygun genom dizilimini seçin ve ERV'nin yukarısındaki 100 bp bölgenin koordinatlarını girin.
- Tasarım türü olarak single guide seçeneğini belirleyin ve kılavuz uzunluğunu 20 bp olarak ayarlayın. Cas9 nükleaz ile uyumlu olan protospacer-adjacent motif'i seçin ve Streptococcus pyogenes Cas9 kullanırken NGG'yi belirleyin.
- Gelişmiş ayarlar altındaki Include masked regions in off-target search seçeneğini etkinleştirin.
NOT: Çok kopya tekrarlayan dizileri hedeflemesi öngörülen kılavuz RNA'ları hariç tutun. Birden fazla genomik lokustaki kesimler hücre canlılığını azaltabilir ve yorumlamayı karmaşıklaştırabilir. - Genom tarayıcısındaki genomik bölgeyi inceleyin ve kılavuz dizisinin yakındaki tekrarlayan bir elementle örtüşmediğini doğrulayın. Finish seçeneğine tıklayın.
- Sequence map bölümüne gidin ve tüm diziyi seçin. Design CRISPR'ı ve ardından + simgesini seçin.
- Öngörülen on-target skoru yüksek ve öngörülen off-target skoru düşük olan bir kılavuz seçin40. Seçilen yukarı akış kılavuzunu sol kılavuz olarak tasarlayın ve sağ kılavuzu elde etmek için aynı prosedürü ERV'nin aşağı akışındaki 100 bp bölgesi için tekrarlayın.
- COSMID41 (15 Mayıs 2026 tarihinde erişildi) kullanarak ek bir in silico off-target analizi gerçekleştirin. Kodlayan genleri, diğer CRE'leri veya çok kopya tekrarlayan elementleri hedeflemesi öngörülen kılavuzları hariç tutun.
- CRISPOR kullanarak kılavuz RNA'ların tasarlanması
- UCSC Genom Tarayıcısında ERV'nin yukarısındaki 100 bp bölgeyi açın. View seçeneğini, ardından DNA sequence seçeneğini belirleyin ve yukarı akış dizisini FASTA formatında elde etmek için Get DNA seçeneğine tıklayın.
- CRISPOR'u (versiyon 5.2)42 açın ve FASTA formatındaki yukarı akış dizisini Step 1 alanına yapıştırın.
- Step 2 altında uygun genom dizilimini seçin ve örnek insan lokusu ile çalışırken hg38'yi belirleyin. Step 3 altında uygun protospacer-adjacent motif'i seçin ve diziyi analiz için gönderin.
- Spesifisite skoruna göre sıralanan aday kılavuzları gözden geçirin; yüksek spesifisite skoruna ve uygun öngörülen verimliliğe sahip bir kılavuz seçin.
- Seçilen kılavuzu sol kılavuz olarak tasarlayın. Sağ kılavuzu elde etmek için ERV'nin aşağı akışındaki 100 bp bölgesini kullanarak 2.3.1–2.3.4 adımlarını tekrarlayın.
- Her bir kılavuzu, CRISPR RNA'nın trans-activating CRISPR RNA'ya önceden hibritlendiği bir single-guide RNA olarak temin edin.
- Genotipleme için PCR primerlerinin tasarlanması
- ERV genomik aralığını yukarı akışta yaklaşık 500 bp ve aşağı akışta yaklaşık 500 bp genişletin.
NOTE: Örnek lokus chr1:207635112–207636074 için genişletilmiş aralık olan chr1:207634612–207636574'ü kullanın. - Genişletilmiş diziyi Primer3'e (versiyon 4.1.0)43 aktarın.
- Minimum, optimal ve maksimum primer uzunluklarını sırasıyla 18, 20 ve 25 nükleotid olarak; minimum, optimal ve maksimum erime sıcaklıklarını sırasıyla 57 °C, 59 °C ve 62 °C olarak; ve minimum, optimal ve maksimum GC içeriklerini sırasıyla %30, %50 ve %70 olarak ayarlayın.
- Tüm ERV'yi ve her iki kılavuz-RNA kesim bölgesini kapsayan bir amplikon üretmek için ürün-boyutu aralığını belirleyin. Hedeflenen ERV'nin bir yukarısına ve bir aşağısına birer primer tasarlayın.
- Beklenen vahşi tip ve delesyon ürünlerinin agaroz jel elektroforezi ile ayırt edilebildiğini doğrulayın. Primer çiftini, Şekil 2A'da gösterildiği gibi primer 1 ve 2 olarak etiketleyin.
- ERV genomik aralığını yukarı akışta yaklaşık 500 bp ve aşağı akışta yaklaşık 500 bp genişletin.
3. Eşleşmiş rehber RNA'ların hnPSC'lere nukleofeksiyonu
- Nükleofeksiyondan 48 saat önce, inaktive edilmiş MEF feeder katmanları içeren 12 kuyucuklu bir plaka hazırlayın. Gereken nükleofeksiyon reaksiyon sayısını hesaplayın ve her bir sol-rehber ve sağ-rehber çifti için bir reaksiyon kullanın.
- Her reaksiyon için, 3,6 µL nükleofeksiyon takviyesini 16,4 µL nükleofeksiyon çözeltisi ile birleştirin ve karışımı oda sıcaklığına getirin.
- Sol-rehber ve sağ-rehber Cas9 ribonükleoprotein komplekslerini ayrı tüplerde hazırlayın. Her bir rehber için, 2,9 µL fosfat tamponlu salin, 0,6 µL 100 µM sgRNA ve 0,5 µL 62 µM yüksek sadakatli Cas9 nükleazı birleştirin ve oda sıcaklığında 10–20 dk inkübe edin.
- Ribonükleoprotein inkübasyonu sırasında, hnPSC'lerden kültür ortamını aspire edin, hücreleri kaplayacak kadar hücre ayırma reaktifi ekleyin ve 37 °C'de 5 dk inkübe edin.
- 5 mL yıkama ortamı ekleyin ve ayrıştırılmış hücreleri toplayın. 250 × g hızda 3 dk santrifüjleyin, süpernatantı aspire edin ve peleti 10 µM Y-27632 içeren 2 mL PXGL ortamında nazikçe resüspande edin.
- Her nükleofeksiyon reaksiyonu için 2–3 × 10⁵ hücre sayın. Gereken sayıda hücreyi 250 × g hızda 3 dk santrifüjleyin, süpernatantı tamamen aspire edin ve pelete zarar vermeden 10 µL pipet ucu kullanarak kalıntı sıvıyı uzaklaştırın.
NOT: Nükleofeksiyondan önce MEF depletion işlemi yapmayın. Ayrıştırılmış karışımı, kalıntı MEF'lerle birlikte hnPSC olarak sayın. - 2 µL sol-rehber Cas9 kompleksini 2 µL sağ-rehber Cas9 kompleksi ile birleştirin ve beş kez pipetleyerek karıştırın. Birleştirilmiş ribonükleoprotein karışımından 4 µL'yi 20 µL nükleofeksiyon çözeltisine ekleyin.
- hnPSC peletini, kabarcık oluşturmadan tam nükleofeksiyon karışımında resüspande edin. Süspansiyonu bir nükleofeksiyon mikroküvet kuyucuğuna aktarın, ardından sıvının tabanı kapladığından emin olmak için küvete nazikçe vurun.
NOT: Hücreleri resüspande ettikten hemen sonra işleme devam edin. Aynı anda ikiden fazla reaksiyonu işlemeyin. - Hücreleri P3 Primary Cell program DN-100 kullanarak nükleofekte edin. Nükleofekte edilen hücreleri derhal 10 µM Y-27632 içeren önceden ısıtılmış PXGL ortamında resüspande edin.
- Hücreleri hazırlanmış 12 kuyucuklu MEF feeder plakasının bir kuyucuğuna ekleyin ve hücrelerin eşit dağılması için plakayı nazikçe T şeklinde hareket ettirin.
- Klonel türetmeye başlamadan önce hücreleri en az 2 gün inkübe edin. Düzenlenmemiş hnPSC'lerden ayrı bir stok tutun ve paralel olarak wild-type klonal hatlar türetin.
4. Klonal hnPSC hatlarının türetilmesi
- Tek hücreler ekilmeden 48 saat önce, inaktive edilmiş MEF besleyici tabakası içeren 10 cm'lik bir kap hazırlayın.
- Nukleofekt edilmiş ve paralel yabani tip hnPSC kültürlerinden kültür ortamını aspire edin. Hücre ayrıştırma reaktifi ekleyin ve hücreleri 37 °C'de 5 dakika boyunca inkübe edin.
- 5 mL yıkama ortamı ekleyin ve ayrıştırılmış hücreleri toplayın. Hücreleri 250 × g hızda 3 dakika boyunca santrifüjleyin, süpernatantı aspire edin ve hücreleri 10 µM Y-27632 içeren 400 µL PXGL ortamında iyice resüspande edin.
NOT: Tam bir tek hücre süspansiyonu oluşturun. Eksik ayrıştırma, karma genotipler içeren kolonilerin oluşmasına neden olabilir. - Hücreleri sayın ve yaklaşık 2.000 hücreyi 10 µM Y-27632 içeren PXGL ortamı ile hazırlanan 10 cm'lik MEF besleyici kaba ekleyin. Ortaya çıkan koloniler arasındaki teması minimize etmek için hücreleri eşit şekilde dağıtın.
- Kalan hücre süspansiyonunu iki porsiyona bölün. Bir porsiyonu yedek olarak kriyoprezerve edin ve ikinci porsiyondan toplu popülasyon genotiplemesi için genomik DNA izole edin.
- Seyreltik ekilmiş hücreleri 7–10 gün boyunca kültürleyin. Ekimden sonraki ilk gün ortamı değiştirmeyin; 2. ve 4. günler arasında her gün 3 mL ortamı 3 mL taze PXGL ortamı ile değiştirin ve 5. günden itibaren her gün ortamın yarısını değiştirin. Kültürü her gün inceleyin ve mekansal olarak ayrılmış tek hücreli koloniler görünür olduğunda koloni toplama işlemine geçin.
NOT: Kültür süresini hnPSC hattının büyüme hızına göre ayarlayın.
5. Yabani tip ve düzenlenen popülasyonların toplu genotiplemesini gerçekleştirin
NOT: Toplu popülasyondan genomik DNA ekstraksiyonu yapmak için bir genomik DNA ekstraksiyon kiti kullanın. Bu PCR'ları optimize etmek için farklı DNA polimerazların test edilmesi gerekebilir. Burada açıklanan deneyler için rutin olarak yüksek sadakatli (high-fidelity) bir DNA polimeraz master mix kullanılmıştır.
- Genomik DNA ekstraksiyon kiti kullanarak yabani tip ve düzenlenen toplu hücre popülasyonlarından genomik DNA izole edin.
- Primer 1 ve 2 ile uygun bir DNA polimeraz kullanarak hedef genomik bölgeyi PCR ile amplifiye edin. 10 µL 2× master mix, 7 µL H₂O, 0,5 µL 10 µM primer 1, 0,5 µL 10 µM primer 2 ve yaklaşık 50 ng/µL konsantrasyonda 2 µL genomik DNA içeren toplam 20 µL reaksiyon hacminde yüksek sadakatli (high-fidelity) bir DNA polimeraz master mix kullanın. Şekil 2'de gösterilen ve chr1:207635112–207636074 (hg38) koordinatlarında yer alan bir LTR5_Hs elementine karşılık gelen PCR için primer dizileri CCCCTCCAAGATGACCAGTT (primer 1) ve GGCCTCGCAAATCTTAACCC (primer 2) şeklindeydi. Döngü parametreleri 98 °C (30 s), 30 döngü boyunca 98 °C (10 s), 64 °C (30 s) ve 72 °C (45 s) ve ardından 72 °C'de 10 dk final uzatması olarak uygulandı.
- Kontrol olarak yabani tip popülasyondan elde edilen genomik DNA'yı ekleyin.
- PCR ürünlerini, TAE (Tris-asetat-EDTA) tamponu içerisinde güvenli bir DNA boyası ile boyanmış %1'lik agaroz jel kullanarak elektroforez ile ayırın. Jeli yaklaşık 45 dk boyunca 80 V'da çalıştırın. Bant boyutlarını tahmin etmek için ilk kuyucuğa bir DNA merdiveni ekleyin.
- Amplifiye edilen DNA bantlarını dijital bir jel görüntüleme sistemi kullanarak görselleştirin.
- Yabani tip ve düzenlenen toplu popülasyonlardan elde edilen ürünleri karşılaştırın. Şekil 2B'de primer 1 ve 2, yabani tip alellerden 1.468 bp'lik bir bant ve düzenlenen alellerden 500 bp'lik bir bant amplifiye eder.
- Koloni toplama aşamasına geçmeden önce, primer çiftinin ayırt edilebilir tam uzunluktaki ürünler ve delesyon ürünleri oluşturduğunu onaylayın.
- Herhangi bir delesyon ürünü tespit edilmediğinde, rehber RNA'ları yeniden tasarlayın veya nukleofeksiyon koşullarını optimize edin.
6. Tek hücreli kolonileri seçin ve genişletin
NOT: Seçilecek koloni sayısını dökme popülasyon PCR'sine göre belirleyin. Net bir delesyon ürünü tespit edildiğinde en az 48 düzenlenmiş koloni ile başlayın. Paralel yabani tip popülasyondan yaklaşık sekiz koloni seçin. Fazla sayıda klon elde etmeyi hedefleyin (örneğin, 4 yabani tip, 5 homozigot ve 3 heterozigot klon).
- Plakların ve reaktiflerin hazırlanması
- İşlenecek koloni sayısını belirleyin ve koloni seçiminden en az 48 s önce, 48 kuyucuklu bir plakta ilgili sayıda MEF besleyici tabaka kuyucuğu hazırlayın. Koloni seçimi gününde, MEF ortamını aspire edin, her kuyucuğu bir kez fosfat tamponlu salin ile yıkayın, yıkama solüsyonunu aspire edin ve 10 µM Y-27632 içeren PXGL ortamı ekleyin.
- Yuvarlak tabanlı 96 kuyucuklu bir plaktaki gerekli sayıda kuyucuğa 30 µL hücre ayrıştırma reaktifi ekleyin. Ekstraselüler matriks reaktifini soğuk DMEM/F-12 içinde 1:4 oranında seyreltin ve ikinci bir 96 kuyucuklu plakta, 10 µM Y-27632 içeren PXGL ortamı ile gerekli sayıda kuyucuğu hazırlayın. Nihai konsantrasyon 20 µL/mL olacak şekilde seyreltilmiş ekstraselüler matriks reaktifini her kuyucuğa ekleyin.
NOT: Fare genomik DNA amplifikasyonunu önlemek için genotipleme işleminde bu besleyicisiz 96 kuyucuklu plağı kullanın. - Steril 10 cm'lik bir petri kapağının iç yüzeyine yaklaşık 40 µL'lik yıkama ortamı damlaları damlatın. Ayrıştırma plağını, genişletme plağını, genotipleme plağını ve petri kapağını biyolojik güvenlik kabininin içine yerleştirin.
- Kolonilerin seçilmesi
NOT: Koloni seçimini bir biyolojik güvenlik kabini içinde, mikroskop altında gerçekleştirin. Ayarlanabilir uç aralıklı pipet kullanırken kolonileri sekizli gruplar halinde işleyin.- Bir pipeti 20 µL'ye ayarlayın ve steril bir pipet ucu takın. Ucu bir yıkama ortamı damlasına daldırıp iki kez pipetleyerek ön hazırlık (prime) yapın.
- Tek bir hücreden köken aldığı görünen, mekansal olarak izole bir koloni belirleyin. Komşu kolonilerle temas eden veya görünür şekilde ayrı alt koloniler içeren kolonilerden kaçının ve kültürde mevcut olan boyut ve morfoloji çeşitliliğini temsil eden kolonileri seçin.
- Ön hazırlığı yapılmış pipet ucuyla koloninin altını nazikçe kazıyın, ayrılan koloniyi aspire edin ve 30 µL hücre ayrıştırma reaktifi içeren yuvarlak tabanlı 96 kuyucuklu plağın bir kuyucuğuna transfer edin. Plağın bir sütununa sekiz koloni transfer edilene kadar işlemi tekrarlayın.
- Kolonileri hücre ayrıştırma reaktifinde 37 °C'de 5–10 dk inkübe edin. Ayarlanabilir uç aralıklı pipeti 96 kuyucuklu plaktaki aralığa ayarlayın ve her koloniyi yaklaşık 15 kez pipetleyerek ayrıştırın.
- Kuyucukları mikroskoptan inceleyin ve kolonilerin ayrıştığını onaylayın. Ayrıştırılmış her koloni süspansiyonundan 20 µL aspire edin, pipet aralığını 48 kuyucuklu plaka formatına ayarlayın ve süspansiyonu klonal genişletme plağındaki ilgili MEF içeren kuyucuğa aktarın.
- Her koloni süspansiyonundan kalan yaklaşık 10 µL'yi aspire edin, pipet aralığını 96 kuyucuklu plaka formatına ayarlayın ve süspansiyonu besleyicisiz genotipleme plağındaki ilgili kuyucuğa aktarın.
- Gerekli sayıda düzenlenen ve yabanı tipteki koloniler seçilene kadar prosedürü tekrarlayın. Genişletme ve genotipleme plaklarını inkübatöre geri yerleştirin.
7. Klonal hücre hatlarını genotipleme ve muhafaza etme
NOT: Çok sayıda klonla çalışırken kit yerine hızlı bir genomik DNA ekstraksiyon reaktifi kullanın.
- Genomik DNA'yı ekstrakte edin
- Koloni seçimi sonrası genotipleme plağını 24–48 saat inkübe edin ve her kuyucukta yeterli sayıda yapışık hücre olduğundan emin olun. Besiyerini aspire edin ve her kuyucuğa 20 µL hızlı genomik DNA ekstraksiyon çözeltisi ekleyin.
- Plakayı oda sıcaklığında 5 dakika inkübe edin ve her kuyucuktaki tüm hacmi bir PCR plağının karşılık gelen kuyucuğuna aktarın. PCR plağını folyo ile kapatın.
- Plakayı 65 °C'de 6 dakika, ardından 98 °C'de 2 dakika inkübe edin. Elde edilen lizattan 2–4 µL'yi doğrudan PCR için DNA şablonu olarak kullanın.
- Düzenlenmiş klonları tanımlayın ve doğrulayın
- Hedeflenen genomik bölgeyi, önceden açıklanan PCR ve döngü koşulları altında primer 1 ve 2'yi kullanarak amplifiye edin. Kontrol olarak düzenlenmemiş vahşi tip bir klondan alınan DNA'yı ve düzenlenen toplu popülasyonu ekleyin.
- PCR ürünlerini 5.4–5.5 adımlarında belirtilen koşulları kullanarak agaroz jel elektroforezi ile ayırın. Klon hattından elde edilen PCR bant boyutlarını, Şekil 2C'de gösterildiği gibi vahşi tip ve düzenlenen toplu popülasyon kontrolleriyle karşılaştırın.
- İlgili PCR bantlarını temiz bir skalpel kullanarak kesin ve kesilen jel fragmanlarından DNA'yı bir kit kullanarak saflaştırın. Saflaştırılmış PCR ürünlerini Sanger dizileme için uygun bir dizileme merkezine gönderin, dizileme sonuçlarını referans diziyle hizalayın ve her klonun delesyon eklemini ve genotipini doğrulayın. Beklenmedik PCR ürünleri veya belirsiz dizileme sonuçları veren klonları atın veya yeniden değerlendirin.
- Doğrulanmış klonları genişletin, kriyoprezerve edin ve kalite kontrolünü yapın
- Genotipi doğruladıktan sonra klonal genişletme plağındaki karşılık gelen kuyucukları belirleyin. Bağımsız olarak türetilmiş en az iki düzenlenmiş klonu ve aynı tek hücre klonlama prosedürü aracılığıyla paralel olarak türetilmiş birden fazla vahşi tip klonu genişletin.
- Alt akış deneylerine başlamadan önce, doğrulanmış her düzenlenmiş ve vahşi tip klondan yeterli sayıda viyali kriyoprezerve edin. Gerekli klonal hatlar doğrulanana ve kriyoprezerve edilene kadar düzenlenen toplu popülasyonu yedek olarak saklayın.
- Seçilen hnPSC klonları üzerinde karyotip analizi veya doğrulanmış başka bir genomik stabilite değerlendirmesi gerçekleştirin. Seçilen klonların, alt akış kullanımından önce beklenen hnPSC morfolojisini ve büyüme özelliklerini koruduğunu doğrulayın.
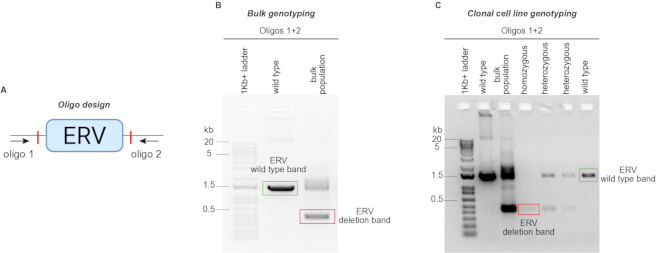
Şekil 2: ERV delesyonunun PCR tabanlı değerlendirmesi. (A) Hedeflenen ERV'nin yukarı akış ve aşağı akış bölgelerine yerleştirilen genotipleme primerlerinin tasarımı. (B) Tam uzunluktaki vahşi tip ürünü ve daha küçük olan delesyon ürününü gösteren temsili toplu popülasyon PCR'ı. Delesyon ürününün saptanması, düzenlemenin başarılı olduğunu doğrular ve klonal tarama için seçilecek koloni sayısının belirlenmesine yardımcı olur. (C) Sanger dizilemesi öncesinde bireysel klonal hücre hatlarının temsili PCR genotiplemesi. Vahşi tip klonlar tam uzunluktaki ürünü, heterozigot klonlar hem tam uzunluktaki hem de delesyon ürünlerini ve homozigot delesyon klonları ise yalnızca daha küçük olan delesyon ürününü üretir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Sonuçlar
Bu iş akışı, endojen retrovirüs (ERV) kaynaklı cis-düzenleyici elementlerin (CRE'ler) hedeflenen silinmelerini taşıyan klonal insan naif pluripotent kök hücre (hnPSC) hatlarının üretilmesine olanak tanır. Şekil 1'de özetlendiği gibi, ilgili ERV'yi çevreleyecek şekilde tasarlanan çift tek kılavuz RNA'lar (sgRNA'lar), Cas9 ile ayrı ayrı birleştirilir, nükleofeksiyondan önce kombine edilir ve hnPSC'lere aktarılır. İyileşme sürecinin ardından, düzenlenmiş popülasyon, tek hücrelerden türeyen kolonilerin oluşumuna ve izolasyonuna izin vermek için düşük yoğunlukta ekilir.
Toplu popülasyon PCR'si, hedeflenen delesyonun gerçekleşip gerçekleşmediğine dair erken bir gösterge sağlar. İki sgRNA kesim bölgesinin dışına yerleştirilen primerler, yabanı tip allelden daha büyük bir ürün ve delesyon allelinden daha küçük bir ürün amplifiye eder (Şekil 2A, B). Düzenlenmiş toplu popülasyonda her iki ürünün de saptanması, kültürün düzenlenmemiş ve düzenlenmiş hücrelerin bir karışımını içerdiğini gösterir. Delesyon ürününün saptanamaması, düzenlemenin verimsiz olduğunu gösterir ve kapsamlı koloni seçimi yapılmadan önce rehber tasarımı, ribonükleoprotein montajı veya nukleofeksiyon koşullarının yeniden değerlendirilmesi gerektiğini belirtir. Bireysel klonların PCR genotiplemesi; yabanı tip, heterozigot ve homozigot delesyon genotiplerini birbirinden ayırır (Şekil 2C). Yabanı tip klonlar sadece tam uzunluktaki ürünü, heterozigot klonlar hem tam uzunluktaki hem de delesyon ürünlerini ve homozigot delesyon klonları ise sadece daha küçük olan delesyon ürününü üretir. PCR ürünlerinin Sanger sekanslanması, beklenen delesyon eklemini ve amplifiye edilen allelin kimliğini doğrular.
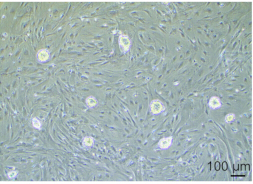
Tek hücreli koloniler tipik olarak 7–10 günlük kültürden sonra görünür hale gelir ve mekansal ayrılımları ile kompakt morfolojileri aracılığıyla tanımlanabilirler (Şekil 3). Fonksiyonel bir düzenleyici elementin delesyonu proliferasyon veya diferansiyasyon davranışını değiştirebileceğinden, gözlemlenen boyut ve morfoloji yelpazesindeki koloniler seçilmelidir. Üst üste binen veya tam olarak ayrılmamış hücrelerden kaynaklanan koloniler, karışık genotipler içerebileceği için bunlardan kaçınılmalıdır.
 0
Şekil 3: Koloni seçimi öncesindeki hnPSC kolonilerinin temsili morfolojisi. Klonla izolasyon aşamasındaki, birbirlerinden uzakta konumlanmış hnPSC kolonilerinin açık alan mikroskopi görüntüsü. Ölçek çubuğu = 100 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Test edilen ERV lokuslarında, tam delesyon frekansları izole edilen hnPSC klonlarının %10–78,9'u arasında değişmiş; homozigot veya hemizigot delesyon frekanslarının ortalaması ve medyanı sırasıyla %43,6 ve %45,8 olarak belirlenmiştir (Tablo 1). Gözlemlenen bu varyasyonun; rehber aktivitesindeki lokusa özgü farklılıkları, kromatin erişilebilirliğini, hücre hattı arka planını ve büyüme koşullarını yansıttığı düşünülmektedir. Yaban tipi klonların paralel olarak türetilmesi, düzenlenen hatlarla aynı tek hücreli klonlama, genişletme ve kültür geçmişinden geçmiş kontroller sağlar.
| Sol kılavuz | Doğru kılavuz | İleri PCR primeri | Ters PCR primeri | Seçilmiş klonlar | Yabani tip | Hetero zigotik delesyon | Com- tam silinme | Un- istenilen yeniden- düzenleyin Ödemler | Etkili | Bantlar net olarak görünmüyor | % heterojenlik zigotik | % homo zigotik | ||||
| TAATGACCG TGTAATTTATA | AACAGCCATG ATGATGATGG | CCCCTCCAAG ATGACCAGTT | GGCCTCGCAA ATCTTAACCC | 24 | 6 | 6 | 6 (Homo zigotik) | 1 | 13 | 5 | 46.2 | 31.6 | ||||
| TTGATTTAGA AAGATCAGTG | TCTGACAGC ACTGATCTGAA | CCCCAACCC ACCATTACCTA | TTGGGAGCTG TCTTGCCTAA | 24 | 3 | 3 | 11 (Homo zigotik) | 0 | 6 | 7 | 50.0 | 64.7 | ||||
| AGGCAGTCCT TGTCCCACAG | CTAGAGAAA AGCATCCACGT | CTACCTTGGA GCCCCTCTTC | TCTCCCTCCTT CTCTCTGCT | 24 | 1 | 4 | 12 (Homo zigotik) | 3 | 8 | 4 | 50.0 | 60.0 | ||||
| TTACTAGTTAT TGAGTGAAG | TGTATGTGT CCTCAATTGTG | TTGGTCACT TGGCATTTGTG | TCCCCTTGTT CACCTTGACT | 48 | 1 | 2 | 15 (Homo zigotik) | 1 | 4 | 29 | 50.0 | 78.9 | ||||
| CCAAGTTAGG TGGCAAGTCC | ATGGATGACT ATCAGTAATA | CCATCTGTGA GCGCTTTTGG | GGGTTTGAG TCCCTGCCATT | 24 | 15 | 0 | 2 (Homo zigotik) | 3 | 18 | 4 | 0.0 | 10.0 | ||||
| TCAATGCAGT GTTAGATTCC | GGAGGGAGT CTGAGTATTCG | CTGAGTGACG CAGCTGGATA | CAAGACTGCC TCACACACAC | 48 | 26 | 13 | 6 (Homo zigotik) | 1 | 40 | 2 | 32.5 | 13.0 | ||||
| TAACCAATAGA ATGTGGCAA | GAATGTGTCT CCTTGAAAGA | TGGCTCCCA ACATCCCAAT | AACGCTTGAG GGGAATGGAT | 48 | 14 | NA (Hemi zigotik) | 4 (Hemi zigotik) | 1 | 15 | 29 | Lütfen çevrilecek metni sağlayın. | 21.1 | ||||
| CCTTTCCAATA TTTATGCCT | AAATATTAAC AAGTGCAATA | ACTTTGAGG AGAATGGGCATC | GGTGTTTATT CCAGGGACGC | 24 | 4 | NA (Hemi zigotik) | 9 (Hemi zigotik) | 0 | 4 | 11 | NA | 69.2 | ||||
Tablo 1: ERV'lerin genetik delesyon verimlilikleri. Veriler LTR5_Hs ailesine ait ERV'ler için gösterilmiştir. LTR5_Hs elementlerinin belirtilen genlerin ekspresyonunu düzenleyip düzenlemediğini test etmek için klonal hücre hatları oluşturulmuştur. Tablo; her bir ERV'nin genomik koordinatlarını, delesyon için kullanılan rehber RNA'ları, genotipleme için kullanılan PCR primerlerini ve klon genotipleme sonuçlarını içermektedir. “Etkili” (Effective), yorumlanabilir genotipleme sonuçlarına sahip klonları ifade eder. İstenmeyen yeniden düzenlemeler (Undesired rearrangements), beklenen vahşi tip veya delesyon ürün boyutlarıyla uyuşmayan ürünleri ifade eder. “Bantlar net olarak görünmüyor” (Bands not clearly visible), herhangi bir yorumlanabilir PCR ürünü elde edilemeyen örnekleri ifade eder. Delesyon yüzdeleri, payda olarak yorumlanabilir genotipleme sonuçlarına sahip klonlar kullanılarak hesaplanmıştır. Heterozigot delesyonlar, ERV'nin iki alelden birinde delesyona uğradığı klonları ifade eder. Tam delesyonlar, ERV'nin kromozomun iki kopyasında da (homozigot klonlar) veya seks kromozomları durumunda tek kromozom kopyasında (hemizigot klonlar) delesyona uğradığı klonları ifade eder.
Doğrulanmış vahşi tip, heterozigot ve homozigot veya hemizigot delesyon klonları daha sonra genişletilebilir, kriyoprezerve edilebilir ve genomik stabilite açısından değerlendirilebilir. Bu hatlar; bireysel ERV kaynaklı CRE'lerin gen ekspresyonu, hücre proliferasyonu, soy farklılaşması ve erken insan gelişiminin kök hücre tabanlı modelleri üzerindeki etkilerini araştırmak için bir platform sağlar.
Tartışma
Bu protokol, hnPSC'lerde ERV kaynaklı CRE'lerin silinmesi için CRISPR-Cas9 ribonükleoprotein tabanlı bir yaklaşımı açıklamaktadır. Yöntem; eşleştirilmiş sgRNA tasarımını, önceden monte edilmiş Cas9-sgRNA komplekslerinin geçici iletimini, klonal türetmeyi, PCR tabanlı taramayı, Sanger dizilemeyi ve genomik stabilite değerlendirmesini birleştirir. hnPSC'ler disosyasyona ve kültür pertürbasyonuna karşı hassas olduğundan, sağlıklı feeder destekli kültürlerin sürdürülmesi, tam bir tek hücre süspansiyonunun kullanılması, hücre resüspansiyonu ile nukleofeksiyon arasındaki sürenin minimize edilmesi ve stresli manipülasyonlar sırasında ortamın Y-27632 ile desteklenmesi dahil olmak üzere birkaç adım başarının sağlanması için kritiktir. ERV'ler tekrarlayan diziler olduğundan ve kötü seçilmiş kılavuzlar birden fazla genomik lokusu kesebileceğinden, yöntem aynı zamanda dikkatli kılavuz seçimini gerektirir. Bu nedenle, hedef dışı değerlendirme tekrarlayan bölgeleri içermeli ve kodlayıcı genlerde, diğer CRE'lerde veya çok kopya transpoze edilebilir elementlerde öngörülen aktiviteye sahip kılavuzları hariç tutmalıdır.
Toplu popülasyon genotiplendirmesi, iş akışında önemli bir karar noktasıdır. Koloni seçimi öncesinde delesyon ürününün saptanması, kesme ve delesyonun gerçekleştiğini doğrular ve kaç koloninin taranması gerektiğini belirlemeye yardımcı olur. Delesyon ürünü saptanmadığında, doğrudan geniş ölçekli koloni izolasyonuna geçmek yerine en etkili düzeltici önlem genellikle bir veya her iki sgRNA'nın yeniden tasarlanmasıdır. Nukleofeksiyon sonrası düşük geri kazanım; düşük başlangıç hücre kalitesinden, hücre peletindeki kalıntı ortamın yetersiz uzaklaştırılmasından, resüspansiyon sonrası işlemenin gecikmesinden veya hücrelerin aşırı manipülasyonundan kaynaklanabilir. Eksik tek hücreli disosiasyon, karışık genotipler içeren koloniler oluşturabilirken; yoğun ekim, bitişik kolonilerin birleşmesine neden olabilir. Bu sorunlar; titiz ama nazik bir disosiasyon, seyrek ekim ve iyi izole edilmiş kolonilerin seçilmesiyle azaltılabilir.
Tam ERV delesyon verimliliği, test edilen lokuslar arasında %10 – %78,9 arasında değişmiş olup ortalama %43,6'dır. Bu aralık, düzenleme verimliliğinin güçlü bir şekilde lokusa bağımlı olduğunu ve ayrıca hnPSC hatları ile kültür koşulları arasında farklılık gösterebileceğini göstermektedir. Hücre döngüsü aktivitesi CRISPR-Cas9 düzenleme verimliliğini etkileyebilir ve bu nedenle proliferasyon hızındaki farklılıklar klon geri kazanımını etkileyebilir30. Ek olarak, temel bir düzenleyici role sahip olan bir ERV'nin delesyonu proliferasyonu azaltabilir, koloni morfolojisini değiştirebilir veya homozigot klonların geri kazanımını engelleyebilir. Düzenlenmiş bazı popülasyonlar, büyümenin devam etmesine izin veren kompanse edici genomik değişiklikler de kazanabilir. Bu nedenlerle, birbirinden bağımsız olarak türetilmiş birden fazla klon analiz edilmeli ve beklenmedik fenotipler, ek klonlar yeniden türetildikten veya çözüldükten sonra doğrulanmalıdır. Alt aşamadaki yorumlamalardan önce genotip doğrulaması, karyotip analizi ve paralel vahşi tip klonlarla karşılaştırma yapılması gereklidir.
Bu yöntemin temel kısıtlaması, düşük verimliliğidir. Her lokus için ayrı rehber tasarımı, nukleofeksiyon, koloni izolasyonu, genotipleme, sekans doğrulaması ve genişletme işlemleri gerekmektedir. Sonuç olarak bu yöntem, genom çapında taramadan ziyade, seçili ERV'lerin odaklanmış fonksiyonel testleri için daha uygundur. dCas9 tabanlı epigenetik düzenleyiciler kullanılarak ERV'lerin çoklu veya aile bazlı manipülasyonu, birçok ilişkili elementi aynı anda bozabilir14; ancak bu yaklaşım daha geniş hedef dışı etkilere yol açabilir ve hangi bireysel insersiyonun bir fenotipten sorumlu olduğunu kolayca belirleyemez. Buna karşılık, mevcut strateji lokusa özgü delesyona olanak tanır ve moleküler veya gelişimsel etkilerin doğrudan tanımlanmış bir ERV kaynaklı CRE'ye atfedilmesini sağlar.
ERV'lerin memeli düzenleyici ağlarının evrimine kapsamlı bir şekilde katkıda bulunmuş olması ve erken gelişim sırasında promotörler, enhancerlar ve diğer düzenleyici elementler olarak işlev görebilmeleri nedeniyle bu yöntem özellikle önem taşımaktadır5,6,13,14,44,45,46,47. Bazı münferit ERV'lerin temel gelişimsel işlevler yürüttüğü halihazırda gösterilmiştir12,13,14. Bu protokol aracılığıyla oluşturulan düzenlenmiş hnPSC hatları; gen ekspresyon analizi, proliferasyon deneyleri, iki boyutlu soy farklılaşması ve insan blastoidlerinin veya diğer kök hücre tabanlı embriyo modellerinin üretimi için kullanılabilir14,23. Bu uygulamalar, insan kök hücre tabanlı embriyo modeli araştırmaları için geçerli olan etik ve düzenleyici çerçeveler kapsamında yürütülmelidir48,49,50.
Genom düzenlemedeki gelecekteki ilerlemeler, otomatik klon işleme ve yüksek kapasiteli genotiplendirme, bireysel ERV eklemelerinin daha sistematik bir şekilde değerlendirilmesine olanak tanıyabilir51. Bu tür yaklaşımlar rutin olarak kullanılabilir hale gelene kadar, mevcut yöntem, seçilen kodlamayan düzenleyici elementlerin tek lokus çözünürlüğünde test edilmesi için tekrarlanabilir bir çerçeve sunmaktadır. Yöntemin temel avantajı, tanımlanmış bir genomik delesyonu, insan preimplantasyon modelinde moleküler ve gelişimsel fenotiplerle ilişkilendirme yeteneğidir; böylece türe özgü ERV kaynaklı dizilerin, insan embriyogenezi sırasında gen düzenleyici programları nasıl şekillendirdiğinin aydınlatılmasına yardımcı olur.
Açıklamalar
Herhangi bir çıkar çatışması beyan edilmemiştir.
Teşekkürler
Genom düzenleme üzerine faydalı tartışmaları için Dr. Jaaved Mohammed'e teşekkür edilir. Bu çalışmayı ve Fueyo laboratuvarını desteklediği için Max Planck Vakfı'na teşekkür edilir. Merel Wentink rErasmus+ bursu almıştır (ID 50377).
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 2-Merkaptoetanol | Gibco | 21985023 | N2B27 bazal medyuma eklenir. Kurumsal kimyasal güvenlik prosedürlerine uygun olarak kullanın. |
| 4D Nucleofector X-Unit | Lonza | AAF-1003X | Nükleofeksiyon için kullanılan cihaz. |
| Agaroz Standart, 1 kg | Roth | 3810.4 | DNA elektroforez jellerini hazırlamak için kullanılır. |
| Alt-R S. pyogenes Cas9 HiFi V3 Nükleaz | Integrated DNA Technologies | 1081060 | Ribo nükleoprotein komplekslerini oluşturmak için kullanılan yüksek sadakatli Cas9 nükleaz. |
| Alt-R sentetik tek kılavuz RNA | Integrated DNA Technologies | NA | Seçilen ERV'yi çevreleyecek şekilde tasarlanmış özel sgRNA'lar. Kılavuz dizileri Tablo 1'de yer almaktadır. |
| Antibiyotik-Antimikotik | Gibco | 15240062 | Hücre kültürü medyaları için isteğe bağlı antimikrobiyal takviye. |
| Axiovert 40 CFL Mikroskobu | Zeiss | 491202-0002-001 | Kültür sırasında rutin MEF ve hnPSC gözlemleri için kullanılır. |
| B-27 Takviyesi, 50× | Gibco | 17504044 | N2B27 bazal medyuma eklenen takviye. |
| Bovin Albümin Fraksiyon V, %7,5 çözelti | Gibco | 15260037 | Plastik sarf malzemelerine tutunma yoluyla hnPSC kaybını azaltmak için yıkama medyuma eklenir. |
| 96 Kuyucuklu Hızlı Reaksiyonlu C1000 Touch Termal Döngüleyici | Bio-Rad | 1851196 | PCR amplifikasyonu için kullanılan cihaz. |
| CF1 Fare Embriyonik Fibroblastları, ışınlanmış | Thermo | A234181 | hnPSC kültürünü desteklemek için kullanılan inaktive edilmiş MEF feeder hücreleri. Kurum içinde hazırlanmış alternatif bir doğrulanmış hücre hattı da kullanılabilir. |
| Countess 3 Otomatik Hücre Sayacı | Thermo / Invitrogen | AMQAX2000 | MEF veya hnPSC sayımı için kullanılır. |
| DMEM/F-12 | Gibco | 11330032 | N2B27 medyumunun ve yıkama medyumunun bir bileşeni; ayrıca hücre dışı matris reaktifini seyreltmek için kullanılır. |
| Kalsiyum ve magnezyum içermeyen Dulbecco’s fosfat tamponlu tuzlu solüsyonu | Gibco | 14190144 | Feeder tabakalarını yıkamak için kullanılır. |
| ESGRO Komple Jelatin Solüsyonu | Sigma-Aldrich | SF008 | MEF feeder hücreleri ekilmeden önce kültür kaplarını kaplamak için kullanılır. |
| FBS Supreme | PAN-Biotech | P30-3031 | MEF kültür medyumu hazırlamak için kullanılır. |
| Filtre ünitesi, 1.000 mL, 0,22 µm gözenek boyutu | Corning | 431098 | Büyük hacimli kültür medyalarının steril filtrasyonu için kullanılır. |
| Filtre ünitesi, 500 mL, 0,22 µm gözenek boyutu | Corning | 431097 | Kültür medyalarının steril filtrasyonu için kullanılır. |
| FreSR-S kriyoprezervasyon medyumu | STEMCELL Technologies | 5859 | hnPSC'lerin kriyoprezervasyonu için kullanılır. |
| GelDoc jel görüntüleme sistemi | Bio-Rad | 170-8195 | Elektroforez jellerindeki DNA bantlarını görselleştirmek için kullanılan ekipman. |
| Geltrex Flex LDEV-Free hESC-Onaylı Düşük Büyüme Faktörlü Bazal Membran Matrisi | Thermo | A4000046803 | MEF yokluğunda hnPSC kültürü için kullanılan hücre dışı matris. |
| Generuler 1 Kb Plus DNA Merdiveni | Fischer Scientific | 11581625 | Elektroforezde DNA bant boyutlarını ölçmek için kullanılır. |
| GlutaMAX Takviyesi | Gibco | 35050061 | MEF kültür medyumunda kullanılan stabilize L-glutamin takviyesi. |
| Gö6983 | Bio-Techne | 2285/10 | PXGL medyumu hazırlamak için kullanılan atipik protein kinaz C inhibitörü. |
| Yüksek glikozlu Dulbecco’s modifiye Eagle medyumu | Gibco | 11965092 | MEF kültür medyumu hazırlamak için kullanılan bazal medyum. |
| Karyotipleme | Life&Brain | NA | Kromozomlardaki anomalileri tespit etmek için kullanılır. |
| L-glutamin | Gibco | 25030081 | N2B27 bazal medyuma eklenir. |
| Monarch Spin gDNA Ekstraksiyon Kiti | New England Biolabs | T3010 | Düzenlenmiş bulk popülasyonlardan genomik DNA ekstraksiyonu için kullanılan kit. |
| Move It 8 kanallı ayarlanabilir aralıklı pipet, 30–300 µL | Eppendorf | 3125000176 | Ayrıştırılmış kolonileri 96 kuyucuklu genotipleme plağından 48 kuyucuklu genişletme plağına aktarmak için kullanılır. |
| N-2 Takviyesi, 100× | Gibco | 17502048 | N2B27 bazal medyuma eklenen takviye. |
| Neurobasal Medyum | Gibco | 21103049 | N2B27 bazal medyumunun bir bileşeni. |
| Nikon Zoom Stereo Mikroskobu | Nikon | SMZ1270 | hnPSC koloni seçimi için kullanılır. |
| NucleoSpin Jel ve PCR Temizleme | Machery-Nagel | 740609.25 | Sanger sekanslaması öncesinde jellerden DNA ekstraksiyonu için kullanılır. |
| P3 Primer Hücre 4D-Nucleofector X Kit S | Lonza | V4XP-3032 | Cas9-sgRNA ribonükleoprotein komplekslerinin iletimi için kullanılan nükleofeksiyon reaktif kiti. Küvetleri içerir. |
| PB004 hücre hattı | Prof. Hiromitsu Nakauchi'den hediye | NA | STR doğrulamalı, Mikoplazma testli. PMID: 26023098'de yayınlanmıştır.33 |
| PCR primerleri | Sigma-Aldrich | NA | hnPSC klonlarının PCR ile genotiplemesi için kullanılır. Diziler Tablo 1'dedir. |
| PD0325901 | Selleck Chemicals | S1036 | PXGL medyumu hazırlamak için kullanılan MEK inhibitörü. |
| Phusion Green Hot Start II Yüksek Sadakatli PCR Master Mix | Thermo | F566L | PCR genotiplemesi için DNA polimeraz içeren master mix. |
| QuickExtract DNA Ekstraksiyon Solüsyonu | Biosearch Technologies | QE09050 | Klon hücre genotipleme plakalarından hızlı genomik DNA ekstraksiyonu için kullanılır. |
| Rekombinant insan lösemi inhibitör faktörü | Gibco | 300-05-50UG | PXGL medyuma eklenir. Kurum içinde hazırlanmış eş değer bir doğrulanmış preparat kullanılabilir. |
| Sanger sekanslama | Eurofins | NA | Genotipleri doğrulamak için DNA sekanslamak amacıyla kullanılır. |
| Sodyum piruvat, 100 mM | Gibco | 11360070 | MEF kültür medyumuna eklenir. |
| SYBR Safe DNA Jel Boyası | Thermo | S33102 | DNA elektroforez jelleri için boya. |
| TrypLE Express Enzimi, 1×, fenol kırmızı | Gibco | 12605036 | Pasajlama, nükleofeksiyon hazırlığı ve klonal türetme sırasında hnPSC'leri ayrıştırmak için kullanılır. |
| Su, Nükleazsız, Moleküler Biyoloji Sınıfı, Ultrapure | Thermo | J71786.AP | Genotipleme PCR'ı için kullanılır. |
| XAV939 | Cell Guidance Systems | SM38-50 | PXGL medyumu hazırlamak için kullanılan Wnt-yolu inhibitörü. |
| Y-27632 | STEMCELL Technologies | 72304 | Çözdürme, pasajlama, nükleofeksiyon sonrası toparlanma ve tek hücre ekimi sırasında eklenen ROCK inhibitörü. |
Kaynaklar
- Wittkopp PJ, Kalay G. Cis-regulatory elements: molecular mechanisms and evolutionary processes underlying divergence. Nat Rev Genet. 2011;13(1):59–69.
- Jacques PÉ, Jeyakani J, Bourque G. The majority of primate-specific regulatory sequences are derived from transposable elements. PLoS Genet. 2013;9(5):e1003504. doi:10.1371/journal.pgen.1003504.
- Trizzino M, et al. Transposable elements are the primary source of novelty in primate gene regulation. Genome Res. 2017;27(10):1623–33.
- Grandi N, Tramontano E. Type W Human Endogenous Retrovirus (HERV-W) Integrations and Their Mobilization by L1 Machinery: Contribution to the Human Transcriptome and Impact on the Host Physiopathology. Viruses. 2017;9(7):162. doi:10.3390/v9070162.
- Senft AD, Macfarlan TS. Transposable elements shape the evolution of mammalian development. Nat Rev Genet. 2021;22(11):691–711.
- Fueyo R, Judd J, Feschotte C, Wysocka J. Roles of transposable elements in the regulation of mammalian transcription. Nat Rev Mol Cell Biol. 2022;23(7):481–97.
- Oomen ME, et al. An atlas of transcription initiation reveals regulatory principles of gene and transposable element expression in early mammalian development. Cell. 2025;188(4):1156–1174.e20.
- Göke J, et al. Dynamic transcription of distinct classes of endogenous retroviral elements marks specific populations of early human embryonic cells. Cell Stem Cell. 2015;16(2):135–41.
- Grow EJ, et al. Intrinsic retroviral reactivation in human preimplantation embryos and pluripotent cells. Nature. 2015;522(7555):221–5.
- Xiang Y, Liang H. The Regulation and Functions of Endogenous Retrovirus in Embryo Development and Stem Cell Differentiation. Stem Cells Int. 2021;2021:6660936. doi:10.1155/2021/6660936.
- Macfarlan TS, et al. Embryonic stem cell potency fluctuates with endogenous retrovirus activity. Nature. 2012;487(7405):57–63.
- Modzelewski AJ, et al. A mouse-specific retrotransposon drives a conserved Cdk2ap1 isoform essential for development. Cell. 2021;184(22):5541–5558.e22.
- Frost JM, et al. Regulation of human trophoblast gene expression by endogenous retroviruses. Nat Struct Mol Biol. 2023;30(4):527–38.
- Fueyo R, et al. A human-specific regulatory mechanism revealed in a pre-implantation model. Nature. 2025;647(8088):238–47.
- Fuentes DR, Swigut T, Wysocka J. Systematic perturbation of retroviral LTRs reveals widespread long-range effects on human gene regulation. eLife. 2018;7:e35989. doi:10.7554/eLife.35989.
- Pontis J, et al. Hominoid-Specific Transposable Elements and KZFPs Facilitate Human Embryonic Genome Activation and Control Transcription in Naive Human ESCs. Cell Stem Cell. 2019;24(5):724–735.e5.
- Xiang X, et al. Human reproduction is regulated by retrotransposons derived from ancient Hominidae-specific viral infections. Nat Commun. 2022;13(1):463. doi:10.1038/s41467-022-28105-1.
- Theunissen TW, et al. Molecular Criteria for Defining the Naive Human Pluripotent State. Cell Stem Cell. 2016;19(4):502–15.
- Bredenkamp N, et al. Wnt Inhibition Facilitates RNA-Mediated Reprogramming of Human Somatic Cells to Naive Pluripotency. Stem Cell Rep. 2019;13(6):1083–98.
- Guo G, et al. Human naive epiblast cells possess unrestricted lineage potential. Cell Stem Cell. 2021;28(6):1040–1056.e6.
- Io S, et al. Capturing human trophoblast development with naive pluripotent stem cells in vitro. Cell Stem Cell. 2021;28(6):1023–1039.e13.
- Okubo T, et al. Hypoblast from human pluripotent stem cells regulates epiblast development. Nature. 2024;626(7998):357–66.
- Shahbazi MN, Pasque V. Early human development and stem cell-based human embryo models. Cell Stem Cell. 2024;31(10):1398–418.
- Kagawa H, et al. Human blastoids model blastocyst development and implantation. Nature. 2022;601(7894):600–5.
- Yu L, et al. Large-scale production of human blastoids amenable to modeling blastocyst development and maternal-fetal cross talk. Cell Stem Cell. 2023;30(9):1246–1261.e9.
- Liu X, et al. Modelling human blastocysts by reprogramming fibroblasts into iBlastoids. Nature. 2021;591(7851):627–32.
- Yu L, et al. Blastocyst-like structures generated from human pluripotent stem cells. Nature. 2021;591(7851):620–6.
- Sozen B, et al. Reconstructing aspects of human embryogenesis with pluripotent stem cells. Nat Commun. 2021;12(1):5550. doi:10.1038/s41467-021-25853-4.
- Yanagida A, et al. Naive stem cell blastocyst model captures human embryo lineage segregation. Cell Stem Cell. 2021;28(6):1016–1022.e4.
- Pacesa M, Pelea O, Jinek M. Past, present, and future of CRISPR genome editing technologies. Cell. 2024;187(5):1076–100.
- Hendel A, et al. Chemically modified guide RNAs enhance CRISPR-Cas genome editing in human primary cells. Nat Biotechnol. 2015;33(9):985–9.
- Kim S, et al. Highly efficient RNA-guided genome editing in human cells via .delivery of purified Cas9 ribonucleoproteins. Genome Res. 2014;24(6):1012–9.
- Masaki H, et al. Interspecific in vitro. assay for the chimera-forming ability of human pluripotent stem cells. Development. 2015;142(18):3222–30.
- Thomson JA, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145–7.
- Conner DA. Mouse Embryo Fibroblast (MEF) Feeder Cell Preparation. Curr Protoc Mol Biol. 2000;51(1):23.2.1–23.2.7.
- Casper J, et al. The UCSC Genome Browser database: 2026 update. Nucleic Acids Res. 2026;54(D1):D1331–D1335.
- Bao W, Kojima KK, Kohany O. Repbase Update, a database of repetitive elements in eukaryotic genomes. Mob DNA. 2015;6:11. doi:10.1186/s13100-015-0041-9.
- Storer J, et al. The Dfam community resource of transposable element families, sequence models, and genome annotations. Mob DNA. 2021;12(1):2. doi:10.1186/s13100-020-00230-y.
- Tarailo-Graovac M, Chen N. Using RepeatMasker to identify repetitive elements in genomic sequences. Curr Protoc Bioinformatics. 2009;25:4.10.1–4.10.14.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nat Biotechnol. 2016;34(2):184–91.
- Cradick TJ, et al. COSMID: A Web-based Tool for Identifying and Validating CRISPR/Cas Off-target Sites. Mol Ther Nucleic Acids. 2014;3(12):e214. doi:10.1038/mtna.2014.64.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242–W245.
- Untergasser A, et al. Primer3—new capabilities and interfaces. Nucleic Acids Res. 2012;40(15):e115. doi:10.1093/nar/gks596.
- Dopkins N, Nixon DF. Activation of human endogenous retroviruses and its physiological consequences. Nat Rev Mol Cell Biol. 2024;25(3):212–22.
- Li P, Yamanaka S. Transposable element regulation in mammalian germ cells and other contexts: multilayered repression, fertility, and regulated activation. Epigenomics. 2026;0(0):1–18.
- Yu H, et al. Dynamic reprogramming of H3K9me3 at hominoid-specific retrotransposons during human preimplantation development. Cell Stem Cell. 2022;29(7):1031–1050.e12.
- Xiang Y, et al. Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development. Science. 2026;391(6783):eadv5257. doi:10.1126/science.adv5257.
- Arias AM, et al. Human stem cell-based embryo models: innovation, ethics, and policy. Hum Reprod. 2026;41(6):830–46.
- Bentzen HB, et al. A guide to using embedded ethics in human stem-cell-based embryo model research. Nat Cell Biol. 2026;28(4):665–73.
- Clark AT, et al. Stem cell-based embryo models: The 2021 ISSCR stem cell guidelines revisited. Stem Cell Rep. 2025;20(6):102514. doi:10.1016/j.stemcr.2025.102514.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619–44.