Bu makale, pulmoner hipertansiyon biyobelirteçlerini ve aday terapötik bileşikleri belirlemek amacıyla kamuya açık transkriptomik veri setleri, makine öğrenimi, harici doğrulama, kantitatif ters transkripsiyon PCR, Connectivity Map taraması ve moleküler kenetlenmeyi entegre eden tekrarlanabilir bir biyoinformatik iş akışı sunmaktadır.
Araştırma makalesi
Pulmoner Hipertansiyon Biyobelirteçlerinin ve Aday Terapötik Bileşiklerin Biyoenformatik ve Makine Öğrenmesi ile Belirlenmesi
Bu makalede
Özet
Özet
Bu çalışma, halka açık transkriptomik veriler ve bağımsız doğrulama kaynakları kullanarak pulmoner hipertansiyon (PH) ile ilişkili moleküler biyobelirteçleri ve aday küçük moleküllü bileşikleri belirlemeyi amaçlamıştır. Normalizasyon, prob anotasyonu ve ComBat grup etkisi (batch-effect) düzeltmesinin ardından üç Gene Expression Omnibus veri seti (GSE22356, GSE33463 ve GSE48149) entegre edilmiştir. Çekirdek özellik genlerini belirlemek için diferansiyel ekspresyon analizi, ağırlıklı gen ko-ekspresyon ağ analizi, fonksiyonel zenginleştirme analizi, protein-protein etkileşim ağı analizi ve üç makine öğrenimi algoritması kullanılmıştır. Tanısal performans, alıcı işletim karakteristik (ROC) eğrileri kullanılarak değerlendirilmiştir. Harici doğrulama, bağımsız bir akciğer dokusu kohortunu (GSE117261), bir pulmoner arter tek hücreli RNA dizileme veri setini (GSE210248) ve bağımsız akciğer dokusu örneklerinde kantitatif ters transkripsiyon PCR doğrulamasını içermiştir. Aday bileşikleri taramak için Connectivity Map tabanlı ilaç yeniden konumlandırma ve moleküler kenetleme (docking) kullanılmıştır. Yetmiş sekiz diferansiyel eksprese olmuş gen belirlenmiş ve CXCL10, JUN, IFIH1, MX1 ve TLR7 çekirdek özellik genleri olarak seçilmiştir. Bağımsız GSE117261 akciğer dokusu kohortunda, JUN en güçlü harici desteği gösterirken, diğer genlerin replikasyonu değişkenlik göstermiştir. 20 biyolojik olarak bağımsız pulmoner arteriyel hipertansiyon örneği ve 20 kontrol örneğinde yapılan kantitatif ters transkripsiyon PCR, beş genin tamamının yukarı yönlü düzenlendiğini (upregulation) doğrulamıştır. Görünür beş genli qRT-PCR modeli ve 100 tekrarlı stratifiye beş katlı çapraz doğrulama analizlerinin her ikisi de eğri altında kalan alanı (AUC) 1,000 olarak vermiştir; ancak küçük kohort, dikkatli bir yorumlama ve bağımsız prospektif doğrulama gerektirmektedir. GSE210248'in tek hücreli analizi, immün ve yapısal hücreler arasındaki değişmiş iletişimi ve düz kas hücresi fenotipik geçişini desteklemiştir. Connectivity Map taramasında BRD-K91900765/VX-745 en yüksek sırayı almıştır. Bunun yerleşik farmakolojik hedefi olan MAPK14/p38α, pozitif referans kenetleme proteini olarak dahil edilmiş, beş biyobelirteçle ilişkili proteine karşı yapılan kenetleme ise keşifsel olarak değerlendirilmiştir. Bu bulgular, söz konusu beş genin aday PH biyobelirteçleri olduğunu ve VX-745'in deneysel doğrulama gerektiren hesaplamalı bir ilaç yeniden konumlandırma hipotezi olduğunu desteklemektedir.
Giriş
Pulmoner hipertansiyon (PH); kalıcı olarak yüksek seyreden pulmoner arter basıncı, artmış pulmoner vasküler direnç ve nihayetinde sağ ventrikül yetmezliği ile karakterize, progresif bir kardiyopulmoner sendromdur. Güncel hemodinamik kriterler, PH'yi istirahat halindeki ortalama pulmoner arter basıncının şu değerde olması şeklinde tanımlamaktadır: >sağ kalp kateterizasyonu ile ölçüldüğü üzere 20 mmHg1Farklı klinik alt tipler arasında, pulmoner arteriyel hipertansiyon (PAH) en şiddetli formlardan biridir ve progresif pulmoner vasküler yeniden şekillenme ile karakterizedir. Patolojik özellikleri arasında endotelyal disfonksiyon, pulmoner arter düz kas hücrelerinin anormal proliferasyonu ve migrasyonu, adventisyal fibroblast aktivasyonu, hücre dışı matris birikimi, inflamatuar hücre infiltrasyonu ve distal pulmoner arterlerin daralması veya obliterasyonu yer almaktadır.2Bu değişiklikler, PH/PAH'nin yalnızca bir vazokonstriksiyon bozukluğu değil, aynı zamanda koordineli moleküler, hücresel ve immün-inflamatuar mekanizmalar tarafından yönlendirilen karmaşık bir vasküler yeniden yapılanma hastalığı olduğunu göstermektedir.
Mevcut PAH tedavileri temel olarak prostasiklin, endotelin, nitrik oksit–çözünür guanilat siklaz ve fosfodiesteraz tip 5 yollarını hedeflemektedir3˒4. Bu tedaviler semptomları, egzersiz kapasitesini ve hemodinamik parametreleri iyileştirse de etkileri büyük ölçüde vazodilatör ve hemodinamik düzeyde kalmaktadır. Yerleşmiş pulmoner vasküler yeniden şekillenmeyi (remodeling) geri döndürme yetenekleri sınırlıdır ve birçok hasta kombinasyon tedavisine rağmen hastalık progresyonu yaşamaya devam etmektedir. Bu nedenle, yeniden şekillenme sürecini yansıtan yeni moleküler biyobelirteçlerin ve terapötik adayların belirlenmesi, karşılanmamış önemli bir ihtiyacı temsil etmektedir. Özellikle, immün-inflamatuar aktivasyon, interferon ile ilişkili sinyalleme, Toll benzeri reseptör yolları, kemokin aracılı immün hücre göçü ve düz kas hücresi fenotipik değişimi, PH/PAH progresyonuna potansiyel katkıda bulunan unsurlar olarak ortaya çıkmıştır5˒6.
Yüksek kapasiteli transkriptomik veri setleri, PH/PAH ile ilişkili moleküler imzaların belirlenmesi için değerli kaynaklar sağlamaktadır. Ancak, tek bir veri setine dayanan çalışmalar genellikle küçük örneklem boyutları, grup etkileri (batch effects), platform heterojenliği ve yetersiz doğrulama ile sınırlıdır. Diferansiyel ekspresyon analizi, ekspresyonu değişmiş genleri belirleyebilir ancak hastalıkla ilgili ko-ekspresyon modüllerini veya ağ düzeyindeki etkileşimleri tam olarak yakalayamayabilir. Ağırlıklı gen ko-ekspresyon ağı analizi (WGCNA), hastalık özellikleriyle ilişkili gen modüllerini tanımlayabilirken, protein-protein etkileşim (PPI) ağı analizi biyolojik ağlar içindeki yüksek bağlantılı genleri ortaya çıkarabilir. Makine öğrenimi yöntemleri ayrıca tanısal veya sınıflandırma değeri olan genleri önceliklendirebilir. Bununla birlikte, tek bir algoritmaya güvenmek modele özgü yanlılıklara yol açabilir. Bu nedenle; diferansiyel ekspresyon analizi, WGCNA, PPI ağ analizi ve birden fazla makine öğrenimi algoritmasının entegre edilmesi, biyobelirteç keşfinin güvenilirliğini artırabilir.
Transkriptomik biyobelirteç çalışmalarındaki bir diğer büyük zorluk ise biyolojik yorumlamadır. Toplu doku (bulk-tissue) sinyalleri; yerleşik vasküler hücrelerdeki gen ekspresyonu değişikliklerini, immün hücre infiltrasyonunu veya birden fazla hücre popülasyonunun değişen oranlarını yansıtabilir. Tek hücreli RNA sekanslama, toplu dokudan elde edilen aday genlerin hücresel bir bağlama yerleştirilmesi için fırsat sunar. PH/PAH'ta pulmoner vasküler yeniden şekillenme; endotel hücrelerini, düz kas hücrelerini, fibroblastları, monositleri/makrofajları, lenfositleri ve diğer immün veya yapısal hücreleri kapsar. Hastalık progresyonu ayrıca, değişen hücre-hücre iletişimi ve düz kas hücresi fenotipik geçişi ile ilişkilidir. Bu nedenle, toplu transkriptomik taramanın tek hücreli doğrulama ile birleştirilmesi, aday biyobelirteçlerin immün aktivasyon, vasküler yapısal yeniden şekillenme veya çok hücreli iletişimdeki bir dengesizlik ile ilişkili olup olmadığının belirlenmesine yardımcı olabilir.
Biyobelirteç keşfinin yanı sıra, transkriptomik imzalar hesaplamalı ilaç yeniden konumlandırma için de kullanılabilir. Connectivity Map (CMap), hastalıkla ilişkili gen ekspresyon profillerini, bu imzaları tersine çevirebilecek veya modüle edebilecek küçük moleküllerle ilişkilendirir7. Bileşik kürasyonu ve moleküler docking ile birleştirildiğinde bu strateji, deneysel olarak test edilebilir terapötik hipotezler üretebilir. CMap tahmini ve moleküler docking ilaç etkinliğini kanıtlayamasa da, gelecekteki hedef-bağlanma analizleri, hücre tabanlı deneyler ve hayvan modeli doğrulamaları için aday bileşikleri önceliklendirebilir.
PH/PAH biyobelirteçlerini ve aday terapötik bileşikleri tanımlamak amacıyla entegre ve tekrarlanabilir bir iş akışı geliştirilmiştir. Normalizasyon ve grup etkisi (batch-effect) düzeltmesinin ardından üç kamuya açık Gene Expression Omnibus transkriptomik veri seti entegre edilmiştir. Güçlü özellik genlerini taramak için diferansiyel ekspresyon analizi, WGCNA, fonksiyonel zenginleştirme analizi, PPI ağ analizi ve üç makine öğrenimi algoritması kullanılmıştır. Seçilen genleri daha detaylı değerlendirmek için alıcı işletim karakteristik analizi, bağımsız bir akciğer dokusu doğrulama kohortu, pulmoner arter tek hücre RNA dizileme kanıtları ve bağımsız örneklerde kantitatif ters transkripsiyon PCR doğrulaması kullanılmıştır. Son olarak, aday bileşikleri belirlemek için CMap tabanlı ilaç yeniden konumlandırma ve moleküler kenetleme uygulanmıştır. Çalışmanın özgünlüğü; dökme (bulk) transkriptomik keşfi, makine öğrenimi önceliklendirmesini, bağımsız doğrulamayı, deneysel kantitatif ters transkripsiyon PCR onayını, tek hücre mekanistik yorumlamasını ve hesaplamalı bileşik taramasını birbirine bağlayan çok katmanlı doğrulama çerçevesinde yatmaktadır. Çalışma hipotezi, PH/PAH'nin koordineli bir immün-inflamatuar ve vasküler remodeling programı tarafından yönlendirildiği ve bu program içindeki güçlü genlerin aday biyobelirteçler olarak hizmet edebileceği ve ilaç yeniden konumlandırma fırsatları sunabileceğidir.
Protokol
Bu çalışmada analiz edilen halka açık Gene Expression Omnibus (GEO) veri setleri, daha önce yayınlanmış çalışmalardan elde edilen kimliksizleştirilmiş transkriptomik verileri içeriyordu ve ek bir etik onay gerektirmedi. Huaihua Üniversitesi Etik Kurulu, bağımsız insan akciğer dokusu kantitatif ters transkripsiyon PCR (qRT-PCR) doğrulama çalışmasını onaylamıştır (onay no. 2024(A05112)). Örnek toplama işleminden önce tüm katılımcılardan veya yasal olarak yetkilendirilmiş temsilcilerinden yazılı bilgilendirilmiş onam alınmıştır. Onay ve rıza prosedürleri, qRT-PCR doğrulamasına dahil edilen tüm 20 pulmoner arteriyel hipertansiyon (PAH) ve 20 kontrol akciğer dokusu örneği için uygulanmıştır. Bu protokol için kullanılan araştırma araçları Materyaller Tablosunda listelenmiştir.
1. Kamu transkriptomik veri setlerinin toplanması ve ön işlemesi
Pulmoner hipertansiyon (PH) ile ilişkili GSE22356, GSE33463 ve GSE48149 mikroarray veri setleri GEO veri tabanından elde edilmiştir. PH/pulmoner arteriyel hipertansiyon (PAH) ve kontrol örnekleri, orijinal fenotip açıklamalarına göre ayıklanmıştır. Ekspresyon matrisleri ve platform açıklama dosyaları, tekrarlanabilir R betikleri ve GEOquery paketi kullanılarak indirilmiştir.
Prob anotasyonu ve gen sembolü eşleştirmeleri tüm veri setleri genelinde tutarlı bir şekilde gerçekleştirilmiştir. Birden fazla prob aynı gene eşleştiğinde, ortalama ekspresyon değeri hesaplanmıştır. Kantil normalizasyonu uygulanmış, düşük ekspresyona veya düşük varyansa sahip genler çıkarılmıştır. Veri setleri birleştirilmiş ve grup etkileri (batch effects), sva paketindeki8 ComBat algoritması kullanılarak düzeltilmiştir. Düzeltme işlemi, kutu grafikleri (boxplots) ve temel bileşenler analizi (principal component analysis) kullanılarak değerlendirilmiştir.
2. Diferansiyel ekspresyon gösteren genlerin belirlenmesi
Yığın düzeltmeli ekspresyon matrisindeki PH ve kontrol örnekleri arasındaki ekspresyon seviyelerini karşılaştırmak için limma paketi kullanılmıştır9. Bir doğrusal model kurulmuş ve ampirik Bayes istatistikleri uygulanmıştır. Diferansiyel ekspresyon gösteren genler, düzeltilmiş P değeri <0,05 ve mutlak log2 kat değişimi > 0,585 kriterlerine göre tanımlanmıştır. Sonuçlar, volkan grafikleri ve ısı haritaları kullanılarak görselleştirilmiştir.
3. Ağırlıklı gen eş-ifade ağı oluşturma
WGCNA paketi10 kullanılarak ağırlıklı bir gen eş-ifade ağı oluşturulmuştur. Aykırı değerleri tespit etmek için örnek kümelemesi yapılmıştır. Yumuşak eşikleme gücü, ölçeksiz topoloji uyum indeksine göre seçilmiştir. Gen modülleri, dinamik ağaç kesme algoritması kullanılarak tanımlanmıştır. Modül özgenleri PH fenotipi ile korele edilmiş ve en güçlü korelasyona sahip hastalıkla ilişkili modül seçilmiştir. Konsensüs genleri elde etmek için ana modüldeki genler ile diferansiyel olarak ifade edilen genlerin kesişimi alınmıştır.
4. Fonksiyonel zenginleştirme analizi
Gen Ontolojisi biyolojik süreç, hücresel bileşen ve moleküler fonksiyon kategorileri clusterProfiler11 kullanılarak analiz edildi. Sinyal yolaklarını belirlemek için Kyoto Gen ve Genom Ansiklopedisi yolak zenginleştirme analizi gerçekleştirildi12. Zenginleştirme eşikleri olarak P değeri < 0.05 ve q değeri < 0.2 kullanıldı ve zenginleşen terimler balon grafikleri kullanılarak görselleştirildi11.
5. Protein-protein etkileşim ağının oluşturulması ve hub-genlerin belirlenmesi
Konsensüs gen listesi, STRING veri tabanına şu parametrelerle sunulmuştur: Homo sapiens tür olarak seçilen ve bir etkileşim güven eşiği > 0.413Etkileşim dosyası Cytoscape'e aktarıldı ve genleri düğüm derecesine göre sıralamak için CytoHubba eklentisi kullanıldı. Yüksek bağlantılı genler, hub genler olarak tanımlandı.
6. Makine öğrenimi kullanılarak tanısal özellik genlerinin seçimi
Üç bağımsız özellik seçimi algoritması uygulandı. İlk olarak, sıfır olmayan katsayılara sahip genleri belirlemek için glmnet paketi ve 10 katlı çapraz doğrulama kullanılarak en küçük mutlak küçültme ve seçme operatörü (LASSO) lojistik regresyonu gerçekleştirildi14. İkinci olarak, gereksiz özellikleri çıkarmak ve en yüksek çapraz doğrulama doğruluğuna ulaşan özellik alt kümesini seçmek için destek vektör makineleri ile özyinelemeli özellik elemesi uygulandı15. Üçüncü olarak, bir rastgele orman modeli oluşturuldu ve özellikler, Gini safsızlığındaki ortalama azalmaya göre sıralandı16. Üç algoritmadan elde edilen gen setlerinin kesişimi, nihai çekirdek özellik genleri setini tanımlamak için kullanıldı. Alıcı işletim karakteristik eğrilerini oluşturmak ve eğri altındaki alan değerlerini hesaplamak için pROC paketi kullanıldı17.
7. Bağımsız bulk ve tek hücreli veri setleri kullanılarak çekirdek genlerin doğrulanması
58 PAH örneği ve 25 başarısız donör kontrol örneği içeren GSE117261, bağımsız bir harici akciğer dokusu doğrulama kohortu olarak kullanılmıştır18. Bu veri seti; keşif diferansiyel ekspresyon analizinde, ağırlıklı gen ko-ekspresyon ağının oluşturulmasında veya makine öğrenimi özellik seçiminde kullanılmamıştır. Ekspresyon matrisi normalize edilmiş ve açıklanmış, diferansiyel ekspresyon ise limma v3.68.0 kullanılarak analiz edilmiştir. Tüm açıklanmış transkriptom genelinde Benjamini-Hochberg yanlış keşif oranı düzeltmesi uygulanmıştır. Tek genli alıcı işletim karakteristik (ROC) eğrileri; pROC v1.19.0.1, DeLong %95 güven aralıkları ve Youden indeksi kesim değerleri kullanılarak hesaplanmıştır. GSE117261 kapsamında keşif amaçlı beş genli bir lojistik regresyon modeli kurulmuş ve modelin dahili performansı ek olarak tekrarlanan iç içe çapraz doğrulama ile değerlendirilmiştir.
PAH olan üç hasta ve üç sağlıklı donörden alınan örnekleri içeren GSE210248 (Tablo 1), tek hücreli pulmoner arter doğrulama veri seti olarak kullanılmıştır19. Veriler; kalite kontrolü, normalizasyon, boyut indirgeme, kümeleme ve hücre anotasyonu için Seurat v5.5.1 kullanılarak işlenmiştir20. Endotel hücreleri, düz kas hücreleri, fibroblastlar, monositler/makrofajlar ve T/doğal öldürücü hücreler dahil olmak üzere ana hücre popülasyonları tanımlanmıştır. Hücre-hücre iletişimi, CellChat v2.1.2 ve CellChatDB.human ligand-reseptör veri tabanı kullanılarak analiz edilmiştir21. Normalleştirilmiş Seurat ekspresyon matrisi ve hücre tipi meta verilerinden bir CellChat nesnesi oluşturulmuştur. Aşırı eksprese olan genler ve ligand-reseptör etkileşimleri tanımlanmış; iletişim olasılıkları hesaplanmış; 10 hücreden az olan hücre gruplarını içeren etkileşimler çıkarılmış; yolak düzeyindeki iletişim ağları çıkarılmış ve birleştirilmiştir. Bu veri seti sadece harici mekanistik doğrulama için kullanılmış olup model eğitimi için kullanılmamıştır.
| Öğe | Açıklama |
| Veri seti | GSE210248 |
| Veri tipi | 10x Genomics/damlacık tabanlı tek hücre RNA sekanslama; yüksek hacimli transkriptomik profilleme |
| İnsan örnekleri | Üç PAH pulmoner arter örneği ve üç sağlıklı donör pulmoner arter örneği |
| Doku kaynağı | Temel olarak pulmoner vasküler duvarın hücresel ekolojisini ve vasküler yeniden şekillenme sürecini yansıtan ex vivo pulmoner arter dokusu |
| Ana analitik amaç | Hücre tipi lokalizasyonu, düz kas hücresi fenotipik geçişi, immün-yapısal hücre iletişimi ve aday genlerin mekanistik tutarlılık doğrulaması |
Tablo 1: GSE210248 tek hücreli doğrulama veri seti için temel bilgiler. Tablo; tek hücreli pulmoner arter doğrulama analizinin veri seti erişim numarasını, sekanslama platformunu, doku kaynağını, örnek bileşimini ve analitik amacını özetlemektedir.
8. Gen ekspresyonunun qRT-PCR ile doğrulanması
qRT-PCR doğrulaması, PH/PAH hastalarından alınan 20 biyolojik olarak bağımsız PAH akciğer dokusu örneğini ve 20 biyolojik olarak bağımsız kontrol akciğer dokusu örneğini içermiştir. Toplam RNA, Total RNA Extraction Kit kullanılarak ekstrakte edilmiştir. RNA konsantrasyonu ve saflığı bir spektrofotometre ile değerlendirilmiş, RNA bütünlüğü ise agaroz jel elektroforezi ile incelenmiştir. Yalnızca A260/280 değerleri 1.8 ile 2.1 arasında olan ve görünür bir degradasyon göstermeyen RNA örnekleri çalışmaya dahil edilmiştir.
Eşit miktardaki RNA, Solarbio Universal RT-PCR Kit (AMV; katalog no. RP1200) kullanılarak tamamlayıcı DNA'ya tersine transkribe edildi. CXCL10, JUN, IFIH1, MX1 ve TLR7 için kantitatif PCR, bir Real-Time PCR Sistemi üzerinde SYBR Green PCR Master Mix kullanılarak gerçekleştirildi. Her biyolojik örnek, kalıp içermeyen ve ters transkripsiyon içermeyen kontrollerle birlikte üç teknik tekrar halinde analiz edildi. Sonraki analizler için üç teknik tekrarın ortalama Ct değeri kullanıldı; teknik tekrarlar bağımsız gözlemler olarak değerlendirilmedi. Ekzon-ekzon bağlantılarını kapsayan ve 80–200 bp amplikonlar üreten primerler kullanıldı (Tablo 2). Primer özgüllüğü, NCBI Primer-BLAST ve erime eğrisi analizi kullanılarak doğrulandı22.
Hedef genlerin ekspresyon seviyelerini normalize etmek için iç referans gen olarak β-actin (ACTB) kullanılmıştır. Relatif ekspresyon, 2-ΔΔCt yöntemi kullanılarak hesaplanmıştır23. Veri dağılımına bağlı olarak gruplar arası karşılaştırmalar için iki yönlü Mann-Whitney U testleri kullanılmış ve beş gen üzerinden Benjamini-Hochberg yanlış keşif oranı (false-discovery-rate) düzeltmesi uygulanmıştır. Tek genli ROC eğrileri DeLong %95 güven aralıkları ile oluşturulmuş ve optimal kesme noktaları Youden indeksi kullanılarak seçilmiştir. Beş genli lojistik regresyon modeli başlangıçta aynı 40 biyolojik örnek üzerinde kurulmuş ve değerlendirilmiştir; bu nedenle bu tahmin, görünür örnek içi performans (apparent in-sample performance) olarak tanımlanmıştır. Olası aşırı öğrenmeyi (overfitting) değerlendirmek için L2-regülerize lojistik regresyon modeli kullanılarak 100 katmanlı beşli çapraz doğrulama (stratified five-fold cross-validation) tekrarı gerçekleştirilmiş ve birleştirilmiş örnek dışı (out-of-fold) ROC performansı hesaplanmıştır.
| Gen | RefSeq erişim numarası | İleri primer (5′–3′) | Geri primer (5′–3′) | Ürün boyutu (bp) | Tm (°C) | Ekzon kapsamlı |
| CXCL10 | NM_001565.4 | GTCAAGCCAT AATTGTTC | ATAGTGCCAG GGTAGAGT | 141 | 46.1 | Evet |
| JUN | NM_002228.4 | ACAAGTGGCA GAGTCCCG | CGCCCAAGTT CAACAACC | 152 | 54.5 | Evet |
| IFIH1 | NM_022168 | GCACAGAGCG GTAGACCCT | GCCCTGAAGC ACGAGATG | 182 | 54.7 | Evet |
| MX1 | NM_002462.5 | TTAGCCGTGG TGATTTAGC | CAAGGTGGAG CGATTCTG | 156 | 52.3 | Evet |
| TLR7 | NM_016562.4 | ATTGCCCTCGT TGTTATA | TTCCTGGAGTT TGTTGAT | 179 | 48.1 | Evet |
| ACTB | NM_001101.3 | CTCACCATGGAT GATGATATCGC | AGGAATCCTTCT GACCCATGC | 194 | 56.2 | Evet |
Tablo 2: Kantitatif ters transkripsiyon PCR için kullanılan primer dizileri. Tablo, qRT-PCR için kullanılan primerlerin hedef genlerini, RefSeq erişim numaralarını, ileri ve geri primer dizilerini, ürün boyutlarını, erime sıcaklıklarını ve ekzon kapsamı durumlarını listelemektedir.
9. Aday bileşik taraması ve moleküler kenetleme
PH ile ilişkili ekspresyon profilini tersine çevireceği öngörülen küçük molekülleri belirlemek için, artmış ve azalmış temel gen imzaları Connectivity Map veri tabanına sunulmuştur7. Adaylar, Logit puanına ve öngörü olasılığına göre sıralanmıştır.
BRD-K91900765/VX-745'in üç boyutlu yapısı PubChem'den CID 3038525 altında elde edilmiştir24. Bileşikle ilgili farmakolojik bilgiler halka açık ilaç veri tabanlarından derlenmiş ve yapısal tanımlayıcılar DrugBank ve SwissADME kullanılarak hesaplanmıştır25,26. Protein yapıları, şu PDB tanımlayıcıları kullanılarak RCSB Protein Data Bank'ten temin edilmiştir: CXCL10, 1LV9; JUN, 1JUN; IFIH1, 3B6E; MX1, 5GTM; TLR7, 7CYN ve MAPK14/p38α, 1OUK27. Kör boşluk tespiti ve moleküler kenetleme, AutoDock Vina v1.2.0 skorlama motoruna sahip CB-Dock2 v2.0 kullanılarak gerçekleştirilmiştir28,29. Protein ve ligand dosyaları CB-Dock2'ye yüklenmiş, aday boşluklar otomatik olarak tespit edilmiş ve kenetleme işlemi sunucu tarafından oluşturulan boşluğa özgü kutular içerisinde gerçekleştirilmiştir. Her bir protein için boşluk tanımlayıcısı, Vina skoru, boşluk hacmi, kenetleme kutusu merkezi, kenetleme kutusu boyutları ve protein-ligand kompleks dosyası kaydedilmiştir. En negatif Vina skoruna sahip poz, en yüksek sıralamaya sahip öngörülen konformasyon olarak seçilmiştir. MAPK14/p38α, VX-745 için belirlenmiş farmakolojik hedef ve pozitif referans kenetleme proteini olarak dahil edilmiştir. CXCL10, JUN, IFIH1, MX1 ve TLR7'ye karşı yapılan kenetlemeler keşif amaçlıdır ve doğrudan farmakolojik hedefleme, bağlanma, inhibisyon veya etkinlik kanıtı olarak yorumlanmamıştır.
10. İstatistiksel analiz ve tekrarlanabilirlik kontrolü
Aksi belirtilmedikçe tüm istatistiksel analizler R programında gerçekleştirilmiştir. İki yönlü P değerleri < 0.05 olan sonuçlar istatistiksel olarak anlamlı kabul edilmiştir. Yukarıda belirtildiği üzere; diferansiyel ekspresyon, zenginleştirme, harici doğrulama ve qRT-PCR analizlerine çoklu test düzeltmesi uygulanmıştır. Makine öğrenimi ve kombine qRT-PCR modellerinin stabilitesini değerlendirmek için çapraz doğrulama kullanılmıştır.
Sonuçlar
Kamuya açık transkriptomik veri ön işleme ve diferansiyel eksprese olan genlerin tanımlanması
GSE22356, GSE33463 ve GSE48149'un entegrasyonu ve ComBat düzeltmesi, veri setleri arasındaki sistematik farkları azaltmıştır. Kutu grafikleri, düzeltme sonrası örnek ekspresyon dağılımlarının daha tutarlı hale geldiğini göstermiştir. Temel bileşenler analizi, örneklerin düzeltme öncesinde temel olarak veri seti kaynağına göre kümelendiğini, ancak düzeltme sonrasında daha karışık hale geldiğini göstermiş; bu durum parti etkisinin (batch-effect) etkili bir şekilde azaltıldığını ortaya koymuştur (Şekil 1).
Mutlak log2 kat değişimi >0,585 ve düzeltilmiş P değeri < 0,05 eşik değerleri kullanılarak, 44'ü artmış ve 34'ü azalmış olmak üzere 78 diferansiyel eksprese gen belirlendi (Şekil 2A). Isı haritası; XAF1, MX1, IFI44L, EPSTI1, PARP9, IFIH1, CXCL10, GBP1, STAT1, SAMHD1, TNFSF10 ve TLR7 dahil olmak üzere interferon ile ilişkili genlerin, PH ile ilişkili örneklerde genel olarak artmış olduğunu gösterdi. Buna karşılık, HBG1, HBD, ALAS2, CA1 ve SLC4A1 dahil olmak üzere eritroid ile ilişkili genlerin azalma eğiliminde olduğu görüldü (Şekil 2B).
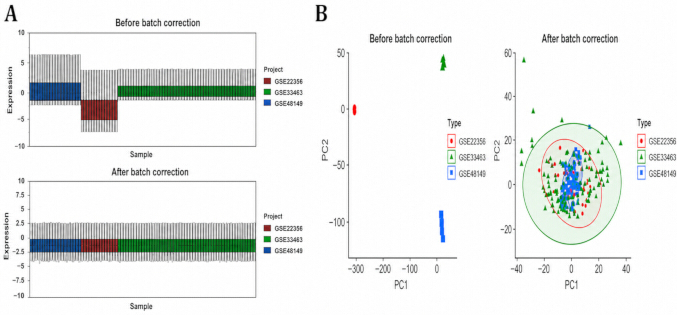
Şekil 1: Batch etkisinin düzeltilmesi. (A) ComBat düzeltmesi öncesi ve sonrası birleştirilmiş ifade matrisinin kutu grafikleri. (B) Batch etkisi düzeltmesi öncesi ve sonrası örnek dağılımlarını gösteren temel bileşen analizi grafikleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
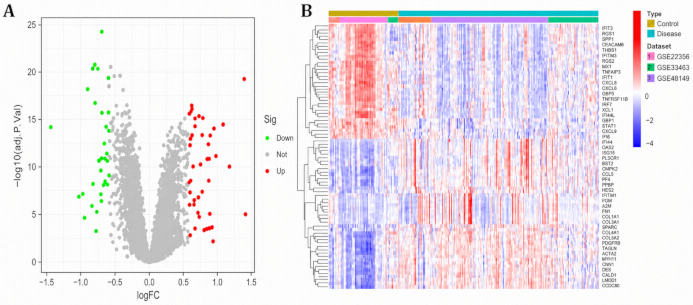
Şekil 2: Diferansiyel eksprese edilen genler. (A) PH ile ilişkili örneklerde yukarı ve aşağı regüle edilen genleri gösteren yanardağ grafiği. (B) Kontrol ve hastalık grupları arasında diferansiyel eksprese edilen genleri gösteren ısı haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ağırlıklı gen ko-ekspresyon ağı oluşturma ve fonksiyonel zenginleştirme
Örnek kümelemesi, belirgin bir aykırı değer olmaksızın genel olarak istikrarlı bir kümeleme göstermiştir (Şekil 3A). Ölçekten bağımsız topoloji uyum indeksi, 9 kuvvetinde 0,8'e yaklaşmış ve ağ kurulumu için β = 9 seçilmiştir (Şekil 3B). Gen kümelemesi ve dinamik modül tanımlaması sonucunda birden fazla ko-ekspresyon modülü elde edilmiştir (Şekil 3C). Mavi modül, PH durumu ile en güçlü ilişkiyi gösterirken (r = 0,55, P = 1 × 10⁻¹⁹), turkuaz ve gri modüller de PH ile korelasyon göstermiştir (Şekil 3D).
Anahtar ağırlıklı gen ko-ekspresyon ağ analizi modül genlerinin, farklı ekspresyon gösteren genlerle kesiştirilmesiyle elde edilen konsensüs genlerin; antiviral bağışıklık savunması, NF-κB ve JAK-STAT düzenlemesi, inflamatuar faktör yanıtları, sitokin ve kemokin reseptör bağlanması ve transkripsiyonel düzenleme açısından zenginleştiği görülmüştür (Şekil 4A). Kyoto Encyclopedia of Genes and Genomes zenginleştirme analizi; sitokin-sitokin reseptör etkileşimi, kemokin sinyalleri, NOD benzeri reseptör sinyalleri, Toll benzeri reseptör sinyalleri, tümör nekroz faktörü sinyalleri ve interlökin-17 sinyallerini tanımlayarak (Şekil 4B), immün-inflamatuar disregülasyonun pulmoner vasküler yeniden şekillenmenin moleküler temeli olduğu görüşünü desteklemiştir.
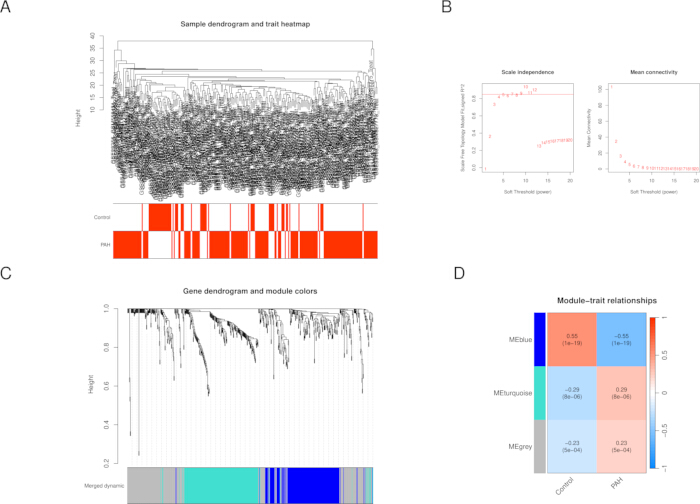
Şekil 3: Ağırlıklı gen eş-ekspresyon ağ analizi. (A) Örnek kümeleme ağacı ve özellik ısı haritası. (B) Yumuşak eşik seçimi grafiği. (C) Gen dendrogramı ve modül renkleri. (D) Modül-özellik ilişkisi ısı haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
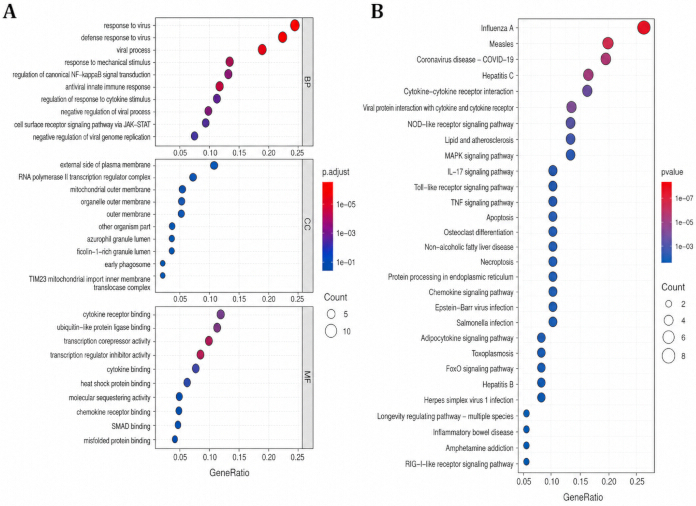
Şekil 4: Fonksiyonel zenginleştirme analizi. (A) Konsensüs genler için Gen Ontolojisi zenginleştirme sonuçları. (B) Konsensüs genler için Kyoto Encyclopedia of Genes and Genomes yolak zenginleştirme sonuçları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Protein-protein etkileşim ağı ve hub-gen taraması
Konsensüs genlerden oluşturulan STRING protein-protein etkileşim ağı, birbirine bağlı bir immün-inflamatuar ağ ortaya çıkarmıştır (Şekil 5A). Derece tabanlı CytoHubba sıralaması; FN1, CD44, JUN, TGFB1, CXCL8 ve BCL2'nin yüksek bağlantısallığa sahip olduğunu göstermiştir (Şekil 5B). Bu hub genler; inflamatuar sinyal iletimi, hücre yapışması, hücre dışı matris yeniden şekillenmesi ve pulmoner vasküler yapısal yeniden şekillenmede rol oynayabilir.
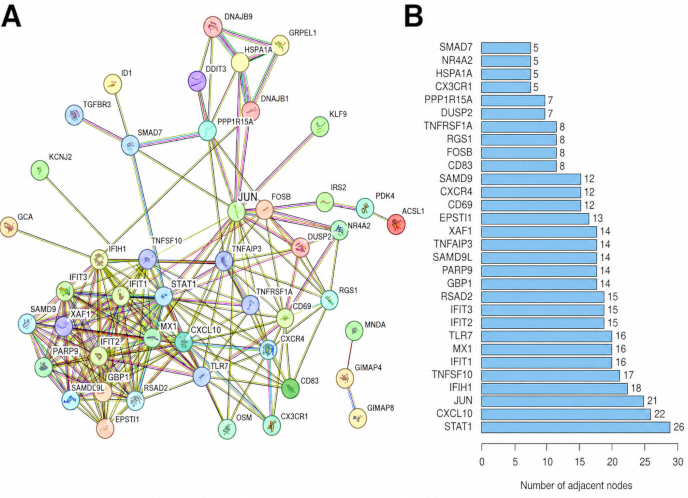
Şekil 5: Protein-protein etkileşim ağı ve merkez genler. (A) Konsensüs genlerin STRING protein-protein etkileşim ağı. (B) CytoHubba kullanılarak belirlenen dereceye göre sıralanmış merkez genler. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Makine öğrenimi öznitelik seçimi ve tanısal performans
Çapraz doğrulama sonrası, en küçük mutlak küçültme ve seçme operatörü (LASSO) regresyonu sıfırdan farklı katsayılara sahip altı aday gen belirledi (Şekil 6A, B). Destek vektör makinesi-özyinelemeli özellik eleme yöntemi sekiz geni korudu ve 0,883 çapraz doğrulama doğruluğu ile 0,117 hata oranı sağladı (Şekil 7A). Rastgele orman torba dışı (out-of-bag) hatası, ağaç sayısı ≥100 olduğunda stabilize oldu ve önem skoruna göre IFIH1, JUN ve TLR7 genleri en üst sıralarda yer aldı (Şekil 7B).
En küçük mutlak daraltma ve seçim operatörü (LASSO), destek vektör makinesi-özyinelemeli özellik eleme (SVM-RFE) ve rastgele orman sonuçlarının kesişimi beş temel geni belirlemiştir: CXCL10, JUN, IFIH1, MX1 ve TLR7 (Şekil 8A). Tek genli alıcı işletim karakteristiği analizi; IFIH1 için 0,842, JUN için 0,833, TLR7 için 0,827, CXCL10 için 0,814 ve MX1 için 0,759 eğri altı alan değerleri ile orta-iyi düzeyde tanısal ayrım göstermiştir (Şekil 8B).
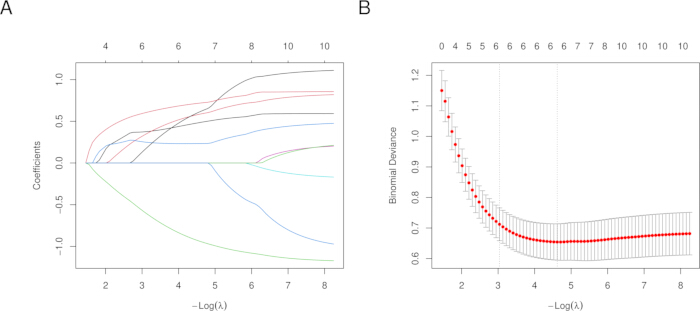
Şekil 6: En küçük mutlak küçültme ve seçim operatörü (lasso) regresyon analizi. (A) Lasso regresyonu tarafından oluşturulan katsayı yolu. (B) Çapraz doğrulama hata grafiği. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
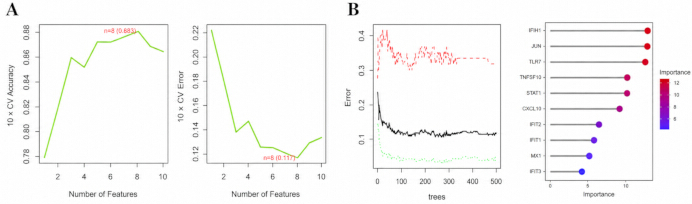
Şekil 7: Destek vektör makinesi-özyinelemeli öznitelik eleme ve rastgele orman analizleri. (A) Destek vektör makinesi-özyinelemeli öznitelik eleme öznitelik seçim grafiği. (B) Rastgele orman modeli ve gen önem sıralaması. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
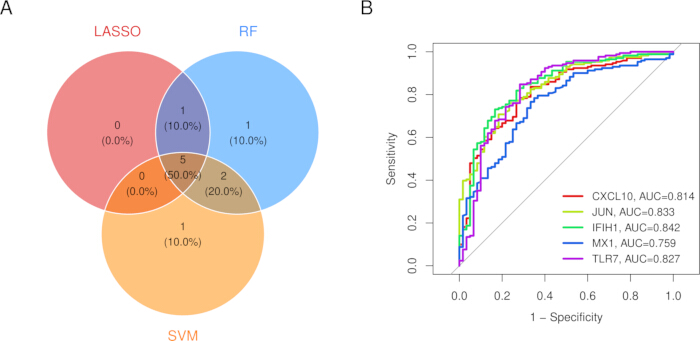
Şekil 8: Makine öğrenimi özeti. (A) Üç özellik seçim algoritmasının kesişimini gösteren Venn diyagramı. (B) Beş temel gen için alıcı işletim karakteristik eğrileri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
GSE117261 ile dış doğrulama
GSE117261, bağımsız bir akciğer dokusu doğrulama kohortu olarak kullanılmış olup diferansiyel ekspresyon taramasına, ağırlıklı gen ko-ekspresyon ağı kurulumuna veya makine öğrenmesi özellik seçimine dahil edilmemiştir (Tablo 3). Tamamlanan doğrulama sonuçları, beş gen genelinde heterojen bir replikasyon göstermiştir (Tablo 4). CXCL10 artış göstermiş (log₂ kat değişimi = 0.677; P = 0.0410; FDR = 0.144) ve 6.245 kesim değeri (cutoff), 0.724 duyarlılık ve 0.600 özgüllük ile 0.639'luk bir AUC değeri (95% CI, 0.491–0.786) vermiştir. JUN artış göstermiş (log₂ kat değişimi = 0.463; P = 0.00248; FDR = 0.0194) ve 8.708 kesim değeri (cutoff), 0.707 duyarlılık ve 0.720 özgüllük ile 0.714'lük bir AUC değeri (95% CI, 0.593–0.835) vermiştir.
IFIH1 (log2 fold change = 0.107; P = 0.371; FDR = 0.591; AUC = 0.543, 95% CI, 0.398–0.687), MX1 (log2 fold change = 0.109; P = 0.488; FDR = 0.690; AUC = 0.475, 95% CI, 0.337–0.614) ve TLR7 (log2 fold change = -0.050; P = 0.543; FDR = 0.733; AUC = 0.546, 95% CI, 0.414–0.679) önceden belirlenmiş dış destek kriterlerini karşılamamıştır. TLR7 ayrıca qRT-PCR sonucuyla ters yönde bir seyir göstermiştir. GSE117261 kapsamında kurulan ve değerlendirilen keşif amaçlı beş genli model 0,740'lık bir görünür AUC verirken, tekrarlanan iç içe çapraz doğrulama 0,656'lık bir AUC vermiştir. Böylece, JUN en güçlü bağımsız desteği almış, CXCL10 yönsel olarak tutarlı sınırlı kanıt göstermiş ve IFIH1, MX1 ile TLR7'nin replikasyonu zayıf veya uyumsuz gerçekleşmiştir.
| Öğe | Açıklama |
| Veri seti erişim numarası | GSE117261 |
| Veri kaynağı | Gene Expression Omnibus (GEO) |
| Örnek türü | İnsan akciğer dokusu transkriptomik mikroarray verileri |
| Örnek büyüklüğü | 58 PAH örneği ve 25 başarısız donör kontrol örneği |
| Platform | GPL6244 / Affymetrix Human Gene 1.0 ST Array |
| Validasyon amacı | CXCL10, JUN, IFIH1, MX1 ve TLR7 için ekspresyon farklılıkları, tek gen ROC analizi ve keşifsel beş genli kombine ROC modellemesi |
| Bu çalışmadaki rolü | Bağımsız harici validasyon veri seti; orijinal eğitim, WGCNA veya özellik seçimi analizlerine dahil edilmemiştir |
Tablo 3: GSE117261 bağımsız harici doğrulama veri seti için temel bilgiler. Tablo; veri seti kaynağını, örnek tipini, örnek boyutunu, platformu, doğrulama hedeflerini ve GSE117261'in çalışmadaki rolünü özetlemektedir.
| Gen/model | PAH n | Kontrol n | log2 kat değişimi | p değeri | Yanıltıcı Kezif Oranı | AUC (Eğri Altındaki Alan) | AUC %95 GA | Youden kesim noktası | Duyarlılık | Özgüllük |
| CXCL10 | 58 | 25 | 0.677 | 0.041 | 0.144 | 0.639 | 0.491–0.786 | 6.245 | 0.724 | 0.6 |
| JUN | 58 | 25 | 0.463 | 0.00248 | 0.019 | 0.714 | 0.593–0.835 | 8.708 | 0.707 | 0.72 |
| IFIH1 | 58 | 25 | 0.107 | 0.371 | 0.591 | 0.543 | 0.398–0.687 | 5.3 | 0.759 | 0.44 |
| MX1 | 58 | 25 | 0.109 | 0.488 | 0.69 | 0.475 | 0.337–0.614 | 6.833 | 0.724 | 0.4 |
| TLR7 | 58 | 25 | -0.05 | 0.543 | 0.733 | 0.546 | 0.414–0.679 | 4.065 | 0.138 | 1 |
| Beş genli model (görünür/örnek içi) | 58 | 25 | / | / | / | 0.74 | 0.621–0.859 | 0.613 | 0.845 | 0.6 |
| Beş genli model (tekrarlanan iç içe geçmiş çapraz doğrulama) | 58 | 25 | / | / | / | 0.656 | 0.517–0.795 | 0.655 | 0.845 | 0.52 |
Tablo 4: GSE117261 için gerçek ekspresyon farkı ve ROC doğrulama sonuçları. Tablo; PAH ve kontrol örnek boyutlarını, log₂ kat değişimlerini, P değerlerini, yanlış keşif oranı ile düzeltilmiş değerleri, AUC'leri, %95 güven aralıklarını, Youden indeksi eşik değerlerini, sensitivite değerlerini, spesifite değerlerini ve beş gen ile keşifsel kombine modeller için yorumları rapor etmektedir.
Kantitatif ters transkripsiyon PCR doğrulaması
Kantitatif ters transkripsiyon PCR doğrulaması, her bir biyolojik örnek için üç teknik tekrarların ortalaması alınarak, 20 biyolojik olarak bağımsız PAH akciğer dokusu örneğini ve 20 biyolojik olarak bağımsız kontrol örneğini içermiştir. CXCL10, JUN, IFIH1, MX1 ve TLR7, PAH grubunda anlamlı şekilde yukarıye düzenlenmiştir (Tablo 5; Şekil 9A). Ortalama bağıl ekspresyon değerleri yaklaşık olarak CXCL10 için 3,470, JUN için 2,560, IFIH1 için 2,760, MX1 için 2,650 ve TLR7 için 2,580 olarak belirlenmiştir. Karşılık gelen P değerleri/FDR değerleri sırasıyla 1,43 × 10⁻7/7,15 × 10⁻7, 4,17 × 10⁻5/4,17 × 10⁻5, 1,10 × 10⁻5/1,38 × 10⁻5, 1,58 × 10⁻6/2,63 × 10⁻6 ve 1,37 × 10⁻6/2,63 × 10⁻6 idi.
qRT-PCR ekspresyonuna dayalı tek genli ROC analizi; CXCL10 için 0,988 (%95 GA, 0,961–1,000), JUN için 0,880 (%95 GA, 0,758–1,000), IFIH1 için 0,908 (%95 GA, 0,820–0,995), MX1 için 0,945 (%95 GA, 0,874–1,000) ve TLR7 için 0,948 (%95 GA, 0,886–1,000) AUC değerleri göstermiştir (Şekil 9B; Tablo 5). Beş genli lojistik regresyon modeli, 1,000 duyarlılık ve özgüllük ile 1,000'lik görünür bir AUC değerine ulaşmıştır (Şekil 9C). Kantitatif ters transkripsiyon PCR doğrulaması ile GSE117261 arasındaki ekspresyon yönü tutarlılığı bir ısı haritası kullanılarak görselleştirilmiştir (Şekil 9D). Hem uyumlama hem de değerlendirme için aynı 40 örnek kullanıldığından, bu durum görünür örnek içi performansı yansıtmaktadır. L2-regülerize lojistik regresyon modeli kullanılarak yapılan tabakalı beş katlı çapraz doğrulamanın 100 tekrarında, birleştirilmiş örnek dışı AUC değeri de 1,000 (%95 GA, 1,000–1,000) olarak kalmış ve her tekrar 1,000 AUC değeri vermiştir. Bu dahili stabiliteye rağmen kohort küçüktür ve bağımsız prospektif doğrulama gerekliliği devam etmektedir. GSE117261 ile yapılan yönsel karşılaştırma; CXCL10, JUN, IFIH1 ve MX1 için uyumlu artışlar, ancak TLR7 için uyumsuz yön göstermiştir (Şekil 9D).
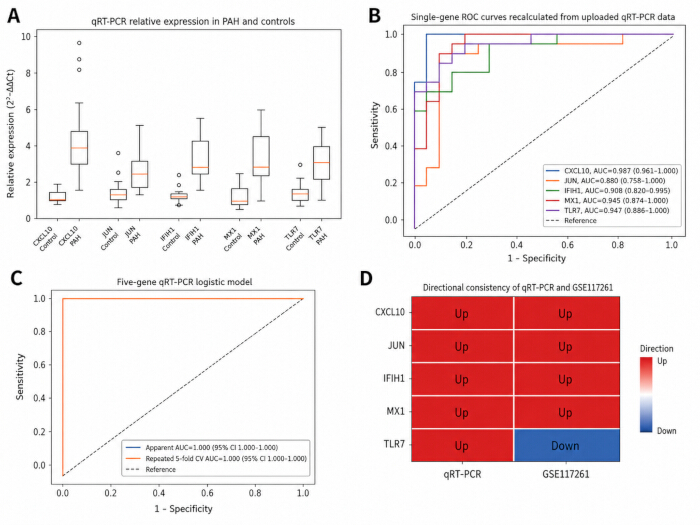
Şekil 9: Kantitatif ters transkripsiyon PCR doğrulaması. (A) 20 biyolojik olarak bağımsız PAH akciğer dokusu örneği ve 20 biyolojik olarak bağımsız kontrol örneğinde CXCL10, JUN, IFIH1, MX1 ve TLR7'nin bağıl ekspresyonunu gösteren kutu grafikleri. Her biyolojik örnek üç teknik tekrarla ölçülmüş ve analiz için ortalama Ct değeri kullanılmıştır. Her kutu grafiğinde orta çizgi medyanı, kutu çeyrekler arası aralığı temsil eder, bıyıklar çeyrekler arası aralığın 1,5 katına kadar uzanır ve bıyıkların ötesindeki tekil noktalar aykırı değerleri temsil eder. (B) qRT-PCR ekspresyon değerlerine dayalı tek gen ROC eğrileri; AUC'ler ve DeLong %95 güven aralıkları gösterilmiştir. (C) Beş genli lojistik regresyon modeli için ROC eğrileri; hem görünür/örnek içi performansı hem de 100 tekrarlı tabakalı beş katlı çapraz doğrulama analizlerinden elde edilen birleştirilmiş kat dışı performansı göstermektedir. (D) qRT-PCR ve GSE117261 arasındaki ekspresyon yönü tutarlılığını gösteren ısı haritası; CXCL10, JUN, IFIH1 ve MX1 uyumlu şekilde artmışken, TLR7 uyumsuzdu. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Gen/model | PAH n | Kontrol n | Kontrol 2^-ΔΔCt, ortalama ± SD | PAH 2^-ΔΔCt, ortalama ± SS | Yönlendirme | p değeri | Yalancı Keşif Oranı | AUC | AUC %95 GA | Youden kesme değeri | Sensi- aktivite | Özel- şehir | Doğrulama türü | ||||
| CXCL10 | 20 | 20 | 1.099 ± 0.502 | 3.470 ± 1.043 | Artmış düzeyde ifade edilen | 1,43E-07 | 7,15E-07 | 0.987 | 0.961–1.000 | 2.028 | 1 | 0.95 | Tek genli qRT-PCR analizi | ||||
| JUN | 20 | 20 | 1.158 ± 0.738 | 2.560 ± 1.609 | Artmış ekspresyonlu | 4,17E-05 | 4,17E-05 | 0.88 | 0.758–1.000 | 1.423 | 0.85 | 0.9 | Tek genli qRT-PCR analizi | ||||
| IFIH1 | 20 | 20 | 1.091 ± 0.440 | 2.760 ± 1.398 | Artmış düzeyde ifade edilen | 1,10E-05 | 1,38E-05 | 0.908 | 0.820–0.995 | 1.579 | 0.8 | 0.85 | Tek genli qRT-PCR analizi | ||||
| MX1 | 20 | 20 | 1.132 ± 0.582 | 2.650 ± 1.085 | Artırılmış (Ekspresyonu artmış) | 1,58E-06 | 2,63E-06 | 0.945 | 0.874–1.000 | 1.779 | 0.9 | 0.9 | Tek gen qRT-PCR analizi | ||||
| TLR7 | 20 | 20 | 1.080 ± 0.444 | 2.580 ± 1.284 | Artmış düzeyde ifade edilen | 1,37E-06 | 2,63E-06 | 0.947 | 0.886–1.000 | 1.764 | 0.85 | 0.9 | Tek genli qRT-PCR analizi | ||||
| Beş genli model (görünür/örnek içi) | 20 | 20 | Uygulanmaz kablo | Uygulan- kablo | Uygulanamaz | / | / | 1 | 1.000–1.000 | 0.998 | 1 | 1 | Modelleme ve değerlendirme için kullanılan aynı 40 biyolojik örnek | ||||
| Beş genli model (100 kez tekrarlanan 5 katlı CV) | 20 | 20 | Uygulanamaz kablo | Uygulanamaz kablo | Uygulanamaz | / | / | 1 | 1.000–1.000 | 0.716 | 1 | 1 | L2-düzenlemeli lojistik regresyon kullanılarak iç çapraz doğrulama | ||||
Tablo 5: Beş genli kombine model analizleri dahil olmak üzere CXCL10, JUN, IFIH1, MX1 ve TLR7 için tam qRT-PCR ekspresyon ve ROC sonuçları. Tablo; bireysel genler ve kombine modeller için PAH ve kontrol örnek boyutlarını, bağıl ekspresyon değerlerini, ekspresyon yönlerini, P değerlerini, yanlış keşif oranıyla düzeltilmiş değerleri, AUC'leri, %95 güven aralıklarını, Youden indeksi kesim noktalarını, sensitivite değerlerini, spesifite değerlerini ve validasyon türlerini rapor etmektedir.
GSE210248'de tek hücreli transkriptomik doğrulama
GSE210248, PAH akciğer arter yeniden şekillenmesinin, immün hücreler ile vasküler yapısal hücreler arasındaki değişmiş iletişimle birlikte seyrettiğini göstererek hücre düzeyinde mekanistik destek sağlamıştır. Bu gözlem; inflamatuar yanıtların, kemokin sinyallemesinin, Toll benzeri reseptör sinyallemesinin ve tümör nekroz faktörü sinyallemesinin dökme (bulk) transkriptomik zenginleşmesi ile tutarlıdır.
Tek hücreli kanıtlar, PAH pulmoner arter sinyal ağının düz kas hücreleri ve fibroblastlar dahil olmak üzere yapısal hücrelere doğru kaydığını göstermiştir. Düz kas hücreleri; oksijen algılayan/perisit benzeri, kontraktil, sentetik ve fibroblast benzeri dahil olmak üzere çoklu durumlar sergilemiştir. Bu sonuçlar, immün-inflamatuar aktivasyon ve vasküler yapısal hücre yeniden şekillenmesinin PH/PAH progresyonunu ortaklaşa yönlendirdiği bir hastalık modelini desteklemektedir.
Aday bileşik taraması ve moleküler kenetlenme
Connectivity Map taraması, 10,13'lük bir Logit skoru ve 0,085'lik öngörülen bir olasılık ile BRD-K91900765'i ilk 10 sonuç arasındaki en yüksek sıralamaya sahip aday bileşik olarak belirlemiştir (Şekil 10). Bileşik kürasyonu, BRD-K91900765'in, 3038525 PubChem bileşik kimliğine ve 436,27 g/mol moleküler kütleye sahip seçici bir p38α/MAPK14 inhibitörü olan VX-745/neflamapimod ile eşleştiğini göstermiştir (Tablo 6).
BRD-K91900765/VX-745'in biyobelirteçlerle ilişkili beş proteinle gerçekleştirilen keşifsel kenetlenme (docking) çalışması sonucunda; CXCL10 için -7,5 kcal/mol, JUN için -7,6 kcal/mol, IFIH1 için -7,5 kcal/mol, MX1 için -8,7 kcal/mol ve TLR7 için -8,1 kcal/mol şeklinde en yüksek Vina skorları elde edilmiştir (Tablo 7–11; Şekil 11A–E). Bu sonuçlar yalnızca öngörülen yapısal uyumluluğu göstermekte olup, söz konusu beş proteinin doğrudan farmakolojik hedefler olduğunu kanıtlamamıştır. Ön absorbsiyon, dağılım, metabolizma, ekskresyon ve toksisite öngörüleri, hesaplanan cLogP değerinin nispeten yüksek olması nedeniyle daha fazla değerlendirme gerektirmesine rağmen, bileşiğin çeşitli ilaç benzeri özelliklere sahip olduğunu düşündürmüştür (Tablo 12). Bilinen VX-745 hedefi olan MAPK14/p38α (PDB ID: 1OUK) ile yapılan kenetlenme, pozitif referans analizi olarak dahil edilmiştir. En üst MAPK14 boşluğu olan C1; -7,9 kcal/mol Vina skoru, 3560 Å3 boşluk hacmi, (2, 22, 34) kenetlenme kutusu merkezi ve (22, 31, 31) boyutları vermiştir (Tablo 13; Şekil 11F).
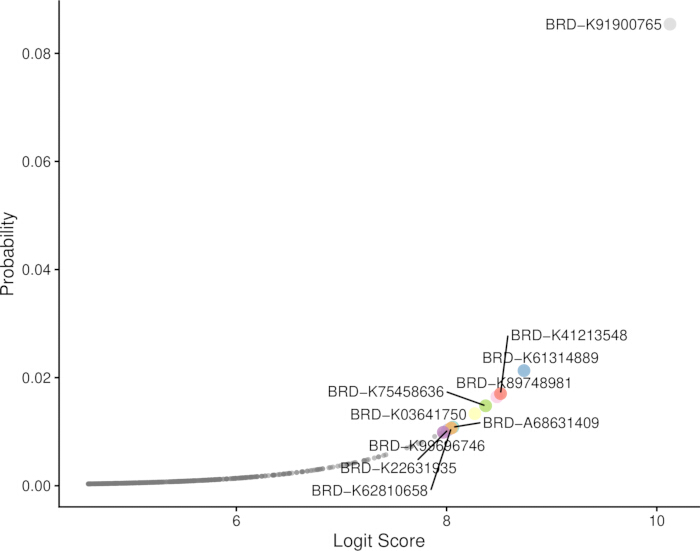
Şekil 10: Connectivity Map aday bileşik sıralaması. Connectivity Map taraması yoluyla belirlenen aday bileşiklerin sıralaması. BRD-K91900765, 10.13 Logit skoru ve 0.085 öngörülen olasılık ile en yüksek sıralamaya sahip bileşikti. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
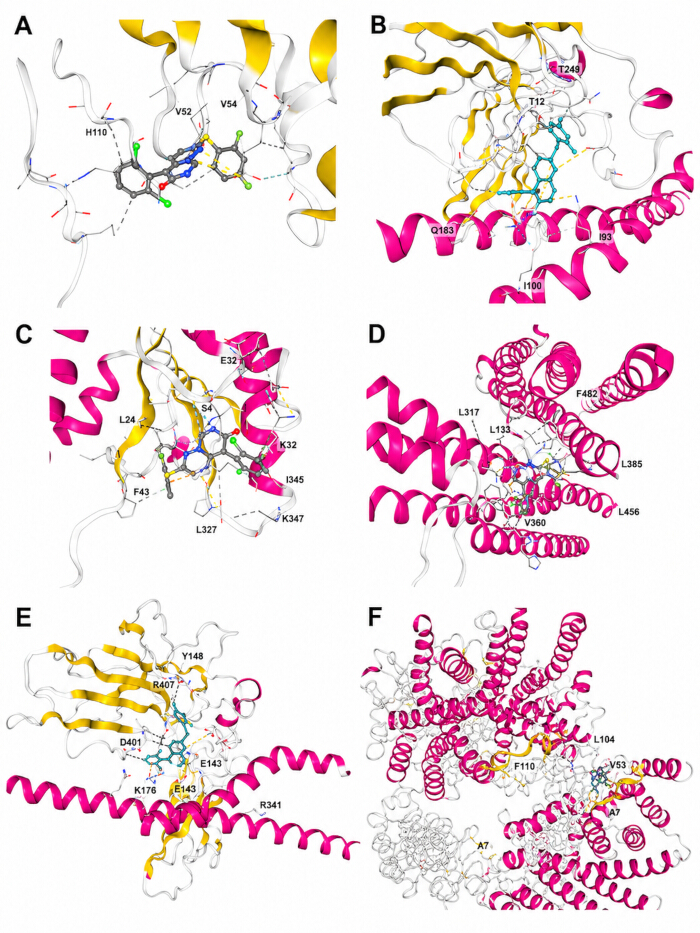
Şekil 11: BRD-K91900765/VX-745 için üç boyutlu moleküler docking diyagramları. (A) CXCL10 ile keşifsel docking. (B) JUN ile keşifsel docking. (C) IFIH1 ile keşifsel docking. (D) MX1 ile keşifsel docking. (E) TLR7 ile keşifsel docking. (F) Bilinen farmakolojik hedef MAPK14/p38α (PDB ID: 1OUK) ile pozitif referans docking. A–E panelleri öngörülen yapısal uyumluluğu göstermekte olup doğrudan farmakolojik hedefleme kanıtı sunmamaktadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Öğe | Açıklama |
| CMap/Broad ID | BRD-K91900765 (yaygın parti formatı: BRD-K91900765-001-xx-x) |
| Yaygın adı/diğer adları | VX-745; neflamapimod; VRT-031745; VD-31745 |
| Kimyasal adı | 5-(2,6-diklorofenil)-2-(2,4-diflorofenil)sülfanilpirimido[1,6-b]piridazin-6-on |
| PubChem CID | 3038525 |
| CAS numarası | 209410-46-8 |
| Moleküler formül / bağıl molekül kütlesi | C19H9Cl2F2N3OS; 436,27 g/mol |
| Kanonik SMILES | C1=CC(=C(C(=C1)Cl)C2=C3C=CC(=NN3C=NC2=O)SC4=C(C=C(C=C4)F)F)Cl |
| InChIKey | VEPKQEUBKLEPRA-UHFFFAOYSA-N |
| Yerleşmiş temel farmakolojik hedef | MAPK14/p38α; p38β inhibisyonunun da p38α'ya kıyasla daha düşük seçicilikle gerçekleştiği bildirilmiştir |
Tablo 6: BRD-K91900765/VX-745 için kimyasal ve farmakolojik bilgiler. Tablo; BRD-K91900765/VX-745'in bileşik tanımlayıcılarını, takma adlarını, kimyasal adını, moleküler formülünü, moleküler kütlesini, yapısal tanımlayıcılarını ve belirlenmiş farmakolojik hedefini özetlemektedir.
| CurPocket ID | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Docking boyutu (x, y, z) |
| C1 | -7.5 | 7568 | 49, 15, 4 | 34, 33, 35 |
| C4 | -7 | 160 | 46, 0, 4 | 22, 22, 22 |
| C3 | -6 | 208 | 34, 15, 9 | 22, 22, 22 |
| C2 | -5.8 | 465 | 45, -6, 19 | 22, 22, 22 |
| C5 | -5.1 | 150 | 63, 0, 20 | 22, 22, 22 |
Tablo 7: CXCL10 (PDB ID: 1LV9) ile BRD-K91900765/VX-745 için öngörülen docking cepleri. Tablo; CB-Dock2 tarafından oluşturulan sıralanmış boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, docking-box merkezlerini ve docking-box boyutlarını rapor etmektedir.
| CurPocket Kimliği | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Kenetleme boyutu (x, y, z) |
| C3 | -7.6 | 1593 | 26, 35, 70 | 22, 22, 22 |
| C2 | -7.5 | 1927 | 25, 21, 60 | 35, 22, 22 |
| C1 | -7.4 | 5420 | 32, 37, 48 | 35, 22, 31 |
| C5 | -6 | 464 | 26, 5, 48 | 22, 22, 22 |
| C4 | -5.3 | 683 | 59, 32, 39 | 22, 22, 22 |
Tablo 8: BRD-K91900765/VX-745'in JUN (PDB ID: 1JUN) ile öngörülen kenetlenme cepleri. Tablo; CB-Dock2 tarafından oluşturulan sıralı boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, kenetlenme kutusu merkezlerini ve kenetlenme kutusu boyutlarını rapor etmektedir.
| CurPocket ID | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Kenetleme boyutu (x, y, z) |
| C1 | -7.5 | 583 | 15, 4, 17 | 22, 22, 22 |
| C3 | -7.2 | 146 | 19, 21, 24 | 22, 22, 22 |
| C4 | -6.6 | 141 | 31, 19, 15 | 22, 22, 22 |
| C2 | -6.2 | 273 | 38, 9, 24 | 22, 22, 22 |
| C5 | -6.2 | 125 | 27, -7, 10 | 22, 22, 22 |
Tablo 9: BRD-K91900765/VX-745'in IFIH1 (PDB ID: 3B6E) ile tahmin edilen kenetlenme cepleri. Tablo, CB-Dock2 tarafından oluşturulan sıralı boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, kenetlenme kutusu merkezlerini ve kenetlenme kutusu boyutlarını bildirmektedir.
| CurPocket Kimliği | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Docking boyutu (x, y, z) |
| C1 | -8.7 | 523 | -18, -14, -5 | 22, 22, 22 |
| C4 | -7.3 | 262 | -13, -6, -9 | 22, 22, 22 |
| C3 | -7 | 306 | 12, 12, -7 | 22, 22, 22 |
| C2 | -6.9 | 408 | -3, 1, -12 | 22, 22, 22 |
| C5 | -6.2 | 179 | 24, 25, 13 | 22, 22, 22 |
Tablo 10: MX1 (PDB ID: 5GTM) ile BRD-K91900765/VX-745 için öngörülen kenetlenme cepleri. Tablo, CB-Dock2 tarafından oluşturulan sıralanmış boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, kenetlenme kutusu merkezlerini ve kenetlenme kutusu boyutlarını rapor etmektedir.
| CurPocket ID | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Kenetlenme boyutu (x, y, z) |
| C2 | -8.1 | 7347 | 112, 137, 148 | 33, 28, 35 |
| C3 | -8.1 | 2604 | 124, 124, 176 | 30, 22, 22 |
| C1 | -8 | 7676 | 137, 112, 148 | 34, 29, 35 |
| C5 | -6.9 | 1976 | 117, 157, 88 | 22, 22, 22 |
| C4 | -6.6 | 2040 | 132, 92, 91 | 22, 22, 22 |
Tablo 11: BRD-K91900765/VX-745'in TLR7 (PDB ID: 7CYN) ile öngörülen docking cepleri. Tablo; CB-Dock2 tarafından oluşturulan sıralanmış boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, docking kutusu merkezlerini ve docking kutusu boyutlarını raporlamaktadır.
| Kategori | Parametre | Sonuç | Yorumlama |
| Fizikokimyasal özellik | Moleküler ağırlık | 436,27 g/mol | Lipinski moleküler ağırlık eşiğini karşılayan, 500 Da'nın altında |
| Fizikokimyasal özellik | cLogP | Yaklaşık 5,49 | 5'ten biraz daha yüksek olması, yüksek lipofisiteye işaret etmekte olup çözünürlük ve spesifik olmayan bağlanmanın göz önünde bulundurulması gerektiğini göstermektedir |
| Fizikokimyasal özellik | TPSA | Yaklaşık 47,26 Ų | Potansiyel olarak elverişli membran geçirgenliği ile uyumlu düşük polar yüzey alanı |
| İlaç benzerliği | HBA/HBD | Mayıs-00 | Hidrojen bağı akseptörleri ve donörleri için Lipinski eşik değerlerini karşılar |
| İlaç benzerliği | Dönebilen bağlar | 3 | Stabil bağlanma konformasyonları için uygun, düşük konformasyonel esneklik |
| Yapısal uyarılar | PAINS/Brenk uyarıları | Saptanmadı | Yaygın herhangi bir pan-deney girişimi veya reaktif yapısal uyarı tespit edilmemiştir |
| Toksisite tahmini | Ames mutajenisitesi | Öngörülen non-Ames toksik | Düşük öngörülen mutajenik risk olduğunu göstermektedir; deneysel doğrulama hâlâ gereklidir |
| Toksisite öngörüsü | Karsinojenite | Karsinojenik olmadığı öngörülen | Nispeten düşük bir öngörülen uzun vadeli karsinojenik risk önermektedir; deneysel doğrulama halen gereklidir |
| Farmakokinetik notu | Oral biyoyararlanım/beyin geçirgenliği | Literatür ve veri tabanları, oral olarak alınabilen ve beyin bariyerini geçebilen küçük bir molekül olduğunu göstermektedir | p38α inhibitörü olarak geliştirilme geçmişiyle uyumlu olarak; PH endikasyonları için yeniden değerlendirme hâlâ gereklidir |
Tablo 12: BRD-K91900765/VX-745 için ön fizikiokimyasal, ilaç benzerliği, ADMET ve toksisite öngörüleri. Tablo; öngörülen fizikokimyasal özellikleri, ilaç benzerliği ölçümlerini, yapısal uyarıları, toksisite uç noktalarını ve farmakokinetik karakteristikleri özetlemektedir. Bu hesaplamalı öngörüler ön niteliktedir ve deneysel farmakokinetik veya toksikolojik doğrulamaların yerini tutmaz.
| CurPocket ID | Vina skoru (kcal/mol) | Kavite hacmi (ų) | Merkez (x, y, z) | Kenetlenme boyutu (x, y, z) |
| C1 | -7.9 | 3560 | 2, 22, 34 | 22, 31, 31 |
| C5 | -7.5 | 254 | -9, 28, 60 | 22, 22, 22 |
| C3 | -7.4 | 351 | 12, 7, 37 | 22, 22, 22 |
| C2 | -6.3 | 827 | 18, 5, 28 | 22, 22, 22 |
| C4 | -6.3 | 334 | -16, 17, 38 | 22, 22, 22 |
Tablo 13: Pozitif referans analizi olarak dahil edilen, BRD-K91900765/VX-745'in belirlenmiş farmakolojik hedefi MAPK14/p38α (PDB ID: 1OUK) ile öngörülen docking cepleri. Tablo; beş biyobelirteçle ilişkili proteine uygulanan docking iş akışının aynısı kullanılarak oluşturulan sıralı boşluk tanımlayıcılarını, Vina skorlarını, boşluk hacimlerini, docking kutusu merkezlerini ve docking kutusu boyutlarını rapor etmektedir.
Kolektif olarak, keşif analizleri ve qRT-PCR sonuçları; bağımsız GSE117261 replikasyonu JUN için en güçlü, diğer genler için ise değişken olsa da CXCL10, JUN, IFIH1, MX1 ve TLR7'nin immün-inflamatuar düzensizleme ve pulmoner vasküler yeniden şekillenme ile ilişkili aday PH/PAH biyobelirteçleri olduğunu desteklemektedir. BRD-K91900765/VX-745, MAPK14/p38α inhibisyonu şeklinde makul bir mekanizmaya sahip, hesaplama yoluyla önceliklendirilmiş bir ilaç yeniden konumlandırma adayıdır; terapötik yorumlama öncesinde hedef-bağlanma, hücresel, farmakokinetik, toksisite ve hayvan modeli doğrulamaları gereklidir.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışmada kullanılan tüm halka açık transkriptomik veri setlerine Gene Expression Omnibus veri tabanından GSE22356, GSE33463, GSE48149, GSE117261 ve GSE210248 erişim numaraları ile ulaşılabilir. Tüm kodlama dosyaları, işlenmiş veri setleri, kimliksizleştirilmiş qRT-PCR ham ve analiz edilmiş verileri, model çıktıları ve moleküler docking giriş/çıkış dosyaları yapılandırılmış bir Zenodo deposunda birleştirilmiştir. Depo, her bir dosyayı, yazılım ve paket versiyonlarını, betik yürütme sırasını ve eksiksiz yeniden üretim adımlarını açıklayan bir README dosyası içermektedir - https://zenodo.org/records/21682282
Tartışma
Kamuya açık transkriptomik veriler, ağırlıklı gen eş-ekspresyon ağ analizi, fonksiyonel zenginleştirme, protein-protein etkileşim ağı analizi, üç makine öğrenimi algoritması, harici doğrulama, tek hücreli transkriptomik yorumlama, kantitatif ters transkripsiyon PCR doğrulaması, Connectivity Map taraması ve moleküler kenetlemenin birleştirilmesiyle PH/PAH ile ilişkili moleküler biyobelirteçleri ve aday terapötik bileşikleri belirlemek için entegre ve tekrarlanabilir bir iş akışı geliştirilmiştir. CXCL10, JUN, IFIH1, MX1 ve TLR7 tutarlı bir şekilde çekirdek özellik genleri olarak önceliklendirilmiş ve toplu olarak immün-enflamatuar ve interferon ile ilişkili bir moleküler eksene eşlenmiştir. Bu bulgular, PH/PAH'nin yalnızca hemodinamik bir bozukluk değil, aynı zamanda immün aktivasyon, enflamatuar sinyalleme, doğuştan gelen nükleik asit algılama ile yapısal ve hücresel fenotipik değişiklikleri içeren karmaşık bir vasküler yeniden şekillenme hastalığı olduğu kavramını desteklemektedir2,5,6.
Beş genin tanısal potansiyeli, çoklu algoritma öznitelik seçimi ve keşif kohortu ROC analizi ile desteklenmiştir. GSE117261'deki bağımsız doğrulama, tekdüze olmaktan ziyade heterojendi: JUN önceden belirlenmiş FDR ve AUC kriterlerini karşıladı, CXCL10 transkriptom genelinde FDR anlamlılığı olmaksızın yönsel olarak tutarlı bir nominal artış gösterdi, IFIH1 ve MX1 sınırlı replikasyon gösterdi ve TLR7 uyumsuz bir yön gösterdi. Bu sonuçlar, beş genin tamamının bağımsız olarak doğrulandığı iddiasını desteklememekte olup kohort bileşimi, doku heterojenliği, platform farklılıkları ve hastalık şiddetinin olası etkilerine işaret etmektedir. Buna karşılık, 20 PAH ve 20 kontrol akciğer dokusu örneğinde yapılan qRT-PCR, beş genin tamamının anlamlı şekilde artış gösterdiğini ve uygun tek gen ROC performansını doğrulamıştır.
Beş genli qRT-PCR lojistik modeli 1.000'lik (95% CI, 1.000–1.000) bir görünür AUC değerine ulaşmıştır ve havuzlanmış katlam dışı (out-of-fold) AUC değeri, 100 tekrarlı tabakalı beş katlı çapraz doğrulama analizlerinde 1.000 olarak kalmıştır. Buna rağmen, model yalnızca 40 biyolojik örnekle geliştirilmiştir ve küçük bir retrospektif kohorttaki tam ayrışma, iyimser ve istikrarsız performans tahminleri üretebilir. Bu nedenle, panel klinik olarak doğrulanmış bir tanı aracı olmaktan ziyade keşifsel bir moleküler imza olarak değerlendirilmelidir. Klinik uygulamaya geçmeden önce daha geniş çok merkezli kohortlar, önceden belirlenmiş sabit model katsayıları, protein düzeyinde doğrulama, immünohistokimya ve prospektif testler gereklidir.
Beş temel gen arasında, CXCL10 pulmoner vasküler mikroçevre içerisinde immün hücre katılımını ve yerel inflamatuar amplifikasyonu teşvik edebilir. IFIH1 ve TLR7, doğuştan gelen nükleik asit algılamasında rol oynar ve antiviral benzeri inflamatuar yolakların aktivasyonunu yansıtabilir. MX1, klasik bir interferon-stimüle geni olup tip I interferon yolak aktivasyonunun aşağı akış marker'ını temsil edebilir. JUN, inflamatuar stimülasyonu hücre proliferasyonu, apoptoz ve doku yeniden şekillenmesine bağlayan stresle yanıt veren bir transkripsiyon faktörüdür. Birlikte bu genler, doğuştan gelen immün aktivasyonun ve interferon ile ilişkili sinyalleşmenin, PH/PAH'daki vasküler yeniden şekillenme süreçleriyle etkileşime girdiği biyolojik olarak tutarlı bir modele işaret etmektedir. Bu yorum, inflamasyon, immünite ve interferon ile ilişkili yolakların PAH patobiyolojisine katkıda bulunduğuna dair önceki kanıtlarla uyumludur2,5,6.
Tek hücreli doğrulama, bulk analizden elde edilen bulgular için mekanistik bir bağlam sağlamıştır. GSE210248, PAH pulmoner arter yeniden şekillenmesinin; düz kas hücreleri, fibroblastlar, endotel hücreleri ve monositler/makrofajlar dahil olmak üzere immün hücreler ile vasküler yapısal hücreler arasındaki değişmiş iletişimle birlikte seyrettiğini öne sürmüştür. Kontraktil, sentetik, oksijen duyarlı/perisit benzeri ve fibroblast benzeri dahil olmak üzere birden fazla düz kas hücresi fenotipik durumunun varlığı, immün aktivasyonun ve hücrelerin yapısal yeniden şekillenmesinin eş zamanlı olarak gerçekleştiği bir hastalık modelini desteklemektedir. Bu hücresel kanıt önemlidir çünkü bulk transkriptomik sinyaller; değişmiş hücre oranlarından, immün hücre infiltrasyonundan veya yerleşik vasküler hücrelerdeki transkripsiyonel değişikliklerden kaynaklanabilir. Bu nedenle, tek hücreli analiz; CXCL10, JUN, IFIH1, MX1 ve TLR7'yi tek bir hücre tipi sürecinden ziyade, çok hücreli bir pulmoner vasküler yeniden şekillenme ekosistemi içine yerleştirmektedir18,19,20,21.
İlaç yeniden konumlandırma analizi, VX-745/neflamapimod'a karşılık gelen BRD-K91900765'i en yüksek sıralamalı hesaplamalı aday olarak belirlemiştir. VX-745, seçici bir p38α/MAPK14 inhibitörüdür ve inflamatuar stres yolaklarıyla olan ilişkisi, onu PH/PAH ile ilişkili inflamasyon bağlamında mekanistik olarak makul kılmaktadır30. Bu nedenle, MAPK14/p38α'ya karşı yapılan docking, mekanistik olarak ilgili bir pozitif referans analiz olarak dahil edilmiştir. Buna karşılık CXCL10, JUN, IFIH1, MX1 ve TLR7'ye karşı yapılan docking keşifsel nitelikteydi ve yalnızca öngörülen yapısal uyumluluğu göstermiştir; bu biyobelirteç ilişkili proteinlerin doğrudan VX-745 hedefleri olduğunu kanıtlamamış veya doğrudan bağlanma, hedef inhibisyonu ya da terapötik etkinlik oluşturmamıştır. Biyolojik olarak daha makul olan hipotez, VX-745'in MAPK14'ü inhibe ederek tanımlanan immün-inflamatuar ve interferon ilişkili transkripsiyonel imzayı dolaylı olarak modüle edebileceğidir. Connectivity Map öngörüleri, docking skorları ve ADMET tahminleri hesaplamalı kanıtlar olmayı sürdürmektedir. Gelecekteki çalışmalar; biyokimyasal hedef bağlanma analizlerini, pulmoner arter endotel ve düz kas hücrelerinde yapılacak deneyleri, inflamatuar stimülasyon modellerini, farmakokinetik ve toksikolojik değerlendirmeleri ve hayvan modeli doğrulamalarını içermelidir.
Hipoksik pulmoner hipertansiyon üzerine yapılan güncel deneysel çalışmalar, nötrofiller ile pulmoner vasküler hücreler arasındaki iletişimin önemini de vurgulamıştır. Nötrofiller ile pulmoner arter düz kas hücreleri arasındaki HCK aracılı etkileşimlerin ve nötrofiller ile endotel hücreleri arasındaki SERPINB3 aracılı etkileşimlerin, pulmoner vasküler yeniden şekillenmeye katkıda bulunduğu bildirilmiştir31˒32. İnterferonla ilişkili, STAT1 ve JAK–STAT sinyalleri transkriptomik analizlerde tespit edildiği için, SERPINB3–STAT1/3 aksı mevcut bulgularla özellikle ilgilidir. Birlikte değerlendirildiğinde bu gözlemler, immün hücre aktivasyonunun ve vasküler yapısal hücrelerle olan iletişimin PH/PAH progresyonuna katkıda bulunabileceği yorumunu desteklemektedir.
Çalışmanın çeşitli güçlü yönleri bulunmaktadır. Veri setine özgü yanlılığı azaltmak için birden fazla kamuya açık veri seti ve grup etkisi (batch-effect) düzeltmesi kullanılmıştır. Özellik dayanıklılığını artırmak amacıyla diferansiyel ekspresyon analizi, ağırlıklı gen ko-ekspresyon ağ analizi, protein-protein etkileşim analizi ve üç makine öğrenimi algoritması birleştirilmiştir. Bağımsız bulk doğrulama, qRT-PCR konfirmasyonu ve tek hücreli kanıtlar, birbirini tamamlayan ancak özdeş olmayan kanıt katmanları sağlamıştır. Heterojen GSE117261 bulguları ve küçük qRT-PCR kohortu; eksik dış replikasyon, potansiyel doku ve platforma özgü etkiler ile aşırı öğrenme (overfitting) riski dahil olmak üzere önemli kısıtlılıkları da vurgulamaktadır. Biyobelirteç keşfi, aday bileşik taramasına da genişletilmiştir ancak docking analizleri hipotez üretici aşamada kalmıştır. Gelecekteki çalışmalar; beş geni, mekansal transkriptomik, proteomik, immünohistokimya ve organoid veya çip üzerinde damar (vascular-on-chip) modelleri kullanarak daha büyük bağımsız kohortlarda doğrulamalıdır. Genel olarak CXCL10, JUN, IFIH1, MX1 ve TLR7; immün-enflamatuar ve interferonla ilişkili vasküler yeniden şekillenme ile bağlantılı aday PH/PAH biyobelirteçleri olarak kalırken, BRD-K91900765/VX-745, terapötik ilgisi deneysel doğrulama gerektiren hesaplamalı bir ilaç yeniden konumlandırma adayıdır.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Hunan Yenilikçi Eyalet İnşa Projesi (No. 2022JJ30465) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 2× SYBR Green PCR Mastermix | Beijing Solarbio Science & Technology Co., Ltd. | Katalog no. SR1110 | Boya tabanlı kantitatif gerçek zamanlı PCR amplifikasyonu ve floresan deteksiyonu |
| AI21.msvmRFE.R ve e1071 | CRAN e1071 paketi ile hazırlanan özel R betiği | AI21.msvmRFE.R; e1071 v1.7-17 | Destek vektör makinesi-özyinelemeli özellik eleme |
| Agaroz | Beijing Solarbio Science & Teknoloji Co., Ltd. | Katalog no. A8201; CAS 9012-36-6 | Toplam RNA bütünlüğünün agaroz jel elektroforezi ile değerlendirilmesi |
| Agaroz jel elektroforez cihazı | Beijing Liuyi Biotechnology Co., Ltd. | Model DYCZ-24DN | RNA bütünlüğünün elektroforetik değerlendirmesi |
| AutoDock Vina skorlama motoru | Hesaplamalı Yapısal Biyoloji Merkezi, Scripps Research | v1.2.0; RRID: SCR_011958 | CB-Dock2 iş akışında protein-ligand poz skorlaması |
| CB-Dock2 | Cao Laboratuvarı, CB-Dock2 web sunucusu | v2.0; Temmuz 2026 tarihinde erişilmiştir | Seçilen protein yapıları ile VX-745'in kör boşluk tespiti ve moleküler kenetlenmesi |
| CellChat | CellChat R paketi | v2.1.2 | Tek hücreli ekspresyon matrisinden hücre-hücre etkileşiminin çıkarımı ve görselleştirilmesi |
| CellChatDB.human | CellChat R paketi ile dağıtılmıştır | CellChatDB.human; Salgılanan Sinyalizasyon alt kümesi; minimum hücre eşiği = 10 | CellChat için insan ligand-reseptör etkileşim veri tabanı |
| clusterProfiler | Bioconductor R paketi | v4.20.0; Bioconductor sürümü 3.23 | Gen Ontolojisi ve Genlerin ve Genomların Kyoto Ansiklopedisi zenginleştirme analizleri |
| Bağlantı Haritası (CMap/CLUE) | Broad Institute | L1000/CLUE kaynağı; RRID: SCR_016204; erişim tarihi Temmuz 2026 | Hesaplamalı ilaç yeniden konumlandırma analizi |
| Özel oligonükleotid primerler | Beijing Solarbio Science & Teknoloji Co., Ltd. | Özel olarak sentezlenmiştir; primer dizileri Tablo 2'de verilmiştir | ACTB, CXCL10, JUN, IFIH1, MX1 ve TLR7 Amplifikasyonu |
| cytoHubba | Cytoscape Uygulama Mağazası | v0.1 | Protein-protein etkileşim ağında derece tabanlı hub-gen sıralaması |
| Cytoscape | Cytoscape Konsorsiyumu | v3.10.4; RRID: SCR_003032 | Protein-protein etkileşim ağı görselleştirme ve analizi |
| DrugBank | DrugBank Bilgi Tabanı | v6.0; RRID: SCR_002700 | Bileşik kimliği ve farmakolojik bilgi kürasyonu |
| Jel dokümantasyon sistemi | Beijing Liuyi Biotechnology Co., Ltd. | Model WO-9413B | Agaroz jel RNA bütünlük sonuçlarının görselleştirilmesi ve kaydedilmesi |
| Gene Expression Omnibus (GEO) | Ulusal Biyoteknoloji Bilgi Merkezi | GSE22356, GSE33463, GSE48149, GSE117261 ve GSE210248; RRID: SCR_005012 | Toplu ve tek hücreli transkriptomik veri setlerinin geri çağrılması |
| GEOquery | Bioconductor R paketi | v2.80.0; Bioconductor sürümü 3.23 | GEO ekspresyon ve fenotip verilerinin programlı olarak indirilmesi ve içe aktarılması |
| glmnet | CRAN R paketi | v5.0 | En küçük mutlak küçültme ve seçim operatörü lojistik regresyonu ve düzenlenmiş lojistik modelleme |
| limma | Bioconductor R paketi | v3.68.0; Bioconductor sürüm 3.23; RRID: SCR_010943 | Diferansiyel ekspresyon analizi ve ampirik Bayes istatistikleri |
| NanoDrop spektrofotometre | Thermo Fisher Scientific | NanoDrop ND-1000; yazılım v3.8 | RNA konsantrasyonunun ve A260/280 ile A260/230 saflık oranlarının ölçümü |
| NCBI Primer-BLAST | Ulusal Biyoteknoloji Bilgi Merkezi | Web aracı; RRID: SCR_003095; erişim tarihi Temmuz 2026 | Primer özgüllüğünün doğrulanması |
| pROC | CRAN R paketi | v1.19.0.1; RRID: SCR_024286 | Alıcı işletim karakteristik analizi, DeLong güven aralıkları ve Youden indeksi kesim değerleri |
| Protein Veri Bankası (PDB) | RCSB Protein Veri Bankası | CXCL10: 1LV9; JUN: 1JUN; IFIH1: 3B6E; MX1: 5GTM; TLR7: 7CYN; MAPK14/p38α: 1OUK; RRID: SCR_012820 | Moleküler kenetleme için deneysel olarak belirlenmiş protein yapılarının geri çağrılması |
| PubChem | Ulusal Biyoteknoloji Bilgi Merkezi | PubChem CID 3038525; RRID: SCR_004284 | BRD-K91900765/VX-745'in üç boyutlu yapısının ve kimyasal tanımlayıcılarının elde edilmesi |
| R | R Foundation for Statistical Computing | v4.6.1; RRID: SCR_001905 | İstatistiksel hesaplama, veri işleme, makine öğrenimi ve görselleştirme |
| rastgeleOrman | CRAN R paketi | v4.7-1.2 | Rastgele orman özellik seçimi ve değişken önem sıralaması |
| Gerçek zamanlı PCR sistemi | Şu an Agilent Technologies olan Stratagene | Mx3000P Real-Time PCR Sistemi | qRT-PCR amplifikasyonu, floresan kazanımı, erime eğrisi analizi ve Ct dışa aktarımı |
| Seurat | CRAN R paketi; Satija Laboratuvarı | v5.5.1; RRID: SCR_016341 | Tek hücreli RNA dizileme kalite kontrolü, normalizasyonu, boyut indirgeme, kümeleme ve anotasyonu |
| Lütfen çevirmemi istediğiniz metni (STRING) paylaşın. Metni ilettiğinizde, belirttiğiniz tüm bilimsel ve akademik standartlara uygun olarak çevirisini gerçekleştireceğim. | STRING Konsorsiyumu | v12.0; RRID: SCR_005223 | Protein-protein etkileşim ağı oluşturma |
| sva (ComBat) | Bioconductor R paketi | v3.60.0; Bioconductor sürümü 3.23 | Veri setleri arası grup etkilerinin düzeltilmesi |
| SwissADME | İsviçre Biyoenformatik Enstitüsü | Web sunucusu; erişim tarihi Temmuz 2026 | İlaç benzerliği, fizikokimyasal özellik ve ADME ön taraması |
| Toplam RNA Ekstraksiyon Kiti | Beijing Solarbio Science & Teknoloji Co., Ltd. | Katalog no. R1200 | Akciğer dokusu örneklerinden toplam RNA ekstraksiyonu ve saflaştırılması |
| Evrensel RT-PCR Kiti (AMV) | Beijing Solarbio Science & Teknoloji Co., Ltd. | Katalog no. RP1200 | Toplam RNA'nın komplemanter DNA'ya ters transkripsiyonu |
| WGCNA (Ağırlıklı Gen Ko-ekspresyon Ağ Analizi) | CRAN R paketi | v1.74 | Ağırlıklı gen eş-ifade ağı kurulumu ve modül-özellik analizi |
Kaynaklar
- Simonneau G, et al. Haemodynamic definitions and updated clinical classification of pulmonary hypertension. Eur Respir J. 2019;53(1):1801913. doi: 10.1183/13993003.01913-2018.
- Rabinovitch M, Guignabert C, Humbert M, Nicolls MR. Inflammation and immunity in the pathogenesis of pulmonary arterial hypertension. Circ Res. 2014;115(1):165–175.
- Humbert M, et al. 2022 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Heart J. 2022;43(38):3618–3731.
- Galiè N, et al. 2015 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Respir J. 2015;46(4):903–975.
- Soon E, et al. Elevated levels of inflammatory cytokines predict survival in idiopathic and familial pulmonary arterial hypertension. Circulation. 2010;122(9):920–927.
- George PM, et al. Evidence for the involvement of type I interferon in pulmonary arterial hypertension. Circ Res. 2014;114(4):677–688.
- Subramanian A, et al. A next-generation Connectivity Map: L1000 platform and the first 1,000,000 profiles. Cell. 2017;171(6):1437–1452.e17.
- Leek JT, et al. The sva package for removing batch effects and other unwanted variation in high-throughput experiments. Bioinformatics. 2012;28(6):882–883.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi: 10.1093/nar/gkv007.
- Langfelder P, Horvath S. WGCNA: an R package for weighted correlation network analysis. BMC Bioinformatics. 2008;9:559. doi: 10.1186/1471-2105-9-559.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284–287.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Szklarczyk D, et al. The STRING database in protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Friedman J, Hastie T, Tibshirani R. Regularization paths for generalized linear models via coordinate descent. J Stat Softw. 2010;33(1):1–22.
- Guyon I, Weston J, Barnhill S, Vapnik V. Gene selection for cancer classification using support vector machines. Mach Learn. 2002;46:389–422.
- Breiman L. Random forests. Mach Learn. 2001;45(1):5–32.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77. doi: 10.1186/s12859-011-0077-8.
- Stearman RS, et al. Systems analysis of the human pulmonary arterial hypertension lung transcriptome. Am J Respir Cell Mol Biol. 2019;60(6):637–649.
- Crnkovic S, et al. Single-cell transcriptomics reveals skewed cellular communication and phenotypic shift in pulmonary artery remodeling. JCI Insight. 2022;7(20):e153471. doi: 10.1172/jci.insight.153471.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184(13):3573–3587.e29.
- Jin S, et al. Inference and analysis of cell–cell communication using CellChat. Nat Commun. 2021;12(1):1088. doi: 10.1038/s41467-021-21246-9.
- Bustin SA, et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634–651.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCt method. Methods. 2001;25(4):402–408.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51(D1):D1373–D1380.
- Knox C, et al. DrugBank 6.0: the DrugBank Knowledgebase for 2024. Nucleic Acids Res. 2024;52(D1):D1265–D1275.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi: 10.1038/srep42717.
- Burley SK, et al. RCSB Protein Data Bank: powerful new tools for exploring 3D structures of biological macromolecules for basic and applied research and education. Nucleic Acids Res. 2021;49(D1):D437–D451. doi: 10.1093/nar/gkaa1038.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898. doi: 10.1021/acs.jcim.1c00203.
- Liu Y, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking, and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164. doi: 10.1093/nar/gkac394.
- Duffy JP, et al. The discovery of VX-745: a novel and selective p38α kinase inhibitor. ACS Med Chem Lett. 2011;2(10):758–763.
- Sheng Y, et al. Crocin inhibits neutrophil migration and activation to treat hypoxic pulmonary hypertension through targeting HCK. Phytomedicine. 2025;148:157334. doi: 10.1016/j.phymed.2025.157334.
- Cui H, et al. Leonurine ameliorates hypoxic pulmonary hypertension by inhibiting cross-talk between neutrophils and endothelial cells via SERPINB3 targeting. Int Immunopharmacol. 2026;176:116467. doi: 10.1016/j.intimp.2026.116467.