Bu protokol, insan indüklenmiş pluripotent kök hücreleri kullanarak vasküler organoidler üretmek için bir yöntem sunmaktadır.
Yöntem makalesi
İnsan İndüklenmiş Pluripotent Kök Hücrelerden Vasküler Organoidlerin Üretimi İçin Optimize Edilmiş Bir Protokol
Bu makalede
Özet
Özet
İnsan pluripotent kök hücrelerinden (hPSCs) türetilen vasküler organoidler; damar gelişimini, hastalık mekanizmalarını ve ilaç yanıtlarını incelemek için güçlü üç boyutlu modeller olarak ortaya çıkmıştır. Mevcut vasküler organoid protokolleri, kendi kendini organize eden endotelyal-perisit ağlarının oluşturulmasına olanak tanımaktadır; ancak partiler arası değişkenlik, tutarsız organoid oluşumu ve yetersiz perisit kapsamı, tekrarlanabilirliği ve ölçeklenebilirliği olumsuz etkileyebilir. Bu çalışma, insan uyarılmış pluripotent kök hücrelerinden (hiPSCs) daha yüksek tekrarlanabilirlik ve yapısal tutarlılığa sahip vasküler organoidler üretmek için optimize edilmiş bir protokol sunmaktadır. Temel modifikasyonlar arasında; geliştirilmiş embriyoid gövde oluşum koşulları, mezoderm indüksiyonu ve vasküler spesifikasyon sırasında optimize edilmiş büyüme faktörü konsantrasyonları ve zamanlaması ile güçlü perisit katılımını ve endotelyal-perisit etkileşimlerini destekleyen geliştirilmiş üç boyutlu kültür koşulları yer almaktadır. Optimize edilen organoidler, orijinal protokole kıyasla partiler arası değişkenliği önemli ölçüde azaltılmış, PDGFR-β-pozitif perisitler tarafından tutarlı bir şekilde sarılmış, yüksek derecede dallanmış CD31-pozitif endotelyal ağlar sergilemektedir. Organoid üretimi, tüm yuva immunofloresan karakterizasyonu ve kalite kontrol değerlendirmesi için ayrıntılı, adım adım prosedürler sunulmuştur. Bu optimize yöntem; vasküler hücre etkileşimlerini incelemek, hastalıkları modellemek ve bileşiklerin taranması için uygun, yüksek kaliteli vasküler organoidlerin ölçeklenebilir üretimine imkan tanıyarak, bu model sistemi benimsemek isteyen laboratuvarlar için teknik engelleri düşürmektedir.
Giriş
Üç boyutlu (3D) organoidler, geleneksel iki boyutlu hücre kültürü modellerine kıyasla üstün yapısal biyomimikri vele patofizyolojik uygunluk sunarak, insan organ gelişimini ve hastalıklarını in vitro modellemek için güçlü araçlar olarak ortaya çıkmıştır1,2. Son yıllarda, insan pluripotent kök hücre (hPSC) kaynaklı organoidler; bağırsak3, beyin4,5, böbrek6, karaciğer7,8 ve retina9 dahil olmak üzere birçok doku tipi için başarıyla oluşturulmuştur. Ancak, organoid tabanlı çalışmalardaki temel zorluklardan biri, uzun süreli kültür sırasında yetersiz vaskülarizasyondur; bu durum hipoksi ve nekroza yol açarak organoid genişlemesini ve diferansiyasyonunu engelleyebilir10,11. Bu sınırlamayı gidermek için, vasküler ağ oluşumunu teşvik etmek amacıyla endotel hücrelerin veya mezenkimal kök hücrelerin dahil edilmesi gibi çeşitli ko-kültür stratejileri sunulmuştur12,13. Bununla birlikte, geleneksel iki boyutlu kültürler ve hayvan modelleri insan vasküler biyolojisini tam olarak yansıtmamakta, ko-kültür yaklaşımları ise ek deneysel karmaşıklık getirmektedir14. Bu nedenle, otonom vaskülarizasyon yeteneğine sahip vasküler organoidler, insan biyolojisine uygun gelecek vaat eden bir alternatif sunmaktadır15.
Vasküler ağ oluşumu, endotel hücreleri ile perisitler ve vasküler düz kas hücreleri gibi mural hücreler arasındaki etkileşimler aracılığıyla koordine edilen ve VEGF (vasküler endotel büyüme faktörü), TGF-β (transforming büyüme faktörü-β), PDGF (trombosit kaynaklı büyüme faktörü) ve angiopoietinler dahil olmak üzere çok sayıda sinyal molekülü tarafından sıkı bir şekilde düzenlenen vaskülogenez ve anjiyogenezin her ikisini de içerir16. 2019 yılında, Wimmer ve meslektaşları, doğrudan hPSC'lerden kendi kendine organize olan 3B kan damarı organoidleri üretmek için bir yöntem geliştirmişlerdir17,18. Bu sistem, endotel hücrelerini ve perisitleri eş zamanlı olarak üreterek lümen oluşumu ve bazal membran örtüsü içeren mikrovasküler ağlar oluşturur. Bu platform üzerine inşa edilen vasküler organoidler; yüksek glikoz ve pro-inflamatuar sitokin stimülasyonu (TNF-α ve IL-6) altında diyabetik vaskülopatiyi modellemek için kullanılmıştır; bu organoidler, diyabetik mikrovasküler patolojinin belirgin bir özelliği olan bazal membran kalınlaşmasını yeniden ortaya koymaktadır17. Ayrıca, bu model kalıtsal vasküler hastalıkları incelemek ve vasküler toksisite taraması için bir platform görevi görmek amacıyla kullanılmıştır19. Daha yakın zamanda, yöntem odaklı birkaç çalışma vasküler organoid üretimini optimize etmeye çalışmıştır. Örneğin, tek hücreli RNA sekanslamadaki ilerlemeler, MECOM ve LEF1 gibi temel düzenleyici faktörleri tanımlayarak insan vasküler organoid oluşumunun karakterize edilmesi ve optimize edilmesi için moleküler bir çerçeve sağlamıştır. Ek olarak, Xu ve ark. homojen embriyoid gövde oluşumunu kolaylaştırmak için mikrokuyucuklar tanıtmış ve hücre canlılığını artırmak için CEPT kokteylini dahil ederek parti ile parti arasındaki değişkenliği etkili bir şekilde azaltmışlardır20.
Vasküler organoid üretiminin homojenliğini, tekrarlanabilirliğini ve verimliliğini artırmak amacıyla, Wimmer ve ark. tarafından tanımlanan17,18 orijinal protokol, birkaç temel sınırlamayı gidermek için sistematik olarak optimize edilmiştir. İlk olarak, orijinal protokol, embriyoid gövde oluşumu için düşük tutunmalı plaklarda doğal agregasyonu kullanmaktadır; bu durum, agregat boyutunda önemli lotlar arası değişkenliğe ve dolayısıyla heterojen diferansiyasyon verimliliğine yol açabilmektedir. Optimize edilen protokolde, üniform hücre agregasyonunu teşvik etmek ve embriyoid gövde boyutunda tutarlılığı artırmak için agregat oluşumu sırasında polivinil alkol (PVA) ve orbital çalkalama birlikte uygulanmaktadır. İkinci olarak, orijinal protokol, vasküler ağ oluşum aşamasında tamamıyla besiyeri değişimini öngörmektedir; bu durum, büyüme faktörü konsantrasyonlarında önemli dalgalanmalara neden olabilir ve sürekli vasküler tomurcuklanma ile perisit katılımını tehlikeye atabilir. Buna karşın, optimize edilen protokol, endojen pro-anjiyojenik faktörleri korumak ve kültür ortamını stabilize etmek için her besiyeri değişiminde kondisyonlu besiyerinin üçte birini tutmaktadır. Üçüncü olarak, orijinal protokol, organoid izolasyonu ve olgunlaşması sırasında birden fazla plaka transferi gerektirmekte, bu da işlem gereksinimlerini ve organoid kaybı riskini artırmaktadır. Optimize edilen protokol, izole edilen organoidleri tek tek 96 kuyucuklu düşük tutunmalı plakaların kuyucuklarına transfer ederek bu adımları atlamakta, böylece prosedürü sadeleştirmekte ve verimliliği artırmaktadır. Topluca, bu optimize edilmiş protokol, bu model sistemin benimsenmesindeki teknik engelleri azaltmak ve vasküler organoidlerin vasküler gelişim, hastalık mekanizmaları ve yüksek verimli ilaç tarama çalışmalarındaki daha geniş çaplı uygulamasını kolaylaştırmak için ayrıntılı adım adım prosedürler ve kritik kalite kontrol noktaları sunmaktadır.
Protokol
Bu çalışmada hPSC'lerin kullanımı, Anhui Üniversitesi Biyomedikal Etik Komitesi tarafından onaylanmıştır (BECAHU_2026-010).
1. İnsan kaynaklı indüklenmiş pluripotent kök hücrelerin bakımı
NOT: İnsan kaynaklı uyarılmış pluripotent kök hücreleri (hiPSC'ler) besleyici hücre içermeyen (feeder-free) koşullarda muhafaza edin. Tüm işlemleri aseptik teknik kullanarak Sınıf II biyolojik güvenlik kabininde gerçekleştirin.
- Bazal membran matriksi ile kaplanmış kültür plakalarının hazırlanması
- −20 °C'den bir flakon bazal membran matriksi çıkarın ve yaklaşık 12–16 saat boyunca, gece boyunca 4 °C'de çözdürün. Tekrarlanan dondurma-çözdürme döngülerinden kaçının.
- Çözdürülmüş bazal membran matriksini steril koşullar altında iyice karıştırın ve tek kullanımlık alikotlara bölün (örneğin, tüp başına 1 mL). Alikotları −20 °C'de 2 yıla kadar saklayın.
NOT: Erken katılaşmayı önlemek için işlem sırasında bazal membran matriksini, pipetleri, uçları ve tüpleri soğuk tutun. Hava kabarcığı oluşumundan kaçının. - Gerekli bazal membran matriksi alikotunu buz üzerinde çözdürün. Bazal membran matriksini, önceden soğutulmuş DMEM içerisinde 1:200 oranında seyreltin (1 mL DMEM başına 5 µL bazal membran matriksi; nihai konsantrasyon yaklaşık 5 µg/mL).
- Görünür partikül kalmayana kadar solüsyonu pipetleyerek nazikçe karıştırın.
- 12 kuyucuklu bir plakanın her kuyucuğuna 0,5 mL seyreltilmiş bazal membran matriksi ekleyin. Tüm alt yüzeyi kaplamak için plakayı nazikçe eğerek döndürün.
- Kaplanmış plakayı %5 CO₂'li bir inkübatörde 37 °C'de en az 2 saat veya 4 °C'de gece boyunca inkübe edin.
NOT: Mühürlenmiş kaplanmış plakaları 4 °C'de 1–2 hafta saklayın. Kullanımdan hemen önce plakayı oda sıcaklığına getirip kaplama solüsyonunu aspire edin.
- hiPSC'lerin çözdürülmesi
- Sıvı azottan dondurulmuş hiPSC'lerin bulunduğu bir kriyoviyali çıkarın ve hemen 37 °C'lik bir su banyosuna yerleştirin. Viyali nazikçe çalkalayın ve sadece birkaç küçük buz kristali kaldığında, 1 dakika içinde çıkarın.
NOT: Dimetil sülfoksit (DMSO)'ye 37 °C'de uzun süre maruz kalmaktan ve eksik çözdürmeden kaçının; çünkü her ikisi de hücre canlılığını azaltabilir. - Kriyoviyalin dış kısmını %70 etanol ile dezenfekte edin ve biyolojik güvenlik kabini içinde açın.
- Hücre süspansiyonunu, 3 mL ön ısıtılmış kimyasal olarak tanımlanmış hPSC bakım ortamı veya eşdeğer bir kimyasal olarak tanımlanmış bakım ortamı içeren 15 mL'lik konik bir tüpe damla damla ve yavaşça aktarın. DMSO'yu kademeli olarak seyreltmek ve ozmotik stresi minimize etmek için aktarım sırasında nazikçe karıştırın.
- Hücreleri, salınan kova rotoru (swinging-bucket rotor) kullanarak oda sıcaklığında (22–24 °C) 300 × g'de 3 dakika boyunca santrifüjleyin.
- Hücre peletini rahatsız etmeden süpernatantı dikkatlice aspire edin. Peleti 1 mL ön ısıtılmış kimyasal olarak tanımlanmış hPSC bakım ortamı ile nazikçe resüspande edin.
NOT: Mekanik kesmeyi ve kabarcık oluşumunu minimize etmek için P1000 pipet kullanın ve 2–3 kez nazikçe pipetleyin.
- Sıvı azottan dondurulmuş hiPSC'lerin bulunduğu bir kriyoviyali çıkarın ve hemen 37 °C'lik bir su banyosuna yerleştirin. Viyali nazikçe çalkalayın ve sadece birkaç küçük buz kristali kaldığında, 1 dakika içinde çıkarın.
- hiPSC'lerin ekimi ve kültürü
- Önceden kaplanmış 12 kuyucuklu plakayı inkübatörden çıkarın ve kaplama solüsyonunu aspire edin. Kuyucukları yıkamayın.
- Çözdürme sonrası rutin geri kazanım için kuyucuk başına yaklaşık 1 × 10⁵–2 × 10⁵ canlı hücre ekleyin. Yoğunluğu, hiPSC hattına ve deneysel gereksinimlere göre ayarlayın.
- Pipet ucunun kaplanmış yüzeye değmemesine dikkat ederek hücre süspansiyonunu her kuyucuğun duvarı boyunca yavaşça dağıtın.
- Çözdürme sonrası hücre sağkalımını ve tutunmasını desteklemek için nihai konsantrasyonu 5 µM olacak şekilde Y-27632 ekleyin.
NOT: Y-27632'yi yalnızca ilk ekim ortamında kullanın. Ertesi gün bunu, Y-27632 içermeyen kimyasal olarak tanımlanmış hPSC bakım ortamı ile değiştirin. - Hücreleri 37 °C'de, %5 CO₂ ve doygun nem altında inkübe edin.
- Yaklaşık 16–24 saat sonra hücre tutunmasını ve morfolojisini inceleyin. Ortamı aspire edin ve Y-27632 içermeyen taze, ön ısıtılmış kimyasal olarak tanımlanmış hPSC bakım ortamı ile değiştirin.
- Hücreler pasajlama veya farklılaştırma için yaklaşık %70–%80 konfluensle ulaşana kadar ortamı her gün veya gün aşırı değiştirin.
NOT: Kültürleri günlük olarak inceleyin. Kompakt, sınırları belirgin kolonileri, yüksek nükleer-sitoplazmik oranı olan ve minimum spontan farklılaşma gösterenleri kullanın.
2. hiPSC agregatlarının oluşturulması ve farklılaşması
NOT: hiPSC'leri, bazal membran matrisi kaplı plaklarda, kimyasal olarak tanımlanmış hPSC bakım ortamında besleyici hücresiz koşullar altında tutun. Hücreleri her 4–5 günde bir %0,02 EDTA kullanarak pasajlayın. Vasküler farklılaşma verimliliğini maksimize etmek için uygun ekim yoğunluğuna, koloni boyutuna ve minimum spontan farklılaşmaya sahip kültürler kullanın.
- Tek hücre süspansiyonunun hazırlanması
- Kimyasal olarak tanımlanmış hPSC bakım ortamını aspire edin ve hiPSC'leri 6 kuyucuklu bir plakanın her bir kuyucuğu için 0,5 mL DMEM ile yıkayın.
- DMEM'i aspire edin ve her kuyucuğa 0,02% EDTA'dan 0,5 mL ekleyin. Hücreler yuvarlaklaşmaya başlayana kadar oda sıcaklığında 2–4 dakika inkübe edin ve hücreleri gözlemleyin.
- Hücreleri P1000 pipet kullanarak ayırın. Agregatları tek hücreli süspansiyona dönüştürmek için 2-3 kez nazikçe pipetleme yapın.
- Hücreleri 5 mL kimyasal olarak tanımlanmış hPSC bakım ortamında yeniden süspande edin ve süspansiyonu 15 mL'lik konik bir tüpe aktarın.
- Karıştırın 10 µL hücre süspansiyonunun ... ile 10 µL %0,1'lik Trypan mavi çözeltisinden. Yükleyin 10 µL karışımdan bir miktarı bir sayım odasına aktarın ve canlı hücre sayısını belirleyin.
- 5 elde etmek için gereken hücre süspansiyonu hacmini hesaplayın × 105 kuyu başına canlı hücre sayısı.
- Hücreleri 300 g'de santrifüj edin. × g oda sıcaklığında (22– için 5 dk23 °C). Süpernatantı aspire edin.
- Hücreleri, içeriğinde şunlar bulunan taze, kimyasal olarak tanımlanmış hPSC bakım ortamında yeniden süspanse edin: 50 µM Kuyu başına 3 mL hacminde Y-27632.
- Agrega oluşumu
- Düşük tutunmalı 6 kuyucuklu bir plakadaki her bir kuyucuğa 3 mL hücre süspansiyonu ekleyin. Nihai konsantrasyon %0,25 olacak şekilde PVA ekleyin.
- Plakayı 50 rpm hızında bir orbital sallayıcıya yerleştirin ve şu sıcaklıkta inkübe edin: 37 °C 1 gün boyunca.
- Düz kenarlı ve yaklaşık 50– çaplı agregatların oluştuğunu doğrulayın.100 µm devam etmeden önce veya daha fazla.
- NOT: Bireysel hiPSC hatları için agregasyon süresini optimize edin. İstenen boyutta agregatlar elde etmek için gerektiğinde inkübasyonu 2-3 güne uzatın.
- Mezoderm indüksiyonu
- 0. günde, agregatları steril 10 mL'lik tek kullanımlık bir pipet yardımıyla 15 mL'lik konik tüpe aktarın. Yeniden ekim için orijinal düşük yapışmalı plakayı saklayın.
- Agregatların yaklaşık 15–20 dakika boyunca yerçekimi ile çökelmesini bekleyin.
- NOT: Mekanik hasarı en aza indirmek için agregatları nazikçe tutun ve santrifüjleme yerine yerçekimi sedimentasyonunu kullanın.
- Agregatlar çöktükten sonra süpernatantı dikkatlice aspire edin.
- Agregatları, her kuyucuk için 3 mL, içeriğinde ... bulunan N2B27 besiyerinde yeniden süspande edin 12 µM CHIR99021 ve 30 ng/mL BMP-4.
- Agregatları düşük yapışma özellikli plakaya geri aktarın ve şu sıcaklıkta inkübe edin: 37 °C.
- Aşırı agregat füzyonunu minimize etmek için agregatları günde bir kez P1000 pipetle nazikçe pipetleyin. Mezoderm indüksiyonuna 3 gün boyunca devam edin.
- Vasküler soy indüklemesi
- 3. Günde agregatları 15 mL'lik konik tüpe aktarın ve yerçekimi ile çökmelerini bekleyin. Orijinal 6 kuyucuklu plakayı saklayın.
- Agregatlar çöktükten sonra süpernatanı dikkatlice aspire edin.
- Agregatları, kuyma başına 100 ng/mL VEGF-A ile desteklenmiş 3 mL N2B27 ortamında yeniden süspande edin ve 2 µM forskolin.
- Agregatları düşük yapışmalı 6 kuyucuklu plakaya geri aktarın ve 2 gün daha inkübe edin.
3. Vasküler ağların ve organoidlerin oluşturulması
- Kolajen I–bazal membran matriksinin hazırlanması
- Bir adet 12'li plaka içerisine gömmek için, bir adet 6'lı plakada üretilen agregatları toplayın. Kuyu başına yaklaşık 40–60 agregat kullanın.
- 12'li plakanın her bir kuyusuna iki adet 0,5 mL katman eklemek için yeterli miktarda kolajen I–bazal membran matriks karışımı hazırlayın.
- Bir adet 12'li plaka için 12 mL matriks hazırlayın. Tüm bileşenleri buz üzerinde tutun, karışımı kullanımdan hemen önce hazırlayın ve hava kabarcığı oluşumundan kaçının.
- 12'li plakanın her bir kuyusuna 0,5 mL matriks ekleyin. Matriksin eşit dağılması için plakayı hafifçe çalkalayın.
- İlk matriks katmanının katılaşması için plakayı 37 °C'de 2 s boyunca inkübe edin.
- Agregatların gömülmesi
- Agregatları steril bir 10 mL tek kullanımlık pipet kullanarak 15 mL'lik konik bir tüpe aktarın ve yerçekimi ile çökmelerine izin verin.
- Süpernatantı aspire edin ve agregatları 1 mL N2B27 medyumu ile iki kez yıkayın. Son yıkamadan sonra mümkün olduğunca fazla kalıntı medyumu uzaklaştırın.
- Taze bir kolajen I–bazal membran matriks karışımı hazırlayın ve buz üzerinde tutun.
- Yıkanmış agregatları, taze hazırlanan matriks içerisinde nazikçe resüspande edin.
- Katılaşmış ilk katmanı içeren 12'li plakayı inkübatörden çıkarın.
- Her bir kuyuya 0,5 mL agregat içeren matriks ekleyin.
- Agregatların eşit dağılması için plakayı 1 dk'dan fazla olmayacak şekilde nazikçe sallayın.
- İkinci katmanın katılaşması için plakayı derhal 37 °C'de 2 s boyunca inkübe edin.
- Vasküler filizlenmenin indüklenmesi
- %15 FBS, 100 ng/mL VEGF-A ve 100 ng/mL FGF-2 ile desteklenmiş N2B27 medyumunu 37 °C'ye kadar ön ısıtmaya tabi tutun.
- Vasküler diferansiyasyonu indüklemek için ön ısıtılmış destekli medyumu her bir kuyucuğa ekleyin.
- Sıradaki 1–3 gün boyunca kültürleri vasküler filizlenme açısından izleyin.
- NOT: Jel matriksin destabilizasyonunu en aza indirmek için, medyumu kültürlere eklemeden önce 37 °C'ye kadar ön ısıtmaya tabi tutun.
- Medyum değişimi ve kültür bakımı
- İlk medyum değişimini gömme işleminden 3 gün sonra gerçekleştirin.
- Bundan sonra, %15 FBS, 100 ng/mL VEGF-A ve 100 ng/mL FGF-2 içeren taze N2B27 medyumu kullanarak gün aşırı medyum değişimi yapın.
- Her medyum değişimi sırasında kondisyonlu medyumun üçte birini tutun ve geri kalan üçte ikisini taze destekli medyumla değiştirin.
- 10. Günde vasküler organoid izolasyonuna geçin.
4. Vasküler organoidlerin oluşturulması ve boyama hazırlığı
- Bireysel vasküler ağların izolasyonu
- Steril bir spatülün yuvarlatılmış ucunu kuyucuğun kenarı boyunca yerleştirin ve jel matriksi tabandan nazikçe ayırın.
- Spatülü, tüm jel matriks serbestçe yüzene kadar kuyucuk kenarından merkeze doğru hareket ettirmeye devam edin.
- Jelden bireysel vasküler ağları çıkarmak için iki steril iğne kullanın. Vasküler ağa zarar vermeden mümkün olduğunca fazla fazla matriksi uzaklaştırın.
- İzole organoidlerin kültürü
- İzole edilen her bir organoidi, steril tek kullanımlık bir pipet kullanarak düşük yapışmalı bir 96 kuyucuklu plakanın bireysel bir kuyucuğuna doğrudan aktarın.
- Her kuyucuğa %15 FBS, 100 ng/mL VEGF-A ve 100 ng/mL FGF-2 ile desteklenmiş 100 µL N2B27 medyumu ekleyin.
- Organoidleri 5 gün daha inkübe edin ve desteklenmiş medyumu günlük olarak yenileyin.
- Olgunlaşmanın 5. gününde organoidlerin yuvarlak ve tamamen enkapsüle bir morfoloji sergilediğini doğrulayın.
- Vasküler organoidlerin fiksasyonu
- Morfolojik olarak olgunlaşmış organoidleri 2 mL mikrosantrifüj tüplerine aktarın. Tüp başına yaklaşık 60'tan fazla organoid işlemeyin.
- Medyumu dikkatlice aspire edin ve PBS içinde %4 paraformaldehit (PFA) ekleyin.
- Organoidleri oda sıcaklığında 1 s boyunca fikse edin.
UYARI: PFA toksiktir ve şüpheli bir kanserojendir. PFA'yı uygun kişisel koruyucu ekipman giyerken kimyasal çeker ocak altında kullanın. - PFA'yı aspire edin ve yerine PBS ekleyin.
DURAKLAMA NOKTASI: Fikse edilmiş vasküler organoidleri 4 °C'de PBS içinde 1 aya kadar saklayın.
5. Vasküler organoidlerin boyanması ve konfokal görüntülemesi
- Bloklama ve permeabilizasyon
- Fikse edilmiş vasküler organoidler içeren her tüpe 2 mL bloklama tamponu ekleyin.
- Tüpleri bir orbital çalkalayıcıya dikey olarak yerleştirin ve organoidleri bloklamak ve permeabilize etmek için oda sıcaklığında 2 sa boyunca ajitasyonla inkübe edin.
- Primer antikor inkübasyonu
- Bloklama tamponunu aspire edin ve bloklama tamponu ile 1:100 oranında seyreltilmiş 50–100 µL primer antikor ekleyin.
- Tüpleri bir çalkalayıcıya dik olarak yerleştirin ve 4 °C'de gece boyunca ajitasyonla inkübe edin.
- Yıkama ve sekonder antikor inkübasyonu
- Örnekleri, yıkama başına 10–15 dk olacak şekilde üç kez PBST ile yıkayın. Her yıkama sırasında dikey konumlandırılmış tüpleri ajite edin.
- Bloklama tamponu ile 1:300 oranında seyreltilmiş floresan sekonder antikor ekleyin.
- Örnekleri oda sıcaklığında 2 sa boyunca inkübe edin.
- Nükleer karşı boyama ve final yıkama
- Örnekleri, yıkama başına 10–15 dk olacak şekilde iki kez PBST ile yıkayın.
- PBS ile 1:5.000 oranında seyreltilmiş Hoechst solüsyonu ekleyin ve oda sıcaklığında 10–15 dk inkübe edin.
- Örnekleri 10–15 dk boyunca PBS ile yıkayın.
- Konfokal görüntüleme
- Boyanmış organoidleri konfokal görüntüleme kaplarına aktarın.
- Deneysel gruplar genelinde tutarlı görüntüleme parametreleri kullanarak konfokal görüntüler elde edin.
- Vasküler organoidlerin kantitatif görüntü analizi
NOT: Kantitatif görüntü analizini Fiji/ImageJ ve AngioTool kullanarak gerçekleştirin. Tüm deneysel gruplar boyunca özdeş mikroskop kazanım ayarlarını koruyun.- Agregat çapı ölçümü
- Kalibre edilmiş bir ölçeğe sahip ters mikroskop kullanarak 0. Gün hiPSC agregatlarının bright-field görüntülerini elde edin. İyi ayrışmış agregatların görüntüsünü alın ve bir ölçek çubuğu ekleyin.
- Her görüntüyü Fiji/ImageJ'ye aktarın. Straight Line aracını kullanarak ölçek çubuğu boyunca bir çizgi çizin ve Analyze > Set Scale seçeneğini belirleyin.
- Bilinen mesafeyi ve birimi (örneğin, 100 µm) girin ve kalibrasyonu oturumdaki tüm görüntülere uygulamak için Global seçeneğini belirleyin.
- Straight Line aracını kullanarak her agregatın en geniş çapı boyunca bir çizgi çizin. Analyze > Measure seçeneğini belirleyin veya Ctrl+M tuşlarına basın ve çapı µm cinsinden kaydedin.
- Her grupta en az 30 agregatı ölçün.
- Sferik olmayan agregatlar için, Oval veya Polygon Selection aracını kullanarak her agregatın çevresini çizin. Analyze > Set Measurements > Feret's diameter seçeneğini belirleyin ve ölçümü kaydedin.
- Ölçümleri Results tablosundan dışa aktarın ve verileri bir hesap çizelgesinde derleyin.
- Her grup için ortalama, standart sapma (SD) ve varyasyon katsayısını (CV) CV = SD/ortalama × 100% olarak hesaplayın.
- Organoid çapı ölçümü
- Kalibre edilmiş bir ölçeğe sahip ters mikroskop kullanarak 15. Gündeki olgun vasküler organoidlerin bright-field görüntülerini elde edin. Her görüntüye bir ölçek çubuğu ekleyin.
- Her görüntüyü Fiji/ImageJ'ye aktarın ve ölçeği belirtilen adımda açıklandığı gibi kalibre edin.
- Straight Line aracını kullanarak her organoidin en geniş çapı boyunca bir çizgi çizin. Analyze > Measure seçeneğini belirleyin veya Ctrl+M tuşlarına basın ve çapı µm cinsinden kaydedin.
- Her grupta en az 30 organoidi ölçün.
- Düzensiz şekilli organoidler için en uzun ve en kısa çapları ölçüp ortalamalarını hesaplayın veya adım 5.6.1.6'da açıklandığı gibi Feret çapını belirleyin.
- Ölçümleri dışa aktarın ve her grup için ortalama, SD ve CV değerlerini hesaplayın.
- CD31-pozitif vasküler alanın kantifikasyonu
- CD31 ile boyanmış 15. Gün whole-mount organoidlerin konfokal z-stack görüntülerini elde edin. Tüm örnekler için özdeş lazer gücü, kazanç, offset ve pinhole ayarları kullanın.
- Mikroskop yazılımı veya Fiji/ImageJ kullanarak z-stack'lerden maksimum yoğunluk projeksiyonları (MIPs) oluşturun.
- Arka plan sinyalini hariç tutarak CD31-pozitif vasküler ağı segmente etmek için bir yoğunluk eşiği uygulayın.
- Küçük artefaktları gidermek için Process > Noise > Remove Outliers seçeneğini belirleyin ve 2–5 piksellik bir yarıçap kullanın. Vasküler ağ içindeki küçük boşlukları doldurmak için Process > Binary > Fill Holes seçeneğini belirleyin.
- Analyze > Set Measurements seçeneğini belirleyin ve Area ile Area fraction seçeneklerini etkinleştirin. Vasküler alanı belirlemek için Analyze > Measure seçeneğini belirleyin.
- CD31-pozitif vasküler alanı, toplam organoid alanının bir yüzdesi olarak hesaplayın.
- Üç bağımsız gruptan, grup başına en az üç organoidi analiz edin. İstatistiksel analiz için ölçümleri dışa aktarın.
- PDGFR-β-pozitif perisit kapsamının kantifikasyonu
- CD31 ve PDGFR-β ile boyanmış 15. Gün whole-mount organoidlerin konfokal z-stack görüntülerini elde edin. z-stack'lerden MIPs oluşturun.
- CD31 ve PDGFR-β MIP'lerini Fiji/ImageJ'ye aktarın ve görüntü hizalamasını doğrulayın.
- Vasküler ağı tanımlayan bir binary maske oluşturmak için CD31 kanalına eşikleme uygulayın.
- Perisit sinyalinin bir binary maskesini oluşturmak için aynı segmentasyon yaklaşımını kullanarak PDGFR-β kanalına eşikleme uygulayın.
- Process > Image Calculator seçeneğini belirleyin ve örtüşen pikselleri belirlemek için CD31 ve PDGFR-β maskelerine AND işlemini uygulayın.
- Örtüşen sinyalin alanını ölçün.
- Perisit kapsamını (CD31-pozitif damarlar içindeki PDGFR-β-pozitif alan/toplam CD31-pozitif vasküler alan) × 100% olarak hesaplayın.
- Üç bağımsız gruptan, grup başına en az üç organoidi analiz edin. İstatistiksel analiz için ölçümleri dışa aktarın.
- AngioTool kullanarak dallanma indeksi analizi
- CD31 ile boyanmış 15. Gün whole-mount organoidlerin konfokal z-stack görüntülerini elde edin. z-stack'lerden MIPs oluşturun.
- AngioTool'u başlatın ve MIP görüntüsünü yükleyin.
- Damar çapını, görüntülerde gözlemlenen tipik damar çapına göre ayarlayın.
- Arka plan sinyalini hariç tutarak vasküler ağı segmente etmek için yoğunluk eşiğini ayarlayın. Küçük artefaktları hariç tutmak için minimum damar boyutunu belirleyin.
- Analizi çalıştırın; damar alanı, damar yoğunluğu, toplam damar uzunluğu, eklem sayısı ve dallanma indeksini kaydedin.
- Vaskülaturun sarı ile çevrelendiğini, vasküler iskeletin kırmızıyla görüntülendiğini ve dallanma noktalarının mavi noktalarla işaretlendiğini onaylayarak çıktı görüntüsünü doğrulayın.
- Kantitatif sonuçları AngioTool'dan dışa aktarın.
- Üç bağımsız gruptan, grup başına en az üç görüş alanı analiz edin ve verileri istatistiksel analiz için derleyin.
- Agregat çapı ölçümü
6. Vasküler organoidlerin kantitatif gerçek zamanlı PCR analizi
NOT: Tüm RNA izolasyon ve sonraki prosedürleri RNaz-free koşullar altında gerçekleştirin.
- RNA ekstraksiyonu
- 1,5 mL RNase-free mikro santrifüj tüpüne 5–10 adet 15. Gün olgun vasküler organoid toplayın. Kalıntı medyumu tamamen uzaklaştırın.
NOT: Yeterli RNA elde etmek için gerektiğinde birden fazla organoidi birleştirin. - İçeriğine %1 β-merkaptoetanol eklenmiş 350 µL lizis tamponu ekleyin.
- Organoidler tamamen lizse kadar numuneleri 10–15 kez pipetleyerek karıştırın.
- Lizatı, bir toplama tüpüne yerleştirilmiş genomik DNA eliminasyon spin kolonuna aktarın. Oda sıcaklığında 11.000 × g hızda 30 s boyunca santrifüjleyin.
- Kolonu atın ve süzüntüyü saklayın.
- Süzüntüye, yaklaşık 350 µL miktarında eşit hacimde %70 etanol ekleyin ve pipetleyerek iyice karıştırın.
- Karışımdan 700 µL'ye kadar olan kısmı, bir toplama tüpüne yerleştirilmiş bir RNA spin kolonuna aktarın. 11.000 × g hızda 30 s boyunca santrifüjleyin ve süzüntüyü atın.
- Kolona 350 µL yıkama tamponu 1 ekleyin. 11.000 × g hızda 30 s boyunca santrifüjleyin ve süzüntüyü atın.
- Numune başına 10 µL DNase I ile 70 µL DNase sindirim tamponunu birleştirerek DNase I karışımını hazırlayın.
- 80 µL DNase I karışımını doğrudan kolon membranına ekleyin ve oda sıcaklığında 15 dk inkübe edin.
- Kolona 350 µL yıkama tamponu 1 ekleyin. 11.000 × g hızda 30 s boyunca santrifüjleyin ve süzüntüyü atın.
- Kolona 500 µL yıkama tamponu 2 ekleyin. 11.000 × g hızda 30 s boyunca santrifüjleyin ve süzüntüyü atın.
- 500 µL yıkama tamponu 2 ile yıkama işlemini tekrarlayın.
- Membranı kurutmak için boş kolonu 11.000 × g hızda 2 dk santrifüjleyin.
- Kolonu yeni bir 1,5 mL RNase-free mikro santrifüj tüpüne aktarın. Doğrudan membrana 30–50 µL RNase-free su ekleyin ve oda sıcaklığında 1 dk inkübe edin.
- RNA'yı elüe etmek için 11.000 × g hızda 1 dk santrifüjleyin. RNA'yı kullanıma kadar −80 °C'de saklayın.
NOT: RNA konsantrasyonunu ve saflığını spektrofotometre ile değerlendirin. Kabul edilebilir aralık olarak 1,8–2,1 A260/A280 oranını kullanın.
- 1,5 mL RNase-free mikro santrifüj tüpüne 5–10 adet 15. Gün olgun vasküler organoid toplayın. Kalıntı medyumu tamamen uzaklaştırın.
- cDNA sentezi
- Ters transkripsiyon reaksiyon karışımını buz üzerinde hazırlayın.
- 600 ng toplam RNA'yı; ters transkriptaz, tampon, dNTP'ler ve rastgele primerler içeren 4 µL RT master mix ile birleştirin. Toplam hacim 20 µL olacak şekilde RNase-free su ekleyin.
- Reaksiyonu 37 °C'de 15 dk, ardından 85 °C'de 5 s inkübe edin.
- Elde edilen cDNA'yı kullanıma kadar −20 °C'de saklayın.
- Kantitatif gerçek zamanlı PCR
- Reaksiyon başına 5 µL 2× SYBR Green master mix, 3 µL RNase-free su ve her biri 10 µM konsantrasyonda önceden karıştırılmış ileri ve geri primerlerin 1 µL'sini birleştirerek 9 µL qPCR master mix hazırlayın.
- Her bir 96 kuyucuklu qPCR plakası kuyucuğuna 9 µL master mix dağıtın.
- Final reaksiyon hacmi 10 µL olacak şekilde her kuyucuğa 1 µL cDNA ekleyin.
- Plakayı optik yapışkan film ile kapatın ve 1.000 × g hızda 1 dk santrifüjleyin.
- 95 °C'de 30 s boyunca başlangıç denatürasyonunu gerçekleştirin.
- 95 °C'de 5 s ve ardından 60 °C'de 30 s şeklinde 40 amplifikasyon döngüsü gerçekleştirin.
- Amplikon özgüllüğünü doğrulamak için erime eğrisi analizi yapın.
NOT: Her numuneyi çift veya üçlü (duplicate veya triplicate) şeklinde çalıştırın. - 2−ΔΔCt yöntemini kullanarak göreceli hedef gen ekspresyonunu hesaplayın. Ct değerlerini housekeeping gene (örneğin, GAPDH) ile normalize edin ve ekspresyonu diferansiye olmamış hiPSC numunelerine göre kalibre edin.
7. İstatistiksel analiz
- Kantitatif verileri, her koşul için en az üç bağımsız biyolojik tekrardan (n ≥ 3) elde edilen ortalama ± standart sapma (SD) şeklinde sunun.
- Agregat ve organoid çap ölçümleri için her bağımsız grubu bir biyolojik tekrar olarak değerlendirin ve grup düzeyinde tek bir ortalama elde etmek için her grupta ölçülen 30 bireysel yapının ortalamasını alın.
- Grup düzeyinde tek bir değer elde etmek için her gruptaki birden fazla organoidden veya alandan gelen damar alanı, perisit kapsamı ve dallanma indeksi ölçümlerinin ortalamasını alın ve istatistiksel karşılaştırmalar için bu grup düzeyindeki değerleri kullanın.
- Optimize edilmiş protokolü, orijinal Wimmer protokolü ile eşleştirilmemiş çift kuyruklu Student's t-testi kullanarak karşılaştırın.
- İstatistiksel anlamlılığı p < 0.05 olarak tanımlayın. Anlamlılık düzeylerini, duruma göre p < 0.05, p < 0.01 ve p < 0.001 şeklinde belirtin.
- Tüm istatistiksel analizleri, istatistik analiz yazılımı versiyon 10 kullanarak gerçekleştirin.
Sonuçlar
Burada açıklanan optimize edilmiş protokol, basamaklı bir diferansiyasyon stratejisi kullanarak hiPSC'lerden yaklaşık 15 gün içinde olgun vasküler organoidlerin üretilmesini sağlar (Şekil 1A). Kısaca, orbital sarsıcı üzerinde %0,25 PVA ile desteklenmiş düşük yapışma özellikli plaklarda hiPSC agregatları oluşturulmuştur (Gün −1). Mezoderm indüksiyonu, Gün 0'da CHIR99021 (12 µM) ve BMP-4 (30 ng/mL) kullanılarak 3 gün boyunca başlatılmış, ardından VEGF-A (100 ng/mL) ve forskolin (2 µM) ile 2 gün boyunca vasküler soy spesifikasyonu yapılmıştır (Gün 3–5). Gün 5'te agregatlar, kollajen I–bazal membran matrisine gömülmüş ve vasküler filizlenmeyi teşvik etmek için VEGF-A (100 ng/mL), FGF-2 (100 ng/mL) ve %15 FBS ile desteklenmiş N2B27 ortamında kültüre edilmiştir. Gün 10'da, tekil vasküler ağlar jellerden izole edilmiş ve daha fazla olgunlaşma için düşük yapışma özellikli 96 kuyucuklu plakalara, her kuyucuğa bir organoid gelecek şekilde aktarılmıştır. Gün 15'e gelindiğinde, yuvarlak ve tamamen kapsüllenmiş bir morfolojiye sahip olgun vasküler organoidler elde edilmiştir (Şekil 1B).
Farklılaşmış hücrelerin vasküler kimliğini doğrulamak için, endotelyal belirteç CD31 için bütün monte immunofloresan boyama ve beraberinde Hoechst nükleer karşıt boyama gerçekleştirilmiştir. Konfokal mikroskopi, dallanmış tübüler yapılar oluşturan yaygın CD31-pozitif endotelyal ağlar ortaya çıkarmıştır. z-yığın görüntülerinin üç boyutlu rekonstrüksiyonu, organoidler içindeki vasküler ağların karmaşıklığını daha da belirginleştirmiştir (Şekil 1C). Farklılaşma verimliliği, ayrıca vasküler soy hattına özgü genlerin kantitatif gerçek zamanlı PCR analizi ile değerlendirilmiştir. Endotelyal belirteçler CD31 ve CDH5 ile perisit belirteci PDGFR-β'nin ekspresyonu, farklılaşmamış hiPSC'lere kıyasla 15. Gün organoidlerinde anlamlı derecede artmıştır. Buna karşılık, pluripotensi belirteçleri OCT4, SOX2 ve NANOG'un ekspresyonu belirgin şekilde azalmış ve vasküler soy hattına doğru başarılı bir farklılaşma gerçekleştiği doğrulanmıştır (Şekil 1D). CD31 ve PDGFR-β için yapılan eş zamanlı boyama, PDGFR-β-pozitif perisitlerin CD31-pozitif endotelyal tüplerle yakın ilişkili olduğunu ve onları çevrelediğini göstermiş; bu da perisit örtüsüne sahip vasküler yapıların oluştuğuna işaret etmiştir (Şekil 1E). Toplu olarak bu sonuçlar, optimize edilmiş protokolün, karmaşık bir üç boyutlu vasküler ağ içinde hem endotelyal hücreleri hem de perisitleri içeren vasküler organoidleri güvenilir bir şekilde ürettiğini kanıtlamaktadır.
Optimize edilmiş protokol ile elde edilen iyileştirmeleri sistematik olarak değerlendirmek amacıyla, orijinal Wimmer protokolü ile optimize edilmiş protokol kullanılarak birden fazla bağımsız seride üretilen organoidleri karşılaştırmak için kantitatif morfometrik analizler gerçekleştirilmiştir. Aydınlık alan mikroskopisi, diferansiyasyon boyunca iki protokol arasında belirgin morfolojik farklar olduğunu ortaya koymuştur. Orijinal protokol birçok aşamada heterojen boyutlarda ve düzensiz şekillerde agregatlar ve organoidler oluştururken; optimize edilmiş protokol, 0. Günden itibaren pürüzsüz sınırlara sahip, tutarlı ve tek tip agregatlar üretmiş ve bunlar 15. Güne kadar daha yuvarlak, tek tip boyutlarda olgun vasküler organoidlere dönüşmüştür (Şekil 2A).
0. Gün'de yapılan agregat çapının kantitatif analizi, optimize edilmiş protokolün orijinal protokole kıyasla (112,2 ± 34,7 µm, CV = %30,93; n = 3 bağımsız grup; t = 6,159, df = 4, p = 0,004; Şekil 2B) anlamlı derecede daha üniform agregatlar (120,3 ± 5,4 µm, CV = %4,47; grup başına 30 agregat ölçülmüştür; n = 3 bağımsız grup) oluşturduğunu doğrulamıştır. Üniformitedeki bu iyileşme, diferansiyasyon son noktasına kadar korunmuştur. Optimize edilmiş protokol kullanılarak oluşturulan 15. Gün organoidleri, orijinal protokol kullanılarak oluşturulanlara kıyasla (615,4 ± 270,9 µm, CV = %44,0; n = 3 bağımsız grup; t = 8,430, df = 4, p = 0,001; Şekil 2C) önemli ölçüde azalmış boyut değişkenliği (670,8 ± 63,5 µm, CV = %9,47; grup başına 30 organoid ölçülmüştür; n = 3 bağımsız grup) sergilemiştir.
Vasküler ağ oluşumu, daha sonra CD31-pozitif endotel kaplaması ve PDGFR-β-pozitif perisit kaplaması miktarlandırılarak değerlendirildi. Üç bağımsız grup boyunca, optimize edilmiş protokol orijinal protokole göre anlamlı derecede daha yüksek endotel kaplaması sağladı (40.1 ± 2.9% vs. 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; Şekil 2D). Perisit kaplaması da optimize edilmiş protokol ile anlamlı derecede daha yüksekti (36.2 ± 2.5% vs. 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003) (Şekil 2E). AngioTool kullanılarak yapılan dallanma indeksi analizi, optimize edilmiş protokol ile oluşturulan organoidlerin daha karmaşık vasküler ağlar meydana getirdiğini daha net bir şekilde gösterdi (50.2 ± 3.8 vs. 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; Şekil 2F). Son olarak, genel organoid oluşum verimliliği, başlangıç agregatlarının 15. Güne kadar olgun vasküler organoidlere dönüşme yüzdesi olarak değerlendirildi. Üç bağımsız grup boyunca, optimize edilmiş protokol orijinal protokole (41.3 ± 10.8%; n = 3; t = 3.433, df = 4, p = 0.03) kıyasla anlamlı derecede daha yüksek bir oluşum verimliliğine ulaştı (64.3 ± 3.8%; n = 3); bu durum, organoid veriminde yaklaşık 1.6 katlık bir artışa karşılık gelmektedir (1 × 10⁶ başlangıç hücresi başına 60–67 vs. 29–50 organoid; Şekil 2G). Optimize edilmiş protokol ayrıca grup 간 değişkenliği önemli ölçüde azaltmış (SD, 3.8% vs. 10.8%), böylece gelişmiş tekrarlanabilirliği daha fazla kanıtlamıştır.
Agregat ve organoid çapı, organoid verimi ve oluşum verimliliği, vasküler alan, perisit kapsamı, dallanma indeksi, başarısızlık oranı ve partiden partiye değişkenlik dahil olmak üzere orijinal ve optimize edilmiş protokollerin kantitatif sonuçları Tablo 1'de özetlenmiştir. hiPSC bakımı ve vasküler organoid farklılaşması için kullanılan besiyeri ve matris solüsyonlarının bileşimleri Tablo 2'de, tüm boyama (whole-mount) immünofloresan boyama için kullanılan bloklama tamponu formülasyonu ise Tablo 3'te verilmiştir. Kantitatif gerçek zamanlı PCR analizi için kullanılan primer dizileri Tablo 4'te listelenmiştir. Vasküler organoid üretimi ve karakterizasyonu sırasında kullanılan temel reaktiflerin çalışma konsantrasyonları ve hazırlama koşulları Ek Tablo 1'de sunulmuştur.
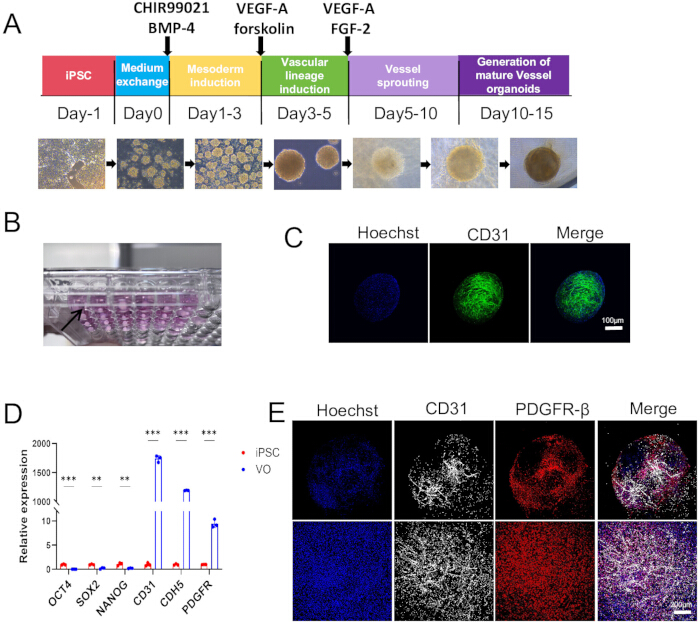
Şekil 1: İnsan indüklenmiş pluripotent kök hücrelerinden türetilen vasküler organoidlerin üretimi ve karakterizasyonu. (A) Kademeli vasküler organoid diferansiyasyon protokolünün şematik gösterimi. hiPSC agregatları, CHIR99021 ve BMP-4 ile mezoderm indüksiyonuna, ardından VEGF-A ve forskolin ile vasküler soy indüksiyonuna, VEGF-A ve FGF-2 varlığında vasküler tomurcuklanmaya ve sonrasında vasküler organoidlere olgunlaşmaya tabi tutulur. Temsili parlak alan görüntüleri, Day −1'den Day 15'e kadar diferansiyasyon sırasındaki morfolojik değişiklikleri göstermektedir. (B) 96 kuyucuklu plakada tek tek kültüre edilmiş olgun vasküler organoidlerin temsili makroskobik görüntüsü. (C) CD31 (yeşil) için boyanmış ve Hoechst (mavi) ile karşı boyanmış bir Day 15 vasküler organoidinin temsili konfokal görüntüleri; organoid içindeki endotelyal ağı göstermektedir. Ölçek çubuğu = 100 µm. (D) Day 15 vasküler organoidlerinde (VO), diferansiyasyon geçirmemiş hiPSC'lerle karşılaştırıldığında pluripotensi belirteçleri OCT4, SOX2 ve NANOG ile vasküler soy belirteçleri CD31, CDH5 ve PDGFR-β'nin kantitatif gerçek zamanlı PCR analizi. Veriler, üç bağımsız deneyden elde edilen ortalama ± SD olarak sunulmuştur. İstatistiki anlamlılık, eşleştirilmemiş iki kuyruklu Student's t-testi kullanılarak belirlenmiştir. (E) CD31 (beyaz), PDGFR-β (kırmızı) ve Hoechst (mavi) için boyanmış bir Day 15 vasküler organoidinin temsili whole-mount immünofloresan görüntüleri; PDGFR-β-pozitif perisitlerin CD31-pozitif endotelyal ağlarla ilişkisini kanıtlamaktadır. Ölçek çubuğu = 200 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
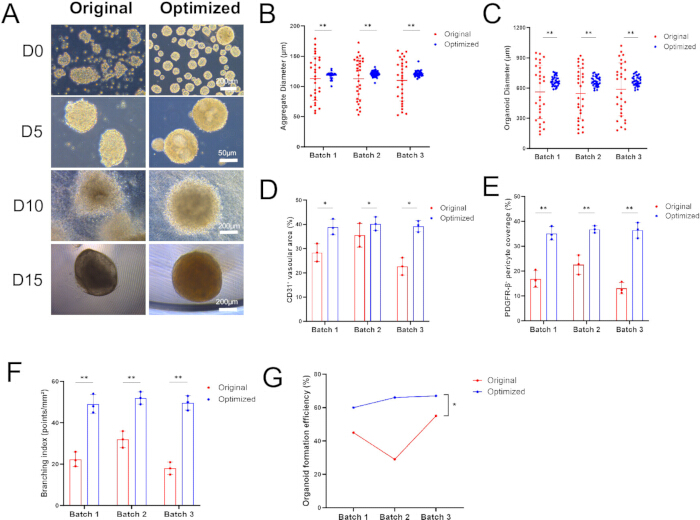
Şekil 2: Orijinal Wimmer protokolü ve optimize edilmiş protokol kullanılarak üretilen vasküler organoidlerin nicel karşılaştırması. (A) 0. Gün (D0), 5. Gün (D5), 10. Gün (D10) ve 15. Gün'de (D15) orijinal ve optimize edilmiş protokoller kullanılarak üretilen agregatların ve vasküler organoidlerin morfolojisini gösteren temsili parlak alan görüntüleri. Ölçek çubukları = 200 µm (D0), 50 µm (D5), 200 µm (D10) ve 200 µm (D15). (B) Üç bağımsız grup üzerinden 0. Gündeki agregat çapının nicel değerlendirmesi. Grup başına ve koşul başına otuz agregat ölçülmüş ve sonuçlar grup düzeyi ortalamasını elde etmek için ortalamaya alınmıştır. (C) Üç bağımsız grup üzerinden 15. Gündeki organoid çapının nicel değerlendirmesi. Grup başına ve koşul başına otuz organoid ölçülmüş ve ölçümler grup düzeyi ortalamasını elde etmek için ortalamaya alınmıştır. (D) Üç bağımsız grup üzerinden orijinal ve optimize edilmiş protokoller kullanılarak üretilen organoidlerde CD31-pozitif vasküler alanın nicel değerlendirmesi. (E) Üç bağımsız grup üzerinden PDGFR-β-pozitif perisit kapsamının nicel değerlendirmesi. (F) Üç bağımsız grup üzerinden AngioTool kullanılarak vasküler dallanma indeksinin nicel değerlendirmesi. (G) Üç bağımsız grup üzerinden, başlangıçtaki agregatların 15. Güne kadar olgun vasküler organoidlere dönüşme yüzdesi olarak hesaplanan organoid oluşum verimliliği. Veriler, üç bağımsız grup düzeyi ortalamasının ortalama ± SD değeri olarak sunulmuştur (koşul başına n = 3 bağımsız grup). İstatistiksel anlamlılık, grup düzeyi ortalamaları üzerinde eşleştirilmemiş çift kuyruklu Student t-testi kullanılarak belirlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tablo 1: Orijinal Wimmer protokolü ve optimize edilmiş protokol kullanılarak vasküler organoid üretiminin nicel karşılaştırması. 0. gündeki agregat çapı ve boyut değişkenliğinin, 15. gündeki organoid çapı ve boyut değişkenliğinin, organoid veriminin, organoid oluşum verimliliğinin, CD31-pozitif vasküler alanın, PDGFR-β-pozitif perisit kapsamının, vasküler dallanma indeksinin, başarısızlık oranının ve partiler arası değişkenliğin karşılaştırılması. Değerler, uygun olan yerlerde ortalama ± SD olarak sunulmuştur. Agregat ve organoid ölçümleri, koşul başına üç bağımsız parti üzerinden parti başına 30 yapıdan elde edilmiştir. Vasküler alan, perisit kapsamı ve dallanma ölçümleri, üç bağımsız parti üzerinden parti başına en az üç organoid veya alandan elde edilmiştir. Kısaltmalar: CV = varyasyon katsayısı; SD = standart sapma. Bu tabloyu indirmek için lütfen buraya tıklayınız.
Tablo 2: hiPSC bakımı ve vasküler organoid diferansiyasyonu için besiyeri ve matriks çözeltilerinin hazırlanması. hiPSC bakımı, diferansiyasyonu, vasküler ağ oluşumu ve organoid kültürü için kullanılan kimyasal olarak tanımlanmış hPSC bakım besiyerinin (PGM1), bazal membran matriks kaplama çözeltisinin, %0,02 EDTA pasaj yıkama çözeltisinin, N2B27 bazal besiyerinin, N2B27 tam diferansiyasyon besiyerinin ve kollajen I çözeltisinin bileşimi ve hazırlanışı. Uygun olan yerlerde saklama koşulları ve hazırlama gereksinimleri verilmiştir. Kısaltmalar: DMEM = Dulbecco's modified Eagle medium; EDTA = etilendiamintetraasetik asit; FBS = fetal sığır serumu; FGF-2 = fibroblast büyüme faktörü 2; hiPSC = insan indüklenmiş pluripotent kök hücresi; NEAA = temel olmayan amino asitler; PGM1 = Pluripotency Growth Master 1; VEGF-A = vasküler endotelyal büyüme faktörü A. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 3: Vasküler organoidlerin bütün boyama (whole-mount) immünofloresan boyaması için bloklama tamponu hazırlığı. Bütün boyama immünofloresan boyaması için kullanılan bloklama ve permeabilizasyon tamponunun bileşimi ve saklama koşulları. Kısaltmalar: BSA = sığır serum albümini; FBS = fetal sığır serumu; PBS = fosfat tamponlu salin. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tablo 4: Kantitatif gerçek zamanlı PCR analizi için kullanılan primer dizileri. Vasküler soy belirteçleri CD31, CDH5 ve PDGFR-β; plüripotens belirteçleri OCT4, SOX2 ve NANOG; ve housekeeping geni GAPDH'nin ekspresyonunu değerlendirmek için ileri ve geri primer dizileri kullanılmıştır. Primer dizileri 5'→3' yönünde sunulmuştur. Kısaltmalar: qPCR = kantitatif gerçek zamanlı PCR. Lütfen bu Tabloyu indirmek için buraya tıklayın.
Ek Tablo 1: Vasküler organoid üretimi ve karakterizasyonunda kullanılan temel reaktiflerin çalışma konsantrasyonları ve hazırlama koşulları. Y-27632, CHIR99021, BMP-4, VEGF-A, forskolin, FGF-2, PVA, primer ve sekonder antikor dilüentleri, Hoechst çalışma çözeltisi, PBST yıkama çözeltisi ve %4 PFA tespit çözeltisi için çalışma konsantrasyonları, seyreltmeler ve hazırlama veya saklama koşulları. Bu reaktifler; hiPSC geri kazanımı ve agregasyonu, mezoderm ve vasküler hat indüksiyonu, vasküler ağ oluşumu, tüm montajlı immünofloresan boyama ve organoid tespiti sırasında kullanılır. Kısaltmalar: BMP-4 = kemik morfogenetik protein 4; FGF-2 = fibroblast büyüme faktörü 2; PFA = paraformaldehit; PVA = polivinil alkol; PBST = Tween 20 içeren fosfat tamponlu salin; VEGF-A = va Bu tabloyu indirmek için lütfen buraya tıklayın.
Tartışma
Burada açıklanan optimize edilmiş protokol, vasküler organoid üretiminin homojenliğini, tekrarlanabilirliğini ve yapısal bütünlüğünü artırmak amacıyla, başlangıçta Wimmer ve arkadaşları tarafından18 kurulan vasküler organoid diferansiyasyon sistemine birkaç temel iyileştirme getirmektedir. Orijinal protokolle karşılaştırıldığında, optimize edilmiş yöntem aşağıdaki yönlerde önemli iyileştirmeler sağlamaktadır. İlk olarak, agregat oluşum koşullarının optimize edilmesi, embriyoid gövdelerin homojenliğini önemli ölçüde artırır. Orijinal protokol, hiPSC agregatları oluşturmak için düşük tutunmalı 6 kuyucuklu plakalarda doğal agregasyonu kullanmış; NC8 hattı için kuyucuk başına 2 × 10⁵ hücre veya H9 hattı için kuyucuk başına 5 × 10⁵ hücre ekmiş ve hücre agregasyonunu sağlamak için yerçekimine güvenmiştir. Bu yaklaşım, ekim yoğunluğu ve inkübasyon süresinin ampirik kontrolüne büyük ölçüde bağımlıdır ve bu durum agregat boyutunda lotlar arası değişkenliğe yol açar. Optimize edilmiş protokolde, agregasyon için düşük tutunmalı 6 kuyucuklu plakalar korunurken, agregat tekdüzeliğini artırmak için üç modifikasyon getirilmiştir: (1) stabil agregasyon için yeterli hücre sayısı sağlamak amacıyla kuyucuk başına 5 × 10⁵ hücre ekilmesi; (2) spesifik olmayan hücre-substrat yapışmasını azaltmak ve homotipik hücre-hücre agregasyonunu teşvik etmek için %0,25 polivinil alkol (PVA) eklenmesi; ve (3) sürekli hafif ajitasyon yoluyla düzenli hücre dağılımını ve senkronize agregasyonu kolaylaştırmak için plakaların 37 °C'de orbital çalkalayıcıda inkübe edilmesi. Bu modifikasyonlar, daha düzenli küresel morfolojiye ve daha pürüzsüz sınırlara sahip agregatların üretimiyle ilişkilendirilmiş olup, sonraki mezoderm indüksiyonu ve vasküler diferansiyasyon için daha homojen başlangıç materyali sağlamıştır (Şekil 2A,B).
Eğer agregatlar aşırı derecede küçük veya kırılgansa ya da düzgün kenarlar geliştiremiyorsa, hücre sağlığının bozulması yetersiz agregasyonun yaygın bir nedeni olduğundan, önce ekim öncesi hücre canlılığını doğrulayın. Agregasyon kapasitesi düşük olan hiPSC hatları için, ekim yoğunluğunu kuyuk başına 1 × 10⁶ hücreye çıkarın veya inkübasyon süresini 1 günden 2–3 güne uzatın. Aksine, aşırı büyük agregatlar genellikle birden fazla agregatın birleşmesi sonucu oluşur. Agregat birleşmesini minimize etmek için inkübasyon süresince nazik pipetleme sıklığını artırın. Bu başlangıç aşamasında tekdüze bir agregat boyutunun korunması kritiktir; çünkü boyut heterojenliği, vasküler farklılaşma verimliliğindeki değişkenlikle doğrudan ilişkilidir.
İkinci olarak, besiyeri değişim stratejisinin optimizasyonu, vasküler diferansiyasyon sırasında kültür ortamının daha iyi korunmasını sağlar. Vasküler ağ oluşum aşamasında, protokol her besiyeri değişiminde kondisyonlu besiyerinin üçte birini tutar ve kalan üçte ikisini aynı takviyeleri içeren taze N2B27 tam diferansiyasyon besiyeri ile değiştirir. Buna karşılık, orijinal protokolde besiyerinin tamamen değiştirilmesi uygulanmaktaydı. VEGF-A ve FGF-2, 37 °C'deki kültür koşullarında stabil olmadıklarından, besiyerinin tamamen değiştirilmesi büyüme faktörü konsantrasyonlarında önemli dalgalanmalara neden olabilir ve potansiyel olarak sürekli endotel hücre proliferasyonunu ve vasküler filizlenmeyi tehlikeye atabilir. Kondisyonlu besiyerinin bir kısmının tutulması, kültür ortamındaki ani değişimleri minimize ederken hücre tarafından salgılanan pro-anjiyojenik faktörleri ve hücre dışı bileşenleri korur. Bu strateji, daha güçlü vasküler ağ oluşumu ve daha yüksek perisit kapsamı ile ilişkilendirilmiştir (Şekil 2D,E).
Besiyeri eklemesi sonrası jel matrisi stabil hale gelmezse veya çökerse, öncelikle besiyerinin 37 °C'ye tamamen ön ısıtma yapıldığını onaylayın; çünkü soğuk besiyeri jel büzülmesine neden olabilir. Ayrıca, kolajen I çözeltisinin pH'ının yaklaşık 7,4 olduğunu ve kullanılan kolajen I ile bazal membran matrisi lotlarının stabil jeller oluşturduğunu doğrulayarak kolajen polimerizasyonunu kontrol edin. Matris kırılgan kalmaya devam ederse veya katılaşmazsa, yeni bir bazal membran matrisi veya kolajen I lotu kullanın ve besiyeri eklemeden önce jeli 37 °C'de tam 2 h boyunca inkübe edin. Gerektiğinde polimerizasyon süresini 3 h'a kadar uzatın.
Üçüncü olarak, vasküler organoid izolasyonu ve olgunlaştırma süreçlerinin basitleştirilmesi, verimliliği ve tutarlılığı artırır. Orijinal protokolde, 12 kuyucuklu plakalarda 10. Güne kadar büyütülen vasküler ağlar, 1 günlük kültür için (11. Gün) tek tek 6 kuyucuklu düşük yapışma özellikli plakalara aktarılmış, ardından 15. Güne kadar kültüre devam etmek üzere 96 kuyucuklu ultra düşük yapışma özellikli plakalara taşınmıştır. Bu iki plaka aktarma adımı, operasyonel karmaşıklığı ve organoid kaybı riskini artırmaktadır. Optimize edilen protokol üç önemli basitleştirme getirmektedir: (1) izole edilen organoidlerin, her kuyucuğa bir adet gelecek şekilde doğrudan 96 kuyucuklu ultra düşük yapışma özellikli plakalara aktarılması; böylece ara 6 kuyucuklu kültür adımının ortadan kaldırılması, elle taşıma ve mekanik hasarın azaltılması; (2) süspansiyon kültürü sırasında füzyonu önlemek ve her bir organoidin bağımsızlığını korumak için her kuyucukta tek bir organoid kültüre edilmesi; ve (3) organoidlerin yuvarlak, tamamen kapsüllenmiş yapılara dönüşerek olgunlaşmasını sağlamak amacıyla, besin ve büyüme faktörlerinin sürekli tedarikini sağlamak için 5 gün boyunca günlük besiyeri değişimlerinin yapılması. Bu modifikasyonlar organoid kültürünü basitleştirmekte, verimliliği artırmakta ve sonraki yüksek kapasiteli ilaç tarama uygulamalarını kolaylaştırmaktadır.
İzolasyon sırasında organoid kaybını minimize etmek için, kesme işleminden önce kollajen I-bazal membran matrisinin kuyucuk tabanından tamamen ayrıldığından emin olun. Tüm jel serbestçe yüzene kadar, steril bir spatulayı kuyucuğun tabanında kenardan merkeze doğru nazikçe hareket ettirin. İzole edilen organoidleri aktarırken, mekanik stresi azaltmak ve organoidlerin parçalanmasını minimize etmek için P1000 pipet ucu yerine steril tek kullanımlık bir pipet kullanın. İşleme sırasında organoidler parçalanırsa, başlangıç hücre canlılığı ve VEGF-A ile FGF-2 gibi temel büyüme faktörlerinin aktivitesi dahil olmak üzere diferansiyasyon kalitesini yeniden değerlendirin. Süspansiyon kültüründe organoidler birleşirse, iki adet P200 pipet ucu kullanarak onları nazikçe ayırın. Bununla birlikte, olgunlaşma aşamasının başlangıcından itibaren her kuyucukta bir adet olacak şekilde tekil organoidlerin kültürü, birleşmeyi önlemek için en etkili yaklaşımdır.
Dördüncü olarak, kültür ortamı sisteminin birleştirilmesi protokolü sadeleştirir ve lotlar arası varyasyonu azaltır. Orijinal protokol; CHIR99021 ve BMP-4 ile mezoderm indüksiyonu sırasında ve VEGF-A ve forskolin ile vasküler soy indüksiyonu sırasında N2B27 ortamını kullanmış, ancak vasküler ağ oluşumu sırasında FBS, VEGF-A ve FGF-2 içeren serumsuz hematopoetik hücre kültür ortamına geçiş yapmıştır. Buna karşılık, optimize edilmiş protokol; vasküler ağ oluşumu ve ardından gelen organoid olgunlaşması boyunca %15 FBS, VEGF-A ve FGF-2 ile desteklenmiş N2B27 tam diferansiyasyon ortamını kullanarak aynı N2B27 bazal formülasyonunu korur. Bu birleştirilmiş strateji, kültür ortamı değişimine bağlı ek değişkenleri azaltır ve reaktif hazırlığını sadeleştirir. N2B27 ortamındaki tanımlanmış B27 ve N2 desteklerinin kullanımı, lotlar arası tutarlılığın artmasına da katkıda bulunmuş olabilir; ancak bu modifikasyonun, diğer protokol değişikliklerinden bağımsız olarak nispi katkısı mevcut çalışmada deneysel olarak ayrıştırılmamıştır. Optimize edilmiş protokolün etkinliği, 15. gün organoidlerinde vasküler soy belirteçlerinin yukarı regülasyonu ve pluripotens belirteçlerinin aşağı regülasyonu ile desteklenmiştir (Şekil 1D). Ayrıca, bütün boyama immunofloresan boyama, yaygın CD31+ endotel ağlarını ve bunlarla yakından ilişkili PDGFR-β+ perisitleri ortaya koyarak, mural hücre örtüsüne sahip vasküler yapıların oluşumunu doğrulamıştır (Şekil 1C,E). PDGFR-β, önceki çalışmalarda gösterildiği üzere, insan vasküler organoidlerinde perisitlerin iyi tanımlanmış bir belirtecidir21.
Vasküler tomurcuklanma zayıfsa veya endotelyal ağlar oluşmadan büyük, diferansiye olmamış agregatlar meydana geliyorsa, bunun altında yatan neden yetersiz mezoderm indüksiyonu olabilir. CHIR99021 ve BMP-4'ün aktif olduğunu ve doğru konsantrasyonlarda kullanıldığını doğrulayın. CD31+ endotelyal tüpleri çevreleyen seyrek PDGFR-β+ hücreler ile belirtilen zayıf perisit katılımı, VEGF-A veya FGF-2'nin suboptimal aktivitesini yansıtabilir. Farklı büyüme faktörü partilerinin test edilmesi ve FBS partilerinin vasküler organoid oluşumunu destekleme yeteneklerinin fonksiyonel olarak doğrulanması, mural hücre kapsayıcılığını artırabilir. Yukarıda açıklanan dört metodolojik iyileştirmenin etkinliğini sistematik olarak doğrulamak için, optimize edilmiş protokol ile orijinal Wimmer protokolü karşılaştırılarak kantitatif morfometrik analizler gerçekleştirilmiştir (Şekil 2; Tablo 1). Bright-field mikroskopisi, diferansiyasyon boyunca iki protokol arasında belirgin morfolojik farklar olduğunu ortaya koymuştur. Orijinal protokol tüm aşamalarda heterojen boyutlarda ve düzensiz şekillerde agregatlar ile organoidler üretirken, optimize edilmiş protokol 0. Günden itibaren sürekli olarak düzgün sınırlara sahip tek tip agregatlar üretmiştir. Bu agregatlar daha sonra, 15. Güne kadar daha yuvarlak ve tek tip boyutlarda olgun vasküler organoidlere gelişmiştir (Şekil 2A).
Kantitatif analiz, optimize edilmiş protokolün 0. Günde, orijinal protokole kıyasla (112.2 ± 34.7 µm, CV = 30.93%, n = 3 bağımsız grup) önemli ölçüde daha tekdüze agregatlar (120.3 ± 5.4 µm, CV = 4.47%, n = 3 bağımsız grup) oluşturduğunu doğrulamıştır (Şekil 2B). Tekdüzelikteki bu iyileşme diferansiyasyon son noktasına kadar korunmuştur; nitekim optimize edilmiş protokol kullanılarak üretilen 15. Gün organoidleri de önemli ölçüde azalmış boyut değişkenliği sergilemiştir (Şekil 2C). Bu bulgular, PVA destekli agregasyonun orbital çalkalama ile birleştirilmesinin, orijinal protokole kıyasla agregat boyut heterojenliğini azalttığını ve sonraki mezoderm indüksiyonu ile vasküler diferansiyasyon için daha homojen bir başlangıç materyali sağladığını göstermektedir. Bununla birlikte, optimize edilmiş protokol birden fazla eşzamanlı modifikasyon içerdiğinden, gözlemlenen iyileşmelere her bir bireysel değişikliğin spesifik katkısı mevcut çalışmada deneysel olarak ayrıştırılmamıştır.
Optimize edilen protokol, CD31+ endotel kapsama oranını (%40,1 ± 2,9'a karşı %28,0 ± 7,0; t = 2,856, df = 4, p = 0,05; Şekil 2D) ve PDGFR-β+ perisit kapsama oranını (%36,2 ± 2,5'e karşı %17,5 ± 5,2; t = 6,636, df = 4, p = 0,003; Şekil 2E) artırarak vasküler ağ oluşumunu da önemli ölçüde iyileştirmiştir. AngioTool kullanılarak yapılan dallanma indeksi analizi, optimize edilen protokolün daha karmaşık vasküler ağlar oluşturduğunu daha net göstermiştir (50,2 ± 3,8'e karşı 24,1 ± 6,9 points/mm2; t = 6,163, df = 4, p = 0,004; Şekil 2F). Bu iyileştirmeler iki tamamlayıcı faktörden kaynaklanıyor olabilir. Birincisi, homojen agregatlar vasküler tomurcuklanma için daha tutarlı başlangıç koşulları sağlar. İkincisi, kondisyonlu medyumun üçte birinin tutulması, eklenen pro-anjiyojenik faktörlerin korunmasına yardımcı olurken, perisit göçünü ve endotel tüplerle ilişkilenmeyi destekleyebilecek hücre salgılı faktörlerin de korunmasını sağlayabilir.
Sonuç olarak, optimize edilen protokol yaklaşık 1,6 kat daha yüksek bir organoid oluşum verimliliği (64,3 ± %3,8'e karşı 41,3 ± 10.8%; Lütfen çevrilecek metni sağlayın. = 3.433, Lütfen çevirmemi istediğiniz metni sağlayın. = 4, p = 0,03), 1 başına 60–67 olgun organoid'e karşılık gelmektedir × 106 başlangıç hücreleri, orijinal protokol kullanılarak elde edilen 29–50 organoid ile karşılaştırıldığında (Şekil 2GÖzellikle, optimize edilmiş protokol grup間 değişkenliğini önemli ölçüde azaltmış olup, grup ortalamaları %60,0 ile %67,0 arasında (SD = %3,8) değişirken; orijinal protokol, grup ortalamalarının %29,0 ile %50,0 arasında değiştiği (SD = %10,8) belirgin şekilde daha yüksek bir grup間 değişkenlik sergilemiştir.
Şekil 2 ve Tablo 1'de sunulan nicel veriler toplu olarak; optimize edilmiş protokol ile agregat homojenliği, vasküler ağ oluşumu, perisit katılımı, vasküler karmaşıklık ve organoid veriminde elde edilen sistematik iyileştirmeleri desteklemektedir. Bu iyileştirmeler, orijinal protokole ilişkin tekrarlanabilirlik ve ölçeklenebilirlikle ilgili temel kısıtlamaları doğrudan gidermektedir.
Özetle, mevcut optimize edilmiş protokol, dört temel iyileştirme aracılığıyla orijinal yöntemin temel kısıtlamalarını gidermektedir: agregat oluşumunun optimizasyonu, besiyeri değişim stratejisinin modifikasyonu, organoid izolasyonu ve olgunlaştırma iş akışının sadeleştirilmesi ve kültür besiyeri sisteminin birleştirilmesi. Bu modifikasyonlar birlikte, vasküler organoid üretimini daha verimli, tekrarlanabilir ve ölçeklenebilir hale getirerek vasküler gelişim çalışmaları, hastalık modelleme ve ilaç taramaları için daha güvenilir bir in vitro platform sağlamaktadır. Bununla birlikte, orijinal yöntemde olduğu gibi, mevcut protokol bazal membran matriksi ve FBS dahil olmak üzere hayvan kaynaklı bileşenlere dayanmaya devam etmektedir. Bu nedenle, gelecekteki çalışmalar, bu platformun translasyonel potansiyelini daha da artırmak için kimyasal olarak tanımlanmış sentetik matrikslerin ve serumsuz kültür sistemlerinin geliştirilmesine odaklanabilir.
Optimize edilmiş protokolün; PVA takviyesi, orbital çalkalama, kondisyonlu ortam tutulumu, kolaylaştırılmış bir olgunlaşma iş akışı ve birleştirilmiş bir kültür ortamı sistemi gibi birden fazla eş zamanlı modifikasyon içerdiğini ve mevcut verilerin, agregat homojenliği, endotel kapsama, perisit kapsama veya organoid veriminde gözlemlenen iyileşmelerden hangi bireysel modifikasyonun sorumlu olduğunu belirlemediğini belirtmek önemlidir. Mevcut çalışma, her bir bireysel bileşenin katkısını ayrı ayrı incelemek yerine, bu optimizasyonların eksiksiz bir protokol olarak kümülatif etkisini değerlendirmek üzere tasarlanmıştır. Her bir modifikasyonun spesifik rolünü belirlemek ve protokolü daha da geliştirmek için gelecekte faktöriyel veya ablasyon deneyleri gerekecektir.
Bu sınırlamalara rağmen, mevcut protokol vasküler organoid üretimi için pratik vele tekrarlanabilir bir temel teşkil etmektedir. Vasküler organoid alanındaki gelişmekte olan çeşitli yönler, protokolün daha da iyileştirilmesi ve uygulama alanının genişletilmesi için fırsatlar sunmaktadır. Sentetik ve hayvan kaynaklı olmayan hidrojellerdeki son gelişmeler, bazal membran matrisi ve kolajen I'e gelecek vaat eden alternatifler sağlamıştır; dinamik hidrojellerin anjiyogenezi artırdığı ve vasküler organoidlerin arteriyollere doğru farklılaşmasını yönlendirdiği gösterilmiştir22. Hücresel bütünlüğü korurken tekrarlanabilirliği ve otomasyonla uyumluluğu artırmak için tek katmanlı "sitting drop" (oturan damla) kültürlerine dayalı, hayvan kaynaklı olmayan güçlü bir yöntem de geliştirilmiştir23. Tek hücreli multi-omik çalışmalar, insan kan damarı organoid gelişimindeki hücresel heterojenliğin daha önce görülmemiş bir çözünürlükte incelenmesini sağlamış; farklılaşma protokollerinin hedeflenmiş optimizasyonuna rehberlik edebilecek temel hücre kaderi ve durum geçişlerini ortaya çıkarmıştır24. Mikroakışkan platformların entegrasyonu, perfüze edilebilir kılcal ağlara sahip fonksiyonel vaskülarize çip üstü organoidlerin geliştirilmesine olanak tanıyarak, intravasküler perfüzyon yoluyla organoid büyümesini, olgunlaşmasını ve fonksiyonunu artırmıştır25. Ayrıca, özelleşmiş vasküler çip üstü organoid sistemleri, rejeneratif tıp ve rekonstrüktif cerrahideki potansiyel uygulamalarıyla ilaç taraması ve hastalık modellemesi için gelecek vaat eden platformlar olarak ortaya çıkmaktadır26. Burada sunulan optimize edilmiş farklılaşma protokolü ile birlikte, bu tamamlayıcı yaklaşımlar, vasküler organoidlerin hastalık modellemesi ve terapötik taramadaki translasyonel uygulamasını hızlandırabilir.
Mevcut protokol tek bir iPSC hattı kullanılarak valide edilmiş olsa da, farklılaşma yaklaşımının sağlamlığı, birden fazla bağımsız batch üzerinden elde edilen tutarlı sonuçlarla desteklenmektedir. Buna rağmen, yöntemin genelleştirilebilirliğini daha ileri düzeyde belirlemek için ek iPSC ve ESC hatları üzerinden değerlendirmeler yapılması gerekecektir. Optimize edilmiş koşullar, özellikle PVA takviyesi, orbital çalkalama ve kondisyonlu ortamın tutulması; agregasyon tekdüzeliği, kütle transferi ve parakrin destek dahil olmak üzere organoid kültürünün temel yönlerini ele almak üzere tasarlanmıştır ve bu nedenle farklı hücre hattı arka planlarında benzer faydalar sağlayabilir.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Çin Ulusal Doğal Bilimler Vakfı'nın (NSFC) Genç Bilim İnsanları Fonu (C) (No. 32200655) ve Genel Programı (No. 32270847) tarafından desteklenmiştir. Yazarlar ayrıca desteklerinden dolayı Anhui Üniversitesi Kamu Hizmetleri Platformu'na teşekkür ederler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.22 μm Şişe Üstü Filtre | Nalgene | FPE204030 | Besiyerlerinin ve tamponların steril filtrasyonu için |
| 15 mL Konik Tüp | SparkJade | GD0001 | Steril |
| 2 mL'lik Mikrocentrifüj Tüpü | Eppendorf | 22363204 | Steril |
| 2-Merkaptoetanol (1000×) | Gibco | 21985023 | Çeker ocak içinde kullanın |
| Alexa Fluor 488 AffiniPure F2 Fragman Donkey Anti-Rabbit IgG (H+L) | Etiketlendi | Y1104 | Sekonder antikor; 1:300 oranında seyreltin |
| Alexa Fluor 594 AffiniPure F(ab)2′)2 Fragment Donkey Anti-Keçi IgG (H+L) | Etiketli | Y1007 | Sekonder antikor; 1:300 oranında seyreltin |
| Anti-CD31 antikoru | Hücre Sinyalizasyonu | 3528s | Primer antikor; bloklama tamponunda 1:100 oranında seyreltin |
| Anti PDGFR β antikor | Zenbio | 347269 | Birincil antikor; bloklama tamponunda 1:100 oranında seyreltin |
| Otomatik Hücre Sayıcı | Life Technologies | Countess™ II | Sayım odası lamlarını içerir |
| B27 Takviyesi (50×) | Gibco | 17504044 | N2B27 besiyeri için; 4°C'de çözdürünºC, alikotlara ayırın ve şurada saklayın −20ºC, dondurma-çözme döngülerinden kaçının |
| Masaüstü Santrifüj | Zonkia | SC-3610 | Sallanan kovalı rotor ile |
| Biyogüvenlik Kabini (Sınıf II) | Thermo Fisher | NA | YOK |
| BMP4 | Proteintech | HZ-1045 | Steril ddH₂O ile yeniden çözünme yapın20 ila 100 ng/μL, aliquotlayın ve şurada saklayın −20 °C |
| Sığır Serum Albumini (BSA) | Biosharp | 9048-46-8 | Bloklama tamponu için |
| CHIR99021 | MCE | HY-10182 | DMSO içinde 10 mM'lık stok hazırlayın, şu sıcaklıkta saklayın: −20º1 yıla kadar °C'de |
| CO2 İnkübatör | Fisher Scientific | LS-CO150 | 37 ºC, %5 CO22nemlendirilmiş |
| Konfokal Görüntüleme Kabı | Biosharp | BS-20-GJM | Boyama sonrası görüntüleme için |
| Konfokal Mikroskop | LEICA | Metin bulunamadı. Lütfen çevrilmesini istediğiniz kaynağı sağlayın. | 10 adet ile donatılmış×, 20×, 63× objektifler ve ZEN yazılımı |
| DMEM | Vivacell | C3113-0500 | Matrigel seyreltme ve kolajen I çözeltisi için |
| DMEM/F-12, GlutaMAX Takviyesi | Gibco | 10565018 | Matrigel seyreltme ve N2B27 ortamı için |
| EDTA (0,5 M, pH 8,0) | Invitrogen | AM9260G | Pasajlama için PBS ile %0,02'ye seyreltin |
| Fetal Bovine Serum (FBS) (Fetal Sığır Serumu) | Gibco | 10270-106 | N2B27 tam diferansiyasyon medyumu için (%15 final konsantrasyonu) |
| FGF-2 | Novoprotein | C046 | Steril PBS içinde 1 mg/mL'lik stok hazırlayın, aliquota ayırın ve şu sıcaklıkta saklayın: −20ºC |
| Forskolin | R&D Sistemleri | 1099 | DMSO içinde 10 mM'lık stok hazırlayın, şurada saklayın −20ºC |
| HEPES (1M) | Gibco | 15630080 | Kolajen I çözeltisi için |
| Hoechst | Beyotime | C1071S-4 | Deiyonize su içerisinde 1 mg/mL'lik stok hazırla, alikotlara ayır ve şu sıcaklıkta sakla: −20ºC |
| Ters Mikroskop | LEICA | DMIL LED | Rutin hücre gözlemi |
| Matrigel (büyüme faktörü azaltılmış) | STEEMA | BM05 | Saklama koşulu: −20ºaliquot yaptıktan sonra dondur-çöz döngülerinden kaçının; buz üzerinde işlem yapın |
| MEM Temel Olmayan Amino Asit Çözeltisi (NEAA, 100×) | Gibco | 11140035 | N2B27 besiyeri için |
| N2 Takviyesi (100×) | Gibco | 17502048 | N2B27 besiyeri için; şurda saklayın: −20ºışık korumalı C |
| Neurobasal Besiyeri | Gibco | 21103049 | N2B27 besiyeri için |
| Nükleaz İçermeyen Su (DNaz/RNaz İçermeyen) | Etiketlendi | Doo55WJ | RNA/cDNA hazırlama ve qPCR için |
| Orbital Çalkalayıcı | Joan Laboratuvarı | NA | Yıkama adımları için |
| Paraformaldehit (%4'lük çözelti) | Servicebio | G1101 | Fiksasyon için %4'e kadar PBS ile seyrelitin; çeker ocakta kullanın |
| Penisilin-Streptomisin (100×) | Gibco | 15140122 | N2B27 besiyeri için |
| PGM1 Besiyeri | Hücre Terapi | A1517001 | hiPSC genişletme medyumu; 4°C'de saklayınºışığa karşı korunduğunda 2 hafta boyunca stabildir |
| PGM1 Takviyesi (25×) | Cellapy | A1517101 | PGM1 Bazal Besiyeri ile kullanım içindir |
| Polivinil Alkol (PVA) | Sigma-Aldrich | P8136 | Agregasyonu teşvik etmek için %0,25 (a/h) konsantrasyonunda PGM1 içinde çözün |
| PureCol (Bovin Tip I Kolajen, 3 mg/mL) | İleri Biyomatris | 5005 | Kolajen I-Matrigel karışımı için; polimerizasyon kapasitesine yönelik test grubu |
| qPCR Termal Döngüleyici | Thermo Fisher | StepOnePlus™ | Erime eğrisi kapasiteli; gerçek zamanlı PCR tespiti için |
| Ters Transkripsiyon Kiti | Doğru Biyoloji | AG11706 | Toplam RNA'dan cDNA sentezi için; ters transkriptaz, tampon çözelti, dNTP'ler ve rastgele primerler içeren RT master mix içerir |
| RNA Ekstraksiyon Kiti | Yeasen | Lütfen çevrilecek metni sağlayın. | Vasküler organoidlerden toplam RNA izolasyonu için; gDNA eliminasyon kolonları ve RNazdan arındırılmış DNase I içerir |
| Sodyum Bikarbonat (%7,5) | Gibco | 25080094 | Kolajen I çözeltisi için |
| Sodyum Dekoksikolat | Sigma-Aldrich | D6750 | Bloklama tamponu için deiyonize su içerisinde %1 (w/v) çözelti hazırlayın |
| Sodyum Hidroksit (1,0 N) | Sigma-Aldrich | S2770 | Kolajen I solüsyonunun pH ayarı için |
| Steril Tek Kullanımlık Pipetler (10 mL) | Bkmamlab | 110205007 | Tekli paketlenmiş, steril |
| Steril Filtreli Pipet Uçları (1000, 200, 20 μL) | Biozym | VT0270/VT0250/VT0220 | Steril, filtreli |
| Steril İğne (30 G) | Söz konusu metin sağlanmamıştır. Lütfen çevrilmesini istediğiniz kaynak metni giriniz. | NA | Vasküler ağların diseksiyonu için |
| Steril Spatula (Yuvarlak Uçlu) | Fisher Scientific | 21-401-5 | Paslanmaz çelik |
| SYBR Green Master Mix | Doğru Biyoloji | AG11733 | 2× qPCR için konsantrasyon; hot-start DNA polimeraz, tampon, dNTP'ler ve SYBR Green boyası içerir |
| Doku Kültürü ile İşlem Görmüş 12 Kuyucuklu Plaka | BD Falcon | 353043 | Jel gömme ve vasküler ağ kültürü için |
| Doku Kültürü ile İşlemlemiş 6 Kuyucuklu Plaka | Eppendorf | 30720113 | Standart TC uygulanmış |
| Triton X-100 | Sigma-Aldrich | T9084 | Bloklama tamponu için |
| Tripan Mavisi (%0,4) | Thermo Fisher | 15250061 | Hücre sayımı için |
| Tween 20 | Sigma-Aldrich | P7949 | %0,05'lik PBS-T yıkama solüsyonu için |
| Ultra Düşük Yapışmalı 6 Kuyucuklu Plaka | Corning | 3471 | Agrega oluşumu ve diferansiyasyon için |
| Ultra-Düşük Bağlanma Özellikli Yuvarlak Tabanlı 96 Kuyucuklu Plaka | Beyotime | FULA962-6adet | Vasküler organoidlerin süspansiyon kültürü için |
| VEGF-A | Proteintech | HZ-1038 | Steril PBS içerisinde 1 mg/mL'lik stok hazırlayın, alikotlayın ve şu sıcaklıkta saklayın: −20ºC |
| Benmari Cihazı | Mavi leopar | HWS-24 | 37ºC |
| Y-27632 | MCE | HY-10071 | Steril PBS veya DMSO içinde 10 mM stok hazırlayın, şu sıcaklıkta saklayın: −20ºC; çalışma konsantrasyonları: 5 μM (çözdürme), 50 μM (agregat oluşumu) |
Kaynaklar
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.