Bu protokol, ağır metal direnci ve sekestrasyonu ile ilişkili genlerin kromozomal entegrasyonu için tasarlanmış, marker içermeyen, çok genli rekombinant bir Escherichia coli suşunun oluşturulmasını ve moleküler değerlendirmesini tanımlamaktadır.
Yöntem makalesi
Escherichia coli'de Ağır Metal Biyoremediyasyon Geliştirme Amacıyla Çoklu Gen Kasetinin Markörsüz Kromozomal İntegrasyonu
Bu makalede
Özet
Özet
Ağır metal kontaminasyonu; metal kirleticilerin kalıcılığı, toksisitesi ve biyoakümülasyonu nedeniyle önemli bir çevresel sorun olmaya devam etmektedir. Genetik olarak modifiye edilmiş bakteriler, ağır metal remediasyonu için potansiyel bir yaklaşım sunar; ancak plazmid tabanlı ekspresyon sistemleri, plazmid korunumu ve antibiyotik seçimi ile ilişkili kısıtlamalar ortaya çıkarabilir. Bu çalışma, ağır metal direnci ve sekestrasyonu ile ilişkili genlerin kromozomal entegrasyonu için tasarlanmış, markörsüz, çok genli rekombinant bir E. coli suşu oluşturmaya yönelik bir protokol tanımlamaktadır. Konstitütif piruvat dehidrogenaz (Ppdh) promotörünün kontrolü altında; cadD, cadA ve metallotiyonein (mt) genlerini, bir lipoprotein dış membran proteini A (Lpp-OmpA) yüzey sergileme sistemini ve bir yeşil floresan protein (gfp) reporter genini içeren 4.741 bp'lik çok genli bir kaset tasarlanmış ve sentezlenmiştir. Konstrükt, pKIKOArsBKm entegrasyon vektörüne klonlanmış ve lambda (λ) Red aracılı rekombinasyon kullanılarak E. coli MG1655'e aktarılmıştır. Kanamisin direnç kaseti daha sonra flippaz–flippaz tanıma hedefi (FLP-FRT) rekombinasyon sistemi kullanılarak çıkarılmıştır. Konstrükt montajı ve kromozomal entegrasyon; restriksiyon enzim analizi, plazmid izolasyonu ve polimeraz zincir reaksiyonu (PCR) amplifikasyonu ile değerlendirilmiş, antibiyotik direncinin kaybı ise antibiyotik duyarlılık testi ile analiz edilmiştir. Genomik DNA'dan beklenen cadD, cadA ve mt fragmanlarının amplifikasyonu ve saptanabilir plazmid DNA'sının yokluğu, çok genli kasetin kromozomal entegrasyonu ile uyumlu kanıtlar sağlamıştır. Bu protokol, rekombinant suşun oluşturulması ve moleküler olarak değerlendirilmesi için bir çerçeve belirlese de entegrasyon lokusunun kesin onayı, fonksiyonel gen ekspresyonu, uzun süreli genetik stabilite ve ağır metal biyosorpsiyon performansının kesinleştirilmesi için daha fazla deneysel doğrulama gereklidir.
Giriş
Ağır metal kirliliği; metal kirleticilerin kalıcılığı, biyolojik olarak parçalanamaması ve toksisitesi nedeniyle önemli bir çevresel sorun haline gelmiştir. Organik kirleticilerin aksine ağır metaller ekosistemlerde birikir ve biyobirikim ile biyobüyütme yoluyla besin zincirine girerek çevre ve insan sağlığı için ciddi riskler oluşturur. Kimyasal çöktürme, iyon değişimi ve membran filtrasyonu dahil olmak üzere geleneksel iyileştirme teknolojileri sıklıkla yüksek işletme maliyetleri, düşük metal konsantrasyonlarında sınırlı verimlilik ve ikincil kirleticilerin oluşumu ile ilişkilendirilir. Sonuç olarak, biyolojik iyileştirme stratejileri, ağır metal giderimi için çevresel açıdan sürdürülebilir ve maliyet etkin alternatifler olarak giderek daha fazla ilgi görmektedir1.
Bu biyolojik yaklaşımlar arasında, bakteriyel biyosorpsiyon, ağır metal giderimi için gelecek vadeden bir teknoloji olarak ortaya çıkmıştır. Biyosorpsiyon, metal iyonlarının, mikrobiyal hücre yüzeyinde bulunan karboksil, hidroksil, amino ve fosfat grupları gibi fonksiyonel gruplarla metal iyonları arasındaki fizikokimyasal etkileşimler aracılığıyla biyolojik materyaller tarafından pasif olarak alınmasını içerir2. Bu etkileşimler; iyon değişimi, kompleksleşme, koordinasyon ve çökelme mekanizmaları yoluyla metalin uzaklaştırılmasını kolaylaştırır. Yüksek yüzey alanı-hacim oranları, hızlı büyümeleri ve çeşitli hücre yüzeyi kimyaları nedeniyle bakteriler, özellikle etkili biyosorbentlerdir. Bakteriyel biyosorpsiyonun verimliliği; bakteri türü, metal iyon özellikleri, pH, sıcaklık ve yarışan iyonların varlığı dahil olmak üzere birden fazla faktöre bağlıdır3. Pasif adsorpsiyona ek olarak bakteriler; hücre içi sekestrasyon, biyobirikim, biyomineralizasyon ve diğer detoksifikasyon mekanizmaları aracılığıyla ağır metalleri aktif olarak uzaklaştırabilir ve böylece metal giderme kapasitelerini artırabilirler4.
Bakterilerin ağır metal kontamine ortamlarına adaptasyonu; membranla ilişkili eflluks pompaları, metal bağlayan proteinler, enzimatik detoksifikasyon sistemleri ve hücre içi metal homeostazını kolektif olarak sağlayan oksidasyon-redüksiyon yolları dahil olmak üzere çeşitli direnç mekanizmaları aracılığıyla gerçekleşir. mer, chr, ars ve cad sistemleri dahil olmak üzere birkaç ağır metal direnç operonu kapsamlı bir şekilde karakterize edilmiştir ve bakteriyel biyosorbentlerin mühendisliği için değerli genetik kaynaklar teşkil eder. mer operonu, toksik Hg2⁺'yi uçucu elementel cıvaya (Hg°) indirgeyerek cıva detoksifikasyonunu sağlar5; buna karşın chr operonu, Cr6⁺'yi daha az toksik olan Cr3⁺'ye indirgeyerek kromat direnci kazandırır 6. Benzer şekilde, ars operonu, arsenatı arsenite indirgeme ve ardından gelen aktif eflluks yoluyla detoksifiye eder7. Staphylococcus aureus RN4220 ve Bacillus megaterium TWSL_4'te tanımlanan cadA geni, kadmiyum iyonlarını sitoplazmadan aktif olarak dışarı atan bir P-tipi ATPase kodlayarak hücre içi toksisiteyi azaltır ve bakteriyel metal direncine katkıda bulunur8,9. Metallotiyoneinler ve fitokelatinler gibi metal bağlayan proteinler, metal iyonlarını sekestre ederek ve bunların temel hücresel bileşenlerle etkileşimini önleyerek ağır metal toleransını daha da artırır10.
Sentetik biyolojideki son gelişmeler, gelişmiş metal bağlama kapasitelerine sahip bakteriyel biyosorbentlerin rasyonel mühendisliğini mümkün kılmıştır. Önceki çalışmalar; Bacillus subtilis ve Pseudomonas putida11 türlerinde metal bağlayan proteinlerin aşırı ekspresyonu yoluyla ağır metal gideriminin iyileştirildiğini, stabiliteyi ve yeniden kullanılabilirliği artırmak için bakteriyel hücrelerin aljinat matrislerine veya biyofilmlere immobilize edildiğini12 ve cıva ile arsenik biyosorpsiyonunu artırmak için E. coli hücrelerine sentetik metal bağlayan peptitlerin aktarıldığını göstermiştir13. Bu gelişmelere rağmen, mühendislik ürünü biyosorbentlerin çoğu, sürekli antibiyotik seçimi gerektiren ve plazmit instabilitesine, segregasyonel kayba, değişken gen kopya sayısına ve artan metabolik yüke duyarlı olan plazmit tabanlı ekspresyon sistemlerine dayanmaktadır. Bu kısıtlamalar, uzun süreli genetik stabilitenin ve biyogüvenliğin kritik olduğu çevresel ve endüstriyel uygulamalar için uygunluklarını azaltmaktadır.
Bu nedenle, bakteriyel biyosorbentlerin stratejik geliştirilmesi; mikrobiyoloji, moleküler biyoloji, sentetik biyoloji ve çevre mühendisliğinin entegre edilmesini gerektirmektedir. Genomik, proteomik ve metabolomik alanındaki ilerlemeler, bakterilerin ağır metal stresine verdiği tepkilere ilişkin anlayışımızı daha da geliştirerek, geliştirilmiş biyosorbentler tasarlamak için yeni genlerin ve düzenleyici yolların tanımlanmasını kolaylaştırmıştır.
Konvansiyonel plazmid tabanlı yaklaşımların aksine, bu çalışma ağır metal direnci ve sekestrasyonu ile ilişkili genleri taşıyan, kromozomal olarak entegre, markörden arındırılmış, çok genli rekombinant bir E. coli suşu oluşturmak için bir mühendislik platformu kurmaktadır. Mühendislik stratejisi; λ Red rekombineering, FLP-FRT aracılı markör eksizyonu, konstitütif bir çok genli kaset ve Lpp-OmpA tabanlı bir yüzey sergileme tasarımını birleştirmektedir. Çok genli kaset; ağır metal direnci ve metal sekestrasyonundaki daha önce raporlanmış rolleri temel alınarak seçilen cadD (619 bp), cadA (2.564 bp) ve metallothionein (mt) (154 bp) genlerini içermektedir. Genler, bireysel ribozom bağlanma bölgeleriyle birlikte konstitütif Ppdh promotörü altında organize edilmiş ve mt geni hedeflenen yüzey lokalizasyonu için Lpp-OmpA'ya füzyonlanmıştır. Konstrukta aşağı akışta bir gfp reporter geni eklenmiştir.
Kaset, çok kopyalı bir plazmid üzerinde sürekli muhafaza edilmek yerine E. coli MG1655'e kromozomal entegrasyon için tasarlanmıştır. Bu strateji, plazmid muhafazasına ve sürekli antibiyotik seleksiyonuna olan bağımlılığı azaltabilecek bir mühendislik çerçevesi oluşturmak için seçilmiştir. Seçilebilir antibiyotik direnç belirtecinin FLP-FRT aracılı eksizyonu iş akışına dahil edilmiş ve ortaya çıkan fenotipi değerlendirmek için antibiyotik duyarlılık testi kullanılmıştır. Mevcut çalışma, konstrüktlerin montajına ve rekombinant suşun moleküler değerlendirmesine odaklanmaktadır. Uzun süreli genetik stabilite, entegre genlerin fonksiyonel ekspresyonu, protein lokalizasyonu, ağır metal giderimi ve çevresel performans değerlendirilmemiştir ve daha fazla deneysel doğrulama gerektirmektedir.
Bu protokol, markör içermeyen, kromozomal olarak entegre çok genli bakteriyel suşlar oluşturmayı amaçlayan moleküler biyoloji, mikrobiyal biyoteknoloji ve sentetik biyoloji araştırmacıları için hazırlanmıştır. Yöntem, doğrudan çevresel uygulamalardan ziyade, gelecekteki ağır metal biyoremediyasyon araştırmaları için tasarlanan rekombinant E. coli suşlarının laboratuvar ölçekli genetik mühendisliği ve moleküler değerlendirmesi için özellikle uygundur.
Protokol
Tüm deneyler, kurumsal laboratuvar biyogüvenlik kılavuzlarına ve genetiği değiştirilmiş mikroorganizmaların kullanımıyla ilgili yürürlükteki düzenlemelere uygun olarak gerçekleştirilmiştir. Bu çalışmada kullanılan tüm materyaller ve yazılımlar Materyaller Tablosu'nda listelenmiştir.
1. Multigen konstrüktün tasarımı ve in silico analizi.
- Ağır metal direnç genlerini seçin.
- Ağır metal direnç genlerini seçin cadD (619 bp), cadA (2.564 bp) ve metalotiyonein (mt; 154 bp), daha önce şuradan tanımlanmış olan Staphylococcus epidermidis TWSL_17, Bacillus megaterium TWSL_4 ve Staphylococcus warneri sırasıyla TWSL_6.
- nükleotit dizilimlerini elde edin cadD, cadAve mt sırasıyla MK900473.1, MK327282.1 ve MK900456.1 erişim numaraları kullanılarak NCBI GenBank veri tabanından.
NOT: Bu genler, kaynak bakteriyel suşların ağır metal toleransı ve giderimi açısından daha önce yapılan karakterizasyonlarına göre seçilmiştir ve biyosorbent konstrüktüne dahil edilen her bir genetik elementin nükleotid dizisi kaynakları Tablo 1'de listelenmiştir.
- Gerçekleştirin in silico seçilen genlerin ve kodlanan proteinlerin analizi.
- ...nükleotid dizilerini içe aktarın cadD, cadAve mt yazılıma (örneğin, SnapGene) aktarın ve kodlayıcı dizileri analiz edin.
- ExPASy çeviri sunucusunu kullanarak nükleotit dizilerini karşılık gelen amino asit dizilerine dönüştürün.
- CadD, CadA ve Mt'nin öngörülen amino asit dizilerini I-TASSER'a gönderin; proteinlerin üç boyutlu yapılarını ve potansiyel ligand bağlanma bölgelerini öngörün.
- Transmembran bölgeleri tahmin etmek için TMHMM Sunucusu'nu kullanarak CadD, CadA ve Mt protein dizilerini analiz edin.
- Hidrofobiklik profillerini ve membrana ilişkili bölgeleri öngörmek için protein dizilerini ExPASy TMPRED sunucusu kullanarak analiz edin.
NOT: Kodlanan proteinlerin öngörülen fonksiyonlarının ve lokalizasyonlarının daha sonra yorumlanabilmesi için; öngörülen ligand-bağlanma kalıntılarını, yapısal parametreleri, transmembran bölgelerini ve hidrofobiklik profillerini kaydedin.
- Çok genli kaseti tasarlayın.
- Konstitütif piruvat dehidrogenaz operon promotörünü (Ppdh) içeren 4.741-bp'lik bir çok genli kaset tasarlayın, cadD, cadA, Lpp-OmpA, mtve gfp raporlayıcı gen
- Seçilen genleri konstitütif Ppdh promotörünün aşağısına yerleştirin ve bir ribozom bağlanma bölgesini (RBS; 5′-AGGAGG-3′) her bir kodlama dizisinin yukarısında.
- Metallothionein dizisini, metallothionein'in bakteriyel dış membrana lokalizasyonu için tasarlanan Lpp-OmpA-Mt komponentini oluşturmak amacıyla Lpp-OmpA dizisiyle birleştirin.
- Dahil etmek gfp konstrükt ekspresyonunun sonraki değerlendirmesi için bir raporlayıcı olarak ağır metalle ilişkili genlerin aşağısına (downstream)
- SnapGene kullanarak, nihai 4.741-bp konstrükttaki genetik elementlerin yönelimini, nükleotid pozisyonlarını ve genel organizasyonunu doğrulayın.
- Çok genli konstrüktü sentezleyin ve klonlayın.
- Finalize edilmiş 4.741-bp'lik çok genli konstrüktü, ticari sentez ve pET-21a vektörünün BamHI ve XhoI restriksiyon bölgeleri arasına klonlanması için gönderin.
- Rekombinant pET-21a konstrüktü alındığında, plazmidi tedarikçinin talimatlarına göre yeniden yapılandırın ve şu hücrelere transformasyon işlemini gerçekleştirin: E. coli BL21(DE3).
NOT: E. coli pET-21a ekspresyon vektörü içerisinde sağlanan, ticari olarak sentezlenmiş çok genli konstrüktün ilk propagasyonu için BL21(DE3) kullanılmıştır. BL21(DE3) öncelikle rekombinant protein ekspresyonu için kullanılsa da, genotipik olarak pET-21a ile uyumludur ve bu çalışmada başarıyla kullanılmıştır. Alternatif olarak, şu gibi özel klonlama suşları E. coli DH5α veya başlangıç plazmit çoğaltması için TOP10 kullanılabilir; çünkü bu aşamada T7 RNA polimeraz ekspresyonu gerekli değildir.
2. Çok genli biyosorbent kaseti oluşturun.
- Sentezlenmiş konstrütü E. coli BL21(DE3) hücrelerine transforme edin.
- E. coli BL21(DE3) kompetan hücreleri buz üzerinde çözdürün.
- Biyosorbent konstrütünü içeren sentezlenmiş rekombinant pET-21a plazmidinden 10–100 ng miktarını, 50 µL E. coli BL21(DE3) kompetan hücresine ekleyin. Tekrarlı pipetleme yapmadan içeriği nazikçe karıştırın.
- Hücre süspansiyonunu buz üzerinde 30 dk inkübe edin.
- Hücrelere 42 °C'de 45 sn boyunca ısı şoku uygulayın.
- Tüpleri hemen buza aktarın ve 2 dk inkübe edin.
- Antibiyotiksiz, önceden ısıtılmış (37 °C), steril SOC besiyeri (katabolik represör içeren süper optimal besiyeri) üzerinden 500 µL ekleyin. Toparlanma sağlamak için kültürü 37 °C'de çalkalamalı (180 rpm) olarak 1 sa boyunca inkübe edin.
- Transforme edilmiş kültürden 100 µL'yi, ampicillin (100 µg/mL) içeren LB (Luria-Bertani) agar plaklarına yayın. Plakları 37 °C'de 16–18 sa inkübe edin.
- Rekombinant plazmidi taşıyan pozitif transformantları doğrulayın.
- Selektif agar plağından iyi izole edilmiş tek bir koloni seçin ve bunu ampicillin (100 µg/mL) içeren 5 mL LB broth içerisine inoküle edin.
- Kültürü 37 °C'de çalkalamalı (180 rpm) olarak 16-18 sa inkübe edin.
- 16–18 sa büyütülmüş bakteriyel kültürden plazmid DNA'sını izole edin.
- 16–18 sa büyütülmüş bakteriyel kültürden 5 mL'yi bir santrifüj tüpüne aktarın ve hücreleri 11,000 × g hızda 1 dk santrifüj ederek hasat edin. Süpernatantı tamamen uzaklaştırın.
- Hücre peletini 250 µL buz soğukluğundaki ET tamponunda iyice resüspande edin.
- 250 µL taze hazırlanmış lizis tamponu ekleyin ve tüpü birkaç kez ters çevirerek nazikçe karıştırın (vorteks kullanmayın). Karışımı buz üzerinde 5 dk inkübe edin.
- 300 µL nötralizasyon solüsyonu ekleyin ve tüpü birkaç kez ters çevirerek nazikçe karıştırın (vorteks kullanmayın).
- Karışımı 11,000 × g hızda 10 dk santrifüj edin, ardından süpernatantı peleti rahatsız etmeden dikkatle yeni bir mikrosantrifüj tüpüne aktarın.
- Toplanan süpernatanta hacimce 1:1 oranında TE-dengelenmiş fenol ekleyin ve iyice karıştırın. 11,000 × g hızda 10 dk santrifüj edin, ardından üstteki sulu fazı ara yüzeyi rahatsız etmeden dikkatle taze bir mikrosantrifüj tüpüne aktarın.
UYARI: Fenol yüksek derecede korozif ve toksiktir; ciddi kimyasal yanıklara neden olabilir. Tüm fenol içeren solüsyonları, uygun kişisel koruyucu donanım kullanarak sertifikalı bir kimyasal çeker ocak içinde kullanın. - Geri kazanılan sulu faz hacminin iki katı kadar absolut etanol ve ardından 0,1 hacim 0,1 N sodyum asetat ekleyin. İyice karıştırın ve DNA çökelmesini sağlamak için −20 °C'de 15 dk inkübe edin.
- Numuneyi 11,000 × g hızda 20 dk santrifüj edin. DNA peletini yerinden oynatmadan süpernatantı dikkatle uzaklaştırın.
- DNA peletini %70 (v/v) etanolle yıkayın ve DNA'yı tekrar çöktürmek için santrifüj edin. Etanolü dikkatle uzaklaştırın ve peletin havada kurumasını bekleyin.
- Kurumuş DNA peletini 20 µL TE tamponunda veya nükleaz içermeyen suda çözün.
DURAKLAMA NOKTASI: İzole edilen plazmid DNA'sını, restriksiyon enzim sindirimi ve rekombinant plazmid doğrulaması gerekene kadar −20 °C'de saklayın.
- İzole edilen plazmidi restriksiyon enzim sindirimi ile doğrulayın.
- Steril bir mikrosantrifüj tüpünde 500 ng plazmid DNA'sı, 5 µL 10× restriksiyon enzim tamponu, BamHI ve XhoI'den 10 U'şar ve toplam hacim 50 µL olacak şekilde nükleaz içermeyen su içeren 50 µL'lik bir restriksiyon sindirim reaksiyonu hazırlayın.
NOT: BamHI ve XhoI seçilmiştir çünkü bu restriksiyon bölgeleri, sentezlenmiş biyosorbent gen kasetinin pET-21a vektörüne klonlanması için kullanılmıştır.
- Steril bir mikrosantrifüj tüpünde 500 ng plazmid DNA'sı, 5 µL 10× restriksiyon enzim tamponu, BamHI ve XhoI'den 10 U'şar ve toplam hacim 50 µL olacak şekilde nükleaz içermeyen su içeren 50 µL'lik bir restriksiyon sindirim reaksiyonu hazırlayın.
- Reaksiyon karışımını 37 °C'de 1 sa inkübe edin.
- Sindirilen DNA fragmanlarını ayırın ve biyosorbent gen kasetinin varlığını ve beklenen boyutunu doğrulamak için agaroz jel elektroforezi ile değerlendirin.
- 100 mL 1× TAE tamponu kullanarak %1 (w/v) agaroz çözeltisi hazırlayın.
- Agaroz süspansiyonunu, agaroz tamamen çözülene ve çözelti berrak görünene kadar mikrodalgada ısıtın. Erimiş agarozu yaklaşık 60 °C'ye kadar soğutun.
- Sıvı agarozun nihai konsantrasyonu 1× olacak şekilde 10× DNA Safe Stain ekleyin. Hava kabarcığı oluşumunu önlemek için nazikçe karıştırın.
- Agaroz karışımını uygun bir tarak içeren jel döküm tepsisine dökün. Görünür hava kabarcıklarını uzaklaştırın ve jelin oda sıcaklığında tamamen donmasını bekleyin.
- Katılaşmış jeli elektroforez haznesine aktarın ve jeli örtecek miktarda 1× TAE yürütme tamponu ekleyin. Tarağı dikkatlice çıkarın.
- Her bir DNA numunesinden 5 µL'yi 1 µL 6× DNA yükleme tamponu ile karıştırın ve karışımı ilgili kuyucuklara yükleyin.
- Elektroforezi 100 V'da 40 dk boyunca veya DNA fragmanlarının yeterli ayrımı sağlanana kadar gerçekleştirin.
- DNA bantlarını bir UV transilüminatör kullanarak görselleştirin ve uygun bir jel görüntüleme sistemi ile jel görüntüsünü kaydedin.
UYARI: Ultraviyole radyasyon göz ve cilt yaralanmalarına neden olabilir. UV transilüminatörü çalıştırırken koruyucu kalkanı ve uygun UV koruyucu ekipmanı kullanın.
NOT: Agaroz jel üzerinde restriksiyon enzim sindiriminin tamamlandığını doğrulamak için kontrol olarak sindirilmemiş bir plazmid numunesi ekleyin.
- Doğrulanmış rekombinant suşu koruyun.
- Doğrulanmış bir rekombinant koloniyi ampicillin (100 µg/mL) içeren 5 mL LB broth içine inoküle edin ve 37 °C'de çalkalamalı (180 rpm) olarak 16–18 sa inkübe edin.
- 16–18 sa büyütülmüş kültürü, nihai gliserol konsantrasyonu %15 (v/v) olacak şekilde steril gliserol ile karıştırın.
- Gliserol stoklarını steril kriyotüplere paylaştırın ve −80 °C'de saklayın.
DURAKLAMA NOKTASI: Kromozomal entegrasyona geçmeden önce, uzun süreli koruma için gliserol stoklarını −80 °C'de saklayın.
3. Biyosorbent kasetinin kromozomal entegrasyon vektörüne (pKIKOArsBKm) klonlanması ve konak genomuna (E. coli MG1655) entegrasyonu
- Biyosorbent gen kasetini pKIKOArsBKm entegrasyon vektörüne klonlayın.
- Biosorbent gen kasetini taşıyan rekombinant pET-21a plazmidi ile pKIKOArsBKm entegrasyon vektörünü, SacI ve BamHI ile ayrı ayrı sindirin.
- Hazırlayın 50 µL 500 ng plazmid DNA içeren restriksiyon sindirim reaksiyonu, 1× restriksiyon enzimi tamponu, her birinden 1 U SacI ve BamHI ve son hacim için nükleaz içermeyen su 50 µLReaksiyon karışımını şu sıcaklıkta inkübe edin: 37 °C 1 saat boyunca.
- Restriksiyon enzimi ile sindirilmiş DNA fragmanlarını, Adım 2.2.6'da açıklandığı şekilde agaroz jel elektroforezi ile ayırın.
- 4.741 bp'lik biyosorbent gen kasetine ve lineerize edilmiş pKIKOArsBKm vektörüne karşılık gelen bantları kesin. Kesilen her bir jel dilimini önceden tartılmış bir mikrosantrifüj tüpüne aktarın.
NOT: Görselleştirme ve kesme işlemleri sırasında hedef DNA fragmanlarının UV ışığına maruziyetini en aza indirin. - Kesilmiş biyosorbent gen kasetini ve lineerize edilmiş pKIKOArsBKm vektörünü agaroz jelden saflaştırın.
- Jel dilimini içeren tüpü tartın ve boş tüpün ağırlığını çıkararak kesilen agarozun kütlesini hesaplayın.
- 1 ekleyin× jel diliminin kütlesinin beş katına eşdeğer hacimde TE tamponu, şu oranı kullanarak 5 µL 1 mg agaroz başına (örneğin, ekleyin ... TE tamponu 500 µL (100 mg'lık jel dilimine TE tamponu).
- Tüpü, şu sıcaklıktaki bir benmari banyosunda inkübe edin: 65 °C agaroz tamamen eriyene kadar. Fenol ekstraksiyonuna geçmeden önce numunenin oda sıcaklığına kadar soğumasını bekleyin.
- Hedef DNA fragmanlarının fenol ekstraksiyonunu ve DNA çöktürmesini gerçekleştirmek için Adım 2.2.3.6–2.2.3.10'u takip edin.
DURAKLAMA NOKTASI: Saflaştırılmış DNA'yı − derecede saklayın.20 °C sonraki klonlama veya ligasyon için gerekli olana kadar.
- Saflaştırılmış biyosorbent gen kasetini, yaklaşık 3:1 insert-vektör kütle oranında T4 DNA ligaz kullanarak lineerize edilmiş pKIKOArsBKm vektörüne ligeyin.
- Hazırlayın 10 µL 150 ng saflaştırılmış biyosorbent gen kaseti ve 49,2 ng lineerleştirilmiş pKIKOArsBKm vektörü içeren ligasyon reaksiyonu, 1 µL 10X T4 DNA ligaz tamponundan ve 3 U T4 DNA ligazdan. Nihai hacim şu seviyeye ulaşana kadar nükleaz içermeyen su ekleyin: 10 µLve yaklaşık 3:1 oranında bir insert-vektör kütle oranı korunarak.
- Reaksiyon karışımını pipetleme yoluyla nazikçe karıştırın ve 16–18 saat boyunca şu sıcaklıkta inkübe edin: 4 °C.
- Dönüştür 5 µL ligasyon reaksiyon karışımının ... içine E. coli Pir1 hücreler
- Çözdürün E. coli Buz üzerinde Pir1 kompetan hücreler.
- Ekle 5 µL ligasyon reaksiyon karışımının... altına/içine/yönüne (Cümlenin devamına göre değişir, ancak teknik olarak: "ligasyon reaksiyon karışımının ... kısmına/miktarına") 50 µL -in/-un E. coli Pir1 kompetan hücreler. Tekrarlanan pipetleme yapmadan içeriği nazikçe karıştırın.
- Hücre süspansiyonunu 30 dakika boyunca buz üzerinde bekletin.
- Hücreleri şu sıcaklıkta ısı şokuna tabi tutun: 42 °C 45 saniye boyunca.
- Tüpleri derhal buza geri koyun ve 2 dakika boyunca orada bekletin.
- Ekle 500 µL steril, önceden ısıtılmış (37 °Cantibiyotiksiz SOC besiyeri. Hücrelerin 1 saat boyunca şu koşullarda toparlanmasına izin verin: 37 °C 180 rpm'de çalkalanarak.
- Plaka 100 µL transformasyon karışımının kanamisin içeren LB agar üzerine (50 µg/mL) steril bir yayma çubuğu kullanarak. Plakaları şu sıcaklıkta inkübe edin: 37 °C 16-18 saat boyunca.
- LB agar plaklarından, iyi izole edilmiş kanamisinle dirençli rekombinant kolonileri seçiniz.
- Adım 2.2.3'te açıklandığı şekilde plazmid izolasyonu ve ardından Adım 2.2.6'da açıklandığı şekilde agaroz jel elektroforezi ile rekombinant entegrasyon plazmidinin varlığını doğrulayın.
DURAKLAMA NOKTASI: Tamamlanan ligasyon reaksiyonunu − derecede saklayın.20 °C rekombinant pKIKOArsBKm konstrüktünün sonraki transformasyonu ve doğrulaması için gerekli olana kadar.
- Biosorbent gen kasetini taşıyan rekombinant pET-21a plazmidi ile pKIKOArsBKm entegrasyon vektörünü, SacI ve BamHI ile ayrı ayrı sindirin.
- rekombinant pKIKOArsBKm konstrüktünü içeren ligasyon ürününü şuna transforme edin E. coli MG1655.
- Hazırlayın λ Red rekombinasyon konak hücreleri.
- Kimyasal kompetan hazırlama E. coli MG1655 hücreleri.
- ...'nın iyi izole edilmiş tek bir kolonisini seçin E. coli LB agar plağından MG1655 örneği alın ve 5 mL LB besiyerine ekleyin. Kültürü şu sıcaklıkta inkübe edin: 37 °C çalkalamalı olarak 16–18 saat boyunca.
- Gece boyu kültürü iletilen 0,5 mL'yi 50 mL steril Super Optimal Broth (SOB) besiyerine aktarın. Kültürü şu sıcaklıkta inkübe edin: 37 °C OD değeri ... olana kadar 180 rpm'de çalkalayarak₆₀₀ 0,35–0,45 değerine ulaşır.
- Kültürü derhal bir buz banyosuna aktarın ve iyice soğutun.
- Soğutulmuş kültürü steril, önceden soğutulmuş 50 mL'lik bir santrifüj tüpüne aktarın ve şu değerde santrifüjleyin: 10,000 × g 10 dk boyunca şurada/şurada: 4 °C.
- Süpernatantı dikkatlice uzaklaştırın ve hücre peletini 20 mL buz gibi soğuk deiyonize su içerisinde nazikçe yeniden süspande edin.
- Hücre süspansiyonunu 10.000'de santrifüj edin × g 10 dakika boyunca ... sıcaklıkta/değerde 4 °CSüpernatan dikkatlice uzaklaştırın.
- Hücre peletini 2 mL buz soğukluğundaki 0,1 M kalsiyum klorür içerisinde nazikçe yeniden süspanse edin ve süspansiyonu 30 dakika boyunca buz üzerinde bekletin.
- Süspansiyonu 10.000'de santrifüjleyin × g 5 dakika boyunca ...'da 4 °Cardından süpernatantı dikkatlice uzaklaştırın.
- Son hücre peletini, buz gibi soğuk 1 mL 0.1 M CaCl2 içerisinde nazikçe yeniden süspanse edin.₂Dağıtın 80 µL kimyasal olarak kompetan hücrelerin alikotları E. coli MG1655 hücrelerini steril, önceden soğutulmuş mikrosantrifüj tüplerine aktarın. Kimyasal olarak kompetan olan... E. coli MG1655 hücrelerini hemen transformasyon için kullanın veya alikotları −'de saklayın80 °C kullanılana kadar.
- Kimyasal olarak kompetan hücrelerin transformasyonu E. coli ... ile MG1655 hücreleri λ Isı şoku transformasyon prosedürü kullanılarak pKD46 Red rekombinasyon plazmidi.
- 100 ng pKD46 plazmidi ekleyin 80 µL kimyasal olarak kompetan hücreler içeren soğutulmuş bir mikrosantrifüj tüpünden E. coli MG1655 hücreleri. İçeriği, tekrarlayan pipetleme yapmadan nazikçe karıştırın.
- Hücre süspansiyonunu 30 dakika boyunca buz üzerinde inkübe edin.
- Hücreleri şu sıcaklıkta ısı şokuna maruz bırakın: 42 °C 45 saniye boyunca.
- Tüpleri derhal buza aktarın ve 2 dakika boyunca orada tutun.
- Ekle 500 µL antibiyotiksiz steril SOC besiyerinin. Kültürü şu sıcaklıkta inkübe edin: 30 °C toparlanmaya izin vermek için 1 saat boyunca çalkalamalı (180 rpm) olarak.
- Yayma 100 µL transforme edilmiş kültürün ampisilin içeren LB agar plaklarına (100 µg/mL). Plakaları 16-18 saat boyunca şu sıcaklıkta inkübe edin: 30 °C.
NOT: Koruyun E. coli MG1655(pKD46) suşu 30 °C sıcaklığa duyarlı pKD46 plazmidini korumak için adım 3.2.2'deki kullanıma kadar.
- Kimyasal kompetan hazırlama E. coli MG1655 hücreleri.
- Elektrokompetan hazırlayın E. coli MG1655(pKD46) hücreleri.
- 16–18 saat boyunca büyütülmüş 1 mL kültür inoküle edin E. coli ampisilin takviyeli 250 mL LB besiyeri içeren bir Erlenmeyer flaskına MG1655(pKD46) kültürü (100 µg/mL) ve kültürü şu sıcaklıkta inkübe edin: 30 °C OD değeri ... olana kadar 180 rpm'de çalkalayarak₆₀₀ 0,35–0,40 değerine ulaşır.
- Ekspresiyonu indüklemek için filtre sterilleştirilmiş %10 (w/v) L-arabinozu nihai konsantrasyonu %0,1 (w/v) olacak şekilde ekleyin λ Red rekombinasyon proteinleri.
NOT: 250 mL'lik bir kültür için, yaklaşık %0,1 (w/v) nihai konsantrasyon elde etmek amacıyla 2,5 mL %10'luk (w/v) L-arabinoz ekleyin. - İndüklenmiş kültürü ek bir 15 dakika boyunca şu sıcaklıkta inkübe edin: 30 °C 180 rpm hızında çalkalanarak.
- Kültürü içeren Erlenmeyer balonunu buz banyosuna aktarın ve 40 dakika boyunca inkübe edin.
- Soğutulmuş kültürü önceden soğutulmuş santrifüj tüplerine aktarın ve 1.800'de santrifüjleyerek hücreleri toplayın. × g 15 dakika boyunca ... sıcaklıkta/şartlarda 4 °CSüpernatant dikkatlice uzaklaştırın.
- Hücre peletini 30 mL buz gibi soğuk %10'luk (h/h) gliserol içinde nazikçe yeniden süspande edin, ardından 3.000'de santrifüjleyin × g 5 dk boyunca ...'da 4 °C.
- Süpernatantı uzaklaştırın ve Adım 3.2.2.6'da açıklanan yıkama işlemini iki kez daha tekrarlayarak, buz gibi soğuk %10 (v/v) gliserol ile toplamda üç yıkama gerçekleştirin. Son yıkamanın ardından süpernatantı dikkatlice dökün ve peleti şunların içinde yeniden süspande edin: 200 µL buz gibi soğuk %10 (v/v) gliserolden.
- Elektrokompetan hücreleri paylaştırın *E. coli* MG1655(pKD46) hücreleri ... içine 50 µL alikotlar oluşturun ve hücreleri elektroporasyona kadar buz üzerinde tutun.
NOT: Taze hazırlanan elektrokompetan hücreleri elektroporasyon için hemen kullanın. Alternatif olarak, hücreleri steril mikrosantrifüj tüplerine paylaştırın ve − derecede dondurun.80 °Cve sonraki kullanım öncesinde buz üzerinde çözdürün.
- Adım 3.1.5'ten elde edilen rekombinant integrasyon konstrüktünü lineerize edin.
- İntegrasyon konstrüktünü lineerize etmek için, biyosorbent gen kasetini taşıyan rekombinant pKIKOArsBKm plazmidini NotI restriksiyon enzimi ile sindirin.
- Rekombinant plazmidin tam olarak sindirildiğini, Adım 2.2.6'da açıklandığı şekilde agaroz jel elektroforezi ile doğrulayın.
- Lineerize edilmiş DNA fragmanını, Adım 2.2.3.6–2.2.3.10'da açıklanan fenol ekstraksiyonu ve DNA çöktürme yöntemleri ile sindirim reaksiyon karışımından saflaştırın.
- Lineerize edilmiş entegrasyon konstrüktünü elektrokompetan hücrelere elektropore edin. E. coli MG1655(pKD46).
- Adım 3.2.3.3'ten elde edilen saflaştırılmış lineerleştirilmiş DNA'dan yaklaşık 250 ng ekleyin 50 µL taze hazırlanmış elektrokompetan E. coli MG1655(pKD46) hücreleri. Nazikçe karıştırın ve hücre-DNA karışımını önceden soğutulmuş bir elektroporasyon küvetine aktarın.
- Hücreleri 1,8 kV ve 600 µF değerlerinde elektropore edin. Ωve 25 µF bir elektroporatör kullanarak.
- Hemen ekleyin 500 µL elektroporasyon küvetine SOC besiyeri ekleyin ve hücreleri nazikçe yeniden süspande edin.
- Kurtarılan hücre süspansiyonunu steril bir mikro santrifüj tüpüne aktarın ve hücrelerin şu koşullarda 1 saat boyunca toparlanmasına izin verin: 37 °C 180 rpm hızında çalkalamayla.
- Yayma 100 µL geri kazanılan hücre süspansiyonunun kanamisin eklenmiş LB agar plaklarına50 µg/mL) ve 16-18 saat boyunca şu sıcaklıkta inkübe edin 37 °C.
- Rekombinant kolonileri kromozomal entegrasyon için tarayın.
- Kanamisine dirençli tekil kolonileri seçin ve her birini, son konsantrasyonu [X] olan kanamisin içeren 10 mL LB besiyeri içeren ayrı tüplere inoküle edin. 50 µg/mL.
- Kültürleri 16–18 saat boyunca şu sıcaklıkta büyütün: 37 °C 180 rpm'de çalkalayarak.
- Her bir kültürden 5 mL'yi ayrı bir steril tüpe aktarın ve plazmid DNA'sını Adım 2.2.3'te açıklandığı şekilde izole edin.
- İzole edilen DNA'yı, Adım 2.2.6'da açıklandığı şekilde agaroz jel elektroforezi ile analiz edin.
- Agaroz jel elektroforezi ile plazmit DNA'sinin saptanamadığı örnekleri belirleyin ve bu örnekleri kromozomal entegrasyonun sonraki değerlendirmeleri için saklayın.
- Adım 3.2.5.3'te saklanan her bir kültürün geri kalan 5 mL'sinden genomik DNA izole edin ve izole edilen genomik DNA'yı şu PCR amplifikasyonu için kalıp olarak kullanın: cadD, cadAve mt Adım 3.2.7'de açıklanan genler.
- 16–18 saat boyunca büyütülmüş bakteriyel kültürden 5 mL'yi steril bir santrifüj tüpüne aktarın ve 11.000'de santrifüj ederek hücreleri çöktürün × g 10 dk boyunca ...'da 4 °CSüpernatantı atın.
- Hücre peletini 5 mL steril fosfat tamponlu salyende (PBS) nazikçe yeniden süspande edin. 11.000'de santrifüjleyin × g 10 dakika boyunca ... sıcaklıkta/şartlarda 4 °Cardından süpernatantı tamamen uzaklaştırın.
- Yıkanmış hücre pelletini şunlar içerisinde yeniden süspande edin: 100 µL lizozim çözeltisinden (50 mg/mL) ekleyin ve süspansiyonu şu sıcaklıkta inkübe edin: 37 °C 1 saat boyunca.
- Ekle 500 µL Lizozim ile işlem görmüş hücrelere 5 M Guanidin tiyosiyanat çözeltisi ekleyin. Nazikçe karıştırın ve oda sıcaklığında 10 dakika inkübe edin.
DİKKAT: Guanidin tiyosiyanat zararlıdır ve asitlerle veya çamaşır suyuyla karıştırıldığında toksik gazlar salabilir. Uygun kişisel koruyucu donanım kullanın ve guanidin içeren solüsyonları kurumsal kimyasal güvenlik prosedürlerine uygun olarak işleyin. - Numuneyi 10 dakika boyunca buz üzerinde bekletin, ardından ekleyin 250 µL nazikçe karıştırırken, buz gibi soğuk 7.5 M amonyum asetat ekleyin. Karışımı 10 dakika daha buz üzerinde bekletin.
- Lizata, 1:1 (h/h) oranında TE ile dengelenmiş fenol ekleyin. İyice vorteksleyin ve 10.000'de santrifüjleyin. × g 15 dakika boyunca.
DİKKAT: Fenol ve kloroform toksik ve koroziftir. Fenol ile çalışırken uygun kişisel koruyucu donanım kullanarak, sertifikalı bir kimyasal çeker ocak içinde işlem yapınız. - İnterfazı bozmadan, üstteki sulu fazı dikkatlice yeni bir steril mikrosantrifüj tüpüne aktarın.
- Geri kazanılan sulu faza, 0,1 hacim sodyum asetat çözeltisi ve 2 hacim absolut etanol ekleyin. Ters çevirerek nazikçe karıştırın, ardından − derecede inkübe edin.20 °C 20 dakika boyunca.
- Numuneyi 10.000'de santrifüj edin. × g 15 dakika boyunca. DNA peletini yerinden oynatmadan süpernatantı dikkatlice uzaklaştırın.
- DNA peletini şununla yıkayın: 100 µL %70 (v/v) etanol ile.
- 10.000 rpm'de santrifüjleyin × g 10 dakika boyunca kalan etanolü uzaklaştırın ve DNA peletini oda sıcaklığında 10 dakika boyunca havada kurutun.
- Kurutulmuş DNA peletini 20–50 µL TE tamponu veya nükleaz içermeyen su.
DURAKLAMA NOKTASI: İzole edilen genomik DNA'yı − derecede saklayın.20 °C alt basamak moleküler analizler için gerekene kadar.
- Gen spesifik PCR ve plazmit DNA analizi ile kromozomal entegrasyonu değerlendirin.
- Ayrı ayrı hazırlayın 25 µL ... amplifikasyonu için PCR reaksiyon karışımları cadD, cadAve mt genler
- Her bir reaksiyon için, ilgili ileri ve geri primerleri şu nihai konsantrasyona ulaşacak şekilde ekleyin: 0.4 µM her biri, 1 ile birlikte× PCR tamponu, 200 µM her bir dNTP'den, 1,5 mM MgCl2₂, Adım 3.2.6'da izole edilen 100 ng genomik DNA ve 0,2 U/µL konsantrasyonda Taq DNA polimerazµLnükleaz içermeyen su ekleyerek toplam reaksiyon hacmini şu değere tamamlayın: 25 µL.
- Hedef genleri, aşağıdaki döngü programını kullanarak PCR ile çoğaltın: başlangıçta şu sıcaklıkta denatüre edin: 95 °C 5 dakika boyunca; şu sıcaklıkta denatürasyonun 35 döngüsünü gerçekleştirin: 94 °C 30 saniye boyunca, listede belirtilen gene özgü sıcaklıkta 30 saniye boyunca tavlama Tablo 2ve şu numaralı dahili hattan ulaşılabilir: 72 °C 1 dk boyunca; ardından şu sıcaklıkta son uzatma işlemini gerçekleştirin: 72 °C 5 dk boyunca.
- PCR ürünlerini, moleküler boyut belirleyici olarak 1 kB DNA merdiveni ile birlikte, Adım 2.2.6'da açıklandığı şekilde agaroz jel elektroforezi ile analiz edin.
- PCR ürünlerini, 1 kb'lık DNA merdiveni ile göçlerini karşılaştırarak değerlendirin ve 619 bp'lik beklenen amplikon boyutlarına karşılık gelen bantları belirleyin cadD, 2.564 bp için cadAve 154 bp için mt.
NOT: Tespit edilebilir plazmid DNA'nın yokluğu ile beklenen ürünün amplifikasyonunun bir arada olması cadD, cadAve mt genomik DNA'dan elde edilen fragmanlar, biyosorbent gen kasetinin kromozomal entegrasyonunu destekleyen kanıtlar sunmaktadır.
- Ayrı ayrı hazırlayın 25 µL ... amplifikasyonu için PCR reaksiyon karışımları cadD, cadAve mt genler
- Hazırlayın λ Red rekombinasyon konak hücreleri.
4. Kanamisin direnç belirtecini kesin.
- Biosorbent gen kaseti içeren rekombinant E. coli MG1655 hücrelerini elektrokometan olarak hazırlayın.
- Adım 3.2.7'de doğrulanmış, kromozomal olarak entegre biosorbent kaseti taşıyan bir rekombinant E. coli MG1655 kolonisini, kanamycin (50 µg/mL) ile desteklenmiş 5 mL LB broth'a inoküle edin.
- Kültürü, OD₆₀₀ değeri 0,4–0,6'ya ulaşana kadar 37 °C'de 180 rpm çalkalamayla inkübe edin.
- OD₆₀₀ 0,4–0,6'ya ulaştıktan hemen sonra kültürü buza aktarın ve 15 dk boyunca buz üzerinde inkübe edin.
- Hücreleri 4 °C'de 10 dk boyunca 4.000 × g santrifüjle hasat edin ve süpernatantı uzaklaştırın.
- Hücre peletini önce iki kez buz gibi soğuk deiyonize suyla, ardından bir kez buz gibi soğuk %10 (v/v) gliserol ile yıkayın.
- Nihai hücre peletini 50 µL buz gibi soğuk %10 (v/v) gliserol içinde resüspande edin.
NOT: Elektrokometansın korunması için yıkama prosedürü boyunca hücreleri ve tüm çözeltileri buz gibi soğuk tutun.
- Yardımcı plazmid pCP20'nin elektroporasyonu
- 50 µL elektrokometan hücreye 50 ng pCP20 yardımcı plazmid ekleyin. Nazikçe karıştırın ve karışımı önceden soğutulmuş bir elektroporasyon küvetine aktarın.
- Hücreleri şu ayarlarla elektropore edin: 2,5 kV, 600 Ω ve 25 µF.
- Küvete hemen 1 mL SOC besiyeri ekleyin ve hücreleri nazikçe resüspande edin.
- Kurtarılan hücreleri steril bir kültür tüpüne aktarın ve 1 saat boyunca 30 °C'de 180 rpm çalkalamayla inkübe edin.
- Kurtarılan kültürden 100 µL'yi ampicillin (100 µg/mL) ile desteklenmiş LB agar plaklarına yayın. Plakları 16–18 saat boyunca 30 °C'de inkübe edin.
- Pozitif rekombinantları doğrulamak için iyi izole edilmiş tek kolonileri seçin.
- pCP20 plazmidinin varlığını, Adım 2.2.3'te açıklanan plazmid izolasyonu ve ardından Adım 2.2.6'da açıklanan agaroz jel elektroforezi ile doğrulayın.
NOT: Sıcaklığa duyarlı pCP20 plazmidini korumak için transforme edilmiş hücreleri 30 °C'de tutun.
- Kanamycin direnç kasetini eksize edin.
- Adım 4.2'den gelen doğrulanmış ampicillin-dirençli bir koloniyi antibiyotiksiz LB broth'a inoküle edin ve FLP rekombinaz ekspresyonunu indüklemek ve sıcaklığa duyarlı pCP20 plazmidini temizlemek için 16–18 saat boyunca 42 °C'de 180 rpm çalkalamayla inkübe edin.
- 16–18 saat büyütülen kültürü; antibiyotiksiz, kanamycin (50 µg/mL) içeren ve ampicillin (100 µg/mL) içeren LB agar plaklarına ayrı ayrı çizin. Her plağı 16–18 saat boyunca 37 °C'de inkübe edin.
- Sadece antibiyotiksiz LB agar üzerinde büyüyen ancak kanamycin veya ampicillin içeren plaklarda büyümeyen kolonileri belirleyin. Bu kolonileri muhtemel markörsüz rekombinantlar olarak seçin.
- Tek bir koloniyi taze antibiyotiksiz LB agar plaklarına yeniden çizerek markörsüz rekombinantları saflaştırın.
DURAKLAMA NOKTASI: Saflaştırılmış markörsüz rekombinant suşları, sonraki moleküler doğrulama veya fonksiyonel karakterizasyon için gerekli olana kadar −80 °C'de gliserol stokları olarak saklayın.
5. Oluşturulan tüm hücre biyosorbentinin GFP ekspresyonunu floresan mikroskobu ile analiz edin.
- Ağır metal maruziyeti için bakteri kültürlerini hazırlayın.
- Adım 4.3.4'teki kromozomal olarak entegre biyosorbent konstrüktü taşıyan rekombinant marker-free E. coli MG1655'in 16–18 saat büyütülmüş kültüründen 5 µL'yi; final konsantrasyonları 1, 5, 10, 50, 100, 500 veya 1000 ppm olan Cd2⁺, Zn2⁺ veya Pb2⁺ içeren LB bulyonuna inoküle edin.
- Ağır metal çözeltilerini hazırlamak için, önce analitik derece kadmiyum klorür (CdCl₂), çinko klorür (ZnCl₂) ve kurşun nitrat [Pb (NO₃)₂]'yi sırasıyla steril LB bulyonunda çözerek 2.000 ppm'lik steril Cd2⁺, Zn2⁺ ve Pb2⁺ stok çözeltileri hazırlayın.
- Her stok çözeltiyi 0,22 µm membran filtre üzerinden filtrasyonla sterilize edin. Steril stok çözeltilerini kullanıma kadar 4 °C'de saklayın.
- Her bir stok çözeltiyi steril LB bulyonu ile seyrelterek 1, 5, 10, 50, 100, 500 ve 1.000 ppm'lik final metal iyon konsantrasyonlarında taze çalışma çözeltileri hazırlayın.
NOT: Çökelmeyi veya farklı metal iyonları arasındaki etkileşimleri önlemek için her metal çözeltisini ayrı ayrı hazırlayın.
- Dört kontrol koşulu hazırlayın: rekombinant suşla aynı koşullarda kültüre edilmiş wild-type E. coli MG1655, rekombinant metal-siz kontrol olarak ağır metal eklenmemiş LB bulyonunda kültüre edilmiş kromozomal olarak entegre multigen kaseti taşıyan marker-free rekombinant E. coli MG1655, GFP-pozitif biyolojik kontrol olarak pQBIT-GFP-T7 plazmidini içeren GFP-eksprese eden E. coli JM109 suşu ve abiyotik kontrol olarak ilgili ağır metal konsantrasyonlarını içeren inoküle edilmemiş LB bulyonu.
- Tüm kültürleri 37 °C'de, 180 rpm çalkalama ile 16–18 saat inkübe edin.
- Adım 4.3.4'teki kromozomal olarak entegre biyosorbent konstrüktü taşıyan rekombinant marker-free E. coli MG1655'in 16–18 saat büyütülmüş kültüründen 5 µL'yi; final konsantrasyonları 1, 5, 10, 50, 100, 500 veya 1000 ppm olan Cd2⁺, Zn2⁺ veya Pb2⁺ içeren LB bulyonuna inoküle edin.
- Mikroskop lamlarını hazırlayın.
- Her bir bakteri kültüründen 1 µL'yi ayrı, temiz bir cam mikroskop lamı üzerine pipetleyin. Kültürü ince ve eşit bir hücre tabakası oluşturacak şekilde yayın ve yaymanın tamamen havada kurumasına izin verin.
- Floresans görüntülerini edinin.
- Hazırlanan örnekleri, FITC filtre setine (eksitasyon dalga boyu, 460–490 nm) sahip bir floresans mikroskobu ile 600× büyütmede gözlemleyin.
- Tüm rekombinant ve kontrol örnekleri için aynı mikroskop ayarlarını kullanarak floresans ve karşılık gelen parlak alan görüntülerini yakalayın.
NOT: İşlemler arasındaki GFP floresans yoğunluğunun doğrudan karşılaştırılabilmesi için tüm örneklerde aynı pozlama süresini, kazancı, aydınlatma şiddetini ve büyütmeyi koruyun.
UYARI: GFP fotobeyazlamasını en aza indirmek için örneklerin eksitasyon ışığına uzun süre maruz kalmasından kaçının.
Sonuçlar
In-silico çoklu gen biyosorbent yapısının tasarımı
Tasarlanan çok genli biyosorbent kaseti toplam 4.741 bp uzunluğundaydı ve konstitütif Ppdh promotörünün ardından polisistronik bir operon şeklinde düzenlenmiş ağır metal direnç genleri cadD, cadA ve mt'den oluşmaktaydı. Verimli translasyonu kolaylaştırmak için her kodlama dizisinin yukarısına bireysel ribozom bağlama bölgeleri (RBS) eklenmiş, konstrükt ekspresyonunun izlenmesini sağlamak için ise biyosorbent genlerin aşağısına bir gfp raporlayıcı gen dahil edilmiştir (Şekil 1).
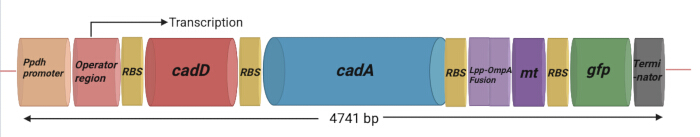
Şekil 1: Çoklu gen konstrüktünün tasarımı ve organizasyonu. 4,741-bp uzunluğundaki çoklu gen kaseti, ağır metal direnci ve sekestrasyonu ile ilişkili genlerin ifadesini yürütmek amacıyla bir operatör bölgesini takip eden konstitütif piruvat dehidrogenaz (Ppdh) promotörü ile tasarlanmıştır. Konstrükt, ağır metal direnç genleri olan cadD ve cadA'yı, metallothionein (mt) genini, hücre yüzeyine lokalizasyon amacıyla mt genine füze edilmiş bir lipoprotein dış membran proteini A (Lpp-OmpA) yüzey sergileme bileşenini ve gfp raporlayıcı genini içerir. Çoklu gen kaseti içindeki translasyonu desteklemek amacıyla, ilgili kodlama dizilerinin yukarısına bireysel ribozom bağlanma bölgeleri (RBS; 5′-AGGAGG-3′) eklenmiştir. gfp dizisinin aşağısında bir terminatör dizisi bulunmaktadır. Tüm kaset, daha sonraki klonlama ve E. coli kromozomal entegrasyonu için 4,741-bp'lik bir konstrükt olarak tasarlanmıştır. Kısaltmalar: Ppdh = piruvat dehidrogenaz promotörü; RBS = ribozom bağlanma bölgesi; Lpp-OmpA = lipoprotein–dış membran proteini A; mt = metallotiyonein; gfp = yeşil floresan protein geni; bp = baz çiftleri; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Hücre dışı metal sekestrasyonunu kolaylaştırmak için, metallothionein proteininin yüzeyle lokalizasyonunu sağlamak amacıyla mt geni, Lpp-OmpA dış membran çıpasına füzyonlanmıştır. Konstrükt tasarımına dayanarak, CadD ve CadA transmembran metal taşıma proteinleri olarak iç membrana hedeflenirken; Lpp-OmpA-Mt füzyon proteini dış membrana hedeflenmiştir. GFP reporter proteini, biyosorbent gen ekspresyonunun izlenmesini kolaylaştırmak için sitoplazmik ekspresyon için tasarlanmıştır (Şekil 2).
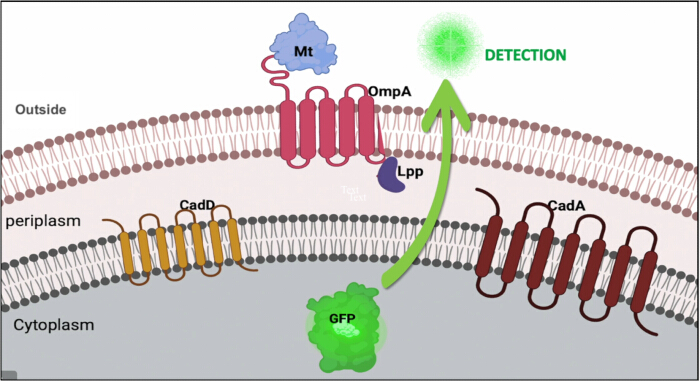
Şekil 2: Çok genli biyosorbent konstrüktinden eksprese edilen proteinlerin öngörülen lokalizasyonu. CadD ve CadA iç membran içinde lokalize olacak şekilde tasarlanmış, lipoprotein dış membran proteini A (Lpp-OmpA)-metallothionein füzyonu dış membrana hedeflenmiş ve yeşil floresan protein sitoplazmik bir raporlayıcı protein olarak eklenmiştir. Kısaltmalar: Lpp-OmpA = lipoprotein–dış membran proteini A; Mt = metallothionein; GFP = yeşil floresan protein. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Biyosorbent yapısına dahil edilen her bir genetik elementin nükleotid dizisi kaynakları Tablo 1'de listelenmiştir.
| Biyosorbent konstrüktteki genetik element | Konstrükteki konum (bp) | Kaynak/Referans |
| Ppdh | 7-74 | Gao ve ark. 2002.14 |
| Operatör | 75-92 | Staphylococcus epidermidis suşu TWSL_22'nin cad D operatör bölgesi: NCBI Gene Bank erişim no: MK900473.1 |
| cadD | 97-716 | NCBI Gen Bank erişim no: MK900473.1 |
| cadA | 770-3334 | NCBI Gene Bank erişim no: MK327282.1 |
| Lpp-OmpA | 3385-3754 | Stathopoulo ve ark. 1995. 15 |
| mt | 3755-3909 | NCBI Gene Bank erişim no: MK900456.1 |
| gfp | 3960-4679 | TPMV_P-EGFP_H-His6 vektörü, NCBI Gene Bank erişim no: MF379627.1 |
| Terminatör | 4684-4741 | Bacillus megaterium suşu TWSL-4'ün cadAC operonunun terminatör bölgesi: NCBI Gene Bank erişim no: MK327282.1 |
Tablo 1: Biyosorbent konstrüktündeki genetik elementlerin nükleotid dizisi kaynakları. Tablo, dizi kaynakları, erişim numaraları veya referansları ve gen konstrüktü içindeki nükleotid konumları dahil olmak üzere, 4.741-bp çoklu gen konstrüktüne dahil edilen genetik elementleri özetlemektedir. Kısaltmalar: Ppdh = piruvat dehidrogenaz promotörü; Lpp-OmpA = lipoprotein-dış membran proteini A; mt = metallothionein; gfp = yeşil floresan protein geni; NCBI = Ulusal Biyoteknoloji Bilgi Merkezi; bp = baz çifti.
Sentezlenen konstrüktün E. coli BL21(DE3) hücrelerine transformasyonu ve doğrulanması
Biosorbent gen kasetini taşıyan rekombinant pET-21a plazmidi, restriksiyon enzimi sindirimi ile başarıyla doğrulandı (Şekil 3A). BamHI ve XhoI ile yapılan çift sindirim, pET-21a vektör omurgasına (5.331 bp) ve biosorbent gen kasetine (4.741 bp) karşılık gelen iki DNA fragmanı oluşturarak beklenen konstrükt boyutuyla uyumlu sonuç verdi. Benzer boyutları nedeniyle iki DNA fragmanı %1'lik agaroz jelde sınırlı bir ayrılma göstermiş olsa da, her iki fragman da net bir şekilde ayırt edilebildi ve rekombinant konstrüktün bütünlüğü onaylandı.
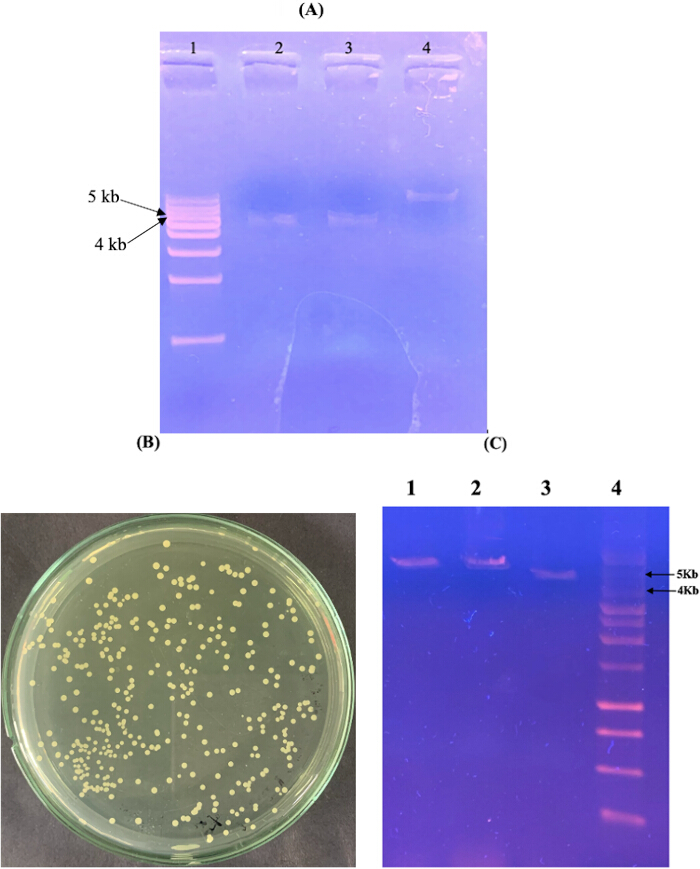
Şekil 3: Rekombinant biyosorbent plazmidin oluşturulması ve doğrulanması. (A) pET-21a ekspresyon vektörüne klonlanan sentezlenmiş biyosorbent yapısının restriksiyon enzim analizi. Bant 1, 1 kb DNA merdiveni; bantlar 2–3, pET-21a vektör omurgasını (5,331 bp) ve biyosorbent gen kasetini (4,741 bp) gösteren çift sindirilmiş rekombinant plazmid; bant 4, sindirilmemiş rekombinant plazmid. (B) Rekombinant biyosorbent plazmid taşıyan ampisilinle dirençli E. coli BL21(DE3) transformantları. (C) Temsili transformantlardan izole edilen plazmidlerin restriksiyon enzim analizi. Bant 1, BamHI ile sindirilmiş plazmid; bant 2, XhoI ile sindirilmiş plazmid; bant 3, BamHI/XhoI ile çift sindirilmiş plazmid; bant 4, 1 kb DNA merdiveni. Kısaltmalar: DNA = deoksiribonükleik asit; bp = baz çiftleri; kb = kilobazlar; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Rekombinant plazmidin E. coli BL21(DE3) hücrelerine transformasyonunun ardından, ampisilin-dirençli koloniler başarıyla elde edildi (Şekil 3B). Temsili transformantlardan izole edilen plazmid DNA'sı daha sonra restriksiyon enzimi sindirimi ile analiz edildi. BamHI, XhoI ve kombine çift sindirim ile yapılan işlemler beklenen restriksiyon profillerini oluşturarak, rekombinant biyosorbent plazmidin E. coli BL21(DE3) içinde başarıyla çoğaltıldığını doğruladı (Şekil 3C).
Biosorbent gen kasetinin E. coli MG1655'e kromozomal entegrasyonunun değerlendirilmesi
Biyosorbent gen kaseti, pKIKOArsBKm kromozomal entegrasyon vektörüne başarıyla klonlanmıştır. Rekombinant klonlar, başlangıçta kanamisin (50 µg/mL) ile takviye edilmiş LB agar üzerinde seçilmiştir (Şekil 4A). Restriksiyon enzimi analizi, biyosorbent kasetinin entegrasyon vektörüne başarıyla klonlandığını doğrulamıştır (Şekil 4B). Rekombinant plazmidin NotI ile lineerizasyonu, yaklaşık 8.9 kb boyutunda beklenen DNA fragmanını üretmiş; BamHI ve SacI ile yapılan çift sindirim ise 4.7-kb biyosorbent kasetini 4.2-kb vektör omurgasından ayırarak konstrüktün pKIKOArsBKm'ye doğru şekilde yerleştirildiğini doğrulamıştır. Sindirilmemiş plazmid, beklenen çentikli ve süperkıvrımlı konformasyonlar sergilemiştir.
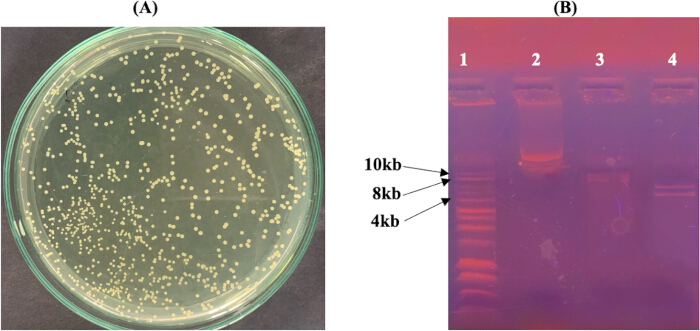
Şekil 4: Biyosorbent gen kasetini taşıyan rekombinant kromozomal entegrasyon vektörünün oluşturulması. (A) Rekombinant pKIKOArsBKm plazmidini taşıyan kanamisin-dirençli E. coli Pir1 kolonileri. (B) Rekombinant pKIKOArsBKm'nin restriksiyon enzim analizi. Şerit 1, 1 kb DNA merdiveni; şerit 2, sindirilmemiş rekombinant plazmid; şerit 3, NotI ile lineerleştirilmiş plazmid (~8.9 kb); şerit 4, 4.2-kb vektör omurgasını ve 4.7-kb biyosorbent kasetini gösteren BamHI/SacI çift sindirimle ayrılmış plazmid. Kısaltmalar: DNA = deoksiribonükleik asit; kb = kilobaz; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Lineerleştirilmiş rekombinant pKIKOArsBKm konstrüktü, λ Red aracılı kromozomal entegrasyonu kolaylaştırmak için daha sonra elektrokompetan E. coli MG1655(pKD46) hücrelerine aktarıldı. Kanamisin içeren besiyerinde seçimin ardından, başarılı entegrasyonu doğrulamak amacıyla temsili rekombinant kolonilerden genomik DNA ve plazmit DNA izole edildi.
Şekil 5'te gösterildiği üzere, temsilci rekombinant kolonilerden genomik DNA izole edilmiş (Şerit 1), plazmid izolasyonu sonrası ise tespit edilebilir herhangi bir plazmid DNA'sı gözlenmemiştir (Şerit 2). Tablo 2'de açıklanan gene özgü primerlerin kullanıldığı PCR amplifikasyonu, genomik DNA preparasyonundan cadD (619 bp), cadA (2.564 bp) ve mt (154 bp) için beklenen boyutlarda amplikonlar oluşturmuştur (Şerit 4–6). Birlikte değerlendirildiğinde, tespit edilebilir plazmid DNA'sının yokluğu ve genomik DNA preparasyonunda üç hedef genin saptanması, çok genli biyosorbent kasetinin E. coli MG1655'e kromozomal entegrasyonu ile tutarlı kanıtlar sağlamıştır.
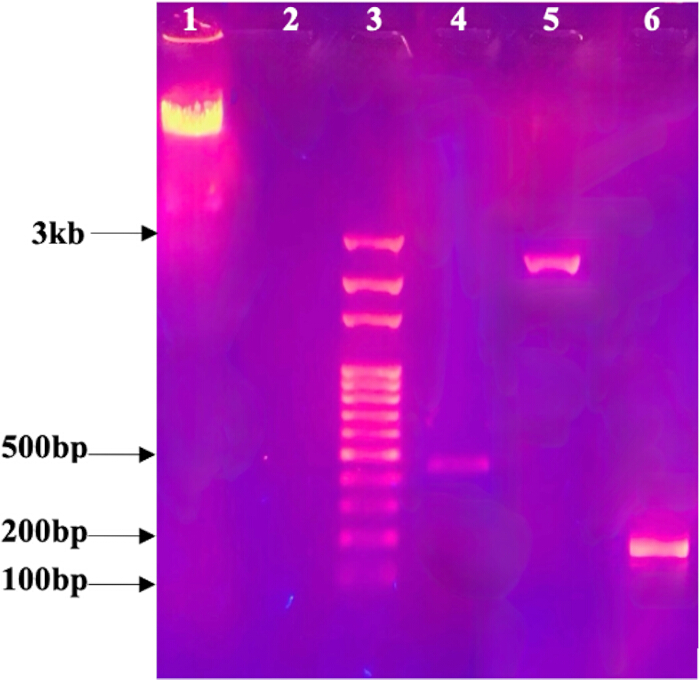
Şekil 5: Biyosorbent gen kasetini taşıyan rekombinant E. coli suşunun moleküler değerlendirmesi. Şerit 1, rekombinant E. coli MG1655'den izole edilen genomik DNA; şerit 2, ilgili rekombinant koloniden yapılan plazmid izolasyonu, tespit edilebilir plazmid DNA'sının yokluğunu göstermektedir; şerit 3, 100 bp DNA merdiveni; şerit 4, cadD'nin PCR amplifikasyonu (619 bp); şerit 5, cadA'nın PCR amplifikasyonu (2,564 bp); şerit 6, mt'nin PCR amplifikasyonu (154 bp). Kısaltmalar: DNA = deoksiribonükleik asit; PCR = polimeraz zincir reaksiyonu; bp = baz çifti; mt = metallotiyonein; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Hedef DNA dizisi | Primer adı | Oligonükleotid dizisi (5’→3’) | *Tan (℃) | PCR ürününün beklenen boyutu (bp) |
| cadD | SD-EF | GAATTCATGATTCA GACTATTGTAACTG | 50 | 619 |
| SE-XHR | CTCGAGAAATATAA ATCCTAAAATTGTTTG | |||
| cadA | PD-BF | GGATCCGACACAAT GAAACACGAAGA | 56 | 2564 |
| PF-XHR | CCGCTCGAGCGGCAT GTAATTTTTCATTTTGA GTAAGCGAAG | |||
| mt | SEmtF | GGAATTCATGGAAAAAT GTGCGAGACCGAAC | 48 | 154 |
| SEmtR | CCGCTCGAGTGCAGTT GCACAGCTACAATC |
Tablo 2: cadD, cadA, ve mt. amplifikasyonu için primer detayları. Tablo; cadD, cadA ve mt'nin PCR amplifikasyonu için kullanılan ileri ve geri primer dizilerini, ilgili bağlanma sıcaklıklarını ve beklenen amplikon boyutlarını listeler. *Tan- PCR'da her bir primer çifti için uygulanan bağlanma sıcaklığı.
Rekombinant E. coli MG1655'den kanamisin direnç belirtecinin eksizyonunun değerlendirilmesi
pCP20 yardımcı plazmidi ile transformasyonun ardından, ampicillin (100 µg/mL) eklenmiş LB agar üzerinde ampicillin'e dirençli koloniler elde edildi. Temsili transformantlardan plazmid izolasyonu yapıldıktan sonra pCP20'ye karşılık gelen plazmid DNA'sı tespit edildi (Şekil 6).
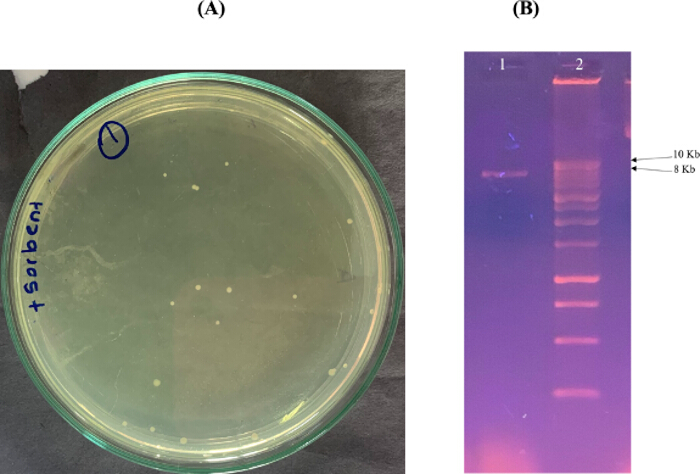
Şekil 6: Kromozomal olarak entegre biyosorbent kaseti taşıyan rekombinant E. coli MG1655'e pCP20 transformasyonunun doğrulanması. (A) pCP20 yardımcı plazmitin aktarılmasının ardından ampisilinle dirençli transformantlar. (B) pCP20 plazmidinin varlığını doğrulayan agaroz jel elektroforezi. Şerit 1, izole edilmiş pCP20 plazmidi (~9.3 kb); şerit 2, 10 kb DNA merdiveni. Kısaltmalar: DNA = deoksiribonükleik asit; kb = kilobaz; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
FLP rekombinaz aracılı işaretçi eksizyonu ve pCP20 temizleme için sıcaklık işleminin ardından, rekombinant koloniler antibiyotik duyarlılık testi ile değerlendirildi. Şekil 7'de gösterildiği gibi, test edilen koloniler antibiyotiksiz LB agarda büyümüş, ancak kanamisin (50 µg/mL) veya ampisilin (100 µg/mL) eklenmiş LB agarda büyümemiştir. Bu antibiyotik duyarlılık fenotipi, işaretçi eksizyonu ve plazmit temizleme prosedürünü takiben kanamisin direncinin ve ampisilin direncinin kaybıyla uyumluydu.
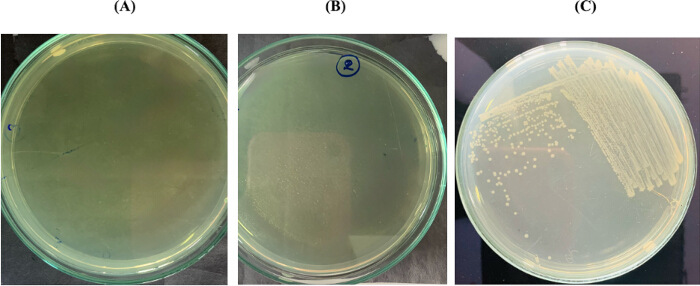
Şekil 7: Kanamisin direnç belirtecinin flippaz aracılı eksizyonunun ve pCP20 yardımcı plazmidin temizlenmesinin doğrulanması. (A) Kanamisin (50 µg/mL) ile desteklenmiş Luria-Bertani agarda bakteriyel büyüme yok. (B) Ampisilin (100 µg/mL) ile desteklenmiş LB agarda bakteriyel büyüme yok. (C) Antibiyotiksiz LB agarda normal bakteriyel büyüme, belirteç eksizyonu sonrası hücre canlılığını doğrulamaktadır. Kısaltmalar: LB = Luria-Bertani; E. coli = Escherichia coli. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Biosorbent konstrüktü taşıyan rekombinant E. coli MG1655'nin floresan mikroskopi analizi
Kromozomal entegrasyon prosedürü ile oluşturulan rekombinant E. coli MG1655, 1 ila 1.000 ppm aralığındaki konsantrasyonlarda Cd2⁺, Zn2⁺ ve Pb2⁺ maruziyetinin ardından saptanabilir yeşil floresan açısından değerlendirildi. Test edilen metal konsantrasyonlarının hiçbirinde rekombinant hücrelerde saptanabilir yeşil floresan gözlenmedi. Dört kontrol örneğinin tamamında herhangi bir floresan sinyali tespit edilmedi.
Tartışma
Burada sunulan protokol, ağır metal direnci ve sekestrasyonu ile ilişkili genler içeren, kromozomal olarak entegre edilmiş, marker-free (işaretleyici içermeyen), çok genli rekombinant bir E. coli suşu oluşturmak için bir iş akışını tanımlamaktadır. Yöntem; çok genli bir kasetin montajını, pKIKOArsBKm entegrasyon vektörüne klonlamayı, λ Red aracılı kromozomal entegrasyonu, FLP-FRT aracılı seçilebilir marker eksizyonunu, rekombinant kolonilerin moleküler değerlendirmesini ve floresan mikroskobisini birleştirmektedir. Bu yaklaşım, nihai konstrüktün çok kopya bir plazmid üzerinde tutulmasından kaçınmak ve kanamisin direnç marker'ı içermeyen bir rekombinant suş üretmek için tasarlanmıştır.
Bu protokolün başarılı bir şekilde uygulanması için birkaç adım kritiktir. λ Red aracılı entegrasyon sırasında, rekombinasyon öncesinde sıcaklığa duyarlı pKD46 plazmidinin 30 °C'de tutulması ve λ Red rekombinasyon proteinlerinin L-arabinose ile indüklenmesi, etkili rekombineering için önemlidir16,17. Elektrokompetan E. coli MG1655(pKD46) hücrelerinin hazırlanması da hücrelerin ve yıkama solüsyonlarının düşük sıcaklıkta tutulmasını ve elektroporasyon öncesinde kalıntı tuzların minimize edilmesini gerektirir. Lineer DNA, λ Red aracılı rekombinasyon için substrat görevi gördüğünden, rekombinant pKIKOArsBKm konstrüktü elektroporasyondan önce tamamen lineerize edilmeli ve saflaştırılmalıdır. pKIKO entegrasyon sisteminin daha önce nispeten büyük DNA insertlerini kabul ettiği ve etkili kromozomal entegrasyonu desteklediği bildirilmiştir18,19. Seçimlemenin ardından, aday koloniler hem plazmid hem de genomik DNA preparatları kullanılarak değerlendirilmelidir. Bu çalışmada, genomik DNA preparatında saptanabilir plazmid DNA'sının yokluğu ile birlikte cadD, cadA ve mt genlerinin amplifikasyonu, kromozomal entegrasyonla tutarlı kanıtlar sağlamıştır. Ancak, bu analizler tek başına kesin genomik entegrasyon olayını belirlemez. Eklem yerine özgü PCR, entegrasyon sınırları boyunca sekanslama veya tüm genom sekanslaması, protokolün gelecekteki uygulamalarında entegrasyon bölgesinin daha doğrudan doğrulanmasını sağlayabilir.
Marker eksizyonu yöntemin bir başka kritik bileşenidir. FLP-FRT rekombinasyon sistemi, genom mühendisliği sonrası seçilebilir antibiyotik direnç markerlarının kaldırılmasına olanak sağlar16,20. Sıcaklığa duyarlı pCP20 yardımcı plazmidin aktarılmasının ardından transformantlar 30 °C'de tutulur, ardından FLP aracılı marker eksizyonunu ve pCP20 kaybını teşvik etmek için 42 °C'de inkübe edilir. Koloniler daha sonra antibiyotiksiz, kanamisin içeren ve ampisilin içeren besiyerlerinde değerlendirilmelidir. Antibiyotiksiz besiyerinde büyüme ile birlikte kanamisin ve ampisilin içeren besiyerlerinde büyümenin olmaması, eksizyon ve kürleme prosedürünün ardından marker içermeyen aday kolonilerin belirlenmesi için pratik bir tarama yaklaşımı sunar. Antibiyotiğe dirençli koloniler kalırsa, daha ileri karakterizasyon öncesinde ek tek koloni saflaştırması ve sıcaklığa bağlı kürleme gerekebilir. Burada kullanılan kromozomal entegrasyon stratejisi, geleneksel plazmid tabanlı ekspresyon yöntemlerinden farklıdır.
Plazmid sistemleri daha yüksek gen kopya sayıları sağlayabilir ve bu nedenle güçlü rekombinant protein ekspresyonu gerektiğinde avantajlı olabilir. Ancak, plazmid tabanlı sistemler; plazmid segregasyonundan, değişken kopya sayısından, metabolik yükten ve plazmidin korunması için seçici basınca olan bağımlılıktan etkilenebilir. Kromozomal entegrasyon, nihai biyosorbent kasetinin ekstrkromozomal bir plazmid olarak korunması gereksinimini ortadan kaldırır ve daha kalıcı bir genetik konfigürasyon sağlamak için bu protokolde seçilmiştir. Önceki çalışmalar, kromozomal entegrasyonu hücre bölünmesi sırasında genetik korunumu iyileştiren bir yaklaşım olarak tanımlamıştır21,22. Bununla birlikte, mevcut çalışmada oluşturulan rekombinant suşun uzun vadeli genetik stabilitesi doğrudan değerlendirilmemiştir. Bu nedenle, iyileştirilmiş genetik stabilite, bu protokolün deneysel olarak kanıtlanmış bir sonucu olarak değerlendirilmemelidir. Çok genli tasarım, yöntemin bir diğer özelliğidir. Tek bir metal ilişkili gen girmek yerine, kaset; cadA, cadD ve metallotiyoneini (mt), bir Lpp-OmpA yüzey sergileme tasarımı ve bir gfp reporter ile birleştirir. Önceki rekombinant bakteriyel biyosorbent stratejileri genellikle tekil metal bağlayıcı proteinlere veya direnç belirleyicilerine odaklanmıştır11,13,23,24. Burada kullanılan modüler konfigürasyon, birden fazla genetik bileşenin tek bir kromozomal entegrasyon iş akışına dahil edilmesine olanak tanır. Bu nedenle protokol; genlerin, promotörün, reporterın veya yüzey sergileme bileşenlerinin amaçlanan uygulamaya göre değiştirilmesiyle diğer çok genli konstrüktlar için uyarlanabilir. Yine de, kaset boyutunun ve eksprese edilen gen sayısının artması rekombinasyon verimliliğini, transkripsiyonu, translasyonu ve hücresel metabolik yükü etkileyebilir ve yöntem uyarlanırken dikkate alınmalıdır.
Mevcut çalışmanın önemli bir sınırlaması, mühendislik ürünü kasetin fonksiyonel ekspresyonunun test edilen deneysel koşullar altında gösterilememiş olmasıdır. Rekombinant hücrelerin Cd2⁺, Zn2⁺ veya Pb2⁺ ile maruz bırakılmasının ardından saptanabilir bir GFP floresansı gözlenmemiştir. Sonuç olarak, mevcut veriler, tüm çoklu gen kasetinin fonksiyonel ekspresyonunu kanıtlamamakta veya rekombinant suş tarafından ağır metal biyosorpsiyonunu göstermemektedir. Kromozomal entegrasyon genellikle çok kopyalı plazmid sistemlerinden daha düşük gen kopya sayıları verir ve rekombinant ekspresyon, genomik insersiyon bölgesinden ve promotör aktivitesinden de etkilenebilir22,25. Ağır metal stresine verilen hücresel yanıtlar, heterolog gen ekspresyonunu ek olarak etkileyebilir26,27. Bu faktörler, mevcut çalışmada saptanabilir floresansın yokluğu için deneysel olarak kanıtlanmış açıklamalardan ziyade olası değerlendirmeleri temsil etmektedir. Bu protokol uygulandığında, saptanabilir floresansın yokluğu; kültür koşullarının, metal maruziyet koşullarının, promotör aktivitesinin ve raporlayıcı ekspresyonun değerlendirilmesini gerektirmelidir. Transkripsiyon ve protein üretiminin bağımsız ölçümleri, yetersiz ekspresyonu floresans tespitindeki sınırlamalardan ayırmaya yardımcı olacaktır. Birden fazla rekombinant proteinin eş zamanlı ekspresyonu, özellikle stresli kültür koşulları altında konakçı üzerinde ek metabolik talepler oluşturabilir28.
Saptanabilir GFP floresansının yokluğunun nedeni belirlenmeden önce bu olasılıkların doğrudan deneysel olarak değerlendirilmesi gerekir. Protokolün ayrıca, nihai rekombinant suşun karakterizasyonunda sınırlamaları vardır. Gene özgü PCR ve saptanabilir plazmid DNA'nın yokluğu, kromozomal entegrasyonla tutarlı kanıtlar sunar ancak kesin entegrasyon bölgesi dizilimini veya uzun vadeli genetik stabiliteyi belirlemez. Antibiyotik duyarlılığı, marker eksizyonu sonrası pratik bir tarama sağlar ancak daha doğrudan bir onay gerektiğinde FRT içeren bölgenin moleküler analizi ile desteklenebilir. Ek olarak, floresans mikroskobu saptanabilir GFP floresansının kalitatif bir değerlendirmesini sağlar ancak transkripsiyonun veya protein bolluğunun kantitatif ölçümlerinin yerini tutmaz. Bu nedenle, kantitatif ters transkripsiyon PCR, protein analizi, kantitatif floresans ölçümleri ve dizileme tabanlı doğrulama, bu protokol kullanılarak üretilen suşların karakterizasyonunu güçlendirebilir.
Mühendislik ürünü suşun fonksiyonel bir ağır metal biyosorbeni olarak değerlendirilebilmesi için daha fazla optimizasyon ve fonksiyonel karakterizasyon gereklidir. Biyosorpsiyon performansını belirlemek için metal alımının veya uzaklaştırılmasının doğrudan ölçümleri gereklidir. Protein ekspresyonu ve lokalizasyonu, özellikle Lpp-OmpA-metallothionein füzyonu için deneysel olarak doğrulanmalıdır. Kromozomal entegrasyonun ilgili kültür koşulları altında beklenen genetik stabiliteyi sağlayıp sağlamadığını belirlemek için uzun süreli pasajlama deneyleri gerekecektir. Markörsüz genom mühendisliği, birden fazla seçilebilir markör birikimi olmadan sonraki kromozomal modifikasyon aşamalarını kolaylaştırabilir ve çoklu gen konstrüktlerinin daha ileri geliştirilmesi için fırsatlar sunabilir15,27.
Genel olarak bu protokol, kromozomal olarak entegre edilmiş, markörsüz ve çok genli rekombinant bir bakteriyel suşun oluşturulması ve değerlendirilmesi için metodolojik bir çerçeve sunmaktadır. Modüler tasarımı, metal ilişkili genlerin diğer kombinasyonlarına, raporlayıcı sistemlere veya sentetik biyoloji uygulamalarına uyarlanabilir. Mevcut çalışma, mühendislik ve tarama iş akışını kurmaktadır; çevresel uygulamalar veya biyoremediasyon uygulamalarıyla ilgili sonuçlar çıkarılmadan önce fonksiyonel ekspresyon, uzun süreli genetik stabilite, protein lokalizasyonu ve ağır metal biyosorpsiyon performansı deneysel olarak doğrulanmalıdır.
Açıklamalar
Yazarların beyan edecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, Kolombo Üniversitesi'nin AP/3/2/2018/CG/33 numaralı araştırma bursu tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.22 μm membran filtre | ThermoFisher Scientific | 596-3320 | Yok |
| 1 kb DNA markörü | Promega Corporation | G5711 | Yok |
| 10 kb DNA merdiveni | N/A | N/A | Şekil 6'da kullanılan moleküler boyut markörü |
| 100 bp DNA merdiveni | N/A | N/A | Şekil 5'te kullanılan moleküler boyut markörü |
| 10X T4 DNA ligaz tamponu | Promega Corporation | C1263 | Yok |
| 6× DNA yükleme tamponu | N/A | N/A | Agaroz jel elektroforezi için kullanıldı |
| Agaroz | Molecular Designs | A113-3 | Yok |
| Amonyum asetat | N/A | N/A | Genomik DNA ekstraksiyonu için 7,5 M çözelti olarak hazırlandı |
| Ampisilin | ThermoFisher Scientific | J60977.14 | Yok |
| BamHI restriksiyon enzimi | New England BioLabs | R0136S | Yok |
| Kadmiyum klorür | ThermoFisher Scientific | 219141000 | Yok |
| Kalsiyum klorür | ThermoFisher Scientific | 012316.A7 | Yok |
| Santrifüj | ThermoFisher Scientific | Heraeus Fresco 21 / 75002478 | Yok |
| Deiyonize su | ThermoFisher Scientific | 751-610 | Yok |
| DNA Safe Stain | Molecular Designs | C138 | Yok |
| dNTP Karışımı | Promega Corporation | U1511 | Yok |
| Elektroforez ekipmanı | BioRad | 1704405 | Yok |
| Elektroporasyon küveti | BioRad | 1652086 | Yok |
| Elektroporatör | BioRad | 1652100 | Yok |
| Escherichia coli BL21(DE3) | University of Colombo, Department of Chemistry | N/A | Yok |
| Escherichia coli MG1655 | Department of Life Science and Technology, Institute of Science Tokyo, Yokohama, Japan | N/A | Yok |
| Escherichia coli Pir1 kompetan hücreler | ThermoFisher Scientific | C101010 | Yok |
| Escherichia coli BL21(DE3) kompetan hücreler | ThermoFisher Scientific | C600003 | Yok |
| Escherichia coli pQBIT-GFP-T7 plazmidi içeren JM109 suşu | Department of Life Science and Technology, Institute of Science Tokyo, Yokohama, Japan | N/A | Yok |
| ET Tamponu | N/A | N/A | 1 L ET tamponu hazırlamak için, 6,06 g Tris bazını ve 3,72 g EDTA'yı yaklaşık 800 mL distile su içinde çözün. pH değerini HCl kullanarak gerekli değere ayarlayın, iyice karıştırın ve son hacmi distile su ile 1 L'ye tamamlayın |
| Etanol | ThermoFisher Scientific | T038181000CS | Yok |
| Etilendiamintetraasetik Asit (EDTA) | ThermoFisher Scientific | 17892 | Yok |
| Floresan mikroskobu | Coastal Microscopes | Olympus BX53/ 11679 | Yok |
| Gel elektroforez düzeneği | Bio Rad | 1704405 | Yok |
| Glasyal asetik asit | MilliporeSigma | PHR1748 | Yok |
| Gliserol | MilliporeSigma | G5516 | Yok |
| Guanidin tiyosiyanat | ThermoFisher Scientific | 433941000 | Yok |
| Hidroklorik asit (HCl) | MilliporeSigma | 1.00317 | Yok |
| Kanamisin | ThermoFisher Scientific | 15160054 | Yok |
| L-Arapinoz | ThermoFisher Scientific | 365185000 | Yok |
| Kurşun nitrat | ThermoFisher Scientific | 211565000 | Yok |
| Luria–Bertani (LB) agar | Molecular Designs | C120 | Yok |
| Luria–Bertani (LB) besiyeri | Molecular Designs | C121 | Yok |
| Lizis tamponu | N/A | N/A | Lizis tamponunu hazırlamak için, nihai konsantrasyonları 0,2 N NaOH ve %1 (w/v) SDS olacak şekilde uygun hacimlerde 5 M NaOH ve %20 (w/v) SDS stok çözeltilerini birleştirin. Distile su ile gerekli nihai hacme ayarlayın ve iyice karıştırın. |
| Lizozim | ThermoFisher Scientific | 89833 | Yok |
| Magnezyum klorür (MgCl2) | N/A | N/A | PCR reaksiyonlarında 1,5 mM nihai konsantrasyonda kullanıldı |
| Nötralizasyon çözeltisi | N/A | N/A | 3 M potasyum asetat ve glasyal asetik asit kullanarak nötralizasyon tamponunu hazırlayın. Çözeltiyi distile su ile gerekli nihai hacme ayarlayın ve iyice karıştırın. |
| NotI restriksiyon enzimi | New England BioLabs | R0189S | Yok |
| pCP20 | Department of Life Science and Technology, Institute of Science Tokyo, Yokohama, Japan | N/A | Yok |
| PCR cihazı | ThermoFisher Scientific | Applied Biosystems MiniAmp / A37834 | Yok |
| E. coli BL21(DE3)'te pET-21a plazmidi | University of Colombo, Department of Chemistry | N/A | Yok |
| Fosfat tamponlu salin | MilliporeSigma | P4474 | Yok |
| pKD46 | Creative Biogene | OVT2612 | Yok |
| pKIKOArsBKm | Addgene | 46766 | Yok |
| Potasyum asetat | MilliporeSigma | 236497 | Yok |
| Restriksiyon enzim tamponu | N/A | N/A | Restriksiyon enzim sindirim reaksiyonları için kullanıldı |
| SacI restriksiyon enzimi | New England BioLabs | R0156 | Yok |
| Çalkalamalı inkübatör | Crystal technology and industries | IS-A6 | Yok |
| Sodyum asetat | ThermoFisher Scientific | A13184.30 | Yok |
| Sodyum dodesil sülfat (SDS) | ThermoFisher Scientific | 15525017 | Yok |
| Sodyum hidroksit (NaOH) | MilliporeSigma | 567530 | Yok |
| Süper optimal besiyeri (SOB) ortamı | MilliporeSigma | H8032 | Yok |
| Katabolik represörlü süper optimal ortam (SOC) besiyeri | ThermoFisher Scientific | J60255.AK | Yok |
| T4 DNA ligaz | Promega Corporation | M1801 | Yok |
| TAE Tamponu | ThermoFisher Scientific | B49 | Yok |
| Taq DNA polimeraz | Promega Corporation | M3001 | Yok |
| TE tamponu | MilliporeSigma | 93283 | Yok |
| TE dengelenmiş fenol | ThermoFisher Scientific | 15513039 | Yok |
| Tris bazı | N/A | N/A | ET tamponu hazırlamak için kullanıldı |
| Üniversal PCR tamponu | Promega Corporation | M7911 | Yok |
| UV trans-ilüminatör | Labexchange | TFX-35M, 021425 | Yok |
| UV/Görünür bölge spektrofotometresi | Microbiotests | Jenway 6300, TE15 | Yok |
| Su banyosu | ThermoFisher Scientific | TSGP05 | Yok |
| XhoI restriksiyon enzimi | New England BioLabs | R0146S | Yok |
| Çinko klorür | ThermoFisher Scientific | A16281.36 | Yok |
| Primerlar | |||
| cadD ileri primer (SD-EF) | N/A | N/A | 5′-GAATTCATGATTC AGACTATTGTAACTG-3′ |
| cadD geri primer (SE-XHR) | N/A | N/A | 5′-CTCGAGAAATATAA ATCCTAAAATTGTTTG-3′ |
| cadA ileri primer (PD-BF) | N/A | N/A | 5′-GGATCCGACACAAT GAAACACGAAGA-3′ |
| cadA geri primer (PF-XHR) | N/A | N/A | 5′-CCGCTCGAGCGGCA TGTAATTTTTCATTTTGA GTAAGCGAAG-3′ |
| mt ileri primer (SEmtF) | N/A | N/A | 5′-GGAATTCATGGAAAAAT GTGCGAGACCGAAC-3′ |
| mt geri primer (SEmtR) | N/A | N/A | 5′-CCGCTCGAGTGCAGTTG CACAGCTACAATC-3′ |
| Yazılım/Araç Adı | Versiyon/Sunucu | URL | Erişim tarihi |
| ExPASy araçları | TMPRED Sunucusu | https://embnet.vital-it.ch/cgi-bin/TMPRED_form_parser | 30-01-2023 |
| ExPASy Translate | ExPASy Çeviri Aracı | https://web.expasy.org/translate/ | N/A |
| I-TASSER | N/A | https://zhanggroup.org/I-TASSER/ | 24-02-2023 |
| NCBI GenBank | GenBank veri tabanı | https://www.ncbi.nlm.nih.gov/genbank/ | N/A |
| SnapGene | v.7.1.2 | N/A | N/A |
| TMHMM | v. 2.0 | https://services.healthtech.dtu.dk/services/TMHMM-2.0/ | 16-01-2023 |
Kaynaklar
- Volesky B. Detoxification of metal-bearing effluents: biosorption for the next century. Hydrometallurgy. 2001;59(2-3):203-16.
- Ayangbenro AS, Babalola OO. A new strategy for heavy metal polluted environments: a review of microbial biosorbents. Int J Environ Res Public Health. 2017;14(1):94.
- Das S, Dash HR, Chakraborty J. Genetic basis and importance of metal resistant genes in bacteria for bioremediation of contaminated environments with toxic metal pollutants. Appl Microbiol Biotechnol. 2016;100(7):2967-84.
- Volesky B. Biosorption of heavy metals. Biotechnol Prog. 1995;11(3):235-50.
- Barkay T, Miller SM, Summers AO. Bacterial mercury resistance from atoms to ecosystems. FEMS Microbiol Rev. 2003;27(2-3):355-84.
- Cervantes C, et al. Interactions of chromium with microorganisms and plants. FEMS Microbiol Rev. 2001;25(3):335-47.
- Cai L, Liu G, Rensing C, Wang G. Genes involved in arsenic transformation and resistance associated with different levels of arsenic-contaminated soils. BMC Microbiol. 2009;9:4.
- Silver S, Phung LT. Genes and enzymes involved in bacterial oxidation and reduction of inorganic arsenic. Appl Environ Microbiol. 2005;71(2):599-608.
- Kumari WMNH, et al. Characterization of a Bacillus megaterium strain with metal bioremediation potential and in silico discovery of novel cadmium binding motifs in the regulator, CadC. Appl Microbiol Biotechnol. 2021;105(6):2573-86.
- Hamer DH. Metallothionein. Annu Rev Biochem. 1986;55:913-51.
- Kazy SK, D’Souza SF, Sar P. Uranium and thorium sequestration by a Pseudomonas sp.: mechanism and chemical characterization. J Hazard Mater. 2009;163(1):65-72.
- Yan G, Viraraghavan T. Heavy-metal removal from aqueous solution by fungus Mucor rouxii. Water Res. 2003;37(18):4486-96.
- Pazirandeh M, Wells B, Ryan RL. Development of bacterium-based heavy metal biosorbents: enhanced uptake of cadmium and mercury by Escherichia coli expressing a metal binding motif. Appl Environ Microbiol. 1998;64(10):4068-72.
- Gao H, Jiang X, Pogliano K, Aronson AI. The E1β and E2 subunits of the Bacillus subtilis pyruvate dehydrogenase complex are involved in regulation of sporulation. J Bacteriol. 2002;184(10):2780-8.
- Stathopoulos C, Georgiou G, Earhart CF. Characterization of Escherichia coli expressing an Lpp′OmpA(46-159)-PhoA fusion protein localized in the outer membrane. Appl Microbiol Biotechnol. 1996;45(1-2):112-9.
- Datsenko KA, Wanner BL. One-step inactivation of chromosomal genes in Escherichia coli K-12 using PCR products. Proc Natl Acad Sci U S A. 2000;97(12):6640-5.
- Yu D, et al. An efficient recombination system for chromosome engineering in Escherichia coli. Proc Natl Acad Sci U S A. 2000;97(11):5978-83.
- Sabri S, et al. Knock-in/Knock-out (KIKO) vectors for rapid integration of large DNA sequences, including whole metabolic pathways, onto the Escherichia coli chromosome at well-characterised loci. Microb Cell Fact. 2013;12:60.
- Wang J, et al. Converting Escherichia coli MG1655 into a chemical overproducer through inactivating defense system against exogenous DNA. Synth Syst Biotechnol. 2020;5(4):333-42.
- Cherepanov PP, Wackernagel W. Gene disruption in Escherichia coli: TcR and KmR cassettes with the option of Flp-catalyzed excision of the antibiotic-resistance determinant. Gene. 1995;158(1):9-14.
- Liu M, et al. Metabolic engineering of Escherichia coli to improve recombinant protein production. Appl Microbiol Biotechnol. 2015;99(24):10367-77.
- Persad AK, Williams ML, LeJeune JT. Rapid loss of a green fluorescent plasmid in Escherichia coli O157. AIMS Microbiol. 2017;3(4):872-84.
- Jeiranikhameneh M, et al. Designing novel construction for cell surface display of protein E on Escherichia coli using non-classical pathway based on Lpp-OmpA. AMB Express. 2017;7(1):53.
- Dissanayake DMDC, Kumari WMNH, Chandrasekharan NV, Wijayarathna CD. Isolation of heavy metal-resistant Staphylococcus epidermidis strain TWSL_22 and evaluation of heavy metal bioremediation potential of recombinant E. coli cloned with isolated cadD. FEMS Microbiol Lett. 2023;370:fnad092.
- Bryant JA, Sellars LE, Busby SJW, Lee DJ. Chromosome position effects on gene expression in Escherichia coli K-12. Nucleic Acids Res. 2014;42(18):11383-92.
- Busuioc M, Ciofu O, Høiby N. Cellular responses to environmental stress in bacteria. FEMS Microbiol Rev. 2010;34(6):1042-64.
- Outten FW, Outten CE, Hale J, O'Halloran TV. Transcriptional activation of an Escherichia coli copper efflux regulon by the chromosomal MerR homologue, CueR. J Biol Chem. 2001;276(9):6346-54.
- Zaslaver A, et al. Just-in-time transcription program in metabolic pathways. Nat Genet. 2004;36(5):486-91.
- Thomason LC, Costantino N, Shaw DV, Court DL. Multicopy plasmid modification with phage lambda Red recombineering. Plasmid. 2007;58(2):148-58.