Alım analizleri ve farmakolojik perturbasyonu birleştiren, sağlam Drosophila kanat imaginal disklerindeki membran proteini trafiğini neredeyse izotropik süper çözünürlükte görselleştirmek için kullanılan üç boyutlu uyarılmış emisyon yok etme (3D STED) iş akışını sunuyoruz.
Yöntem makalesi
Drosophila’da Süper-Çözünürlüklü Nanoskopi Kullanarak Tüm Doku Bağlamında Protein Trafiğinin Görülemesi
Bu makalede
Özet
Özet
Meyve sineği Drosophila melanogaster, korunmuş gelişimsel ve hücresel sinyal yolaklarını in vivo incelemek için yaygın olarak kullanılır. Wnt sinyalizasyonu dahil birçok sinyal yolu, sıkı bir şekilde düzenlenen salgılama, endositoz ve hücre içi taşınma olaylarına bağlıdır. Ancak, kanat imajinal diskler gibi bozulmamış epitel dokulardaki membranla ilişkili proteinlerin dinamiklerini görselleştirmek, bu hücrelerin küçük boyutu ve yoğun paketlenmiş kolumnar organizasyonu nedeniyle zor olmaya devam etmektedir. Burada, Drosophila kanat imajinal disklerinde üç boyutlu uyarılmış emisyon kaybı (3D STED) nanoskopisini Alım (Uptake) analizleri ve farmakolojik perturbasyonlarla birleştiren bir protokol sunuyoruz. Bu iş akışı, bozulmamış doku mimarisi içindeki membranla ilişkili protein dinamiklerinin neredeyse izotropik çözünürlükte süper-çözünürlüklü görüntülenmesini sağlar. Örnek olarak Wingless salgılayan hücreleri kullanarak, Wingless'in (Wg) apikal membrandaki lokalizasyonunu ve taşınmasını görselleştiriyoruz. Dinamik taşınma süreçlerini analiz etmek için, görüntüleme iş akışı, belirli bir zaman penceresi içinde salgılanan ve yeniden internalize edilen proteinleri seçici olarak işaretleyen bir alım analiziyle birleştirilmiştir. Kimyasal inhibitörler ve 3D STED nanoskopisi kullanılarak yapılan görselleştirme ile birlikte bu yaklaşım, membran taşınma dinamiklerinin fonksiyonel analizini mümkün kılar. Birlikte bu iş akışı, Drosophila'nın tüm doku örneklerinde membran organizasyonu ve protein taşınmasını subselüler çözünürlükte incelemek için çok yönlü bir çerçeve sunmaktadır.
Giriş
Meyve sineği Drosophila melanogaster; gelişim biyolojisi, evrim, davranış ve kanser ile diğer insan hastalıklarının incelenmesi dahil olmak üzere biyomedikal araştırmalarda yaygın olarak kullanılan bir model organizmadır1,2. Birçok temel hücresel sinyalizasyon yolu Drosophila ve omurgalılar arasında yüksek düzeyde korunmuştur; bu durum, söz konusu model sistemi korunmuş biyolojik mekanizmaların in vivo araştırılması için özellikle değerli kılmaktadır.
Bu protokolde, Wingless (Wg)/Wnt sinyal yolu içindeki membran ilişkili dinamikleri incelemek için Drosophila kanat imajinal diski model sistem olarak kullanılmıştır. Birçok gelişimsel sinyal yolu; sinyal moleküllerinin sıkı bir şekilde düzenlenen salgılanmasına, membran lokalizasyonuna, endositozuna ve hücre içi taşınmasına dayanır3. Bu durum, Wg'nin apikal membrandaki üretici hücrelerden salgılandığı ve glipkanlarla olan etkileşimler aracılığıyla komşu alıcı hücrelere taşındığı kanat imajinal diskinin dorsoventral (DV) sınırı için de geçerlidir4,5,6,7. Alıcı hücrelerde Wg, Frizzled reseptörlerine bağlanır ve downstream Wnt sinyalini aktive eder. DV sınırından uzağa taşınan Wg havuzuna ek olarak, Wg'nin bir kısmı üretici hücreler tarafından yeniden internalize edilir ve endozomal sistem aracılığıyla farklı hücre içi hedeflere taşınır8,9,10. Bu nedenle, DV sınırındaki Wg üreten hücreler, membran taşınımını, salgılama dinamiklerini ve sinyalleme aktivitesini düzenleyen hücresel mekanizmaları in vivo araştırmak için mükemmel bir model sunar.
Bununla birlikte, imaginal disk epitel hücrelerinin yüksek derecede koloner mimarisi, bireysel vezikülleri çözümlemek için konvansiyonel konfokal mikroskobinin sağlayabileceğinden daha yüksek ve daha izotropik bir çözünürlük gerektirdiğinden görselleştirmeyi zorlaştırmaktadır. Bu sınırlamaların üstesinden gelmek için, sağlam Drosophila dokularında süper-çözünürlüklü nanoskopi için doku hazırlama, boyama ve görüntüleme koşullarını optimize ettik. Spesifik olarak, epitelin apikal-bazal ekseni boyunca membranla ilişkili protein lokalizasyonunun ortogonal görselleştirilmesine olanak tanıyan üç boyutlu uyarılmış emisyon kaybı (3D STED) nanoskopi için bir iş akışı oluşturduk11,12. 3D STED, konvansiyonel konfokal mikroskopiye kıyasla geliştirilmiş aksiyel çözünürlük sağladığı için yoğun paketlenmiş dokularda ince hücre altı yapıların görselleştirilmesine olanak tanıdığından bu uygulama için özellikle uygundur13,14. Bu yaklaşımı kullanarak, kanat imaginal diskinin DV sınırındaki Wg salgılayan hücrelerin apikal membran bölgesini analiz ettik ve Wg'yi, Discs large 1 (Dlg1) veya Evenness interrupted/Wntless (Evi/Wls) gibi diğer membranla ilişkili proteinlerin yanında apikal membranda tespit ettik.
Protein taşınım dinamiklerini daha ayrıntılı incelemek için, bu görüntüleme iş akışı daha önce geliştirilmiş bir alım (uptake) testiyle15 birleştirilmiştir. Bu test, belirli bir zaman aralığında salgılanan ve ardından yeniden hücre içine alınan proteinlerin seçici olarak tespit edilmesini sağlayarak, plazma membranı üzerinden taşınan dinamik bir protein havuzunun görselleştirilmesine olanak tanır. Kullanım alanını genişletmek amacıyla Alım testi, farmakolojik perturbasyonlarla birleştirilmiş ve böylece spesifik hücresel süreçlerin membran taşınım dinamiklerini nasıl etkilediğinin analiz edilmesine imkan sağlanmıştır. Birlikte değerlendirildiğinde bu yaklaşımlar, protein taşınımı, salgı ve sinyal mekanizmalarını, doğal doku bağlamında ve yüksek uzamsal çözünürlükte incelemek için güçlü bir çerçeve sunmaktadır.
Ayrıca protokol, standart immünofloresan protokolleri de dahil olmak üzere geniş bir boyama yaklaşımı yelpazesiyle uyumludur. Floresan boyaların dahil edilmesi de mümkündür, bu da görselleştirilebilecek hücresel yapıların ve moleküler hedeflerin kapsamını daha da genişletir. Tüm durumlarda, floroforlar STED nanoskopisi ile uyumluluğa göre seçilmelidir. Mevcut protokol iki renkli (kırmızı ve uzak-kırmızı) 3D STED görüntülemeye odaklansa da, iş akışı ek floroforlara ve alternatif görüntüleme konfigürasyonlarına kolaylıkla uyarlanabilir; böylece çeşitli deneysel uygulamalar için esnekliği artırılabilir.
Bu protokol, STED süper çözünürlüklü nanoskopi ile sağlam Drosophila dokularındaki fonksiyonel perturbasyon yaklaşımlarını birleştirmek için çok yönlü bir çerçeve oluşturmaktadır. İş akışı, kompleks doku ortamlarında subselüler çözünürlükte membran organizasyonu, protein trafiği ve sinyalizasyon dinamiklerini araştıran gelecek çalışmalara temel sağlamaktadır.
Protokol
1. Kombine ex vivo inhibitör tedavisi ve alım analizi
NOT: Kullanılan kimyasallar ve materyaller hakkında detaylı bilgi için Materyal Tablosuna bakınız.
- Besiyeri ve çözelti hazırlama
- SchM+ besiyeri hazırlayın.
- Schneider böcek besiyerine %4 fetal sığır serumu (FBS) ekleyin ve iyice karıştırın.
NOT: SchM+ besiyeri, deney gününde taze olarak hazırlanmalıdır.
- Schneider böcek besiyerine %4 fetal sığır serumu (FBS) ekleyin ve iyice karıştırın.
- 1× PBS-T hazırlayın.
- 1× fosfat tamponlu saline (PBS) çözeltisine %0,1 Triton X-100 ekleyin ve iyice karıştırın.
- Kimyasal bileşik çözeltilerini hazırlayın.
UYARI: Aşağıdaki kimyasal bileşiklerin çoğu sitotoksik kabul edilir; bu nedenle uygun ekipman ve atık imha yöntemleri kullanılarak, çeker ocak altında dikkatli bir şekilde çalışılması esastır.- Dynasor2-24: Üretici talimatlarına uygun olarak Dynasor2-24'ü (Dyngo-4a olarak da bilinir) dimetil sülfoksit (DMSO) içinde çözerek 10 mM stok çözelti hazırlayın. Uygulama için, stok çözeltiyi SchM+ içinde sırasıyla 1:1000 veya 1:2000 oranında seyrelterek 10 µM veya 5 µM son konsantrasyonlar elde edin.
- DMSO kontrolü: DMSO'yu SchM+ içinde 1:1000 oranında seyrelterek her deneyde negatif kontrol olarak 200 µL kullanın.
- Alım deneyi için asit tamponu hazırlayın.
- dH2O içinde 0,1 M Glisin çözeltisi hazırlayın.
- pH değerini %37'lik HCl (hidroklorik asit) ile 3,5'e ayarlayın.
- SchM+ besiyeri hazırlayın.
- Örnek toplama
- Sinekleri 25 °C'de, 12/12 saatlik ışık/karanlık döngüsünde tutun.
- L3 (larval evre 3) larvalarını pens kullanarak viallerden toplayın ve her kuyucuğu SchM+ ile doldurulmuş 12 kuyucuklu cam boyama plakasına yerleştirin.
NOT: Her deneysel tekrarda her zaman kontrol örneklerini içerecek kadar doku hazırlayın. - Larvaları posterior uçtan açın ve ters çevirin.
- Dokuyu SchM+ içinde tutarak, ters çevrilmiş larval dokusundaki bağırsak ve yağ vücudunu mümkün olduğunca eksiksiz şekilde çıkarın.
- Ardından, dokuyu SchM+ içeren 0,2 mL'lik bir PCR tüpüne aktarın.
NOT: Dokunun tamamen gömülmesini ve serbest hareket etmesini sağlamak için her polimeraz zincir reaksiyonu (PCR) tüpüne yalnızca 6-7 adet ters çevrilmiş larva yerleştiriyoruz.
NOT: Boyama sırasında artefaktların oluşmasını önlemek için tüpün doku ile aşırı doldurulmasından kaçınılmalıdır. Bu çalışmada kullanılan kimyasallar ve malzemeler hakkında detaylı bilgi için Malzeme Tablosu'na bakınız.
- Ex vivo inhibitör uygulaması ve alım deneyi
- Örnekteki SchM+ besiyerini uzaklaştırın.
- Gerektiği gibi, önceden hazırlanmış kimyasal bileşik çözeltisini ekleyin; örneğin, 200 µL 5 µM Dynasor2-24 çözeltisi.
UYARI: Bu kimyasal bileşikler sitotoksik kabul edilir; bu nedenle uygun ekipman ve atık imha yöntemleri kullanılarak, çeker ocak altında dikkatli bir şekilde çalışılması esastır. - Negatif kontrolü temsil etmek üzere, kontrol örneğine 200 µL DMSO (1:1000) çözeltisi ekleyin.
- Alım deneyi için (Witte et al., 202115), ilaç çözeltisine primer antikor ekleyin: Wg tespiti için anti-Wg'yi 1:20 seyreltmede, yeşil floresan protein (GFP) etiketli proteinlerin tespiti için anti-GFP'yi 1:40 seyreltmede kullanın.
- Örnekleri oda sıcaklığında (RT), karanlıkta 90 dakika inkübe edin.
NOT: Alım deneyi isteğe bağlıdır ve ihtiyaç duyulmadığı takdirde protokolden kolayca çıkarılabilir. Ayrıca, deneysel soruya bağlı olarak diğer kimyasal bileşikler de kullanılabilir. Bileşik için titrasyon yapılması ve her bir uygulama için en iyi konsantrasyonun belirlenmesi önerilir. Bu çalışmada kullanılan kimyasallar ve malzemeler hakkında detaylı bilgi için Malzeme Tablosu'na bakınız.
- Örnek fiksasyonu
- İnkübasyon süresinin hemen ardından 1.3 adımındaki boyama çözeltisini uzaklaştırın.
- (İsteğe bağlı) Örnekleri 200 µL SchM+ ile iki kez yıkayın.
- Alım deneyindeki primer antikorun düzgünce uzaklaştırılması için dokuyu oda sıcaklığında (RT) asit tamponu ile 5 dakika boyunca yıkayın.
- SchM+ ile 3× 3 dakika boyunca hızlıca yıkayın.
- Örnekleri SchM+ içinde %4 formaldehitte RT'de 30 dakika boyunca fikse edin.
- Primer antikor inkübasyonu
NOT: Alım deneyinde kullanılan antikora ek olarak başka bir primer antikor gerekiyorsa, bu antikor bu aşamada uygulanmalı ve standart immünohistokimya boyama prosedürlerine göre işlenmelidir.- Dokuyu, 1× PBS-T içinde %4 normal keçi serumu ile RT'de hafif ajitasyon altında en az 30 dakika boyunca bloke edin.
- Bloklama çözeltisini uzaklaştırın.
- 1× PBS içinde, istenen konsantrasyonda primer antikor çözeltisi ekleyin (örnekler: 1:200 oranında anti-wg, 1:50 oranında anti-dlg1 veya 1:200 oranında anti-GFP ya da gerekli herhangi bir diğer antikor)
- Örnekleri 4 °C'de, hafif ajitasyon altında gece boyunca inkübe edin.
- (İsteğe bağlı) Primer antikor inkübasyonunu RT'de hafif sallama altında en az 1,5 saat gerçekleştirin.
- NOT: Bu çalışmada kullanılan kimyasallar ve malzemeler hakkında detaylı bilgi için Malzeme Tablosu'na bakınız.
- Sekonder antikor inkübasyonu
- Primer antikor çözeltisini uzaklaştırın.
NOT: 1× PBS içindeki kullanılmış primer antikor çözeltisi, taze bir 1,5 mL'lik reaksiyon tüpünde 4 °C'de saklandığında birkaç kez yeniden kullanılabilir. - Dokuyu 1× PBS-T içinde hafif sallama altında 3× 10 dakika yıkayın.
İstenen sekonder antikorları 1:2000 Hoechst33342 nükleer karşıt boyama ile birlikte 1× PBS-T içinde 1:200 seyreltmede ekleyin. STED için sekonder antikorlar arasında tavşan anti-fare Alexa Fluor 594, keçi anti-tavşan Alexa Fluor 594, keçi anti-tavşan STAR635P ve keçi anti-fare STAR635P bulunur. Bu çalışmada kullanılan kimyasallar ve malzemeler hakkında detaylı bilgi için Malzeme Tablosu'na bakınız. - Sekonder antikorda 4 °C'de gece boyunca inkübe edin (İsteğe bağlı: RT'de hafif sallama altında en az 1,5 saat inkübe edin).
- Dokuyu ertesi gün 1× PBS-T içinde hafif ajitasyon altında 3× 10 dakika yıkayın. Örnekler artık STED görüntüleme için monte edilmeye hazırdır. Tüm iş akışı için Şekil 1'e bakınız.
NOT: Mikroskop optikleri, aksi belirtilmedikçe genellikle 23 °C çalışma sıcaklığına göre tasarlanmıştır. Sıcaklık stabilitesi kritiktir, çünkü dalgalanmalar termal sürüklenmeye neden olur ve lazer zamanlamasını etkileyebilir. 20–23 °C (≤ ±±1 °C dalgalanma) arasında stabil bir oda sıcaklığı önerilir16 ve 21,5–22 °C genellikle mikroskobun ürettiği ısıyı dengeler. Tüm mikroskop bileşenleri görüntülemeden önce termal dengeye ulaşmalıdır. Sahne üstü inkübatörler doğru örnek sıcaklık kontrolü sağlar, ancak kapalı muhafazalar ısıyı hapsedebilir ve sürüklenmeyi artırabilir. Aktif soğutma stabiliteyi artırır. Bu çalışmada, özel yapım bir inkübatör (EMBL Heidelberg) 21,5 ±± 0,05 °C sıcaklığı koruyarak termal sürüklenmeyi minimize etmiş ve stabil 3D STED performansı sağlamıştır.
- Primer antikor çözeltisini uzaklaştırın.
2. 3D STED süper-çözünürlüklü nanoskopi ve görüntüleme için numune hazırlama
- Ekipman ve malzeme hazırlıkları:
- Mikroskobu ayarlayın.
- Deney için uygun bir mikroskop kullandığınızdan emin olun. Burada, Leica Stellaris 8 STED Falcon mikroskobu kullanılmıştır.
- Uygun bir objektif kullanın. Burada, HC PL APO 86x/1.20 W motCORR STED beyaz objektif kullanılmıştır.
- Uygun görüntüleme sağlayabilmek için, görüntülemeden en az 2 saat önce mikroskop düzeneğinin tamamını açın (adım 1.6.4'ten sonraki NOT'a bakınız).
- Poly-L-lizin kaplı kapları hazırlayın.
- dH içinde %0,6 poly-L-lysine ve %0,002 Photo Flo içeren poly-L-lysine çözeltisi hazırlayın2O. Çözeltiyi alikotlara ayırın ve - derecede uzun süreli saklayın.20 °CÇözündükten sonra, şu sıcaklıkta muhafaza edin: 4 °C ve 10 defaya kadar yeniden kullanın.
- Ekle 200 µL poli-L-lizin çözeltisinin 1,5H cam lameli tabanına µ-kap (∅35 mm)
- Kapları kuruması için dikey olarak eğimli bir şekilde yerleştirin.
- poli-L-lizin çözeltisi tamamen kuruduktan sonra, kaplama işlemini bir kez daha tekrarlayın.
- Lam camı tabanının 2 yanına oje ara parçalarını dikkatlice ekleyin
- Montajdan sonra, numuneleri 1,5 saatlik yuvarlak (∅12 mm) lamelleri (bkz. Şekil 2).
- Mikroskobu ayarlayın.
- 3B STED için montaj düzeneği
- NOT: 3D STED nanoskopisi için (adım 2.2.12'den sonraki NOT'a bakınız), STED objektifi ile montaj medyumu arasındaki kırılma indislerinin eşleştirilmesi esastır (Buradaki örnek: su objektifi ve 1× PBS montaj medyumu).
- Numuneleri, 1 ile doldurulmuş küçük bir Petri kabına yerleştirin× PBS.
- Ekleyin 15 µL 1'in× önceden hazırlanmış poli-L-lizin kaplı kaba damlacık halinde PBS.
- Kalan larva dokusundan kanat imaginal disklerini diseke ederek ayırın ve bunları bir 15 µL 1× PBS damlacığı.
- Kanat disklerinin kaplamalı lamella yapışık olduğundan ve yüzdüğünden emin olun.
- Diskleri herhangi bir kuvvetle aşağı bastırmayın; mümkün olduğunca nazikçe lamel üzerine çökmelerini sağlayın. Doğru yönlendirme için, kanat disklerinin peripodal membran lamelle karşı karşıya gelecek şekilde aşağı bakacak şekilde yerleştirildiğinden emin olun.
- Montaj işleminden sonra, örneklerin üzerini 1,5H yuvarlak (∅12 mm) lamel.
- Numunenin ezilmesini önlemek için lamelin kenarlarının, daha önce uygulanmış olan oje ara parçaların üzerinde olduğundan emin olun.
- Kapatma medyumunun buharlaşmasını önlemek için lamelin tüm kenarlarını oje ile mühürleyin.
- Kapları, nihai görüntüleme yapılana kadar karanlıkta tutun.
- Numuneyi, mikroskopla görüntülemeden en az 30 dakika önce inkübasyon odasına yerleştirerek numune sıcaklığını mikroskobun inkübasyon odası sıcaklığına ayarlayın.
- Herhangi bir numune hareketini önlemek için, kabı basınç duyarlı bir yapıştırıcı (örneğin, Blu Tack) ile mikroskopi tutucusunda sabitleyin.
NOT: 2D STED ve 3D STED terimleri, tek bir görüntünün mü yoksa bir z-yığının mı (z-stack) alındığını değil, çözünürlük artırımının türünü tanımlamaktadır.12,172D STED yalnızca lateral (x,y) çözünürlüğü iyileştirir ve bu değer genellikle <50 nm iken, aksiyal (z) çözünürlük konfokal mikroskopiye benzer (~600 nm) kalır. Karşılaştırmalı olarak dayanıklıdır ve genellikle numune ile objektif daldırma ortamı arasındaki kusurlu kırılma indisi eşleşmelerini tolere eder123D STED hem lateral hem de aksiyel çözünürlüğü artırır ve özellikle z-ekseni boyunca güçlü bir iyileşme sağlar. Florofor ve STED boşaltma (depletion) koşulları optimize edilerek, biyolojik örneklerde ~100-120 nm civarında neredeyse izotropik bir çözünürlük elde edilebilir.17,18Ancak, 3D STED tüketim deseni küresel aberasyonlara karşı oldukça hassastır. Bu nedenle, başarılı görüntüleme için dikkatli bir kırılma indisi eşleştirmesi ve objektif düzeltme halkasının gerçek lamelle örtü camı kalınlığına göre hassas bir şekilde ayarlanması gerekmektedir.
- Nanoskopi gereksinimleri ve kurulumu
- Üretici talimatlarında belirtildiği şekilde, gerekli tüm mikroskop cihazlarını açın.
- Lazer anahtarlarını henüz açmayın.
- Mikroskobun inkübasyon odasının sıcaklığını 22–23 °C görüntüleme işleminden en az 1,5 saat önce.
- Numuneyi mikroskop haznesine yerleştirin ve en az 30 dakika boyunca sıcaklığa uyum sağlamasını bekleyin.
- Bilgisayarı açın ve LAS X (Versiyon 4.9.0) yazılımını başlatın.
- Seçin STED görüntüleme açılış penceresinde yazılımı başlatın
- Yazılım yüklendiğinde, ışıkları yeşil renk yanarken her iki lazerin güvenlik anahtarlarını çevirin.
- Şuraya gidin: Edinmek sekmesine tıklayın ve uygun STED objektifini (HC PL APO 86x/1.20 W motCORR STED) seçin.
- Şuraya gidin: Konfigürasyon sekmesine geçin ve şu butona tıklayın: Lazer konfigürasyonu.
- Lazerleri açmak için tüm lazer sürgülerine tıklayın AÇIK.
- Şuraya gidin: Konfigürasyon sekmesine gidin ve ... butonuna tıklayın STED.
- Tıklayın Işınları hizalayın.
- Optimum hizalamayı sağlamak için görüntülemeden 30 dakika ve 2 saat sonra ışın hizalamasını tekrarlayın; gerektirdiğinde, örneğin çözünürlükte bir düşüş veya daha yüksek arka plan gözlemlendiğinde işlemi yeniden yapın.
- Nesnenin düzeltme halkasını (motorize), lamel yüzeyinin yansıma sinyalini kullanarak lamel kalınlığına göre hizalayın:
- Şuraya gidin: Edinmek sekme üzerinden motCORR değerini ayarlamaya başlayın.
- Şu konumda yeni bir GFP floresans kanalı oluşturun: konfokal modu ve numunenin hücrelerine odaklanın.
- Şuna tıklayın: Canlı düğmesine basın ve örneği, örnek bulunmayan bir konuma taşıyın.
- Canlı görüntülemeyi durdurun.
- Bu kanal için yalnızca HyDS dedektörünün kullanıldığından emin olun.
- Ayarlayın Çentik filtresi yapılandırma için Yansıma.
- Şuna tıklayın: Oryantasyon buton ve seçin xzy Oryantasyonu.
- Örnek stabil görünmüyorsa veya z-ekseni hareketi sergiliyorsa, hızlı canlı görüntüleme hızını 100 Hz'e düşürün.
- Şuna tıklayarak canlı görüntülemeyi başlatın: Hızlı Canlı buton
- Çizgi şeklinde görünecek olan numune lamelini bulun
- Bu hattın sinyali mümkün olduğunca keskin ve dar olana kadar motCORR değerini ayarlayın
NOT: 1,5H lamella ile değer tipik olarak %48–56 aralığında bulunur. - Şimdi, görüntüleme için kanalları seçmeye başlayın Edinmek tablo
- Bakınız Tablo 1 STED modunda Alexa Fluor 594 ve STAR635P deteksiyonu için ayarlamalar.
- Görüntüleme
- Görüntüleme alanını mikroskop okülerleri aracılığıyla seçiniz.
- DV sınırını dikey olarak hizalamak için örneği dikkatlice döndürün (Şekil 2).
- Mikroskoptaki perdeyi kapatın ve mikroskobu bilgisayar üzerinden yöneterek konfokal görüntülemeye geçiş yapın.
- Tıklayın Hızlı Canlı düğme, odağı ayarlayın ve DV sınırının yönelimini kontrol edin.
- Canlı görüntülemeyi durdurun.
- (Opsiyonel) Bu aşamada, daha sonra referans almak amacıyla konfokal modda xyz oryantasyonunda bir genel bakış görüntüsü alın (her iki kanal için STED lazerini %0'a ayarlayın). Genel bakış görüntüsünü aldıktan sonra STED lazerini AÇIK konuma getirin.
- xzy yönelimini seçin ve görünen çizgiyi ortogonal görüntüleme için tam alana göre ayarlayın.
- Şuna tıklayın: Hızlı Canlı düğmeye basın ve gerekirse odağı ayarlayın.
- Mikroskoptaki z-Wheel'i kullanarak numunenin x-konumunu ayarlayın.
- Her iki kanal için de STED lazerlerinin açık olduğundan ve tüm ayarların doğru olduğundan emin olun.
- Tıklayın Deneye Başla.
- Piksel başına yoğunluk (foton sayma modundaki dedektör) 50 ile 300 tespit edilen foton arasındadır; bu değer aynı zamanda lazer gücüne, piksel bekleme süresine ve uygulanan hat biriktirme sayısına da bağlıdır. Floresan ömür ölçümleri (FLIM) modülü (Falcon) erişilebilir durumdaysa, lazer darbesi başına bir fotondan daha azının tespit edildiğini onaylayın.
- Değerleri, ilgili numuneye göre gerektiği şekilde ayarlayın.
- STED nanoskopisi için zorluklar
- 3D STED'de belirli bir morfolojik alanı görüntülemek için, XY görünümünden XZ görünümüne geçmeden önce, dokuyu istenen eksenle tam olarak hizalamak amacıyla örneği mikroskop üzerinde döndürün ve yönlendirin. Bu hareket serbestliğini, deneysel gereksinimlere göre hareket ettirilebilen yuvarlak kaplar üzerine montaj yaparak sağlayın.Şekil 2).
- xz-taraması sırasında, numune z-ekseni boyunca fiziksel olarak hareket ettirilir; bu durum başlangıçta, dikey eksendeki salınımlar nedeniyle kabın xy düzleminde hafifçe hareket etmesine yol açmıştır. Kapların hareket etmesini önlemek için, kabı montaj macunu (Blu Tack) ile mikroskopi numune tutucuya sabitleyin. Bu işlem, dikey (z-ekseni) hareketi önlerken serbest dönmeye olanak tanımıştır.
- Montaj ortamının buharlaşmasını ve dokunun kurumasını önlemek için lameller oje ile mühürlendi.
- Numune ile mikroskop arasındaki sıcaklık farklarından kaynaklanan numune kaymasını önlemek için, numuneleri görüntülemeden en az 30 dakika önce mikroskop inkübasyon odasına yerleştirin ve mikroskop sıcaklığına uyum sağlamalarına izin verin.16.
- Sekonder antikor seçimi için aşağıdaki adımları takip edin:
- Geniş bir florofor yelpazesi STED görüntüleme için uygundur, ancak yalnızca küçük bir kısmı, tek bir tüketim lazeri (burada 775 nm) kullanılarak gerçekleştirilen iki renkli STED için elverişli fotofiziksel ve spektral özellikleri bir arada sunar. Her iki kanalı da aynı STED tüketim deseniyle tanımlayarak doğal kromatik hizalamayı sağlamak ve kromatik kayma düzeltme ihtiyacını ortadan kaldırmak için her iki florofor için tek bir STED tüketim dalga boyu kullanın.
- Yaygın florofor çiftleri arasında STAR RED/STAR635P ve ATTO 647N/ATTO 643 ile birlikte Alexa Fluor 594, STAR 580 veya STAR ORANGE kombinasyonları yer almaktadır.18,19Burada, yaygın olarak benimsenen Alexa Fluor 594 ve STAR635P kombinasyonu kullanılmıştır. Emisyon spektrumları kısmen örtüşse de, çapraz etkileşimi (crosstalk) minimize etmek için Alexa Fluor 594 için dar bir deteksiyon penceresi kullanarak floroforları satır satır (line-by-line) modunda elde edin (bakın Tablo 1). Bu durum Alexa Fluor 594'ün tespit verimliliğini düşürdüğü için, daha parlak olan immunboyamayı bu kanala atayın.
Sonuçlar
Kanat imajinal disklerinde 3D STED nanoskopi için uygun görüntüleme koşullarını belirlemek amacıyla, öncelikle Wg ve apikal membranla ilişkili Dlp proteininin standart immünofloresan boyaması gerçekleştirildi. Wg, Alexa Fluor 594 kullanılarak tespit edilirken; Dlp, STED nanoskopi ile uyumlu iki florofor olan STAR635P ile işaretlendi (Şekil 3). Görüntüler, hem konfokal kalitesinde görüntüler elde etmek için STED tüketimi (depletion) olmadan hem de adım 2.3'te açıklanan ayarlar kullanılarak süper-çözünürlüklü görüntüleme için STED tüketimi ile elde edildi (Şekil 3).
Aynı doku bölgesinin konfokal ve STED koşulları altında xz-kesitler olarak görüntülenmesinin doğrudan karşılaştırması, 3D STED nanoskopisinin sağladığı mekansal çözünürlükteki önemli artışı ortaya koymuştur (Şekil 3A–D′). Konfokal görüntülerde uzamış sinyaller şeklinde görünen yapılar (Şekil 3A,A′ve Şekil C,C′) STED modunda birden fazla belirgin puncta şeklinde çözümlenmiştir (Şekil 3B,B′ve Şekil D,D′). Bu iyileştirme hem Alexa Fluor 594 hem de STAR635P kanallarında gözlemlenmiş olup, sağlam kanat diski dokusunda mümkün olan en yüksek sinyal kalitesine ve izotropik çözünürlüğe ulaşmak için boyama ve görüntüleme parametrelerini optimize etmek amacıyla kullanılmıştır.
Ardından, apikal membrandaki Wg taşınımını ve klatrin bağımlı endositoz yoluyla geri dönüşümünü incelemek amacıyla Wg Alım testi15ni farmakolojik inhibisyonla birleştirdik. Ek fare kaynaklı antikorlarla uyumluluğu korurken hücre dışı Wg::GFP'nin anti-GFP antikoru ile tespit edilmesine olanak tanıyan, endojen olarak etiketlenmiş bir Wg::GFP sinek hattı20 kullandık.
Kanat imaginal diskleri, klatrin ve dinamine bağımlı endositozu hedefleyen bir dinamine inhibitörü olan Dynasore 2-24 ile işlenmiş21,22 ve ardından Wg Uptake analizine tabi tutulmuştur. İçselleştirmeyi izlemek için hücre dışı Wg::GFP, anti-GFP antikoru ile işaretlenmiş, doku morfolojisini görüntülemek için ise anti-Dlg1 boyaması kullanılmıştır. Wg, Alexa Fluor 594 ile tespit edilip STED modunda görüntülenmiş, Dlg1 ise STAR635P ile işaretlenmiştir (Şekil 4). DMSO ile işlenmiş kontrol diskleri, Uptake analizi boyunca Wg::GFP'nin aşamalı olarak içselleştiğini göstermiş ve endositozlanmış sinyal yaklaşık 14 µm derinliğe kadar tespit edilmiştir (Şekil 4A,A′). Deney, bölüm 1 ve 2'de açıklanan protokoller izlenerek bağımsız olarak iki kez tekrarlanmıştır (Şekil 4B,C). Birinci tekrarda, 5 µM Dynasore2-24 uygulaması Wg Uptake'i tamamen ortadan kaldırmıştır (n = 4; Şekil 4B,B′). İkinci tekrarda, Wg içselleştirmesi azalmış ancak tamamen yok olmamış (n = 4; Şekil 4C,C′) ve maksimum penetrasyon derinliği yaklaşık 5 µm'ye düşmüştür.
Bu tür bir değişkenlik, farmakolojik inhibisyon deneylerinde yaygın olarak gözlemlenir ve muhtemelen inhibitör etkinliğindeki veya zamanlamasındaki farklılıkları yansıtır. Eksik inhibisyon, inhibitörün doku penetrasyonunun sınırlı olması, analiz sırasında endositozun geri dönmesi veya asit yıkama ve fiksasyon basamaklarının neden olduğu gecikmelerin tamamı, kalıntı Wg internalizasyonuna katkıda bulunmuş olabilir. Buna rağmen, her iki deney de DMSO kontrollerine kıyasla Wg Uptake ve penetrasyon derinliğinde belirgin bir azalma göstererek endositozun başarılı bir şekilde inhibe edildiğini kanıtlamıştır. Bu bulgular ayrıca, tekrarlanabilir sonuçlar için protokol boyunca hassas zamanlamanın kritik olduğunu vurgulamaktadır.
Asit sıyırma sonrası bazen kalıntı membran ilişkili sinyal gözlemlenmiştir ve bu durum muhtemelen halihazırda erken endositik çukurlara girmiş ve bu nedenle antikor uzaklaştırmasıyla erişilemeyen Wg::GFP moleküllerini temsil etmektedir23,24,25.
Birlikte, bu deneyler Wg Alım testi'nin farmakolojik perturbasyon ve 3D STED nanoskopi ile birleştirilmesinin, sağlam kanat imajinal disklerindeki membran taşınım dinamiklerinin görselleştirilmesini sağladığını göstermektedir. Ayrıca, uygun florofor ve antikor kombinasyonları, optimize edilmiş inhibitör tedavisi, Alım testinin kesin zamanlaması ve görüntüleme öncesi anlık numune montajı dahil olmak üzere, protokolün başarılı bir şekilde uygulanması için temel parametreleri tanımlamaktadırlar.
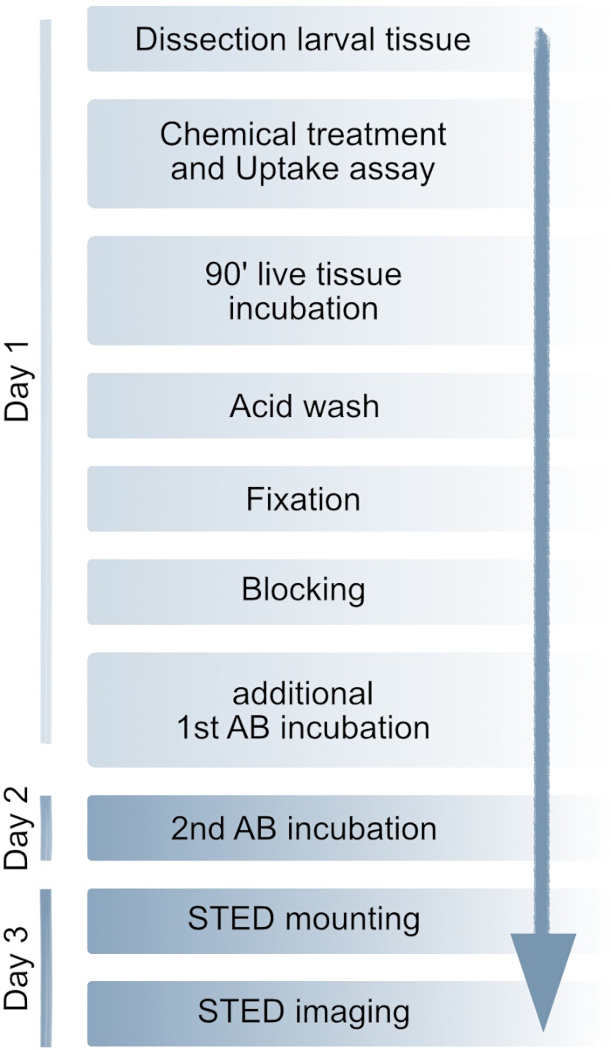
Şekil 1: Yöntem iş akışı. Tüm protokol 3 gün içerisinde tamamlanabilir. İsteğe bağlı olarak, sekonder antikor inkübasyonu aynı gün gerçekleştirilebilir. Detaylı prosedürler Protokol bölümünde verilmiştir. AB: antikor. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
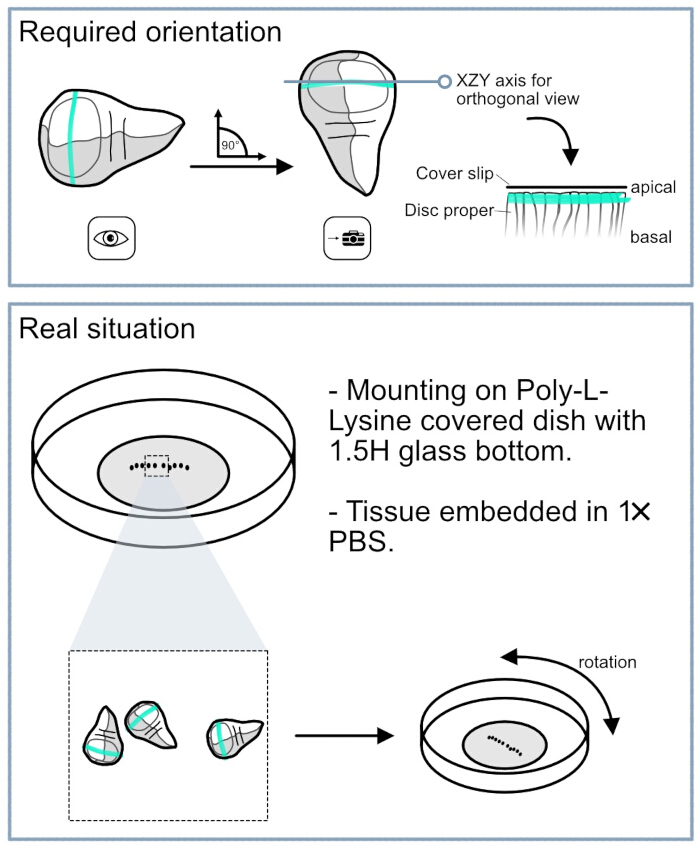
Şekil 2: 3D STED için Drosophila kanat disklerinin yerleştirilmesindeki zorluklar. Üst panelde, kanat disklerinin gereken yönelimi gösterilmiştir. Wg salgılayan hücrelerin analizi için DV sınırının oküler görünümünde tam olarak dikey olarak hizalanması esastır. Bu hizalama, kamera görünümünün ortogonal düzleme döndürülmesini sağlayarak istenen hücre popülasyonunun doğru şekilde hedeflenmesine olanak tanır. Alt panel, görüntüleme sırasında kanat disklerinin işlenmesi için kullanılan pratik düzeneği göstermektedir. Kanat diskleri, 1.5H cam lameli tabanlı yuvarlak Petri kaplarına yerleştirilmiştir. Dokunun yapışmasını kolaylaştırmak için lamel yüzeyi poli-L-lizin ile kaplanmıştır. Dairesel kap tasarımı, mikroskop tutucu içinde döndürmeye izin vererek, görüntüleme için gereken DV sınırının hassas dikey hizalamasını sağlar. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
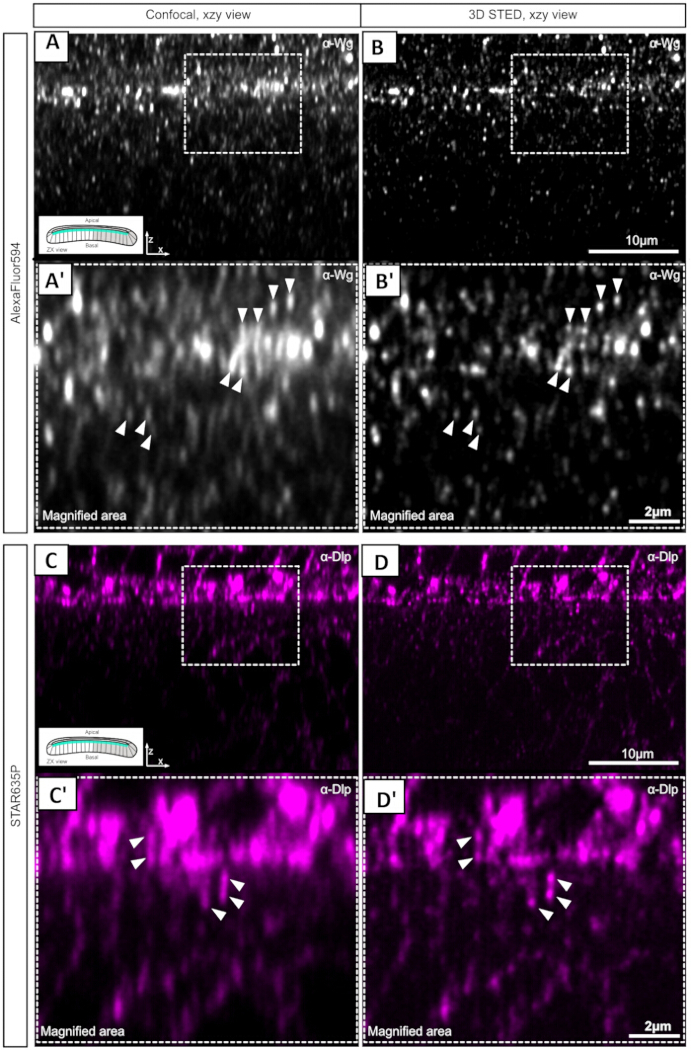
Şekil 3: Drosophila kanat disklerinin DV sınırında konfokal ve 3D STED görüntülemenin karşılaştırılması. (A) DV sınırındaki Wg salgılayan hücrelerin XZ düzleminde gösterilen konfokal görüntüsü. Anti-Wg boyaması Alexa Fluor 594 kullanılarak tespit edildi. (A’) Apikal membran bölgesindeki uzamış sinyalleri (ok uçları) gösteren belirtilen bölgenin büyütülmüş görünümü. (B,B’) Aynı bölgenin 3D STED nanoskopi ile görüntülenmesi. Alexa Fluor 594 sinyali gösterilmektedir. Konfokal görüntüleme ile karşılaştırıldığında, 3D STED uzamış sinyalleri belirgin noktalara ayırır ve birden fazla bireysel sinyali (ok uçları) ortaya çıkarır. (C) A ve B'de gösterilen aynı örneğin STAR635P kanalının konfokal görüntüsü. Örnek olarak, apikal membranı belirginleştiren STAR635P konjugatlı bir sekonder antikor kullanılarak Dlp tespit edilmiştir. (C’) Konfokal görüntüdeki uzamış sinyalleri gösteren büyütülmüş görünüm. (D) C'de gösterilen aynı bölgenin 3D STED görüntüsü. (D’) Konfokal mikroskopi ile gözlemlenen geniş, uzamış sinyallerin 3D STED görüntüleme ile belirgin noktalara ayrıldığını gösteren büyütülmüş görünüm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
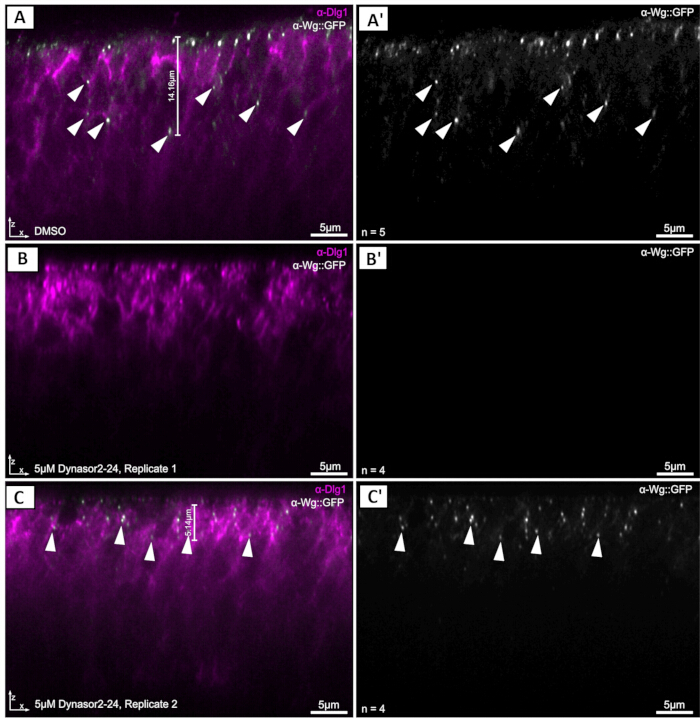
Şekil 4: 3D STED ile görüntülenen Drosophila kanat imaginal disklerinde kimyasal inhibisyonun Wg Alım deneyi ile birleştirilmesi. (A,A’) Temsili DMSO ile işlem görmüş kontrol disk (n = 5). Hücre dışı Wg::GFP (gri) verimli bir şekilde işaretlenmiştir ve internalize olmuş Wg::GFP hücre içinde tespit edilmiştir (ok uçları). Dlg1 (macenta), doku morfolojisini ve diskten sorumlu apoptikal bölgeyi işaretler. (B,B’) Klatrin ve dinamine bağımlı endositozu inhibe etmek için 5 µM Dynasore2-24 ile işlem görmüş tekrarlanan 1. örnekten temsili örnek (n = 4). Alım deneyi sonrası Wg::GFP sinyali ortadan kalkmıştır. (C,C’) 5 µM Dynasore2-24 ile işlem görmüş tekrarlanan 2. örnekten temsili örnek (n = 4). Artık Wg::GFP sinyali apoptikal yüzey yakınında tespit edilebilir düzeydedir (ok uçları), ancak DMSO ile işlem görmüş kontrollerdeki yaklaşık 14 µm'ye kıyasla hücre içi sinyal dokunun yaklaşık ilk 5 µm'si ile sınırlıdır (A ve C'deki ölçüm çubukları). Dlg1 (macenta) morfolojik referans olarak hizmet eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Ayarlar | Alexa Fluor 594 kanalı | STAR635P kanalı |
| Amaç | 86x/1.2 HC PL APO CS2 (su) | 86x/1.2 HC PL APO CS2 (su) |
| Piksel Boyutu | 37 nm × 37 nm | 37 nm × 37 nm |
| Yakınlaştırma | 1.2 | 1.2 |
| Saptama penceresi | 3072 × 1536 piksel | 3072 × 1536 piksel |
| Hat ortalaması | 1 | 1 |
| Hat birikimi | 16 | 16 |
| Tarama Hızı | 100–200 | 100–200 |
| İğne deliği boyutu | 70 μm | 70 μm |
| Uyarılma lazer hattı | 580 nm | 638 nm |
| Uyarılma lazer çizgisi şiddeti | %4–%10 (örneğe bağlıdır) | %8–%10 (numuneye bağlıdır) |
| Dedektör | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Tau geçitlemeli uyarma lazeri | 0,5–8 ns | 0,5–8 ns |
| Tüketme lazer hattı | 775 nm | 775 nm |
| Tükenme lazer gücü | %65-75 (numuneye göre değişir) | %65-75 (numuneye bağlıdır) |
| Yaşam Süresi Tabanlı görüntü son işlemleme (τ-STED) | τ-Güç: 10 | τ-Güç: 10 |
| τ-Arka Plan Bastırma: aktif | τ-Arka Plan Bastırma: aktif | |
| Yumuşatma: 0 | Yumuşatma: 0 |
Tablo 1: STELLARIS SP8 mikroskobunda floroforlar için ayrıntılı mikroskop ayarları. Alexa Fluor 594 ve Star635P floroforları için kullandığımız ayarları sunduk.
Tartışma
Membran trafiğinin ve sinyal iletim dinamiklerinin sağlam dokular içerisinde görüntülenmesi, özellikle Drosophila kanat imaginal diski'nde bulunanlar gibi yüksek derecede polarize epitel hücrelerde teknik olarak zorlayıcı olmaya devam etmektedir. Bu hücrelerin dar ve kolon şeklindeki morfolojisi, özellikle protein lokalizasyonunun apikal-bazal eksen boyunca analiz edildiği durumlarda, geleneksel konfokal mikroskopi kullanılarak elde edilebilecek bilgileri sınırlandırmaktadır. Bu protokolde, 3D STED11,12 nanoskopi yöntemini antikor tabanlı alım deneyleri ve farmakolojik perturbasyonlarla birleştirerek bu sınırlamaları giderdik. Bu yaklaşımlar hep birlikte, dinamik protein trafiği olaylarının, standart konfokal görüntüleme ile ulaşılamayan bir uzamsal çözünürlükte, doğal doku ortamı içerisinde görüntülenmesine olanak tanır.
İş akışının temel bir avantajı, bütün dokulardaki membranla ilişkili süreçleri incelemek için 3D STED nanoskopisinin kullanılmasıdır. Konfokal ve STED görüntülemenin doğrudan karşılaştırılması, konfokal mikroskopi ile gözlemlenen uzamış sinyallerin 3D STED görüntüleme ile belirgin noktalara (puncta) ayrılabildiğini göstermiş (Şekil 3) ve apikal membrandaki proteinlerin görselleştirilmesini önemli ölçüde iyileştirmiştir. Bu artırılmış çözünürlük; bireysel veziküllerin ve membranla ilişkili protein komplekslerinin doğru lokalizasyonunun temel olduğu sekresyon, endositoz ve hücre içi taşınım yollarının analiz edilmesi için özellikle değerlidir. Ayrıca, ortogonal görünümler elde edebilme yeteneği, protein organizasyonunun ve taşınımının epitel hücrelerin apikal-bazal ekseni boyunca incelenmesine olanak tanır.
Farmakolojik perturbasyonların alım analiziyle entegrasyonu, yöntemin deneysel olanaklarını daha da genişletir. Alım analizi, belirli bir zaman penceresi içinde sekresyona ve ardından yeniden içselleştirmeye uğramış proteinleri seçici olarak işaretlerken; farmakolojik tedaviler, spesifik taşıma yollarının perturbasyonuna olanak tanır. Bu yaklaşımların kombinasyonu, dolayısıyla hücresel süreçlerin protein taşıma dinamiklerini nasıl etkilediğine dair doğrudan bilgi sağlar. in vivoGösterildiği üzere, klatrin bağımlı endositoz inhibisyonu altında hücreye alınan Wg::GFP'nin görselleştirilmesi, etiketli proteinin apikal membrandaki internalize sinyalinin kaybıyla ve/veya hücre içi alım sinyalinin azalmasıyla sonuçlanmıştır; bu durum, iş akışının fizyolojik doku bağlamındaki taşınım mekanizmalarını araştırmak için nasıl kullanılabileceğini örneklemektedir. Daha geniş ölçekte bu yaklaşım, klasik genetik stratejileri tamamlamakta ve şunların faydasını daha da güçlendirmektedir: Drosophila sinyal yolaklarının mekanistik çalışmaları için bir model sistem olarak.
Protokolün başarıyla uygulanması için birkaç faktör kritik öneme sahiptir. İlk olarak, güvenilir sinyal tespiti için güçlü ve spesifik işaretleme gerektiğinden, primer antikor seçimi çok önemlidir. Ancak, endojen Drosophila proteinlerine karşı valide edilmiş antikorların sınırlı mevcudiyeti temel bir kısıtlama olmaya devam etmektedir. Bu protokolde, yaygın olarak kullanılan birçok Drosophila antikorunun farede üretilmiş olması çoklu immün işaretlemeyi sınırladığından, endojen olarak etiketlenmiş bir Wg::GFP hattının kullanılması gerekmiştir. Floresan boyalar; membranlar, mitokondriler veya diğer organeller gibi hücresel yapıların işaretlenmesi için bir alternatif sunabilse de, ticari olarak mevcut boyaların çoğu kültürlenmiş hücreler için optimize edilmiştir ve sağlam Drosophila dokularına verimli bir şekilde uygulanmaları zordur.
Ayrıca, tüm floroforlar STED görüntüleme koşulları altında yeterli sinyal yoğunluğu, fotostabilite veya tükenme verimliliği sağlamadığından, sekonder antikorlar ve floroforlar STED nanoskopi ile uyumluluk açısından dikkatle değerlendirilmelidir19,26. Burada sunulan sonuçlar, örnek hazırlamanın ve doku işlemenin önemini daha da vurgulamaktadır. Benzer şekilde, aşırı ilaç konsantrasyonları doku bütünlüğünü bozabilir ve biyolojik sinyalleri maskeleyen görüntüleme artefaktları oluşturabileceği için farmakolojik tedaviler dikkatlice optimize edilmelidir. Ortogonal görünümler elde etmek ve istenen hücre popülasyonlarını tekrarlanabilir şekilde görüntülemek için dorsoventral sınırın kesin hizalaması gerektiğinden, doğru doku yönlendirmesi de aynı derecede önemlidir (Şekil 2).
İş akışını farklı deneysel gereksinimlere uyarlamak için çeşitli modifikasyonlar yapılabilir: Alım (Uptake) analizinin süresi, yeterli protein etiketlemesi ile doku bütünlüğünün korunması arasında bir denge kuracak şekilde ayarlanabilir. Benzer şekilde, inhibitör konsantrasyonları; doku tipine, gelişim aşamasına veya incelenen sinyal yoluna bağlı olarak titrasyon gerektirebilir. Protokol, seçilen floroforların STED nanoskopisi için uygun olması koşuluyla, standart immunofloresans, ekstrasellüler immunofloresans ve florofor tabanlı etiketleme stratejileri dahil olmak üzere çeşitli boyama yaklaşımlarıyla da uyumludur. Mevcut iş akışı iki renkli görüntülemeye odaklansa da, ek floroforlar ve görüntüleme konfigürasyonları uygulanabilirlik alanını daha da genişletebilir.
Bu protokol, model sistem olarak Drosophila kanat imaginal diskleri ve Wg/Wnt sinyal yolu kullanılarak geliştirilmiş olsa da, yaklaşım bu uygulamalarla sınırlı değildir. İş akışı diğer Drosophila dokularına kolayca uyarlanabilir ve benzer doku boyutlarına ve optik özelliklere sahip diğer böcek modellerine aktarılabilir. Daha genel olarak, Alım (Uptake) analizleri, farmakolojik pertürbasyonlar ve 3D STED nanoskopisinin kombinasyonu; membran organizasyonu, protein taşınması, sekresyon ve sinyalizasyon dinamiklerinin in vivo incelenmesi için çok yönlü bir çerçeve sunar. Bu yeteneğin, yalnızca gelişimsel sinyal yollarının temel çalışmaları için değil, aynı zamanda hastalıklarla ilişkili taşınma kusurlarını anlamayı amaçlayan biyomedikal araştırmalar için de değerli olması muhtemeldir. Yöntem, sağlam dokular içinde subselüler çözünürlükte dinamik protein popülasyonlarının doğrudan görselleştirilmesine olanak tanıyarak, karmaşık biyolojik sistemlerde sinyalizasyonu düzenleyen hücresel mekanizmaları incelemek için güçlü bir platform sağlar.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
M.B. ve M.H., Deutsche Forschungsgemeinschaft İşbirliği Araştırma Merkezi CRC/SFB1324 (proje numarası 331351713) Wnt sinyalizasyon mekanizmaları ve fonksiyonları kapsamında desteklenmektedir. Uzmanlığı ve desteği için DKFZ ışık mikroskopisi merkez tesisine (LMCF) teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0,2 mL'lik PCR reaksiyon tüpleri | Biozym | 711068 | |
| 1,5 mL reaksiyon tüpü | Sarstedt | 72.706.700 | |
| 1,5 H cam lamelli tabanlı μ-Kap, 35 mm | Ibidi | #81158 | |
| 1,5H yuvarlak (12 mm) lamel | Marienfeld | Lütfen çevirisini istediğiniz metni sağlayın. | |
| 12 kuyucuklu cam boyama plakası | Marienfeld | CET6.20 | |
| %37 Formaldehit | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| anti-dlp | DSHB | 13G8 | |
| anti-GFP | Invitrogen | A11122 | |
| anti-mouse Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-fare STAR635P | Abberior | ST635P-1001 | |
| anti-tavşan Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-tavşan STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Basınca duyarlı yapıştırıcı |
| DMSO | VWR | SIAL472301 | |
| Dumont 5 penset | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| FBS | Sigma-Aldrich | F7524 | |
| Glisin | Gerbu | 10.231.000 | |
| Leica Stellaris 8 STED Falcon mikroskobu | Leica Microsystems | Çevrilecek metin sağlanmamıştır. Lütfen çevrilmesini istediğiniz kaynağı giriniz. | |
| Oje | öz | Girdi sağlanmadı. Lütfen çevrilmesini istediğiniz metni giriniz. | |
| Normal keçi serumu | Hücre Sinyalizasyonu | 5425S | |
| Amaç: HC PL APO 86x/1.20 W motCORR STED beyaz objektif | Leica Microsystems | Metin sağlanmadı. Lütfen çevrilmesini istediğiniz kaynağı giriniz. | |
| PBS Tabletleri | Yaşam teknolojileri | 18912014 | |
| Photo Flo | Kodak | Çevrilecek metin sağlanmamıştır. Lütfen çevrilmesini istediğiniz İngilizce metni giriniz. | |
| Poli-L-Lizin | Sigma-Aldrich | P1524 | |
| Schneider's böcek besiyeri | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Kaynaklar
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.