Bu çalışma, C3H/HeJ farelerdeki alopecia areata modelinde ve H2O2 ile indüklenen insan primer epidermal melanosit hasar modelinde amigdalinin antioksidan ve anti-inflamatuar etkilerinin altında yatan potansiyel moleküler mekanizmaları araştırmayı amaçlamaktadır.
Araştırma makalesi
Amygdalin, Farelerde Oksidatif Stresi İnhibe Etmek ve Alopesi Areatayı İyileştirmek İçin FOXO3a Sinyal Yolağını Düzenler
* These authors contributed equally
Bu makalede
Özet
Özet
Bu çalışma, amigdalinin (AMG) alopecia areata (AA) üzerindeki terapötik etkisinin mekanizmasını araştırmayı amaçlamaktadır. AMG'nin hepatorenal toksisitesini incelemek için hematoksilin-eozin boyaması kullanılmıştır. C3H/HeJ farelerinde AA modeli oluşturulduktan ve H2O2hasarlı insan primer epidermal melanositleri (HPEM'ler) kullanıldı ve AMG müdahalesinin ardından reaktif oksijen türleri (ROS) içeriği ile forkhead box O3A (FOXO3a) protein ve gen seviyeleri izlendi. Biyokimyasal kitler veya enzimle bağlantılı immünosorbent analiz süperoksit dismutaz (SOD), katalaz (CAT), glutatyon peroksidaz 4 (GPX-4), malondialdehit (MDA), interlökin-15 (IL-15), interferon-gamma (IFN- gamma) içerikleri saptamak için kullanılmıştırγ), ve interlökin-6 (IL-6). MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4 ve IFN- düzeylerini değerlendirmek için Western blot analizi gerçekleştirildi.γ, IL-6 ve IL-15. FOXO3a'da SOD, CAT ve GPX-4 promoterlerinde AMG'nin zenginleşmesini değerlendirmek için ChIP-PCR gerçekleştirildi. Bu sırada, düşük FOXO3a ekspresyonuna sahip HPEM'lerde ROS, apoptoz ile FOXO3a, SOD, CAT ve GPX-4'ün protein ve gen seviyeleri incelendi. AMG'nin potansiyel bir karaciğer veya böbrek toksisitesi yoktur; ciltteki MHC I ve IL-15 proteinlerinin ekspresyonunu ve ayrıca serum IL-15 düzeylerini azaltabilir. AMG, ROS ve MDA düzeylerini düşürürken ciltteki FOXO3a protein ve gen ekspresyonunu ve ayrıca SOD, CAT ve GPX-4 seviyelerini artırabilir. AMG; MHC I, IFN- proteinlerini inhibe edebilir.γ, IL-6 ve IL-15, MDA, HPEM'lerdeki apoptoz ve ROS üretimini azaltır ve SOD, CAT ile GPX-4 içeriklerini artırır. Önemli bir nokta olarak AMG; FOXO3a, SOD, CAT ve GPX-4 gen ve proteinlerinin ekspresyonunu yukarı regüle edebilir ve SOD, CAT ile GPX-4 promotörlerinde FOXO3a'yı zenginleştirebilir. Bu veriler, AMG'nin FOXO3a ekspresyonunu artırabildiğini, oksidatif stresi ve inflamatuar yanıtları inhibe edebildiğini, böylece C3H/HeJ farelerinde AA'yı iyileştirebildiğini göstermektedir.
Giriş
Ani ve skar bırakmayan saç kaybı ile karakterize bir otoimmün bozukluk olan alopecia areata'nın (AA) küresel prevalansı yaklaşık %2–3'tür ve Çin'de 30 milyondan fazla hasta bulunmaktadır1. Epidemiyolojik veriler, hastalığın tüm yaş gruplarındaki bireyleri etkileyebileceğini, ancak genç yetişkinler arasında daha yüksek bir prevalans sergilediğini; hastaların yaklaşık %60'ının ilk başlangıcı 20 yaşından önce yaşadığını ve erkek-kadın oranının neredeyse eşit olduğunu göstermektedir1,2. Küresel olarak AA'nın yıllık insidansı yaklaşık %0,2–0,3'tür; bunun %40'ı tek bölge AA, %35'i çok bölge AA, %5'i totalis ve %2'si universalis formudur3,4,5. Komplikasyonlar açısından, hastaların yaklaşık %30'unda tırnak çökmesi, boylamsal çizgilenmeler ve diğer hasarlar görülmekte olup, tiroid bozuklukları ve vitiligo gibi otoimmün hastalıklarla beraber görülme oranı genel popülasyonda gözlemlenen seviyelerin üzerindedir6,7. Zararlı etkileri bakımından AA, yalnızca görünümü etkilemekle kalmayıp aynı zamanda depresyon ve anksiyete gibi psikolojik sorunlara yol açmaya eğilimlidir; yeni tanı alan hastaların yaklaşık %70'i başlangıçtan önceki 3 ay içinde majör stres olayları yaşamıştır8,9. Uzun süre tedavi edilmediğinde, hastalar totalis veya universalis formuna ilerleyebilir, bu da sosyal işlevlerini ve yaşam kalitelerini ciddi şekilde etkileyebilir10.
Günümüzde modern tıp, AA tedavisi için temel olarak lokal ilaçlar, oral ilaçlar, fizik tedavi ve saç ekiminin bir kombinasyonunu kullanmaktadır11,12. Lokal tedavi temel olarak kıl foliküllerini uyaran ve saç büyümesini teşvik etmek için lokal immün yanıtları inhibe eden minoksidil solüsyonu ve kortikosteroidleri (flutikazon propiyonat krem gibi) içerir; ancak uzun süreli kullanım cilt atrofisi gibi advers reaksiyonlara yol açabilir13,14. Progresif hastalığı olan hastalarda, oral immünosupresanlar (prednizon ve siklosporin gibi) sistemik immün yanıtı etkili bir şekilde düzenleyebilir, ancak karaciğer ve böbrek fonksiyonlarının düzenli olarak izlenmesi gerekir12,15. Fizik tedavide, dar bantlı orta dalga ultraviyole radyasyon ve düşük enerjili lazer tedavisi, saç büyümesine yardımcı olmak için mikrosirkülasyonu iyileştirir, ancak çok sayıda tedavi seansı gereklidir ve etki kişiden kişiye farklılık gösterir16,17. İnatçı vakalar için saç ekimi cerrahisi, sağlıklı kıl foliküllerini kellik bölgesine nakledebilir; ancak nakil başarısızlığı riski vardır ve ilaçla desteklenmesi gerekir18. Modern tıp tedavisinin avantajları, özellikle erken evre lokalize AA için hızlı etki etmesi ve yüksek standartlaşmasında yatmaktadır19. Ancak dezavantajları arasında hormon ilaçları için geri dönme (rebound) eğilimi, immünosupresanlar için belirgin yan etkiler ve total kellik/alopesi üniversalis hastalarında sınırlı etkinlik yer almaktadır20,21. Ayrıca, tedavi döngüsünün uzun olması (genellikle 3–6 ay) ve maliyetlerin yüksek olması (örneğin JAK inhibitörlerinin ve biyolojik ajanların yıllık maliyetinin 100.000 yuan'ı aşması), yaygın uygulamasını kısıtlayan diğer faktörlerdir19,22. Yukarıda belirtilen çok sayıda nedenle, yazarlar acilen yeni hedefli ilaçlar araştırma ihtiyacı duymaktadırlar.
Oksidatif stres, AA'nın patojenik mekanizmasına önemli ölçüde katkıda bulunur. Melanosit pigment sentezi sürecinde, yüksek miktarda hidrojen peroksit (H2O2) üretilir23,24. Normal koşullar altında, bu madde antioksidan enzimler (süperoksit dismutaz (SOD) ve katalaz (CAT) gibi) tarafından temizlenebilir25. Bununla birlikte, AA olan bireylerde antioksidan enzimlerin aktivitesi genellikle daha düşüktür; bu durum oksidatif ürünlerin birikmesine yol açarak DNA hasarına ve hücre apoptozuna neden olur26,27. Bu oksidatif stres durumu, pro-inflamatuar medyatörleri (TNF-α ve IFN-γ gibi) salarak inflamatuar yanıtı daha da aktive edecek ve oksidatif stres ile inflamasyondan oluşan kısır bir döngü oluşturacaktır28. İnflamatuar yanıt, T lenfositleri aracılığıyla kıl foliküllerine saldırarak kıl foliküllerinin dinlenme fazına girmesine ve dökülmesine neden olur29. Klinik çalışmalar, AA hastalarının sıklıkla diğer otoimmün hastalıklara (tiroid hastalıkları gibi) sahip olduğunu ortaya koymuştur30; bu durum, sistemik immün disregülasyonun kritik bir tetikleyici faktör olduğu yönünde bir kanıt sunmaktadır. Ek olarak, oksidatif stres ve inflamasyon kıl folikülü hücre apoptozunu ortaklaşa teşvik eder ve apoptotik sinyallerdeki bozulma, kıl folikülünün rejenerasyon yeteneğine daha fazla zarar vererek saçın yeniden uzamasını engeller31. Bu nedenle, AA tedavisi, bu kısır döngüyü kırmak için antioksidan ve anti-inflamatuar etkileri ve apoptotik yolların düzenlenmesini dikkate almalıdır.
Amygdalin (AMG), temel olarak Rosaceae ailesine ait bitki tohumlarında (kayısı, badem, şeftali çekirdekleri ve malta eriği gibi) bulunan doğal bir siyanojenik glikozid bileşiğidir32,33,34. Önceki çalışmalar, AMG'nin cilt bariyer fonksiyonunu güçlendirerek sedef hastalığını iyileştirebildiğini göstermiştir35. Bunun yanı sıra, AMG'nin anti-apoptotik ve anti-oksidatif stres etkileri, AA tedavisinde kullanımını mümkün kılmaktadır36,37. Mevcut kanıtlar ayrıca AMG'nin, C3H/HeJ farelerinde AA semptomlarını hafifletmek için inflamatuar yanıtı inhibe edebildiğini doğrulamıştır38. Ancak, AMG'nin AA'yı azaltmak için inflamasyonu inhibe ettiği ve oksidatif stresi hafiflettiği moleküler mekanizma yeterince rapor edilmemiştir. Bu çalışma temel olarak, C3H/HeJ farelerinin AA modeli ve H2O2 tarafından indüklenen insan primer epidermal melanosit (HPEM) hasar modelinin tedavisinde, AMG müdahalesi ile gerçekleşen forkhead box O3A (FOXO3a) sinyal iletimi aracılı oksidatif stres olaylarını ortaya koymuştur.
Protokol
Etik onay ve katılıma izin
Hayvanları içeren deneysel protokoller, ARRIVE 2.0 ve NIH Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu'na uygun olarak, Scientist Biotechnology Co., Ltd. Etik Komitesi tarafından onaylanmıştır (Etik Onay Numarası: SYST-2024-014). Ayrıca, Sichuan Eyalet Halk’s Hastanesi, insan klinik örneklerinin etik kullanımına onay verdi. in vitro deneyler (Etik Onay Numarası: 2024103). Tüm doku bağışçılarından yazılı onam alınmıştır. Bu çalışmada kullanılan reaktiflerin ve ekipmanların tüm ticari detayları aşağıdaki bölümlerde verilmiştir. Malzemeler Tablosu.
C3H/HeJ farelerinde AA modelinin oluşturulması ve AMG uygulaması
Literatürdeki önceki çalışmalara dayanarak C3H/HeJ farelerde AA modeli oluşturuldu ve AMG ile tedavi edildi38,39. Kısa bir şekilde, otuz adet dişi C3H/HeJ fare (6–8 haftalık fareler, rastgele beş ayrı gruba atanmadan önce bir haftalık aklimatizasyon döneminden geçirildi: Kontrol, AA, AMG-L, AMG-M ve AMG-H. Kontrol grubu hariç, kalan dört grupta AA modeli, farelerin dorsal cildine 0,05 g imikvimod krem uygulanarak oluşturuldu. Bu uygulama haftada üç kez yapıldı ve toplam dokuz doza ulaşıldı. Uygulanan cilt alanı 1,5 cm idi × 1.5 cm. Kontrol ve AA gruplarındaki farelere gavaj yoluyla her gün 0.02 mL/g normal salin verildi. AMG gruplarındaki farelere ise her gün 60, 90 ve 120 mg/kg dozlarında intragastrik enjeksiyonlar yapıldı. Uygulama süresi 21 gündür. AA modelinin genel gözlemi ve değerlendirmesi için iyi tanımlanmış dairesel alopesi alanı ≥ Çapı 1 cm, skar veya şiddetli inflamasyon olmaması ve kırık kıl şaftlarının bulunması gereklidir. Farelerde yaygın tüm vücut tüy kaybı, şiddetli cilt ülserasyonu veya spontan hızlı tüy yenilenmesi görülüyorsa dışlanırlar.
HPEM'ler
Önceki yöntemi takiben40, hastanede sünnet ameliyatı olan hastalardan alınan sağlıklı cilt dokuları seçildi ve %75 alkolde 5 dakika boyunca bekletildi. Cilt dokuları daha sonra ampisilin (100 U/mL) ve streptomisin sülfat (100 mg/mL) içeren PBS ile defalarca yıkandı ve dispaz II çözeltisinde 4 °C'de°C’de sindirime bırakılır. Ayrılan ve izole edilen epidermal tabakalar doğranır ve steril bir membran üzerinden filtrelenerek hücre süspansiyonu elde edilir. Santrifüj sonrası, çökelmiş alt tabaka hücreleri toplanır ve ardından serum içermeyen melanosit 254 ortamında yeniden süspanse edilerek yaklaşık 5 yoğunluğunda tekrar ekilir × 105 kültür şişelerinde ve bir CO2 inkübatör. Üç pasajdan sonra, saf melanositler sonraki deneylerde kullanıldı.
H'nin Kurulması2O2-indüklenen insan melanosit oksidatif stres hasarı modeli ve AMG müdahalesi
İnsan melanositleri, %60 ila %80 füzyon derecesine ulaştıktan sonra kontrol grubu ve farklı konsantrasyonlarda H içeren gruplara bölündü2O2 (200, 400, 600, 800 ve 1000 µM). 24 saatlik inkübasyonun ardından hücre canlılığı değerlendirildi CCK-8 yöntemiyle. Daha sonra, H'nin optimal konsantrasyonu2O2 melanosit oksidatif stres modelinin oluşturulmasında kullanıldı ve farklı konsantrasyonlarda AMG (0,1, 0,25, 0,5, 1, 2,5, 5 ve 10 mg/mL) 24 saatlik kültür süresince eklendi. Daha sonra hücre viyabilitesi, AMG konsantrasyonunun değerlendirilmesi ve taraması için seçildi.
HE incelemesi
Fare karaciğer ve böbrek dokuları %4 paraformaldehit ile 24 saat süreyle tespit edildi ve parafine gömüldü, ardından aşağıdaki adımlarda bir dehidrasyon işlemi uygulandı: %70 etanolde 4 saat, %80 etanolde 2 saat, %90 etanolde 2 saat, %95 etanolde 2 saat, susuz etanolde iki kez, her birinde 1 saat; ksilende iki kez, her birinde 30 dakika38,39,41. Ardından, 4-µm parafin kesitleri H&E boyaması yapılan örnekler, dehidre edildi, şeffaflaştırıldı ve nötral gomla monte edildi. Doku kesitlerinin dijitalleştirilmesi için bir 3D HISTECH tarayıcısı kullanıldı ve 20× ve 40× büyütme görüntüleri alındı.
Enzime bağlı immünosorbent assay (ELISA) ve biyokimyasal tespit
Cilt dokuları 1:9 (w/v) oranında bir tampon çözeltide homojenize edildi, ardından 1006–1789 × g 10 dakika boyunca. BCA kullanarak serum, deri doku ekstraktları ve hücre süpernatantlarında protein miktarının belirlenmesinin ardından MDA, IL-6, IL-15 ve IFN-γ karşılık gelen ELISA kitleri kullanılarak değerlendirildi. SOD, CAT ve GPX-4 enzim aktiviteleri ise ilgili biyokimyasal kitlerin talimatlarına göre belirlendi.
Reaktif oksijen türlerinin (ROS) tespiti için akış sitometrisi
Sera içermeyen kültür ortamı, 10'u seyreltmek için kullanıldıµM DCFH-DA'yı 1:1000 oranında. Daha sonra fare deri dokuları veya insan melanositleri 1–20×106 hücre/mL, 10 kullanılarakµM DCFH-DA. Hücreler 37 °C'de inkübe edildi°20 dakika boyunca C. Bu süre zarfında hücreler her 3 dakikada bir sallanarak karıştırıldı–5 dakika. Sera içermeyen ortamla üç kez yıkamadan sonra, intrasellüler ROS düzeyleri akış sitometrisi ile nicelendirildi ve bunun için uyarma ve emisyon dalgaboyları sırasıyla 488 nm ve 525 nm olarak ayarlandı.42,43.
İmmünofloresans ölçümü
FOXO3a (1:1000) birincil antikoru, 4-µm deri doku kesitleri veya sabitlenmiş HPEM'ler gece boyu 4°C. Daha sonra örnekler, Alexa Fluor floforlarıyla etiketlenmiş ikincil antikorlarla işlenmiş ve DAPI çözeltisiyle karşıt boyanmıştır. Son olarak, kesitler floresans mikroskobu ile incelenmiş ve görüntülenmiştir. ROS ile floresans görüntülemesi için, bir 4-µDonmuş deri doku kesiti veya HPEM slaytları oda sıcaklığında ısıtıldı ve kurutuldu. Doku etrafına histokimyasal kalemle bir daire çizildi. Slaytlar 5 dakika boyunca otofloresans bastırıcı ile muamele edildikten sonra 10 dakika süreyle akan su altında yıkandı. ROS boyama çözeltisi damlatıldı ve karanlıkta 37 °C'de inkübe edildi.°30 dakika boyunca C. Bölümler, bir dekolorizasyon sallayıcısı kullanılarak PBS'de üç kez 5 dakika yıkandı. Daha sonra DAPI boyama çözeltisi damlatıldı ve inkübe edildi karanlık koşullarda oda sıcaklığında 10 dakika boyunca. Lameller, anti-fluoresans söndürücü ortam ile kapatıldı. Daha sonra örnekler incelendi ve floresans mikroskobu ile görüntüler alındı. Uyarım/emisyon profilleri 330'dır–380/420 nm DAPI ve 510 için–560/590 nm, Cy3 için.
Batı blotu
Fare deri dokusu veya insan melanositleri için 50 mg deri dokusu veya 2 × 10⁵ hücreleri ve proteaz inhibitörleriyle zenginleştirilmiş 1 mL RIPA lizis tamponu, 1,5 mL'lik bir mikrosantrifüj tüpüne konuldu. 30 dakikalık bir buz banyosundan sonra, süpernatant fraksiyonunun toplanması için 12.000 g'de 5 dakika santrifüj uygulandı. BCA yöntemiyle protein konsantrasyonu belirlendikten sonra, proteine ek olarak 5× SDS yükleme tamponu, hacim oranı 4:1 olacak şekilde karıştırıldı ve ardından 95 °C'de bir metal banyoda kaynatıldı °C'de 5 dakika. Örnek, %10 SDS-PAGE elektroforezi ile 80 V veya 120 V'ta uygulandıktan sonra proteinler 0,22-µsabit 200 mA akımda 1 saat boyunca PVDF membran44,45Membranlar, daha sonra santrifüj shaker üzerinde oda sıcaklığında 1 saat boyunca %5 yağsız süt (TBST tamponu ile hazırlanmış) ile bloke edildi. Ardından membranlar, birincil antikorlara maruz bırakıldı. birinci sınıf major histouyumluluk kompleksi (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutatyon peroksidaz 4 (GPX-4) (1:1000) ve FOXO3a (1:1000) 4 °C'de °C'de gece boyu inkübe edildi. Membranlar, oda sıcaklığında 1 saat boyunca ikincil antikor (1:10000) ile muamele edildi. ChemiScope 6100 kullanılarak görüntüleri geliştirmek ve çekmek için ECL kemilüminesans reaktifi kullanıldı.
Nicel ters transkripsiyon-polimeraz zincir reaksiyonu (qRT-PCR)
İlk olarak, fare deri dokusundan veya insan melanositlerinden örnek RNA'sı üreticinin talimatlarına uygun olarak elde edildi’toplam RNA ekstraksiyon kiti talimatlarına göre. Ters transkripsiyon kiti kullanım talimatlarına göre, PCR cihazı parametreleri 25 olarak ayarlandı°10 dakika boyunca C, 42°C'de 15 dakika ve 85°C'de 5 dakika boyunca cDNA örnekleri elde edildi. Benzer şekilde, yeterli DNA kopya sayısı elde etmek için PCR cihazının ayarlanma parametreleri şu şekildeydi: Ön denatürasyon: 95°C'de 5 dk, 1 döngü; Denatürasyon: 95°C için 10 s, 40 döngü; Çekirdeklenme ve uzama: 60°C 30 s, 40 döngü. İlgilenilen genin normalize edilmiş ekspresyonu, aşağıdaki formül kullanılarak hesaplanır: 2‑ΔΔCq (ΔΔCq = Cqhedef‑Cqβ‑Aktin)46,47. qRT-PCR için gen primer dizileriyle ilgili bilgi şu şekilde gösterilmiştir: Tablo 1.
ChIP-PCR analizi
ChIP-PCR analizi, önceki protokole uygun olarak gerçekleştirildi48İlk olarak, hücreler %1 formaldehit ile 10 dakika boyunca çapraz bağlandı ve çapraz bağlama reaksiyonunu sonlandırmak için glisin çözeltisi eklendi. PMSF içeren soğuk PBS ile yıkamadan sonra hücreler PMSF içeren SDS lizis tamponu ile lizis edildi. Daha sonra, kromatin DNA'sı bir ultrasonik hücre parçalayıcı kullanılarak çoğunlukla 200 ila 1.000 bp aralığında parçalara ayrıldı ve parça boyutu agaroz jel elektroforezi ile doğrulandı. Parçalanmış kromatin örnekleri PMSF içeren ChIP seyreltme tamponunda yeniden süspanse edildi ve 20µL örnek, giriş kontrol grubu olarak alındı. Kalan örnekler Protein A+G Agaroz/Sağanak Somon Sperm DNA'sı ile önceden işlendi. Ardından, 0.5µbirincil antikor uygulandı ve ardından 4 °C'de gece boyu inkübasyon yapıldı°Yavaşça sallanarak C'de inkübe edildi. Negatif kontrol grubuna eşit miktarda tavşan IgG'si uygulandı. Ertesi gün, antijen-antikor komplekslerini yakalamak için Protein A+G agaroz boncukları eklendi ve kompleksler düşük tuzlu immün kompleks yıkama tamponu, yüksek tuzlu immün kompleks yıkama tamponu, LiCl immün kompleks yıkama tamponu ve TE tamponu ile ardışık olarak yıkandı. İmmünopresipite edilen kompleksler elüsyon tamponu ile elüe edildi ve hem elüsyon ürünleri hem de giriş kontrol grubundaki örnekler 65°C'de ısı uygulamasına maruz bırakıldı°4 saat boyunca C'de çapraz bağları kırmak için inkübe edildi. Proteinaz K ile protein sindiriminden sonra DNA, fenol-kloroform ekstraksiyonu ve ardından etanol çöktürmesi yöntemiyle izole edildi. Saflaştırılan DNA TE tamponunda çözüldü ve ardından qRT-PCR analizi için kullanıldı. ChIP-PCR için gen dizi bilgisi şu şekildedir Tablo 2.
ChIP-PCR için aday genomik bölgeler, JASPAR veri tabanı kullanılarak in silico tahminleme yöntemiyle seçildi (https://jaspar.elixir.no/). Özellikle, araştırmacılar TSS'nin 2000 bp yukarı akımına uzanan promotör dizilerini aldılar Katalaz, SODve GPX4 genleri. Bu diziler, karşılık gelen pozisyon ağırlık matrisi kullanılarak FOXO3a bağlanma motifleri için tarandı. Duyarlılık ve özgüllük arasında denge sağlamak amacıyla, yazarlar bir relatif profil skoru eşik değerini >%80. Bu kriteri karşılayan tüm öngörülen motifler arasında, yazarlar her gen için ChIP-PCR doğrulaması için aday bölgeler olarak en yüksek puanlı iki olası bölgeyi seçtiler. Örneğin, CAT geni, seçilen bölgeler TSS'ye göre -733 bp ve -1259 bp konumlarında yer almaktadır. Bu çalışmada kullanılan anti-FOXO3a antikoru, ticari olarak temin edilebilen ChIP kalitesinde bir antikordur. Özgüllüğü sağlamak için yazarlar, her bir ChIP-PCR analizi için iki bağımsız negatif kontrol uygulamıştır: izotip IgG ve negatif genomik lokus. İzotip IgG kontrolü, aynı türden immün olmayan IgG kullanılarak paralel immün çöktürmeler şeklinde gerçekleştirilmiştir. Negatif genomik lokus için yazarlar, tahmini FOXO3a konsensus motifinin bulunmadığı, bağlanma olmayan bir bölgeyi hedefleyen özel bir primer çifti tasarlamıştır. Bu kontrol bölgesi, rastgele kromatin parçalanmasına veya spesifik olmayan PCR çoğaltılmasına bağlı zenginleşmeyi dışlamalarını sağlamıştır. Kat zenginleştirme değeri, üç aşamalı bir normalizasyon stratejisi kullanılarak hesaplanmıştır.
Adım 1: Normalize edilmiş girdi ΔCt, ΔCt [normalize edilmiş IP] = Ct[IP]-(Ct[Giriş]-log₂(DF) (1)
ΔCt [normalize edilmiş IgG] = Ct[IgG] - (Ct[Giriş] - log₂(DF). (2)
DF = Giriş seyreltme faktörü; deneyde %10 giriş kullanıldığından DF = 10'dur.
Adım 2: ΔΔIP ve IgG arasındaki Ct
ΔΔCt [IP/IgG] =ΔCt [normalize edilmiş IP]ΔCt [normalize edilmiş IgG] (3)
3. Adım: Katlanma zenginleştirme değeri = 2(-ΔΔCt [IP/IgG]. (4)
İstatistiksel analiz
Veriler ortalama olarak ifade edilir ± en az üç bağımsız deneyin standart sapması temel alınmıştır. İstatistiksel analizler GraphPad Prism yazılımı (sürüm 6.0) kullanılarak gerçekleştirilmiştir. Normal dağılım ve varyans homojenliği gösteren çoklu gruplardaki verilerin karşılaştırılması tek yönlü varyans analizi (ANOVA) ile değerlendirilmiş, ardından Tukey testi uygulanmıştır’s sonrası testi. İstatistiksel anlamlılık, p < 0.05.
Sonuçlar
AMG, normal C3H/HeJ farelerde hepatorenal toksisite göstermemiştir
AMG'nin potansiyel karaciğer ve böbrek toksisitesini deneysel bir perspektiften net bir şekilde belirlemek için araştırmacılar, daha önce çalışılan üç dozu (60, 90 ve 120 mg/kg), normal C3H/HeJ farelerine gavage yoluyla uygulamışlardır 38. Şekil 1'de gösterildiği üzere, üç farklı dozda 21 gün boyunca intragastrik AMG uygulamasından sonra, hepatositlerin düzenli bir şekilde dizildiği hepatik lobül mimarisinin belirgin olduğu görülmüştür. Böbreğin kortikal ve medüller dokuları normaldir; glomerüllerde veya renal tübüllerde herhangi bir hasar veya lezyon gözlemlenmemiştir. AMG uygulama süresi boyunca farelerin hiçbirinde anormal davranışsal belirtiler görülmemiştir. Gerçekten de, bu çalışmada biyokimyasal toksisite/vücut ağırlığı verileri test edilmemiştir ve bu durum AMG'nin karaciğer ve böbrek toksisitesi olmadığına dair sonucun rasyonelliğini etkileyebilir. Bununla birlikte, karaciğer ve böbreğin histopatolojik inceleme sonuçlarına dayanarak bu veriler, yazarlar tarafından belirlenen dozlarda AA için AMG tedavisinin makul olduğunu kısmen desteklemektedir.
AMG, ROS oluşumunun yanı sıra AA'nın meydana gelmesini ve gelişimini inhibe eder
İlk olarak, MHC I ve IL-15 göstergelerini ölçtüler; bunlar... başlangıcı ve seyri ile ayrılmaz biçimde bağlantılı AA'nın. Şekilde gösterildiği gibi Şekil 2A–C, AA simülasyonunun patolojik koşulları altında, C3H/HeJ farelerin deri dokularındaki MHC I ve IL-15 protein miktarları anlamlı şekilde artmıştır (p < 0,001). Buna karşın, AMG-M ve AMG-H uygulamaları bu iki proteinin ekspresyon seviyelerini anlamlı derecede düşürmüştür (p < 0,01 veya p < 0.001). Benzer şekilde, üç AMG tedavi dozu serumdaki IL-15 seviyesini anlamlı derecede baskılamıştır (p < 0.001, Şekil 2D). Ayrıca, immunofloresan sonuçları, AA grubu farelerin derisinde yüksek miktarda ROS bulunduğunu, AMG müdahalesinin ise AA grubuna kıyasla ROS ekspresyonunu anlamlı derecede azalttığını göstermiştir (p < 0.001, Şekil 2E ve F). Tutarlı bir şekilde, akış sitometrisi sonuçları, AA grubunun cilt dokularındaki ROS seviyelerinin şunlara kıyasla anlamlı derecede yükseldiğini göstermiştir: kontrol grubu. Ancak, AA grubu ile karşılaştırıldığında, AMG müdahalesi ROS artışını tersine çevirmiştir (p < 0.001, Şekil 2G ve H).
AMG, FOXO3a'nın protein ve gen ekspresyonunu stimüle etmiştir
AMG'nin FOXO3a üzerindeki etkisini araştırmak için yazarlar, hem protein hem de genetik düzeydeki ekspresyon seviyelerini test etmişlerdir. İmmünofloresan sonuçları, AA grubunda FOXO3a protein ekspresyonunda belirgin bir azalma olduğunu, AMG'nin ise C3H/HeJ farelerinin deri dokusunda FOXO3a protein seviyesini stimüle ettiğini göstermiştir (p < 0.001, Şekil 3A ve B). Ayrıca, qRT-PCR verileri AMG'nin FOXO3a gen ekspresyonunu önemli ölçüde artırdığını göstermektedir (p < 0.001; Şekil 3C). Benzer şekilde, Western blot deneyi AMG'nin önemli ölçüde artırılmış FOXO3a protein ekspresyonu (p < 0,05 veya p < 0.001, Şekil 3D ve E).
AMG, AA farelerinin deri dokularındaki oksidatif stres olaylarını inhibe etmiştir
Oksidatif stres tarafından stimüle edilen AA'nın patolojik ilerlemesi, durumun kötüleşmesine yol açar. Şekil 4'teki biyokimyasal test sonuçları, kontrol grubuyla karşılaştırıldığında, AA grubundaki farelerin deri dokularındaki antioksidan belirteçler SOD, CAT ve GPX-4'ün önemli ölçüde inhibe olduğunu (p < 0.001, Şekil 4A ve B), buna karşın pro-oksidatif belirteç MDA'nın ise belirgin şekilde arttığını (p < 0.001, Şekil 4C) göstermektedir. Beklendiği üzere araştırmacılar, AMG tedavisi sonrası antioksidan belirteçlerin önemli ölçüde arttığını, pro-oksidatif belirteçlerin ise önemli ölçüde azaldığını tespit etmişlerdir (p < 0.001; Şekil 4A–C). Benzer şekilde, Western blot verileri de AMG müdahalesinin antioksidan belirteçler SOD, CAT ve GPX-4'ün protein ekspresyon seviyelerini önemli ölçüde artırdığını ortaya koymuştur (p < 0.001; Şekil 4D ve 4E).
AMG, H2O2 ile indüklenen HPEM'lerdeki apoptozu ve inflamatuar olayları azaltmıştır
Şekil 5A'da gösterilen sonuçlar, artan H2O2 konsantrasyonlarının (200–1000 µM) HPEM'lerin viyabilitesini kademeli olarak bozduğunu göstermektedir (p < 0.001). Bunlar arasında 600 µM H2O2, HPEM'lerin hücre viyabilitesini azaltmak için en uygun konsantrasyon olarak belirlenmiştir (p < 0.001). Ayrıca yazarlar, HPEM hücrelerini stimüle eden 600 µM H2O2 koşulu altında, 0.1–10 mg/mL AMG'nin hücre viyabilitesini anlamlı şekilde artırabildiğini saptamışlardır (p < 0.05 veya p < 0.001, Şekil 5B). Hayvan deneyi sonuçlarıyla uyumlu olarak yazarlar, Şekil 5C ve D'deki apoptoz saptama akış sitometrisi ile gösterildiği üzere, AMG'nin HPEM'lerde H2O2 tarafından indüklenen apoptozu anlamlı düzeyde inhibe ettiğini bulmuşlardır (p < 0.001). MHC I göstergesi için yapılan Western blot analizi, AMG'nin H2O2 indüklemeli hasara maruz kalan HPEM'lerde protein ekspresyonunu belirgin şekilde baskıladığını kanıtlamıştır (p < 0.05 veya p < 0.01; Şekil 5E ve 5F). İnflamatuar faktörlerin saptanması için yapılan ELISA sonuçları, AMG'nin H2O2 ile indüklenen HPEM'lerde IFN-γ, IL-6 ve IL-15 dahil olmak üzere pro-inflamatuar sitokinlerin bolluğunu anlamlı ölçüde azalttığını göstermiştir (p < 0.001; Şekil 5G). Dahası, bu üç pro-inflamatuar proteinin AMG tarafından inhibisyonu, Şekil 5H ve I'de sunulduğu üzere Western blot analizi ile daha da doğrulanmıştır (p < 0.01 veya p < 0.001).
AMG, H2O2 ile indüklenen HPEM'lerdeki ROS seviyelerini düşürmüştür
H2O2 ve AMG ile işlem görmemiş HPEM hücreleri ile karşılaştırıldığında, 600 µM H2O2 ile stimülasyonun ROS üretimini belirgin şekilde artırdığı, sırasıyla immünofloresans (p < 0.001, Şekil 6A ve B) ve akış sitometrisi deneylerinin (p < 0.001, Şekil 6C ve D) sonuçlarıyla kanıtlanmıştır. İlginç bir şekilde, AMG ROS miktarını önemli ölçüde azaltmıştır (p < 0.001, Şekil 6).
AMG, H2O2 tarafından indüklenen HPEM'lerdeki oksidatif stres olayını sınırlamıştır2O2
Benzer şekilde yazarlar, AMG'nin H2O2 ile indüklenen HPEM'lerdeki oksidatif stresi nasıl etkilediğini değerlendirmiştir.2O2Kontrol grubuyla karşılaştırıldığında, H2O2 stimülasyon, SOD, CAT ve GPX-4 fonksiyonlarında bir azalmaya yol açmıştır (p < 0.001, Şekil 7A ve B), buna karşılık MDA seviyelerini önemli ölçüde artırırken (p < 0.001, Şekil 7C). Şaşırtıcı bir şekilde, AMG müdahalesi SOD, CAT ve GPX-4 aktivitelerini önemli ölçüde artırmıştır (p < 0.001, Şekil 7A ve B), aynı zamanda MDA düzeyini düşürürken (p < 0.001, Şekil 7C). Ayrıca Western blot sonuçları, AMG müdahalesinin SOD, CAT ve GPX-4 protein ekspresyonunu anlamlı şekilde artırdığını kanıtlamıştır (p < 0,05 veya p < 0.01, Şekil 7D ve E).
AMG, H2O2 tarafından indüklenen HPEM'lerde FOXO3a düzeyini ve FOXO3a tarafından regüle edilen SOD, CAT ve GPX-4'ü artırdı
Kontrol grubuyla karşılaştırıldığında, H2O2 stimülasyonu FOXO3a gen ekspresyonunda belirgin bir azalmaya yol açarken (p < 0.001, Şekil 8A), AMG müdahalesi bu etkiyi anlamlı derecede hafifletti (p < 0.05, Şekil 8A). Ayrıca Western blot (p < 0.05, Şekil 8B ve C) ve immünofloresan (p < 0.05, Şekil 8D ve E) analizleri de AMG uygulamasının FOXO3a protein ekspresyonunu önemli ölçüde artırdığını doğruladı. ChIP-PCR deneyi, Şekil 8F–I'de gösterildiği gibi AMG'nin SOD (p < 0.001), CAT (p < 0.01) ve GPX-4 (p < 0.01) ekspresyon seviyelerini ve aynı zamanda SOD (p < 0.001), CAT (p < 0.001) ve GPX-4 (p < 0.001) promotörlerindeki FOXO3a zenginleştirme düzeyini artırabildiğini kanıtladı (Şekil 8J–L).
AMG, H2O2 tarafından indüklenen HPEM'lerdeki FOXO3a tarafından regüle edilen oksidatif stres ve apoptotik fenomenleri baskıladı
Başlangıçta araştırmacılar, FOXO3a'nın protein ekspresyonunda (p < 0.001, Şekil 9A ve B) ve gen (p < 0.001, Şekil 9C) ekspresyon seviyelerinde belirgin bir düşüş ile karakterize edilen, düşük FOXO3a ekspresyonlu bir HPEM hattı oluşturdular. Akış sitometrisi sonuçları, H2O2 grubuyla karşılaştırıldığında, AMG'nin düşük FOXO3a ekspresyonlu HPEM'lerde ROS seviyelerini ve hücre apoptozunu belirgin şekilde azalttığını gösterdi (p < 0.001, Şekil 9D–G). Bu sırada AMG, düşük FOXO3a ekspresyonlu HPEM'lerde FOXO3a protein ve gen ekspresyonunu (p < 0.01, Şekil 9H–J) ve FOXO3a tarafından regüle edilen SOD, CAT ve GPX-4 proteinlerinin (p < 0.05, p < 0.01 veya p < 0.001, Şekil 9H, K–O) ve genlerin ekspresyon seviyelerini anlamlı derecede artırdı.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Tüm ham veriler, şu URL adresindeki halka açık veri deposunda mevcuttur: https://doi.org/10.5281/zenodo.22090466.
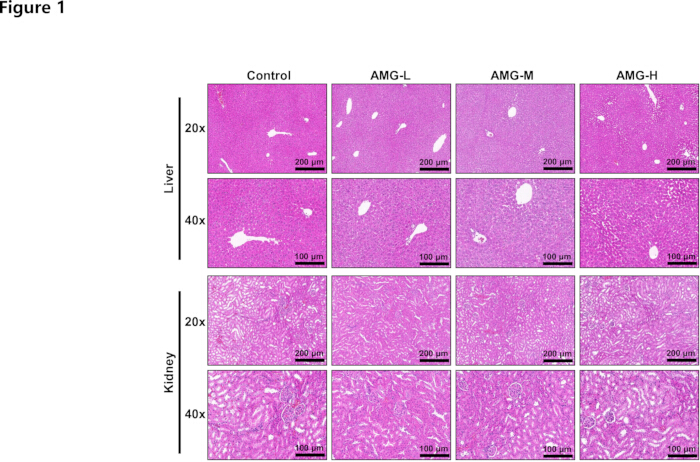
Şekil 1: HE boyaması. AMG'nin (60, 90 ve 120 mg/kg) normal C3H/HeJ farelerinin karaciğer ve böbrekleri üzerindeki doz bağımlı toksisitesini değerlendirmek için HE boyaması kullanılmıştır. 20× (200 µm) ve 40× (100 µm) büyütme altında karaciğer ve böbrekte herhangi bir spesifik patolojik hasar gözlenmemiştir. n = 6. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
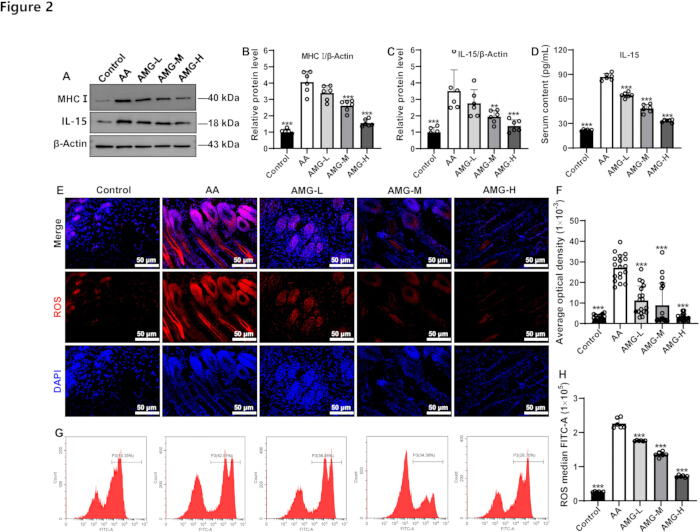
Şekil 2AMG'nin AA farelerinin deri örneklerindeki MHC I, IL-15 ve ROS üzerindeki etkileri. (A–C), Western blot ile değerlendirildiği üzere, AMG, MHC I ve IL-15'in protein ekspresyon seviyelerini azaltmıştır. (D), AMG düşürüldü Farelerin serumundaki IL-15 seviyeleri.E ve F), IF analizi ile tespit edildiği üzere, AMG fare deri örneklerindeki ROS seviyelerini azaltmıştır. (G ve H), AMG, flow sitemetri ile belirlendiği üzere fare deri örneklerinde ROS seviyelerini düşürmüştür. Deneysel sonuçlar ortalama şeklinde sunulmuştur ± SD. **p < 0,01 ve ***p < AA grubuyla karşılaştırıldığında p = 0,001; n = 6. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
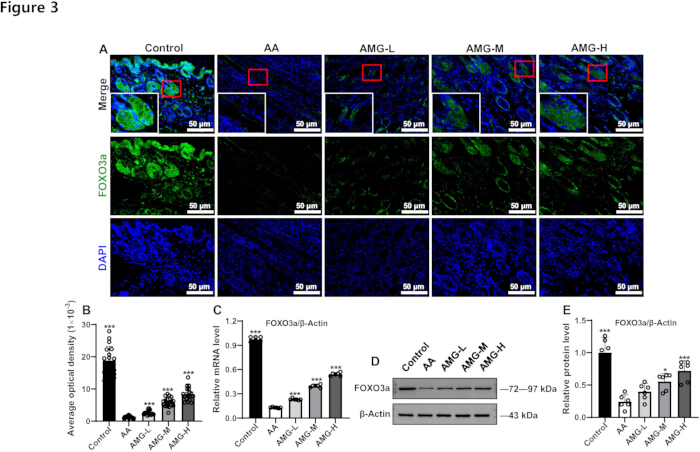
Şekil 3: AMG'nin AA farelerinin deri örneklerindeki FOXO3a protein ve gen seviyeleri üzerindeki etkileri. (A) IF analizi ile değerlendirildiği üzere, AMG FOXO3a protein seviyelerini artırmıştır. (B) IF'nin kantitatif sonuçları. (C) AMG, FOXO3a gen ekspresyonunu artırmıştır. (D) Western blot ile tespit edildiği üzere, AMG FOXO3a protein ekspresyonunu artırmıştır. (E) Western blot'un kantitatif sonuçları. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. *p < 0.05 ve ***p < 0.001 AA grubuna kıyasla; n = 6. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
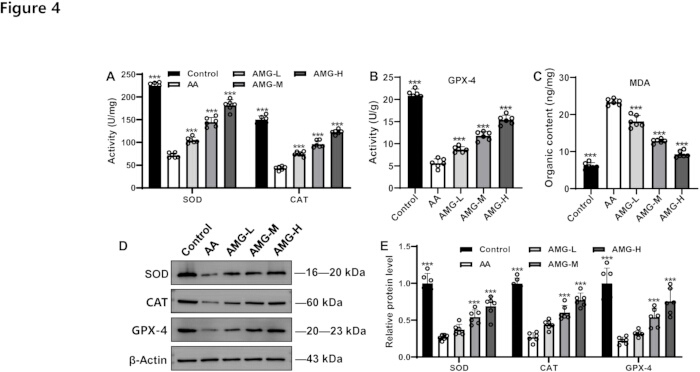
Şekil 4: AMG'nin AA farelerinin deri örneklerindeki oksidatif stres göstergeleri üzerindeki etkileri. (A) AMG, biyokimyasal test kiti kullanılarak değerlendirilen SOD ve CAT seviyelerini stimüle etmiştir. (B) ve (C) kısımlarında, AMG GPX-4 seviyelerini artırmış ve MDA seviyelerini baskılamıştır. (D) SOD, CAT ve GPX-4'e ait temsili protein bantları. (E) SOD, CAT ve GPX-4 için protein ekspresyonunun kantitatif sonuçları. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. ***p < 0.001 AA grubuyla karşılaştırıldığında; n = 6. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
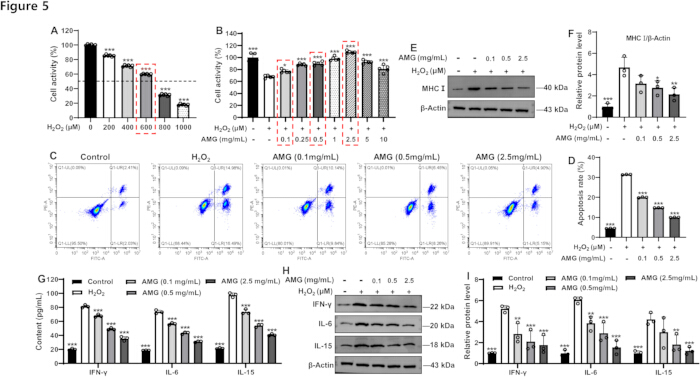
Şekil 5: AMG'nin H2O2 tarafından indüklenen HPEM'lerin apoptoz ve inflamatuar belirteçleri üzerindeki etkileri. (A) Farklı H2O2 konsantrasyonlarının HPEM canlılığı üzerindeki sonuçları (n = 6). (B) Farklı AMG konsantrasyonlarının H2O2 stimülasyonu ile indüklenen HPEM'lerin sağkalımı üzerindeki etkileri (n = 6). (C) H2O2 stimülasyonu ile indüklenen HPEM'lerde AMG aracılı apoptozu değerlendirmek için akış sitometrik analiz uygulanmıştır. (D) Hücre apoptozunun istatistiksel sonuçları. (E) MHC I'in Western blot bandı. (F) MHC I proteininin bağıl ekspresyonunun kantitatif sonucu. (G) AMG'nin H2O2 stimülasyonu ile indüklenen HPEM'lerde IFN-γ, IL-6 ve IL-15 üzerindeki etkileri. (H) IFN-γ, IL-6 ve IL-15'in Western blot bantları. (I) IFN-γ, IL-6 ve IL-15 proteinlerinin bağıl düzeylerinin kantitatif sonucu. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. *p < 0.05, **p < 0.01 ve ***p < 0.001 H2O2 grubuna kıyasla; n = 3. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
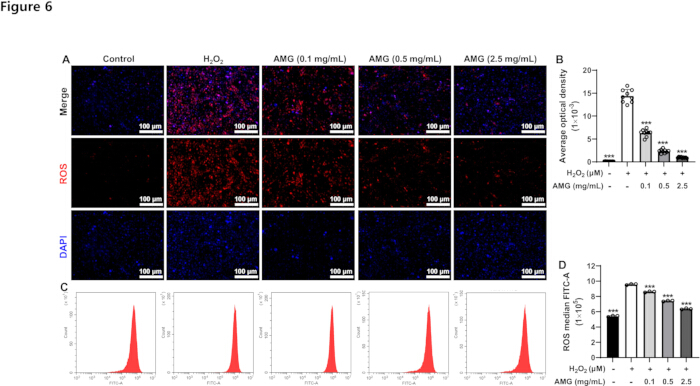
Şekil 6: AMG'nin H2O2 ile indüklenen HPEM'lerdeki ROS üzerindeki etkileri. (A) ROS'un floresan görüntüsü. (B) ROS'un floresan kantitatif istatistik sonuçları. (C) ROS'un akış sitometrisi görüntüsü. (D) ROS'un akış sitometrik kantitatif istatistik sonuçları. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. ***p < 0,001 H2O2 grubuna kıyasla; n = 3. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
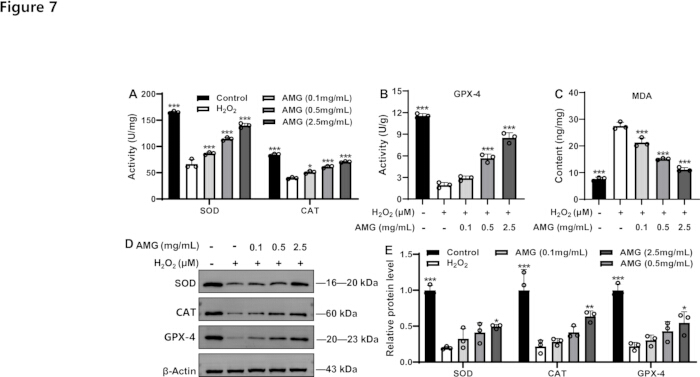
Şekil 7: AMG'nin H2O2 ile indüklenen HPEM'lerdeki oksidatif stres göstergeleri üzerindeki etkileri. HPEM'lerdeki SOD (A), CAT (B), GPX-4 (C) ve MDA seviyeleri biyokimyasal kitler veya ELISA kitleri kullanılarak ölçülmüştür. SOD, CAT ve GPX-4'ün Western blot bantları (D) ve bunların kantitatif sonuçları (E). Deneysel sonuçlar ortalama ± SD olarak sunulmuştur. *p < 0.05, **p < 0.01 ve ***p < 0.001 H2O2 grubuna kıyasla; n = 3. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
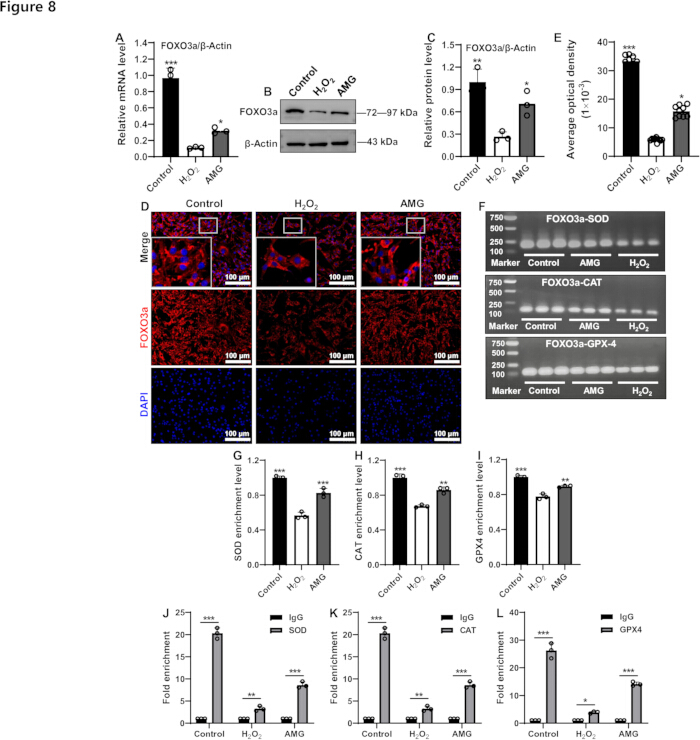
Şekil 8: H2O2 ile indüklenen HPEM'lerde AMG'nin FOXO3a üzerindeki etkileri. (A) FOXO3a geninin ekspresyon seviyesi. FOXO3a'nın Western blot bantları (B) ve nicel sonuçları (C). FOXO3a'nın floresan görüntüsü (D) ve floresan nicel istatistik sonuçları (E). (F) FOXO3a-SOD, FOXO3a-CAT ve FOXO3a-GPX-4 için ChIP-PCR'ın temsili elektroforetik paternleri. SOD (G), CAT (H) ve GPX-4 (I) için ChIP-PCR bantlarının gri değerlerinin nicel analizi. SOD (J), CAT (K) ve GPX-4 (L) promotörlerindeki FOXO3a zenginleştirme seviyeleri ChIP-PCR ile tespit edilmiştir. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. *p < 0.05, **p < 0.01 ve ***p < 0.001 H2O2 grubuna veya belirtilen gruplara kıyasla; n = 3. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
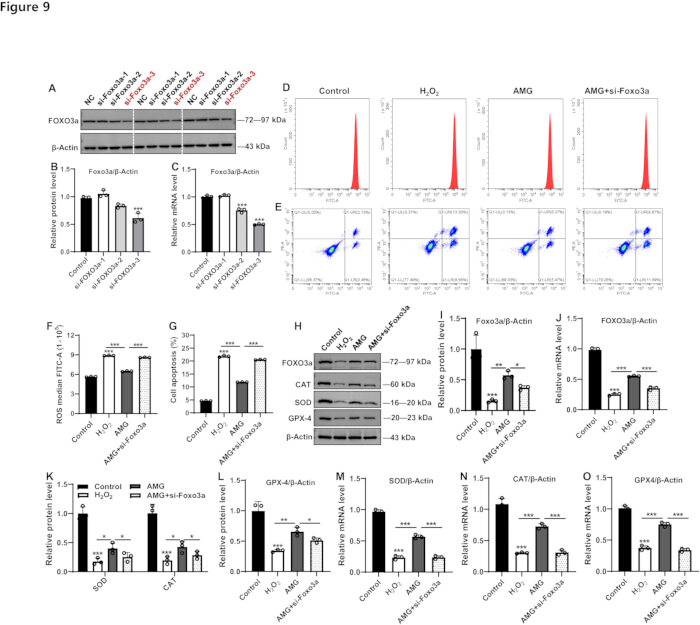
Şekil 9: FOXO3a düşük ekspresyonlu ve H2O2 stimülasyonlu HPEM hücrelerinde AMG'nin oksidatif stres ve apoptoz üzerindeki etkileri. (A) FOXO3a'nın Western blot bantları ve kantitatif sonucu (B). (C) FOXO3a mRNA ekspresyonunun kantitatif sonucu. (D) ROS ve hücre apoptozunun akış sitometrisi grafiği (E). Ve ilişkili istatistiksel bulgular (F ve G). (H) FOXO3a, SOD, CAT ve GPX-4'ün Western blot bantları. (I) FOXO3a protein ekspresyonunun kantitatif sonucu. (J) FOXO3a mRNA ekspresyonunun kantitatif sonucu. (K ve L) SOD, CAT ve GPX-4 protein ekspresyonunun kantitatif sonuçları. SOD (M), CAT (N) ve GPX-4 (O) gen ekspresyonlarının kantitatif sonuçları. Deneysel sonuçlar ortalama ± SD şeklinde sunulmuştur. *p < 0.05, **p < 0.01 ve ***p < 0.001 kontrol grubuna veya belirtilen gruplara kıyasla; n = 3. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
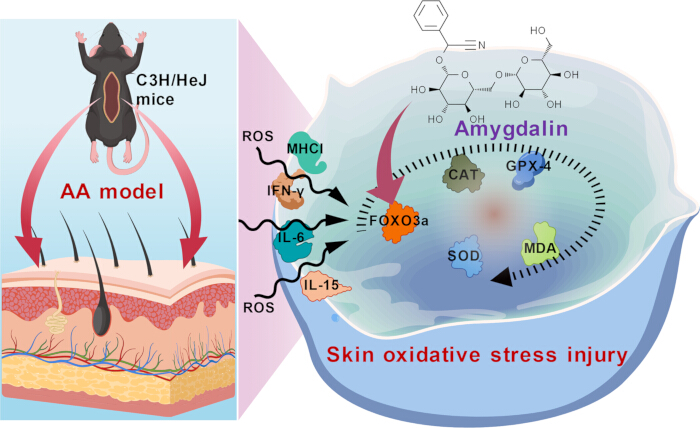
Şekil 10: Şematik diyagram. Bu diyagram, AMG'nin FOXO3a ekspresyonunu stimüle ederek oksidatif stresi ve inflamasyonu inhibe etme ve AA'yı iyileştirme mekanizmasını göstermektedir. Yazarlar tarafından şu kullanılarak oluşturulmuştur BioGDP.com ve herhangi bir telif hakkı sorunu bulunmamaktadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Genler | Türler | Sekanslar (5' - 3') | Uzunluk (bp) |
| FOXO3a | Fare | İleri: GCAAGCCGTGTACTGTGGA | 116 |
| Geri: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | İnsan | İleri: CGGACAAACGGCTCACTCT | 150 |
| Geri: GGACCCGCATGAATCGACTAT | |||
| SOD | İnsan | İleri: AAAGATGGTGTGGCCGATGT | 167 |
| Geri: CAAGCCAAACGACTTCCAGC | |||
| CAT | İnsan | İleri: CTATCCTGACACTCACCGCC | 129 |
| Geri: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | İnsan | İleri: GCAAGGGCATCCTGGGAAAT | 84 |
| Geri: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | İnsan | İleri: AATCTGGCACCACACCTTCTACAA | 172 |
| Geri: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Fare | İleri: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Geri: ATGCCACAGGATTCCATACC |
Tablo 1: qRT-PCR için gen dizisi bilgileri. qRT-PCR için kullanılan primerler.
| Genler | Türler | Diziler (5' - 3') | Uzunluk (bp) |
| SOD | İnsan | İleri: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Ters: ATCCGCCCACAGACACGAGAG | |||
| Katalaz | İnsan | İleri: GGGAAGCAGATTTCTCCAGTG | 141 |
| Ters: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | İnsan | İleri: TGGCACATTTTGGGGTTGGAAC | 103 |
| Ters: TGAACGCTCCTCCTCCTTAAACG |
Tablo 2: ChIP-PCR için gen dizisi bilgileri.ChIP-PCR için kullanılan primerler.
Tartışma
AMG'nin kendisinin doğrudan bir toksisitesi yoktur. Bağırsak mikrobiyal enzimleri veya mide asidi tarafından hidrolize edilerek yüksek derecede toksik olan hidrojen siyanür üretir ve açığa çıkarır49. Hidrojen siyanür daha sonra sindirim sistemi yoluyla hızla kan dolaşımına emilir ve vücut dokularına yayılıp sinir sistemi, kardiyovasküler sistem ve solunum sistemi dokularında hipoksiye neden olur50. Mekanizma açısından hidrojen siyanür, sitokrom oksidazdaki demir iyonları ile birleşerek hücresel solunum zincirini bloke eder; bu da doku hipoksisine ve hücresel metabolik bozukluklara yol açarak akut zehirlenmeyi tetikler51. Toksik semptomlar arasında baş ağrısı, bulantı, kusma ve nefes alma güçlükleri yer alır49,52. Ağır vakalarda solunum yetmezliğine ve ölüme yol açabilir49,52. Bu nedenle, AMG'nin güvenli doz aralığının belirlenmesi, farmakolojik etkilerinin incelenmesi için bir ön koşuldur. Bu çalışmada yazarlar, kullandıkları dozların (60, 90 ve 120 mg/kg) normal C3H/HeJ farelerinde karaciğer veya böbrek toksisitesine neden olmadığını patolojik inceleme ile öncelikle teyit etmişlerdir; bu durum, AMG ile alopecia areata tedavisine yönelik daha ileri araştırmalar için temel oluşturmaktadır.
IFN-γ, temel olarak aktive olmuş CD4+/CD8+ T hücreleri tarafından salgılanarak AA gelişimi sırasında inflamasyonun kritik bir sürücüsü olarak görev yapar53,54,55. Kıl foliküllerinin immünolojik ayrıcalığını bozarak (MHC I'in düşük ekspresyonunu inhibe etmek gibi), otoreaktif T hücrelerinin kıl folikülü melanositlerine saldırmasını tetikler ve bu durum kıl ana hücrelerinde vakuolizasyona ve kıl bulbunda anormal keratinizasyona yol açar56,57. Hayvan deneyleri, IFN-γ geni eksik olan farelerin AA'ya karşı direnç gösterdiğini kanıtlamıştır58. IL-6 ve IL-15, JAK/STAT sinyal iletim kaskadını aktive ederek ve IFN-γ salınımını destekleyerek Th1 tipi immün yanıtları artırabilir59. Ayrıca, IL-15 NK hücrelerinin ve T hücrelerinin proliferasyonunu stimüle ederek kıl folikülü yapılarını çevreleyen inflamatuar infiltrasyonu şiddetlendirebilir60. Normal kıl bulbları, MHC I'in düşük ekspresyonu sayesinde immün sürveyanstan kaçarken; AA hastalarında MHC I anormal şekilde upregüle olur ve bu durum kıl folikülü melanositlerini T hücresi saldırısının hedefi haline getirir61. Bu çalışmada yazarlar, AMG tedavisinin C3H/HeJ farelerinin derisindeki MHC I ve IL-15 protein seviyelerini önemli ölçüde downregüle ettiğini belirtmişlerdir. Önceki hayvan deneyleri de AMG'nin AA farelerinde IFN-γ ve IL-6 seviyelerini inhibe edebildiğini doğrulamıştır38. H2O2-indüklü HPEM hasarında, MHC I'in yanı sıra IFN-γ, IL-6 ve IL-15 dahil olmak üzere pro-inflamatuar sitokinler, AMG tedavisinden sonra önemli ölçüde kısıtlanmıştır. Bu veriler, AMG'nin AA tedavisindeki potansiyelinin, immünite ve inflamasyon arasındaki dengenin korunmasıyla ilişkili olabileceğini göstermektedir.
Antioksidan enzim sistemi (SOD, CAT ve GPX-4) ile lipid peroksidasyon belirteçleri MDA ve ROS arasındaki dengesizlik, AA patogenezinde kritik bir rol oynar62. SOD, O2·⁻'nin H2O2'ye dönüşümünü katalize ederek oksidatif stresi azaltırken, CAT ve GPX-4, H2O2'yi daha ileri düzeyde H2O'ya ayrıştırarak ROS birikimini önler. Kanıtlar, aşırı ROS'un lipid peroksidasyonunu tetikleyerek MDA seviyelerinin yükselmesine yol açabileceğini ve kıl folikülü hücrelerine doğrudan zarar verebileceğini göstermektedir63. AA'lı hastalarda, kıl foliküllerindeki ROS temizleme yeteneği azalır ve MDA birikimi, kıl papilla hücrelerinin apoptotik ölümünü şiddetlendirerek kıl foliküllerinin vaktinden önce dinlenme evresine girmesine neden olur63. Dahası, oksidatif stres, pro-inflamatuar faktör IFN-γ salınımını teşvik ederek immun saldırıyı ve kıl folikülü dejenerasyonunu daha da kötüleştirebilir64. Bu çalışmada araştırmacılar, AMG müdahalesinin AA farelerinin derisindeki aşırı eksprese ROS'u ve H2O2-indüklü HPEM hücre hasarını azalttığını netleştirmişlerdir. Bu sırada, hem in vivo hem de ex vivo deneysel incelemeler, AMG tedavisinin antioksidan belirteçleri (SOD, CAT ve GPX-4) anlamlı şekilde artırdığını, pro-oksidatif belirteç MDA'yı ise zayıflattığını ortaya koymuştur. Bu kanıtlar, oksidatif stres dengesinin korunmasının AMG'nin AA'ya olan katkısı olduğuna işaret etmektedir. Bozulmuş GPX-4 aktivitesinin kontrolsüz MDA üretimine yol açacağı düşünüldüğünde, bu durum ferroptoz sürecini tetikleyebilir. Bu moleküler süreçler aynı zamanda AA'nın şiddetlenmesine katkıda bulunabilir ve AMG tedavisi için potansiyel bir mekanizma görevi görebilir. Tüm bunların gelecekte daha fazla deneysel doğrulamaya ihtiyacı vardır.
Kilit bir transkripsiyon faktörü olan FOXO3a, hem oksidatif stres hem de immün regülasyon yolakları aracılığıyla AA patogenezinde rol oynayabilir65Oksidatif stres altında çekirdeğe transloke olabilir ve böylece aşırı ROS'u temizlemek ve saç derisi dokusundaki oksidatif hasarı azaltmak için SOD ve CAT gibi temel antioksidan enzimleri yukarı regüle edebilir. FOXO3a, yerel oksidatif yükü hafifleterek kıl foliküllerinin immün ayrıcalığını stabilize edebilir ve skar bırakmayan saç kaybına yol açan otoimmün atağı dizginleyebilir. Oksidatif stres regülasyonu açısından, FOXO3a aktivasyonu SOD ve CAT gibi antioksidan enzimlerin ekspresyonunu yukarı regüle edebilir ve ROS birikimini inhibe edebilir.65Bununla birlikte, bozulmuş FOXO3a fonksiyonu, temel bir lipid peroksidasyon ürünü olan MDA üretiminin artmasını tetikleyerek hücre apoptozunu şiddetlendirebilir 66. İmmün düzenleme düzeyinde ise FOXO3a, MHC I-kısıtlı antijenleri düzenleyerek otoimmün saldırıları tetikler.67Bu çalışma, AMG'nin C3H/HeJ farelerinin deri dokusunda ve H2O2 ile indüklenmiş HPEM hücrelerinde FOXO3a protein ve gen düzeylerini önemli ölçüde artırdığını bildirmiştir. Ayrıca AMG, düşük FOXO3a ekspresyonuna sahip HPEM hücrelerinde ROS düzeylerini ve hücre apoptozunu azaltırken, FOXO3a ekspresyonunu ve FOXO3a tarafından düzenlenen SOD, CAT ve GPX-4 düzeylerini yükseltmiştir. Toplu olarak bu bulgular, AMG'nin AA üzerindeki terapötik etkisinin, oksidatif stres ile hücresel apoptoz arasındaki FOXO3a aracılı düzenleyici dengeyle yakından ilişkili olduğunu göstermektedir. AMG aracılı FOXO3a'nın AA'yı iyileştirmedeki nedensel ilişkisi göz önüne alındığında, gelecek çalışmalarda AMG müdahalesi altında FOXO3a aşırı ekspresyonunun veya farmakolojik inhibisyonunun gerçekleştirilmesi gereklidir. Ek olarak, AMG aracılı FOXO3a'nın oksidatif stresi hafifletip hafifletemeyeceği ve kıl folikülü kök hücrelerini ROS kaynaklı hasardan ve immün aracılı yıkımdan korumak için inflamatuar yanıtları modüle edip edemeyeceği henüz araştırılmamıştır. Not edilmeye değer bir diğer nokta ise, AMG'nin antioksidan etkisini H2O2 toksisitesini doğrudan etkisiz hale getirerek gösterip göstermediğidir.₂O₂ veya hücre içi sinyal iletimini düzenleyerek gerçekleşip gerçekleşmediği, bu araştırmada henüz çözülememiş bir konudur.
Sonuç olarak, bu çalışma öncelikle AMG'nin test edilen dozlarda karaciğer ve böbrekler için potansiyel olarak toksik olmadığını doğrulamıştır. Ayrıca, AMG'nin FOXO3a ekspresyonunu teşvik edebileceği, böylece SOD, CAT ve GPX-4 ekspresyonlarını transkripsiyonel olarak aktive ederek ve AA'yı tedavi etmek için inflamatuar yanıtları ve apoptotik olayları inhibe ederek etki gösterdiği moleküler düzeyde kanıtlanmıştır (Şekil 10). Bununla birlikte, bu çalışmada mevcut olan bazı kısıtlamaların sonraki araştırmalarda hala araştırılması ve açıklığa kavuşturulması gerekmektedir. İlk olarak, AMG'nin AA hayvanlarındaki uzun vadeli toksisitesinin ve farmakokinetik özelliklerinin açıklığa kavuşturulması, farmakolojik etkileri ve moleküler mekanizmaları üzerine yapılacak derinlemesine araştırmalar için temel ve önkoşul teşkil etmektedir. İkinci olarak, AMG'nin AA tedavisindeki farmakolojik etkilerinin, birden fazla hayvan modelinde geniş ölçekli çalışmalar ve klinik deneyler aracılığıyla doğrulanması hala gereklidir. Moleküler mekanizma açısından, AMG'nin farmakolojik etkisine aracılık edenin FOXO3a olup olmadığını daha fazla doğrulamak için kurtarma (rescue) deneylerinin yapılması hala gereklidir. AMG'nin doğrudan antioksidan aktivitesi mi yoksa AMG aracılı FOXO3a tarafından uygulanan antioksidan etki mi olduğu daha fazla araştırma gerektirmektedir.
Açıklamalar
Yazarların açıklayacak çıkar çatışmaları yoktur.
YAZARLAR’ KATKIDA BULUNAN:
Xun He: Soruşturma, Yöntemoloji, Yazma – orijinal taslak. Jingsong Liu, Jiawei Wang ve Zhe Dai: Veri yönetimi. Yugang Gong, Wei Lu ve Xiaowei Sha: Yazılım, Görselleştirme ve Doğrulama. Xun He: Kavramsallaştırma, Yazım – İnceleme & Düzenleme, fon sağlama ve denetim.
Teşekkürler
Bu çalışma, Sichuan Eyalet Kadroları Sağlık Komitesi (2024-221) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 5×Hepsi Bir Arada MasterMix (AccuRT genomik DNA giderme kiti ile) | Applied Biological Materials Inc., Jiangsu, Çin | G492 | |
| β-Aktin antikoru | Affinity Biosciences Co., Ltd., Wuhan, Çin | AF7018 | |
| Amigdalin | Chengdu Herbpurify Co., Ltd., Chengdu, Çin | K-001-181216 | |
| Katalaz antikoru | Proteintech, Wuhan, Çin | 66765-1-Ig | |
| Katalaz kiti | Elabscience, Wuhan, Çin | E-BC-K031-M | |
| C3H/HeJ fareleri | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, Çin | Pirinçle (Oryza sativa) Karşılaştırmalı Olarak Mısırın (Zea mays) Tohum Gelişiminin İncelenmesi | |
| ChIP analiz kiti | Beyotime Biotechnology, Şangay, Çin | P2078 | |
| 254 kültür ortamı | Gibco, Thermo Fisher Scientific, Amerika | M-254-500 | |
| DAPI boyama reaktifi | Servicebio, Wuhan, Çin | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Şanghay, Çin | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-Boya İçermeyen | Applied Biological Materials Inc., Jiangsu, Çin | MasterMix-ES | |
| Fast black HB | Sangon Biotech Co., Ltd., Şanghay, Çin | A602008-0025 | |
| Fetal bovine serum | Her Şey Yeşil | 13011-8611 | |
| Floresans mikroskobu | SOPTOP | CX40 | |
| FOXO3a antikoru | Proteintech, Wuhan, Çin | 10849-1-AP | |
| Kriyostat (Dondurucu mikrotom) | Thermo | Kriyotom E | |
| Glutatyon peroksidaz 4 antikoru | Proteintech, Wuhan, Çin | 67763-1-Ig | |
| Glutatyon peroksidaz 4 kiti | Elabscience, Wuhan, Çin | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, ABD | —— | |
| İmikimod kremi | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, Çin | H20030129 | |
| İnterferon gama antikoru | Proteintech, Wuhan, Çin | 15365-1-AP | |
| İnterferon gama kiti | Elabscience, Wuhan, Çin | E-EL-H0108 ve E-EL-M0048 | |
| İnterlökin 6 antikoru | Proteintech, Wuhan, Çin | 21865-1-AP | |
| İnterlökin 6 kiti | Elabscience, Wuhan, Çin | E-EL-H6156 ve E-EL-M0044 | |
| İnterlökin 15 antikoru | Affinity Biosciences Ltd., Wuhan, Çin | DF2521 | |
| İnterlökin 15 kiti | Elabscience, Wuhan, Çin | E-EL-H0222 ve E-EL-M0728 | |
| Malondialdehit kiti | Elabscience, Wuhan, Çin | E-EL-0060 | |
| MHC antikoru | Affinity Biosciences Ltd., Wuhan, Çin | DF8558 | |
| Optik mikroskop | ZEISS | Primo Star | |
| Parafin kesici | Thermo scientific | HM325 | |
| Patolojik tarama yazılımı | 3DHISTECH (Macaristan) | Slayt Görüntüleyici 2.5.0 | |
| Penisilin-synthroid çözeltisi | Biosharp, Pekin, Çin | BL505A | |
| Tavşan IgG | Beyotime Biotechnology, Şanghay, Çin | A7016 | |
| ROS analiz kiti | Beyotime Biotechnology, Şanghay, Çin | S0033M | |
| Süperoksit dismutaz 1 antikoru | Proteintech, Wuhan, Çin | 10269-1-AP | |
| Doku gömme cihazı | Wuhan Junjie Electronics Co., Ltd., Wuhan Çin | JB-P5 | |
| Doku hidroekstraktörü | Thermo Scientific | STP420 ES | |
| Toplam RNA izolasyon kiti | Foregene, Chengdu, Çin | RE-03014 | |
| Toplam süperoksit dismutaz kiti | Elabscience, Wuhan, Çin | E-BC-K020-M | |
| Beyaz vazelin | Shanghai Aladdin Biochemical Technology Co., Ltd., Şanghay, Çin | P434227 |
Kaynaklar
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.