Gelişmekte olan ve yetişkin Drosophila görsel sisteminin yüksek çözünürlüklü görüntüleme için diseksiyonu, immün boyanması ve lam üzerine yerleştirilmesi için ayrıntılı ve tekrarlanabilir bir protokol sunuyoruz. Bu yöntemler; nöroblast paternlemesinin, nöronal spesifikasyonun, fotoreseptör akson hedeflemesinin ve yetişkin nöropil organizasyonunun görselleştirilmesine olanak tanıyarak görsel sistem gelişimini incelemek için çok yönlü bir çerçeve sağlar.
Yöntem makalesi
Drosophila Görsel Sisteminin Diseksiyonu, İmmünboyaması ve Montajı için Bir Protokol
Bu makalede
Özet
Özet
Drosophila görsel sistemi, nöronal çeşitliliğin nasıl oluşturulduğunu ve fonksiyonel nöral devrelere nasıl entegre edildiğini — gelişimsel nörobilimin temel bir sorusunu — araştırmak için güçlü bir modeldir. Sistem; retinadan ve retinadan gelen görsel girdileri işleyip beynin daha yüksek merkezlerine ileten, birlikte oldukça organize bir yapı oluşturan lamina, medulla, lobula ve lobula plakası adlı dört farklı nöropilden oluşur. Gelişim sırasında görsel sistem önemli bir yeniden yapılanma sürecinden geçer. Larval gelişim boyunca, nöroblastlar nöroepitelden kademeli olarak üretilir ve mekânsal ile zamansal örüntüleme programlarını entegre ederek çeşitli nöronal alt tipler üretmek için asimetrik olarak bölünürler. Bu nöronlar daha sonra farklılaşır ve yetişkin görsel sisteminin fonksiyonel devrelerini kuran hassas sinaptik bağlantılar oluştururlar. Bu dinamik süreçler; larval, pupal ve yetişkin evrelerde immün boyama kullanılarak güvenilir bir şekilde incelenebilir. Burada, gelişmekte olan ve yetişkin Drosophila görsel sisteminin diseksiyonu ve immün boyanması için ayrıntılı ve tekrarlanabilir bir protokol sunuyoruz. Temelde, spatiotemporal örüntülemeyi ve nöronal spesifikasyonu vurgulamak ve yetişkin nöropil morfolojisini görselleştirmek amacıyla larval nöroblastların temsili görüntülemesine odaklanıyoruz. Bu, gelişmekte olan Drosophila görsel sisteminin görselleştirilmesi için sağlam bir çerçeve sağlamaktadır.
Giriş
Drosophila melanogaster görsel sistemi, sinir sistemi gelişiminin temelindeki hücresel ve moleküler mekanizmaların araştırılması için önemli bir gelişimsel model teşkil eder. Sistemle ilgili oldukça stereotipik yapılar, kapsamlı genetik araç seti ve korunmuş gelişimsel süreçler; nöral kök hücre gelişimi, nöronal spesifikasyon, devre kurulumu ve beyin organizasyonu konusundaki anlayışımızı geliştirmiştir. Sinek görsel sistemi, bileşik göz retinası ve kompleks hiyerarşik bir devre şeklinde düzenlenmiş dört optik nöropilden - lamina, medulla, lobula ve lobula plakası - oluşur1. Retinadaki duyusal fotoreseptör hücreler ışığı algılar ve bunu nöral sinyallere dönüştürür2,3,4. Bu sinyaller, dört optik nöropili birbirine bağlayan lokal internöronlar ve projeksiyon nöronları üzerinden geçer; burada ardışık işleme aşamaları kontrast, hareket ve renk gibi görsel özellikleri ayıklar4,5. İşlenen görsel bilgiler daha sonra ileri entegrasyon için görsel projeksiyon nöronları aracılığıyla üst beyin merkezlerine iletilir4,5,6.
Gelişmekte olan optik lob, proliferatif bir nöroepitelyumu (NE) karmaşık bir nöral devre ağına dönüştüren, hassas zamanlanmış bir dizi gelişimsel olaydan geçer7,8. NE, embriyogenez sırasında optik plakottan köken alır7,8. Larva evrelerinde, nöroepitelyal hücreler başlangıçta progenitor havuzunu genişletmek için simetrik bölünmeler yoluyla çoğalırlar. Ardından, yetişkin görme sisteminin nöronlarını ve glial hücrelerini üretmek için asimetrik olarak bölünen nöroblastlara kademeli olarak dönüşürler9,10,11,12,13. Uzamsal-zamansal örüntüleme mekanizmaları nöronal kimlikleri çeşitlendirir; yeni üretilen nöronlar gelişmekte olan medullada iç içe geçmiş tabakalar oluşturur ve ardından pupa gelişimi sırasında fonksiyonel devrelere farklılaşır14,15,16,17,18,19. Uzamsal-zamansal ipuçlarının entegrasyonu, sürdürülen ekspresyonları nöronal hücre tiplerini belirleyen, hücre tipine özgü nöronal transkripsiyon faktörlerini aktive eder14,15,20,21,22. Benzer mekanizmalar, nöronal kimlikleri belirlemek için lamina ve lobulada da mevcuttur14,23,24,25,26.
Gelişmekte olan görsel sistemin immünofloresan görüntülemesi, bu gelişimin temelindeki hücresel ve moleküler olayları görselleştirmek için tercih edilen yöntem haline gelmiştir. Başarılı bir görselleştirme, yalnızca yüksek kaliteli doku örneklerinin hazırlanmasına ve güvenilir immün boyama reaktiflerine değil, aynı zamanda montaj sırasında dikkatli diseksiyona ve doğru örnek yönlendirmesine bağlıdır27,28. Farklı gelişimsel yapıların ve hücresel süreçlerin, beynin anatomik özelliklerini ortaya çıkarmak için örneklerin belirli şekillerde yönlendirilmesini gerektirdiği görülmektedir. Çeşitli makale ve protokollerde Drosophila beyninin diseksiyonu ve immün boyaması ayrıntılı olarak açıklanmıştır28,29,30,31,32. Ancak, çok az sayıda çalışma bunu görsel sistemdeki yaygın olarak incelenen bir gelişimsel süreç bağlamında ele almıştır27.
Burada, larval ve yetişkin görsel sistemlerin diseksiyonu, immunboyaması ve montajı için kapsamlı bir protokol sunuyoruz. Basit ve maliyet etkin bir larval beyin diseksiyon yöntemi, yaygın olarak bulunan şırınga iğnelerini kullanarak prosedürü, sınırlı özel diseksiyon araçlarına sahip laboratuvarlar ve eğitim ortamları için kolayca erişilebilir kılmaktadır. Protokolü; larval nöroepitelyumdan nöroblasta (NE'den NB'ye) geçişin, gelişmekte olan medulladaki konsantrik nöronal organizasyonun ve yetişkin optik lob nöropillerinin görselleştirilmesi gibi temsili örneklerle gösteriyoruz. Ayrıca, gelişen ve yetişkin görsel sistemdeki mekansal ve zamansal örüntüleme ile fotoreseptör hedefleme analizlerini örnekleyen çalışmalar sunuyoruz. Birlikte, bu prosedürler ve tanımlanmış montaj yönelimleri, nörogelişimsel çalışmalar için gelişen ve olgun Drosophila görsel sisteminin tekrarlanabilir, yüksek kaliteli görüntülerinin elde edilmesi için pratik bir çerçeve sağlamaktadır.
Protokol
1. Reaktiflerin ve ekipmanların hazırlanması
Drosophila görsel sisteminin başarılı bir şekilde diseksiyonu ve immünboyamasının yapılması, deneye başlamadan önce tüm reaktiflerin ve ekipmanların hazırlanmasını gerektirir. Tüm çözeltilerin önceden hazırlanması, dokuya müdahale süresini minimize eder ve prosedür boyunca doku morfolojisinin korunmasına yardımcı olur. Aşağıdaki reaktifler hazırlanmalı ve hazır bulundurulmalıdır:
- Fosfat Tamponlu Salin (1x PBS): Doku diseksiyonu, yıkama ve reaktif hazırlama işlemleri için 10x stok çözeltiden 1x PBS hazırlayın. PBS, işlemler sırasında doku bütünlüğünü koruyan izotonik bir ortam sağlar. 1x PBS'yi 4 °C'de saklayın.
- Diseksiyon Medyumu: Diseksiyon için buz soğukluğunda Schneider's böcek medyumu kullanın. Schneider's medyumu, böcek hemolenfinin iyonik kompozisyonunu yakından taklit ederek Drosophila dokularını destekleyecek şekilde formüle edilmiştir ve uzun süreli diseksiyonlar için önerilir.
- Fiksasyon Solüsyonu (Triton X-100 içeren 1x Fosfat Tamponlu Salin (PBST) içinde %4 formaldehit): Optimal fiksasyon ve doku koruması sağlamak için %16'lık formaldehit stokundan 1x PBST içinde taze %4'lük formaldehit solüsyonu hazırlayın.
DİKKAT: Formaldehit oldukça reaktiftir ve solunduğunda, yutulduğunda veya cilt yoluyla emildiğinde toksiktir. Uygun kişisel koruyucu donanım (KKD) kullanarak kimyasal çeker ocak altında çalışın ve formaldehidi özel tehlikeli atık kutusuna atın. - Yıkama Tamponu (1x PBST): Yıkama ve permeabilizasyon amacıyla kullanılmak üzere PBST (%0,3 Triton X-100 içeren 1x PBS) hazırlayın.
- Bloklama Solüsyonu: Bloklama solüsyonu olarak %5 sığır serum albümini (1x PBST içinde %30 BSA'dan hazırlanmış) veya %5 normal keçi serumu (1x PBST içinde %5 NGS) kullanın. Bu, spesifik olmayan antikor bağlanmasını azaltmaya yardımcı olur. Uzun süreli kullanım için 4 °C'de saklayın.
- Sylgard Kaplı Plaka Hazırlığı: Sylgard kaplı diseksiyon kapları, dokuları sabitleyen ve hassas forseps uçlarını koruyan yumuşak bir yüzey sunar. Sylgard 184 bazını ve kürleme ajanını tam olarak karışana kadar 10:1 oranında karıştırın. Eşit bir tabaka oluşturmak için Petri kaplarına dökün, ardından kuruyana kadar 37 °C'de 2–4 gün boyunca kürleyin. Katalize edilmiş Sylgard 184'ün oda sıcaklığındaki (22–25 °C) kap ömrü yaklaşık 2 saattir, bu nedenle karışımı bu süre içinde kullanın.
- Doku morfolojisini korumak ve degradasyonu azaltmak için tüm diseksiyon medyums ve tamponlarını önceden soğutun ve numune hazırlama, diseksiyon ve immünboyama sırasında buz üzerinde tutun. Protokole başlamadan önce tüm diseksiyon aletlerinin, mikroskop lamlarının, lam örtücülerinin, montaj medyumunun, forsepslerin veya diseksiyon iğnelerinin hazır ve kolay erişilebilir olduğundan emin olun. Sinekleri veya larvaları uygun gelişim aşamasında toplayın ve diseksiyona hazır halde tutun.
Drosophila melanogaster ile çalışmak için etik onay veya rehberliğe ihtiyaç duyulmamıştır.
2. Larva beyninin diseksiyonu, immünboyaması ve lam üzerine yerleştirilmesi
- Diseksiyon:
- 8–10 adet gezgin üçüncü evre Drosophila larvasını nemli bir fırça ile tüpün içinden toplayın ve kalıntı gıda artıklarını temizlemek için buz gibi soğuk 1X PBS içeren cam bir spot plakada yıkayın.
- Pens veya küçük bir fırça kullanarak, cam spot plaktaki tek bir larvayı, 150 mm'lik Petri plağının (Sylgard'sız) merkezindeki buz gibi soğuk 1X PBS veya Schneider ortamı damlasına aktarın.
- Larvayı, baskın olmayan elinizle 1 mL'lik bir şırınga iğnesi ile gövdenin orta bölgesinden tutun. Baskın elinizle, şırınga iğnesini kullanarak aynı konumdan enine bir kesi yapın ve larvayı iki yarıya bölün (Şekil 1A–B).
DİKKAT: Şırınga iğneleri keskindir ve yaralanmaya neden olabilir. Kullanılmış kesici aletleri belirlenmiş bir kesici alet konteynerine atın. - Larvanın ön yarısını (siyah ağız kancalarından tanınabilir), baskın olmayan elinizle kesik kenarından tutun. Baskın elinizdeki şırınga iğnesi ile, ağız kancalarını bir çorabı tersyüz eder gibi gövde boşluğunun içine doğru hafifçe itin. Bu işlem larval kutikülayı dışa çevirerek tersyüz edilmiş bir preparat oluşturur. Tersyüz etme diseksiyon yöntemi daha hızlıdır ve beynin ile göz disklerinin zarar görmesini önlemeye yardımcı olur (Şekil 1C–D).
- Kutikula tersyüz edildikten sonra beyin, imaginal disklere ve ağız kancalarına yapışık olarak görülebilir. Bir şırınga iğnesi kullanarak bağırsak, tükürük bezleri ve yağ vücudu dahil istenmeyen dokuları uzaklaştırın (Şekil 1E).
- Diseksiyonla ayrılan beyni, buz üzerinde tutulan ve 300 µL buz gibi soğuk 1X PBS içeren cam spot plağa aktarın (Şekil 1F).
- Yeterli sayıda beyin disele edilene veya 20 dk geçene kadar 2.1.2–2.1.6 adımlarını tekrarlayın.
NOT: Yüksek doku kalitesini korumak için diseksiyon süresi 20 dk'yı geçmemelidir. - Beyinleri sadece batık tutacak kadar tampon bırakacak şekilde, tamponun çoğunu aspire etmek için 200 μL'lik bir pipet kullanın.
- Fiksasyon: Diseksiyon kabındaki beyinlere 200 μL soğuk fiksasyon çözeltisi (%4 formaldehit) ekleyin ve bir mikroskop lamı ile kapatın, ardından kabı 28 sallama hızında ve 8° sallama açısında 20 dk boyunca masaüstü sallayıcıya yerleştirin.
NOT: Doku parçalanmasını önlemek için yüksek sallama hızlarından kaçının.
DİKKAT: Formaldehit tehlikelidir. Formaldehit içeren çözeltilerle çalışırken eldiven, laboratuvar önlüğü, yüz maskesi ve göz koruması dahil uygun KKD kullanın. - Fiksasyon çözeltisini aspire edin, ardından 200 μL yıkama tamponu (%0,3 Triton X-100 içeren 1X PBS) ekleyin. İki hızlı PBST durulamasının ardından iki adet 20 dk'lık yıkama gerçekleştirin.
NOT: Triton X-100, doku örneklerinin permeabilize edilmesi ve antikor penetrasyonunun kolaylaştırılması için kritik bir deterjandır. - Bloklama: PBST'yi aspire edin ve beyinlere bloklama çözeltisi (%5 Normal Keçi Serumu veya %5 BSA içeren 1x PBST) ekleyin. Oda sıcaklığında 40 dk inkübe edin.
NOT: Bloklama çözeltisindeki inkübasyon, dokudaki spesifik olmayan bağlanma bölgelerini doyurur, böylece arka plan boyanmasını azaltır ve antikor spesifisitesini artırır. Antikor boyaması spesifikse ve minimum arka plan gösteriyorsa bu adım atlanabilse de uygulanması önerilir.
- İmmünboyama
- Primer antikor kokteylini, önerilen dilüsyonla yaklaşık 50 μL yıkama PBST içinde hazırlayın.
NOT: Antikor stabilitesini ve aktivitesini korumak için hazırlık sırasında antikor alikotlarını buz üzerinde tutun. - Beyinleri cam kuyucuktan 1,5 mL'lik mikrosantrifüj tüplerine aktarın. Beyinleri batık tutacak kadar bırakarak fazla bloklama çözeltisini uzaklaştırın.
- Antikor kokteyl çözeltisini hazırlayın ve beyinlerin bulunduğu tüpe ekleyin. Antikorun eşit dağılmasını sağlamak için 20 µL'lik bir pipet ucuyla pipetleyerek nazikçe karıştırın.
NOT: Beyinlerin 50 µL primer antikor çözeltisinde inkübe edilmesi, boyama kalitesinden ödün vermeden antikor tüketimini azaltır. - Beyinleri içeren tüpleri bir stant üzerinde 4 °C'de 16 saat inkübe edin.
NOT: Bazı durumlarda boyamayı artırmak için primer antikor inkübasyonu 4 °C'de 48–72 saat boyunca gerçekleştirilebilir. Primer antikorlar, boyama kalitesini düşürmeden en az 3 kez yeniden kullanılabilir. - 200 μL PBST ekleyin. 2 hızlı yıkamanın ardından her biri 20 dk süren 2 uzun yıkama gerçekleştirin.
- Sekonder antikor kokteylini, önerilen dilüsyonlarda yaklaşık 250 μL yıkama PBST içinde hazırlayın.
NOT: Fotobleaching'e neden olabilen ışık maruziyetinden kaçınmak için sekonder antikorlar eklendikten sonraki tüm inkübasyonları karanlıkta gerçekleştirin. - Fazla PBST'yi uzaklaştırın, ardından beyinlere sekonder antikor kokteylini ekleyin. Karanlıkta tutmak için karton bir kutu ile kapatılmış bir sallayıcı üzerinde oda sıcaklığında (22–25 °C) 2 saat veya 4°C'de 16 saat inkübe edin.
- PBST kullanarak yukarıdaki yıkama adımlarını (2 hızlı durulama, ardından her biri 20 dk süren 2 uzun yıkama) tekrarlayın.
DURAKLAMA NOKTASI: Beyinler 4 °C'de PBST içinde 1 haftaya kadar saklanabilir. Bununla birlikte, doku dejenerasyonu veya florofor bozulmasından kaynaklanan sinyal kaybını en aza indirmek için örneklerin montajdan sonra mümkün olan en kısa sürede görüntülenmesi önerilir.
- Primer antikor kokteylini, önerilen dilüsyonla yaklaşık 50 μL yıkama PBST içinde hazırlayın.
- Larval optik lobların montajı
- Bir mikroskop lamını %70 etanol ile temizleyerek hazırlayın ve 5 dk kurumaya bırakın (Şekil 2E).
- Mikroskop lamının merkezine, şeritler arasında 5–10 mm boşluk bırakacak şekilde iki paralel çift taraflı bant şeridi yapıştırın.
- Ucu kesilmiş 200 µL'lik bir pipet kullanarak beyinleri başka bir temiz mikroskop lamına aktarın ve görüntüleme sırasında ilgi bölgesini engelleyebilecek bacak imaginal diskleri gibi istenmeyen dokuları uzaklaştırın.
NOT: Görüntüleme sırasında ilgi bölgemizi engellemeyen küçük dokular montaj sırasında olduğu gibi bırakılabilir. - Beyinleri çift taraflı bant içeren mikroskop lamına aktarın.
NOT: Beyinlerin kurumadığından ve her zaman 1x PBST tamponu içinde batık olduğundan emin olun. - Her bir larval beynin anterior-posterior yönelimini, beynin karakteristik şişkin morfolojisini ve ventral sinir kordonunun (VNC) konumunu anatomik işaretler olarak kullanarak bir stereomikroskop altında belirleyin (Şekil 2A–D).
- Anterior montaj: Beyni, şişkin tarafı yukarıya, lamdan uzağa ve VNC lamı yönelecek şekilde konumlandırın (Şekil 2A, Şekil 3A).
- Posterior montaj: Beyni, şişkin tarafı lama bakan ve VNC lamdan uzağa bakan şekilde konumlandırın (Şekil 2B, Şekil 3F).
- Lateral montaj: Anterior olarak monte edilmiş beyni ve VNC'yi, iki hemiseksiyone beyin yarısı oluşturmak için 1 mL'lik bir şırınga iğnesi veya ince tungsten iğnesi ile orta hat boyunca ikiye bölün (Şekil 2C). Her bir hemisferi 90° döndürün ve lateral, lobula-plug tarafı lamelle karşı karşıya, medial kesik yüzey ise görüntüleme düzleminden uzağa bakacak şekilde konumlandırın (Şekil 2D, Şekil 3K).
NOT: İstenen yönelimi elde etmek için beyin konumunu stereomikroskop altında gerektiği gibi ayarlayın. Konumlandırma sırasında beyni batık tutun. - Beyinleri batık tutacak kadar bırakarak tamponun çoğunu aspire edin.
- Beyinleri içeren bölgeye 20–40 μL montaj ortamı (SlowFade Gold Antifade) ekleyin ve 20 μL'lik bir pipet ile eşit şekilde yayın.
- Bir lamelin her iki bant şeridi üzerine oturacak şekilde dikkatlice yerleştirin ve kenarları oje ile mühürleyin.
NOT: Lamel yerleştirildikten sonra büyük kabarcıklar oluşursa, kabarcıklar kaybolana kadar lamel ve lam arasındaki boşluğa daha fazla montaj ortamı ekleyin.
3. Erişkin beynin diseksiyonu, immün boyaması ve montajı
- Diseksiyon: Erişkin beyin disseksiyonu teknik olarak daha zorlayıcıdır ve dikkatli işlem gerektirir. Erişkin beyin disseksiyonu için keskin, paslanmaz çelik bir pens kullanılması şiddetle önerilir.
- Gerekli yaştaki yeterli sayıda yetişkin sineği bir CO2 sinek pedi üzerinde anestezi altına alın, ardından diseksiyon sırasında anestezinin devam etmesini sağlamak için buz kovasına yerleştirilmiş nemli doku mendiline aktarın.
NOT: Anestezi sonrası, diseksiyon sırasında sinekler buz üzerinde bir mendil yardımıyla nemli tutulabilir; böylece CO2 kullanımı gereksinimi ortadan kalkar.2 ped takılıdır ve taşıma işlemini kolaylaştırır. - Hassas bir pens yardımıyla, yetişkin sineği bacaklarından nazikçe kavrayarak Sylgard kaplı Petri kabına yerleştirin.
- Sineği, bir pini yukarıdan toraksın ortasından, beyin bölgesinden uzağa gelecek şekilde batırarak Sylgard kaplı plakaya sabitleyin. Sineği, buz gibi soğuk 1X PBS tamponu/Schneider Besiyeri damgasının içine daldırın ve sineği kendinize doğru döndürerek veya plakayı hareket ettirerek baş kısmını diseksiyon için uygun konuma getirin.
DİKKAT: Diseksiyon iğneleri keskindir ve yaralanmaya neden olabilir. Bunları belirlenmiş bir kesici-delici alet konteynerine atın. - Baskın eldeki pensle, proboskis ve gözler arasındaki frontal kütikula dikkatlice çıkarılarak beyin kısmen açığa çıkarılır. Bu işlem, retinal kütikulanın altında, sonraki beyin diseksiyonunu kolaylaştırmak için pensle girilebilecek bir açıklık oluşturur.
- İnce uçlu pensler kullanarak retinayı en dış kenarlarından nazikçe kavrayın ve her iki yandan çekerek ayırın. Retinayı soyarken optik lobları delmemeye dikkat edin.
- Beyne yapışmış olan trakea veya ön bağırsak gibi kalıntı dokuları dikkatlice temizleyin.
- Temizlenmiş beyni, şunları içeren bir cam spot plakaya aktarın: 200 µL buz üzerinde bekletilen 1X PBS'den.
- Yeterli sayıda beyin toplanana veya 30 dakika geçene kadar diseksiyon adımları 3.1.2'den 3.1.7'ye kadar tekrarlayın.
- Bir ... kullanın 200 µL beyinlerdeki PBS'yi, sadece beyinlerin batık kalmasını sağlayacak kadarını bırakarak aspire etmek için pipetleyin.
- Fiksasyon: Ekleyin 200 μL disseke edilmiş yetişkin beyinleri içeren cam spot plakasına soğuk fiksatif çözelti (1X PBS içinde %4 formaldehit) ekleyin, ardından plakanın üzerini mikroskobik bir lamla kapatarak 30 dakika boyunca 28 sallama hızındaki masaüstü rocker üzerine yerleştirin.
DİKKAT: Formaldehit tehlikelidir. Formaldehit içeren çözeltilerle çalışırken uygun eldiven, laboratuvar önlüğü ve göz koruyucu ekipman kullanın. - Beyinleri tamamen örtecek kadar fiksasyon solüsyonu bırakacak şekilde solüsyonu aspire edin ve ekleyin 200 µL PBST. 3 kısa yıkama ve her biri 20 dakika süren 2 uzun yıkama işlemini tekrarlayın.
- Bloklama: PBST'yi uzaklaştırın ve beyinleri bir bloklama solüsyonunda (%5 NGS veya %5 BSA) 45 dakika boyunca inkübe edin.
- Beyinleri 1,5 mL'lik bir tüpe aktarın ve beyinlerin sadece batık kalmasını sağlayacak kadar bırakarak bloklama solüsyonunun çoğunu uzaklaştırın.
- Gerekli yaştaki yeterli sayıda yetişkin sineği bir CO2 sinek pedi üzerinde anestezi altına alın, ardından diseksiyon sırasında anestezinin devam etmesini sağlamak için buz kovasına yerleştirilmiş nemli doku mendiline aktarın.
- İmmünboyama
- Birincil antikor kokteylini uygun dilüsyonuyla hazırlayın; 50 µL PBST'den.
- Primer antikor kokteylini beyinlerin bulunduğu tüpe ekleyin ve 12–16 saat boyunca şu sıcaklıkta inkübe edin: 4 °C.
- Antikor çözeltisini aspire edin, ardından hızlıca 2 kez durulama ve her biri 20 dakika sürecek şekilde 2 kez uzun yıkama için PBST ekleyin.
- Sekonder antikor kokteylini önerilen dilüsyonlarda hazırlayın; 250 µL PBST'den.
- PBST'yi uzaklaştırın ve ardından sekonder antikor kokteylini ekleyin. Oda sıcaklığında (22–25 °C) 2 saat boyunca veya 12–16 saat boyunca ...'de bırakın 4 °C karanlıkta.
- Yıkama işlemlerini tekrarlayın (her biri 20 dakika sürecek şekilde 3 kısa ve 2 uzun yıkama).
DURAKLAMA NOKTASI: Bu adımda durun ve beyinleri PBST içinde şu sıcaklıkta tutun: 4 °C bir hafta boyunca.
- Erişkin optik lobların montajı
- Mikroskop lamını %70'lik etanol ile temizleyerek hazırlayın.
- Beyinler için aralarında boşluk (1 mm'den az) oluşturacak şekilde, iki adet 18 x 18 mm lamelle küçük bir genel amaçlı yapıştırıcı damlası üzerine yerleştirerek bir lamel köprüsü hazırlayın (Şekil 2F).
- Kullanarak 200 µL uç kısmını kesin, temizlenmiş beyinleri bir lam üzerine aktarın ve görüntüleme sırasında görüşü engelleyebilecek trake veya baş kütikülü gibi dokuları uzaklaştırın.
- Temizlenmiş beyinleri, adım 3.3.2'de hazırlanan montaj lamına aktarın.
NOT: Beyinleri montaj prosedürü boyunca 1x PBST içinde daldırılmış halde tutun ve kurumalarına izin vermeyin. - Bir stereomikroskop altında, her bir erişkin beynin ön-arka yönelimini genel morfolojisini kullanarak belirleyin. Konveks yüzey ön tarafa, konkav yüzey ise arka tarafa karşılık gelir.
- Anterior yerleştirme: Beyni, anterior yüzeyi ve anten lobları lamı karşıya bakacak şekilde konumlandırın (Şekil 4A).
- Posterior montaj: Beyni, posterior yüzey lamelle karşı karşıya gelecek ve anten lobları lamelle zıt yöne bakacak şekilde konumlandırın (Şekil 4D).
- Lateral montaj: Beyni, görsel nöropiller görüntüleme düzlemine paralel olacak şekilde konumlandırın. Beyni anterior pozisyona yerleştirin, döndürün 90°ve ara parçalı lamın kenarına yaslayarak destekleyin (Şekil 4G).
- Beyinlerin daldırılmış halde kalmasını sağlayacak kadar miktar bıraktıktan sonra, 1x PBST tamponunun büyük kısmını aspire edin.
- Ekleyin 40 μL beyinlerin bulunduğu bölgeye montaj ortamının (tercihen VECTASHIELD Antifade Mounting Media) eklenmesi, ardından bir yardımıyla eşit şekilde yayılması 20 μL pipetleyin. Gerektiğinde daha fazla kapatma medyumu ekleyin.
NOT: VECTASHIELD Antifade Mounting Media, yüksek viskozitesi örtü camları arasındaki boşlukta kalmasına yardımcı olduğu için örtü camı köprülü lamlarla iyi çalışır. - 22 x 22 mm'lik bir kapatma lamini, iki kapatma lamini üzerine gelecek şekilde dikkatlice yerleştirin. Boşluktan daha fazla montaj medyumu ekleyerek varsa hava kabarcıklarını giderin.
- Kenarları oje ile mühürleyin (Şekil 2F).
4. Görüntüleme ve görüntü işleme
- Görüntüleri, 1024 × 1024 piksel çözünürlükte, 40x (NA = 1.3) ve 63x yağ daldırma (NA = 1.4) objektifler kullanılarak bir Leica STELLARIS 8 konfokal mikroskobu ile elde edin.
- 200 Hz tarama hızında, 1 µm z-adımıyla Z-yığınları toplayın.
- Örneğe bağlı olarak 0.75–1.0x yakınlaştırma aralığında, çift yönlü tarama kullanarak görüntüleme yapın.
- Her florofor için uygun detektörü kullanarak, 100 kazanç (gain) ayarında deteksiyon gerçekleştirin.
NOT: 405, 488, 555 ve 647 nm eksitasyon dalga boylarını kullanın ve lazer gücünü, görüntülenen antikora ve florofora göre ayarlayın. - Görüntüleri Leica görüntüleme yazılımı kullanarak elde edin ve Fiji/ImageJ2 versiyon 2.16.0/1.54p kullanarak işleyin.
Sonuçlar
Gelişmekte olan optik lobun genel yapısını korumak ve anatomik özelliklerini, gelişimsel geçişlerini ve hücre tiplerini doğru bir şekilde yakalamak için başarılı diseksiyon, immün boyama ve doğru montaj yönlendirmeleri esastır. Farklı montaj yönlendirmeleri, larval ve yetişkin Drosophila görsel sistemlerinin tamamlayıcı görünümlerini sağlar ve farklı anatomik bölgelerin ve nöronal özelliklerin görselleştirilmesine olanak tanır.
Larva Montaj Yönelimleri:
Bu bölüm, gelişmekte olan larval optik lobun görüntülenmesini kolaylaştıran temsili montaj yönelimlerini göstermektedir (Şekil 3). Larval beyin şeması; OPC, medulla ve lamina dahil olmak üzere ana optik lob yapılarını vurgular (Şekil 3A). Anterior montaj; OPC'yi, nöroepitelden nöroblasta (NE-to-NB) geçişi, medulla nöroblast bandını ve gelişmekte olan laminayı gösterir. Deadpan (Dpn), E-Cadherin (ECad) ve Dachshund (Dac) ile boyanmış anterior montajlı bir beyin, bu yapıları belirginleştirir (Şekil 3B). Bu yönelim ayrıca, Hth, Opa, Erm ve Ey'nin ardışık ekspresyonuyla gösterildiği gibi, medulla nöroblastlarındaki zamansal transkripsiyon faktörü kaskadını çözümlemektedir (Şekil 3C). Anti-Chp antikorları ile işaretlenmiş ve lamina nöronları arasına dağılmış fotoreseptör aksonları da anterior yönelimde görselleştirilebilir (Şekil 3D, E). Posterior montaj, iç proliferasyon merkezini (IPC) ve OPC'nin uçlarını açığa çıkararak gelişmekte olan optik lobun tamamlayıcı görünümlerini sağlar (Şekil 3F, G-H). Lamina nöronları arasına dağılmış fotoreseptör aksonları (Chp-pozitif), posterior yönelimde de görselleştirilebilir (Şekil 3I, J). Anterior montajla birlikte bu yönelim, gelişmekte olan larval görsel sistemin farklı bölgelerine tamamlayıcı erişim sağlar. Lateral montaj, nöronların konsantrik organizasyonuyla birlikte OPC'nin uzaysal örüntüsünü ortaya çıkarır (Şekil 3K). Lateral montaj aynı zamanda medulla nöronlarının konsantrik organizasyonuna dair bir görünüm sağlar (Şekil 3L). Temsili nöronal popülasyonlar arasında; uzaysal domainden bağımsız Bsh-pozitif medulla intrinsik nöronları (Mi1) ve TfAP-2-pozitif transmedüller nöronların (Tm1, Tm2, Tm4 ve Tm6) yanı sıra Dm8, DRA-Dm8 ve Dm11 gibi bölgeye özgü nöronal alt tipler yer alır (Şekil 3L). Vsx ve Optix (Optix-GAL4>GFP) nöroepitelde (NE) bulunur ancak nöroblastlarda (NB) bulunmaz; Rx ise hem NE hem de NB'lerde bulunur19. Ayrıca, Vsx ve Rx, uzaysal domainlerine karşılık gelen spesifik post-mitotik nöronlarda eksprese edilir19 (Şekil 3M). Lamina ve medullayı hedefleyen fotoreseptör aksonları lateral yönelimde görselleştirilebilir (Şekil 3N, O). Bu montaj yönelimleri, medulla nöroblastlarının uzaysal ve zamansal örüntüsünün nasıl farklı nöronal kimliklere yol açtığının analiz edilmesine olanak tanır14,22.
Yetişkin Montaj Oryantasyonları: Bu bölüm, yetişkin Drosophila optik lobunun görüntülenmesi için montaj oryantasyonlarının şematik ve temsili bir örneğini sunmaktadır. Anterior montaj, optik lobun frontal bir görünümünü sağlayarak lamina, medulla ile lobula ve lobula plakanın anterior kısımlarını ortaya çıkarır (Şekil 4A). Anti-Bruchpilot (Brp) optik nöropilleri etiketlerken, Bsh medulla korteksindeki Mi1 nöronlarını işaretler (Şekil 4B). Aynı oryantasyonda, anti-Chaoptin (Chp) lamina ve medullaya projeksiyon yapan fotoreseptör aksonlarını etiketler (Şekil 4C). Posterior montaj oryantasyonu optik lobun daha derin bölgelerini açığa çıkararak medulla nöropilinin derinlemesine görselleştirilmesine olanak tanır (Şekil 4D, E). Bu oryantasyonda, Chp boyaması medulla içindeki fotoreseptör terminallerini belirginleştirir (Şekil 4F). Lateral montaj optik lobun yan görünümünü sağlayarak lamina, medulla, lobula ve lobula plakanın eşzamanlı olarak görselleştirilmesini sağlar (Şekil 4G, H). Bsh, medulla intrinsik nöronları (Mi1) ile birlikte lamina nöronlarını (L4 ve L5) etiketlerken, Brp nöropil sınırlarını tanımlar. Fotoreseptör projeksiyonları lamina ve medulla içinde hedeflenir (Şekil 4I), bu da yetişkin görsel sisteminin organizasyonuna genel bir bakış sunar.
Anterior, posterior ve lateral montaj yönelimleri birlikte, gelişmekte olan ve olgun görsel sistemlerin tamamlayıcı görünümlerini sunarak araştırmacıların deneysel hedeflerine göre farklı anatomik bölgeleri, gelişimsel özellikleri ve nöronal popülasyonları incelemesine olanak tanır.
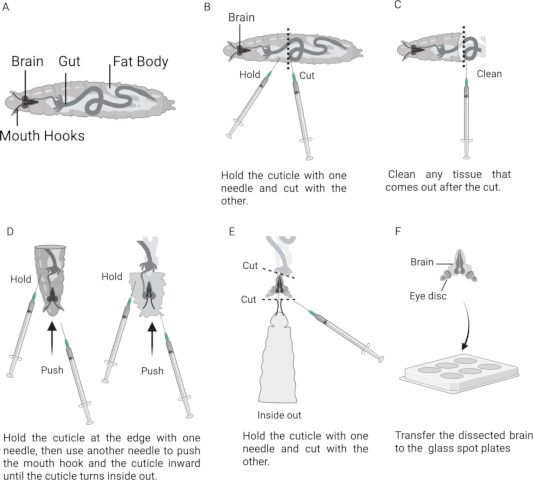
Şekil 1: Şırınga iğnesi yöntemi kullanılarak Drosophila larval beyninin diseksiyonu. (A) Beynin konumunu ve ilgili anatomik yapıları gösteren geç üçüncü instarda bir larvanın şeması. (B) Larvanın iki şırınga iğnesi arasına yerleştirilmiş halini gösterir; kesikli çizgi, transvers ayırmanın yaklaşık yerini belirtmektedir. (C) Çevredeki dokuların uzaklaştırılmasından sonraki anterior larval yarı. (D) Larval kütikülün şırınga iğneleriyle tersyüz edilmesini gösteren ardışık adımlar. (E) Beyni, imaginal diskleri ve ağız kancalarını gösteren evirtilmiş preparat. (F) Cam bir spot plaka içerisinde izole edilmiş larval beyin. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
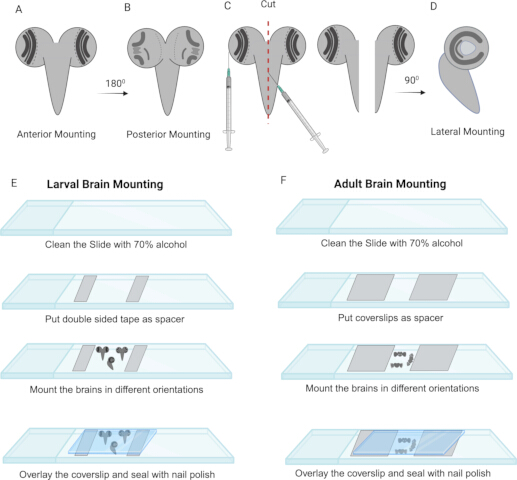
Şekil 2: Drosophila larva ve ergin optik lobları için montaj adımları. (A) Larva beyninin anterior montaj oryantasyonu. (B) Larva beyninin posterior montaj oryantasyonu. (C) Şırınga iğnesi kullanılarak anterior olarak monte edilmiş beynin bilateral biseksiyonu. (D) Hemisekte edilmiş beynin lateral montaj oryantasyonu. (E) Larva beyninin montajı için temsilci adımlar. (F) Ergin beyninin montajı için temsilci adımlar. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
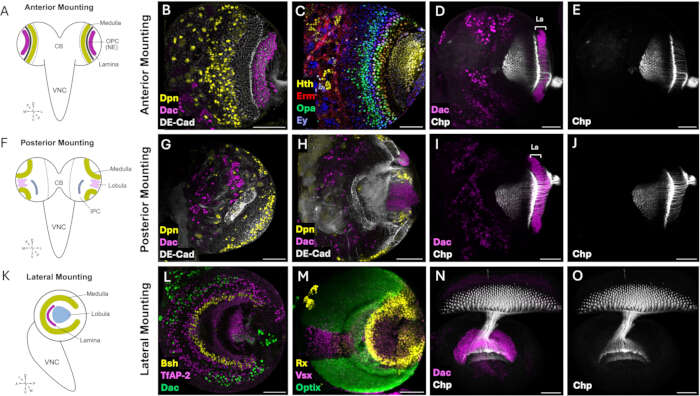
Şekil 3: Drosophila larval görsel sisteminin görüntülenmesi için montaj yönelimleri. (A) Üçüncü instar larval beynin, anterior yüzeyi lamelle karşı karşıya gelecek şekilde anterior montaj yönelimini gösteren şematik. (B) Anti-DE-Cadherin (DE-CAD, gri) ile işaretlenmiş dış proliferasyon merkezini (OPC), anti-Deadpan (Dpn, sarı) ile işaretlenmiş medulla nöroblastlarını ve anti-Dachshund (Dac, macenta) ile işaretlenmiş gelişmekte olan laminayı gösteren anterior olarak monte edilmiş larval beynin temsili konfokal görüntüsü. (C) Nöroblast gelişimi sırasında temporal transkripsiyon faktörleri Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm) ve Eyeless (Ey) faktörlerini ardışık olarak eksprese eden medulla NB'lerin görüntüsü. (D-E) Göz imajinal diskinden gelişmekte olan lamina ve medullaya doğru uzanan fotoreseptör aksonlarının temsili görüntüsü. (F) Larval beynin, posterior yüzeyi lamelle karşı karşıya gelecek şekilde posterior montaj yönelimini gösteren şematik. (G) Optik lobun yüzeysel posterior yüzeyinin, iç proliferasyon merkezini (IPC) ve OPC uçlarında konumlanmış medulla nöroblastlarını (tOPC) gösteren konfokal görüntüsü. (H) Posterior optik lobun daha derininden elde edilen, IPC'yi ve gelişmekte olan lobulayı vurgulayan optik kesit. (I-J) Gelişmekte olan optik loba uzanan fotoreseptör aksonlarının posterior görünümü. (K) Gelişmekte olan medullanın konsentrik organizasyonunu, lamina ve lobula tıkacı ile birlikte görselleştirmek için kesilmiş medial yüzeyi lamelle karşı karşıya gelecek şekilde, hemiseksiyone edilmiş larval beynin lateral montaj yönelimini gösteren şematik. (L) Brain-specific homeobox (Bsh) ile işaretlenmiş Mi1 nöronları, TfAP-2 ile işaretlenmiş Tm1, Tm2, Tm4 ve Tm6 nöronları, ventral medullada Dachshund (Dac)-pozitif Dm8 nöronları ve dorsal kenar alanında DRA-Dm8 ve Dm11 nöronları dahil olmak üzere, medulla nöron alt tiplerinin uzaysal organizasyonunu gösteren medulla nöron popülasyonlarının konsentrik düzenlemesini gösteren temsili konfokal görüntü. (M) Gelişmekte olan optik lobda Vsx, Optix (Optix-GAL4>GFP) ve Rx transkripsiyon faktörleri tarafından tanımlanan uzaysal desenleme bölgelerini gösteren dış proliferasyon merkezinin maksimum yoğunluk projeksiyonu. (N-O) Lateral montaj yönelimindeki fotoreseptör aksonlarının, gelişmekte olan lamina ve medulla içindeki projeksiyonlarını ve hedeflemelerini gösteren temsili görüntü. Ölçek çubuğu = 50 µm. Kısaltmalar: La = Lamina. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
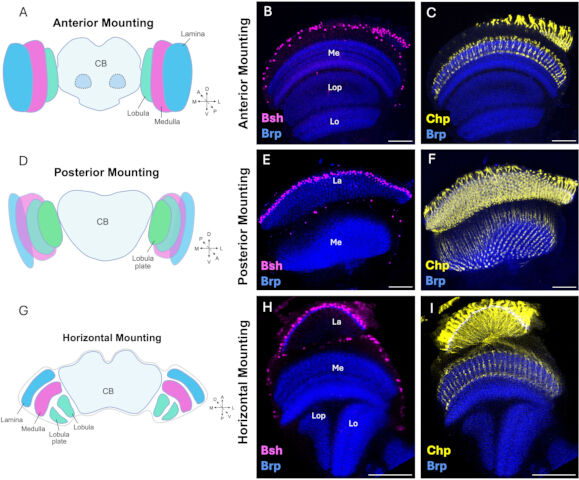
Şekil 4: Erişkin Drosophila görsel sisteminin görüntülenmesi için montaj yönelimleri. (A) Erişkin beynin, anterior yüzeyi lamelle karşı karşıya gelecek şekilde anterior montaj yönelimini gösteren şematik. (B) Medulla korteksi içindeki Brain-specific homeobox (Bsh)-pozitif Mi1 nöronlarını (macenta) ve anti-Bruchpilot (Brp, mavi) ile işaretlenmiş nöropilleri gösteren anterior olarak monte edilmiş erişkin beyne ait temsilci konfokal görüntü. Bu yönelim; periferik lamina, medulla, lobula ve lobula plakanın anterior görünümünü sağlar. (C) Lamina ve medulla nöropillerine projeksiyon yapan, anti-Chaoptin (Chp, sarı) ile işaretlenmiş fotoreseptör aksonlarının temsilci görüntüsü. (D) Erişkin beynin, posterior yüzeyi lamelle karşı karşıya gelecek şekilde posterior montaj yönelimini gösteren şematik. (E) Anti-Brp ile işaretlenmiş medulla nöropilinin daha derin tabakalarını vurgulayan, posterior olarak monte edilmiş erişkin görsel sisteme ait temsilci konfokal görüntü. (F) Anti-Chaoptin (Chp, sarı) ile işaretlenmiş fotoreseptör aksonlarının, medulla nöropili içindeki hedeflerini gösteren posterior görünümü. (G) Görsel sistemin genel organizasyonunu görselleştirmek için bir optik lobun lamelle paralel konumlandırıldığı, erişkin beynin lateral montaj yönelimini gösteren şematik. (H) Bsh-pozitif lamina nöronlarını (L4 ve L5) ve medulla Mi1 nöronlarını (macenta) ile birlikte anti-Brp (mavi) ile işaretlenmiş nöropilleri gösteren ve lamina, medulla, lobula ve lobula plakanın uzaysal organizasyonunu ortaya koyan erişkin optik lobun temsilci lateral görünümü. (I) Anti-Brp (mavi) ile işaretlenmiş lamina ve medulla nöropillerine projeksiyon yapan, anti-Chaoptin (Chp, sarı) ile işaretlenmiş fotoreseptör aksonlarının temsilci görüntüsü. Ölçek çubuğu = 50 µm. Kısaltmalar: Me = Medulla; La = Lamina; Lo = Lobula; Lop = Lobula plaka. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tartışma
Bu protokol, yüksek çözünürlüklü konfokal görüntüleme için larva ve erişkin Drosophila görsel sistemlerinin diseksiyonu, immünboyaması ve montajı için güvenilir bir yöntem sunmaktadır. Prosedür, temel gelişimsel süreçlerin, nöronal popülasyonların ve nöropil yapılarının optimal görselleştirilmesini sağlayan montaj yönlendirmeleri sunarken, gelişmekte olan ve olgun optik lobların yapısal bütünlüğünü ve morfolojisini korur. Tanımlanan temsili örnekler arasında nöroepitelyumdan nöroblasta (NE-to-NB) geçiş, medulla içindeki spatiotemporal desenleme, optik lobdaki fotoreseptör akson hedeflemesi ve erişkin görsel sistem nöropillerinin organizasyonu yer almaktadır9,10,13,14,23. Bu nedenle, bu protokol herhangi bir gelişim evresindeki diğer süreçleri veya hücre tiplerini görselleştirmek için kolayca uyarlanabilecek esnek bir çerçeve sunar.
Önceki yayınlanmış yöntemlerle karşılaştırıldığında, bu protokol hem larva hem de yetişkin Drosophila görsel sistemleri için optimize edilmiş prosedürleri birleştirir ve farklı deneysel sorulara uygun çoklu montaj yönelimleri sunar. Yayınlanmış birçok protokol Drosophila beyin diseksiyonunu ve immünboyamayı tanımlasa da28,29,30,31,32, gelişimsel süreçler bağlamında özellikle görsel sisteme odaklananların sayısı nispeten azdır27. Protokol, özel ince pensler yerine kolayca temin edilebilen 1 mL şırıngaların kullanıldığı alternatif bir larva diseksiyon yöntemini tanımlamaktadır. Bu yaklaşım daha dik bir öğrenme eğrisi gerektirse de, özellikle eğitim laboratuvarları ve özel diseksiyon ekipmanlarına erişimi sınırlı olan araştırma grupları için değerli olabilecek temiz, ucuz ve hızlı bir alternatif sunar. Bildiğimiz kadarıyla, bu diseksiyon yöntemi, diseksiyon sırasında beyni çeken ve sıklıkla yaralanmalara yol açan pens yöntemine göre beyin üzerinde daha az zorlayıcıdır. Ayrıca, immünboyama protokolümüz, boyama kalitesinden ödün vermeden azaltılmış hacimlerde antikor kokteyllerini ihtiyatlı bir şekilde kullanarak, genellikle pahalı olan ticari antikorların tasarrufunu sağlar. Tüm bu özellikler; erişilebilirlik, diseksiyon ve montaj açısından pratik avantajlar sağlarken, protokolün farklı deneysel gereksinimlere kolayca uyarlanmasına olanak tanır.
Protokolün başarılı bir şekilde uygulanması, birkaç temel adıma dikkatle odaklanılmasına bağlıdır. Karşılaşılan yaygın zorluklar genellikle diseksiyon, fiksasyon, boyama veya montaj prosedürleri ayarlanarak çözülebilir. Diseksiyon, sallama veya pipetleme sırasında uygulanan aşırı mekanik stres, doku hasarına veya fragmantasyona neden olabilir. Bu nedenle, diseksiyon işlemleri buz gibi soğuk PBS içerisinde hızlıca gerçekleştirilmeli; çevre dokular uzaklaştırılırken ve sonraki sallama ve pipetleme aşamalarında nazik hareketler kullanılmalıdır. Doku distorsiyonu, morfoloji kaybı veya tutarsız boyama ile kendini gösteren yetersiz fiksasyon, yetersiz fiksasyon süresinden veya uygun olmayan fiksatif çözeltiden kaynaklanabilir. Taze hazırlanmış formaldehit çözeltisi kullanmak ve fiksasyon sırasında dokuyu tamamen daldırmak, doku morfolojisinin ve boyama tutarlılığının korunmasına yardımcı olur. Zayıf veya düzensiz boyama; yetersiz permeabilizasyon, yetersiz antikor penetrasyonu veya suboptimal antikor inkübasyonundan kaynaklanabilir. Permeabilizasyon veya antikor inkübasyon süresini artırmak ve uygun olduğunda primer antikor inkübasyonunu 4 °C'de uzatmak, antikor penetrasyonunu ve boyamayı iyileştirebilir. Yüksek arka plan boyaması, yetersiz bloklama veya yıkamadan ya da aşırı antikor konsantrasyonundan kaynaklanabilir. Antikor konsantrasyonunun uygun şekilde ayarlanmasıyla birlikte yapılan yeterli bloklama ve yıkama, spesifik olmayan boyamanın azaltılmasına yardımcı olabilir. Yanlış montaj oryantasyonu, ilgi bölgesini gizleyebilir veya bu bölgeyi lamelden çok uzağa konumlandırabilir. Beynin, Protokolde açıklanan anatomik işaretlere göre yeniden oriyante edilmesi ve ilgi bölgesinin lamele yakın konumlandırılması, doğru anatomik özelliğin görüntülenmesini kolaylaştırabilir.
Çok yönlülüğüne rağmen, protokolün belirli dokular, gelişim aşamaları, antikorlar ve görüntüleme gereksinimleri için ayarlanması gerekebilir. Örneğin, bazı dokular buz üzerinde daha kısa fiksasyondan fayda sağlayabilirken, bazı antikorlar 4 °C'de bir haftaya kadar uzatılmış inkübasyon veya aksine 22–25 °C'de daha kısa süreli inkübasyon gerektirebilir. Fiksasyon kalitesi; genel beyin ve optik lob morfolojisinin korunması, belirgin doku sınırları ve minimum düzeyde distorsiyon, fragmantasyon veya ayrılma ile değerlendirilebilir. Benzer şekilde, yeterli permeabilizasyon, antikorun doku boyunca nispeten homojen boyanmasıyla değerlendirilebilir; bu durum yeterli antikor penetrasyonuna işaret eder. Bu hususlar, Drosophila görsel sistemini korurken fiksasyon, permeabilizasyon, boyama ve montaj koşullarının özel deneysel uygulamaya göre ayarlanması için esneklik sağlar.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması olmadığını beyan etmektedir. Yazarlar tüm nihai düzenlemeleri gözden geçirmiş ve onaylamıştır.
Yazım hatalarını düzeltmek ve cümleleri yeniden yapılandırmak için dil düzenleme aracı (Grammarly) kullanılmıştır.
Teşekkürler
Brp, Dac, DE-Cad ve Chp monoklonal antikorları, NIH'in NICHD'si tarafından oluşturulan ve Iowa City, IA 52242, Iowa Üniversitesi Biyoloji Bölümü'nde muhafaza edilen Developmental Studies Hybridoma Bank'ten temin edilmiştir. A.B., A.R. ve C.S., NYU Abu Dhabi Research Institute'un NYU Abu Dhabi Center for Genomics and Systems Biology (ADHPG-CGSB)'ye verdiği ödül aracılığıyla Tamkeen tarafından ve C.D.'ye verilen NIH RO1 EY017916 desteğiyle desteklenmişlerdir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Austerlitz Böcek Sabitleme İğneleri, 0,15mm | Fine Science Tools | 26002-15 | |
| Antikor: Mouse anti-Brp | Gelişimsel Çalışmalar Hibritoma Bankası | nc82 | 1:50 Dilüsyon |
| Antikor: Fare anti-Chp | Gelişimsel Çalışmalar Hibritoma Bankası | 24B10 | 1:50 Dilüsyon |
| Antikor: Rat anti-DE-CAD | Gelişimsel Çalışmalar Hibritoma Bankası | DCAD2 | 1:20 Seyreltme |
| Antikor: Mouse anti-Dac | Gelişimsel Çalışmalar Hibritoma Bankası | mAbdac1-1 | 1:100 Seyreltme |
| Antikor: Koyun anti-GFP | BioRad | 4745-1051 | 1:200 Dilüsyon |
| Antikor: Tavşan anti-Bsh | Desplan laboratuvarı | - | 1:1000 Dilüsyon |
| Antikor: Guinea pig anti-Hth | Desplan laboratuvarı | - | 1:100 Seyreltme |
| Antikor: Gine domuzu anti-TfAP-2 | Desplan laboratuvarı | - | 1:500 Dilüsyon |
| Antikor: Tavşan anti-Ey | Desplan laboratuvarı | - | 1:200 seyreltme |
| Antikor: Rat anti-Erm | Desplan laboratuvarı | - | 1:100 Dilüsyon |
| Antikor: Gine domuzu anti-Rx | Desplan laboratuvarı | - | 1:300 Seyreltme |
| Antikor: Tavşan anti-Vsx | Desplan laboratuvarı | - | 1:100 seyreltme |
| Antikor: Alexa Fluor 405 ile konjuge edilmiş donkey anti-mouse IgG | Abcam | ab175658 | 1:250 Seyreltme |
| Antikor: Alexa Fluor 488 ile konjuge edilmiş donkey anti-mouse IgG | Jackson ImmunoResearch | 715-547-003 | 1:400 Dilüsyon |
| Antikor: Alexa Fluor 555 ile konjuge edilmiş eşek anti-fare IgG | ThermoFisher Scientific | A31570 | 1:500 Dilüsyon |
| Antikor: Alexa Fluor 647 ile konjuge edilmiş donkey anti-mouse IgG | Jackson ImmunoResearch | 715-605-151 | 1:250 Dilüsyon |
| Antikor: Alexa Fluor 405 ile konjuge edilmiş donkey anti-guinea pig IgG | Jackson ImmunoResearch | 706-475-148 | 1:250 Dilüsyon |
| Antikor: Alexa Fluor 555 ile konjuge donkey anti-guinea pig IgG | Sigma-Aldrich | SAB4600297-5OUL | 1:500 Dilüsyon |
| Antikor: Alexa Fluor 647 konjuge donkey anti-guinea pig IgG | Jackson ImmunoResearch | 706-605-148 | 1:250 Dilüsyon |
| Antikor: Alexa Fluor 405 ile konjuge edilmiş eşek anti-tavşan IgG | Abcam | ab175651 | 1:250 Seyreltme |
| Antikor: Alexa Fluor 555 ile konjuge donkey anti-rabbit IgG | Invitrogen | A31572 | 1:500 Seyreltme |
| Antikor: Alexa Fluor 555 ile konjuge edilmiş donkey anti-rat IgG | Abcam | Ab150154 | 1:500 Dilüsyon |
| Antikor: Alexa Fluor 488 ile konjuge edilmiş eşek anti-koyun IgG | Jackson ImmunoResearch | 713-545-147 | 1:400 Seyreltme |
| BD 1ml Şırınga, 25g x 16mm İğne ile birlikte x 120 | BD | 303175 | |
| Sığır Sığır Serum Albümini (BSA), %30 | Sigma-Aldrich | A7284-50ML | |
| Lamell Camı 18 x 18 mm | VWR | 631-0120 | |
| Lameli Cam 24 x 24 mm | VWR | 631-0126 | |
| Çift Taraflı Bant 19mm x 33m | Scotch | AMS12354 | |
| Sinek: Canton S | BDSC | 64349 | |
| Sinek: Optix-GAL4 | Kyoto | 104266 | |
| Sinek: nls-GFP/CyO-YFP | BDSC/ Desplan laboratuvarı | 4775 | |
| Flystuff Drosophila Ultimate Flypadlar | Genesee Scientific Corporation | 59-172B | |
| Kapaklı Buz Kovası, Yuvarlak, 4L, Mavi | Corning | 432123 | |
| Görüntü (FIJI) | (Ulusal Sağlık Enstitüleri, Bethesda, MD, ABD) | Fiji/ImageJ2 versiyon 2.16.0/1.54p | |
| Kimtech Science Precision Temizlik Mendilleri | Kimberly-Clark Professional | 05511 | |
| Laboratuvar Sızdırmazlık Filmi | Parafilm M | PM-996 | |
| Mikroskop lamları | VWR | 8037/1 | |
| Mini Santrifüj | VWR | 521-2848 | |
| Oje | Mumuso | 2023/11/05 | |
| Normal Keçi Serumu | Sigma-Aldrich | G9023 | |
| Boya fırçası | Camlin | S-66 | |
| Paraformaldehit (PFA) | Sigma | P6148 | |
| Petri kapları 100mm x 15mm | Falcon | 351029 | |
| Fosfat Tamponlu Tuzlu Su (PBS) | Sigma | P5493 | |
| PYREX® 9 Çukur Cam Leke Plakası | Corning | 7220-85 | |
| Sallayıcı (masaüstü) | Fisherbrand | 8861025 | |
| Safelock tüpleri 1,5 mL | Eppendorf | O219706H | |
| Schneider Böcek Besiyeri | Sigma | S0146 | |
| Slowfade gold solma önleyici | Invitrogen | S36936 | |
| Sylgard 184 Silikon Elastomer | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| Tungsten İğneler 0,25 mm | Fine Science Tools | 10130-10 | |
| Tungsten İğneler 0,5 mm | Fine Science Tools | 10130-20 | |
| UHU Çok Amaçlı Yapıştırıcı | UHU | 40815 | |
| Ultra ince pensler | WPI | 500235 | |
| Vectashield solma önleyici montaj medyumu | Vektör | H-1000 | |
| Vorteks Karıştırıcı | VWR | VM-3000 |
Kaynaklar
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında