Drosophila embriyoları kullanılarak, ilgilenilen genlerin mutant fenotiplerinin değerlendirilmesi ve miyoblast füzyonundaki rollerinin belirlenmesi için ayrıntılı bir yöntem açıklanmaktadır. Bu yaklaşım, embriyonik kas gelişimi sırasında gen fonksiyonunun sistematik olarak karakterize edilmesini sağlar.
Yöntem makalesi
Drosophila Embriyolarında Miyoblast Füzyonunun Genetik, Fenotipik ve Kantitatif Analizi
Bu makalede
Özet
Özet
Tek çekirdekli miyoblastların çok çekirdekli sinsityumlara füzyonu, iskelet kası gelişiminde temel bir süreçtir. Drosophila melanogaster dir bu süreçte rol oynayan aday genlerin fonksiyonunu hızlı ve verimli bir şekilde değerlendirmek için güçlü, genetik olarak manipüle edilebilir bir modeldir. Burada, [ilgili modelde] miyoblast füzyon fenotipini analiz etmek için adım adım talimatlar içeren kapsamlı bir protokol tanımlıyoruz. Drosophila embriyolar. Bu yöntem; aday gen için mutant hat seçimini, embriyo toplama ve fiksasyonunu, tüm vücut immün boyamasını (whole-mount immunostaining), gelişimsel evrelemini, konfokal görüntülemeyi ve fenotipik analizi içerir. Genel kas morfolojisini görselleştirmek ve kaynaşmamış mononükleat miyoblastları tanımlamak için miyozin ağır zincir (MHC) boyaması kullanılır. Paralel olarak, Even-skipped (Eve) boyaması belirli bir kas fiberi içindeki çekirdekleri işaretleyerek, o fibere dahil olan çekirdeklerin sayılması yoluyla füzyon derecesinin kantitatif analizine olanak tanır. Toplu olarak bu protokol, okuyucuların ilgilenilen herhangi bir genin mutant fenotiplerini değerlendirmelerine ve miyoblast füzyonundaki rollerini analiz etmelerine imkan sağlar. Bu yaklaşım, miyoblast füzyonunun yeni regülatörlerini tanımlamak ve karakterize etmek için sağlam bir çerçeve sunar.
Giriş
İskelet kası, toplam vücut ağırlığının %30'undan fazlasını oluşturarak insan vücudundaki en bol bulunan dokudur. Embriyonik gelişim sırasında iskelet kas lifleri, miyoblast olarak bilinen mononükleolu kas hücrelerinin, çok çekirdekli sinsityal miyofiberlere dönüşmek üzere kaynaşmasıyla meydana gelir1,2. Bu süreç, düzgün kas oluşumu, büyümesi ve fonksiyonu için temel teşkil eder ve bu sürecin bozulması birçok kas hastalığı ile ilişkilidir3,4. Omurgalı iskelet kasına benzer şekilde, Drosophila melanogaster'de embriyonik ve larval vücut duvarı kas sistemini oluşturan çok çekirdekli miyofiberler de mononükleolu miyoblastların kaynaşması yoluyla oluşur5,6,7,8. Drosophila'da kaynaşma, asimetrik füzyojenik sinaps üzerinde iki tip kas hücresi olan kas kurucu hücreler ve füzyon yeteneğine sahip miyoblastlar (FCM'ler) arasında gerçekleşir9,10,11,12,13. Önemli olan şudur ki, miyoblast kaynaşmasını yöneten hücresel olaylar ve moleküler mekanizmalar Drosophila ve omurgalılar arasında yüksek düzeyde korunmuştur14,15,16, bu da Drosophila'yı miyoblast kaynaşmasının genetik ve hücresel temellerini araştırmak için güçlü bir model organizma haline getirir.
Drosophila modeli ayrıca çeşitli deneysel avantajlar sunar. İlk olarak, Drosophila'nın kısa yaşam döngüsü (25 °C'de ~10 gün), hızlı genetik çaprazlamalara ve mutant hatların verimli bir şekilde oluşturulmasına olanak tanır. İkinci olarak, Drosophila embriyoları küçüktür ve fiksasyon sonrası antikorlara kolayca geçirgendir; bu durum, doku diseksiyonuna gerek kalmadan tüm embriyo düzeyinde immunboyama ve kas gelişiminin yüksek çözünürlüklü görüntülenmesine imkan verir. Üçüncü olarak, Drosophila embriyonik kas gelişimi, çoğu abdominal hemisegmentte 30 kas lifinin bulunduğu, oldukça stereotipik bir örüntü izler. Her kas lifi, belirlenmiş sayıda FCM (3 ile 30 arasında değişen) ile kaynaşan tek bir kurucu hücre tarafından belirlenir17; bu da miyoblast füzyonunun tekrarlanabilir ve kantitatif analizini mümkün kılar. Son olarak, kamusal olarak erişilebilir gen mutantı koleksiyonları ve kromozomal delesyonlar taşıyan defisyans hatları, zaman alan de novo mutant üretimine gerek kalmadan neredeyse tüm genlerin hızlı fonksiyon kaybı analizlerinin yapılmasına olanak sağlar.
Drosophila embriyolarında miyoblast füzyon fenotiplerini değerlendirmek için ayrıntılı bir protokol sunulmuştur (Şekil 1). Protokol; uygun mutant alellerin seçimi, embriyo toplama ve fikse etme, tüm monta immün boyama, embriyo görüntüleme ve füzyon fenotiplerinin kantitatif analizine yönelik stratejileri içermektedir. Toplu olarak bu prosedürler, miyoblast füzyonunda rol oynayan aday genlerin genetik analizi için hızlı ve verimli bir iş akışı sağlar.
Protokol
1. Miyoblast füzyonunun genetik analizi için mutant stokları seçin
- FlyBase'de ilgilenilen genin mutant hatlarını arayın. İlgili gen rapor sayfasını açın ve “Alleles, Insertions, Constructs, and Aberrations” başlığı altında listelenen mutant alelleri inceleyin.
- Her bir alel için bildirilen moleküler lezyonları inceleyerek null veya güçlü fonksiyon kaybı (loss-of-function) alellerini seçin. Nonsense mutasyonlar, çerçeve kayması (frameshift) mutasyonları, delesyonlar veya gen fonksiyonunu bozan insersiyonlar içeren alellere öncelik verin.
- Homozigot mutant embriyoları, balancer taşıyan kardeşlerinden ayırt etmek için seçilen mutant aleli floresan markör taşıyan bir balancer kromozomu üzerine yerleştirin. Mutant aleli taşıyan kromozoma göre uygun bir floresan balancer seçin (Tablo 1).
2. Drosophila embriyolarını toplama ve fikse etme
- 25 G iğne kullanarak 100 mL'lik plastik beherlerin yanlarına ve tabanlarına birden fazla havalandırma deliği açarak embriyo toplama kaplarını hazırlayın (Şekil 1).
- 15 g agarı 400 mL distile su (dH₂O) ile karıştırıp 121 °C'de 21 dk boyunca otoklavlayarak üzüm suyu agarını hazırlayın. Erimiş agarı el yakmayacak sıcaklığa kadar soğutun.
- 100 mL %100'lük üzüm suyunu el yakmayacak sıcaklığa kadar ısıtın ve erimiş agarla iyice karıştırın. Her bir 60 mm'lik kültür kabına yaklaşık 10 mL dağıtın, plakaların oda sıcaklığında katılaşmasını bekleyin ve 4 °C'de saklayın.
- 10 g kuru mayayı 15 ml dH₂O içinde pürüzsüz ve sürülebilir hale gelene kadar karıştırarak taze maya macunu hazırlayın. Macunu bir üzüm suyu agar plağının merkezine uygulayın ve plağı 25 °C'ye kadar ön ısıtmaya tabi tutun (Şekil 1).
NOT: Hazırlanan maya macununu 4 °C'de 2 haftaya kadar saklayın. - Mutant allel ve uygun bir floresan dengeleyici (balancer) için heterozigot olan 3−7 günlük yetişkin sinekleri toplama kaplarına aktarın.
NOT: Kontrol olarak w1118 gibi yabani tip sinekler kullanın. Bir toplama kabı için yaklaşık 50−80 dişi ve 40−50 erkek yeterlidir. - Ön ısıtılmış bir üzüm suyu agar plağını toplama kabının üzerine yerleştirin ve lastik bantlarla sabitleyin (Şekil 1). Toplama kabını 25 °C'de 12 sa boyunca inkübe edin.
- Sineklerin yerinden çıkması için toplama kabına hafifçe vurun ve plağı taze, ön ısıtılmış bir plakla değiştirin. Sineklerin alışması için plak değişimini 2 gün boyunca her 12 saatte bir tekrarlayın.
NOT: Soğuk plaklarda yumurta bırakma oranı azaldığından, her plağı kullanmadan önce 25 °C'ye kadar ön ısıtmaya tabi tutun. - 2 günlük alışma süresinden sonra plağı taze, ön ısıtılmış bir plakla değiştirin. Sineklerin gece boyunca 14−15 sa boyunca yumurta bırakmasına izin verin.
- 1,5 mL'lik bir mikrosantrifüj tüpünü distile su içindeki %0,1 (v/v) Triton X-100 ile doldurun. Embriyoları, %0,1 Triton X-100 içinde önceden bekletilmiş bir resim fırçası kullanarak plakadan toplayın ve tüpe aktarın.
- Embriyoları yeniden süspande etmek ve kalıntı maya macununu uzaklaştırmak için tüpü kuvvetlice çalkalayın. Embriyoların çökmesini bekleyin, ardından çözelti berraklaşana kadar en az 3 kez %0,1 Triton X-100 ile yıkayın (Şekil 1).
- Sodyum hipoklorit nihai konsantrasyonu %2,85 olacak şekilde 1,5 mL ~%50'lik ev tipi çamaşır suyu ekleyin. Embriyoları dekoryone etmek için 3 dk boyunca nutatörde sallayın.
NOT: Aşırı dekoryonasyon embriyolara zarar verebilir ve sonraki immünboyamayı bozabilir, bu nedenle uzun süreli çamaşır suyu maruziyetinden kaçının. - Embriyoların çökmesini bekleyin, çamaşır suyunu uzaklaştırın ve 3x %0,1 Triton X-100 ile yıkayın.
- Kalan yıkama çözeltisini uzaklaştırın ve fosfat tamponlu salin (PBS) içinde 700 µL %3,7'lik formaldehit ile 700 µL heptan ekleyin.
DİKKAT: Formaldehiti ve heptanı çeker ocak altında kullanın ve uygun kimyasal güvenlik prosedürlerine göre imha edin. - Tüpün kapağını sıkıca kapatın ve 30 sn boyunca kuvvetlice çalkalayın. Fiksasyonu tamamlamak için embriyoları 30 dk boyunca nutatörde sallayın.
- Embriyoların üst heptan fazı ile alt sulu faz arasındaki arayüzde birikmesini bekleyin (Şekil 1). Embriyoları rahatsız etmeden sulu fazı dikkatlice uzaklaştırın.
- Embriyoları devitellinize etmek için yaklaşık 700 µL metanol ekleyin ve 30 sn boyunca kuvvetlice çalkalayın.
NOT: Başarıyla devitellinize edilmiş embriyolar tüpün dibine çökerken, ayrılan vitellin membranlar arayüzde kalır (Şekil 1).
DİKKAT: Metanolü çeker ocak altında kullanın ve uygun kimyasal güvenlik prosedürlerine göre imha edin. - Embriyoları küçük bir hacim metanolle kapalı tutarak heptan ve metanolü uzaklaştırın. Embriyoları metanol ile iki kez yıkayın.
- Embriyoları, bir nutatör üzerinde yıkama başına 5 dk olmak üzere üç kez PBST (%0,1 Triton X-100 içeren PBS) ile yıkayarak rehidrate edin. Bu ve sonraki tüm adımlarda embriyoları ışıktan koruyun.
NOT: Dehidrasyonu önlemek ve embriyo morfolojisini korumak için devitellinasyondan sonra embriyoları çözeltiyle kaplı tutun. Floresan proteinleri ve florofor konjugatlı antikorları korumak için ortam ışığına maruziyeti minimize edin.
3. Tüm vücut immün boyama işlemini gerçekleştirin
- PBST'yi uzaklaştırın ve embriyoları 1,5 mL PBSBT (PBST içinde %0,5 BSA (a/h) ve 5 mM NaN3) içerisinde, bir nutatör üzerinde oda sıcaklığında en az 1 saat inkübe edin.
- Embriyo transferi sırasında mekanik hasarı en aza indirmek ve daha geniş bir açıklık oluşturmak için bir pipet ucunun ucunu kesin.
- Bloklanmış embriyoları 0,5 mL'lik bir mikrosantrifüj tüpüne aktarın ve bloklama solüsyonunu uzaklaştırın. Anti-MHC antikoru (1:500)18 ve/veya anti-Eve antikoru (0,5 µg/mL) içeren 200−300 µL taze PBSBT ekleyin.
- Embriyoları primer antikorlarla birlikte bir nutatör üzerinde 4 °C'de gece boyunca inkübe edin.
NOT: Myoblast füzyon fenotipi belirlendikten sonra kantitatif analiz için anti-Eve ko-boyaması gerçekleştirin. Drosophila embriyonik kas yapısını görselleştirmek için tavşan veya sıçan anti-MHC antikoru kullanılabilir. - Primer antikor solüsyonunu uzaklaştırın ve embriyoları bir nutatör üzerinde, her yıkama için 10 dk olacak şekilde PBST ile üç kez yıkayın.
NOT: Uygun olduğunda yeniden kullanmak üzere primer antikor solüsyonunu 4 °C'de saklayın. Solüsyon tipik olarak 1 ay içinde üç kezle kadar yeniden kullanılabilir. - Embriyoları, uygun floresan sekonder antikorları içeren 300 µL PBSBT içerisinde, 1:500 dilüsyonda, bir nutatör üzerinde oda sıcaklığında 2 saat inkübe edin.
- Sekonder antikor solüsyonunu uzaklaştırın ve embriyoları her yıkama için 10 dk olacak şekilde PBST ile üç kez yıkayın.
- Son PBST yıkamasını uzaklaştırın ve yaklaşık 80 µL mount etme medyumu ekleyin. Embriyoları bir mikroskop lamına aktarın, numunenin üzerine nazikçe bir lamella yerleştirin ve kenarları mühürleyin (Şekil 1).
NOT: Hazırlanan lamları 4 °C'de, ışıktan koruyarak saklayın ve optimal floresan sinyali için mümkün olan en kısa sürede görüntüleyin.
4. Embriyoların evrelemesi ve görüntülenmesi
- Aydınlık alan aydınlatması altında, orta bağırsağın karakteristik kalp şeklindeki morfolojisiyle19 geç evre 15 embriyolarını tanımlayın.
NOT: MHC protein ekspresyonu, evre 14 veya daha erken evredeki embriyolarda saptanamaz. Evre 16 embriyolarda, kalp şeklindeki orta bağırsak daralır ve dört boşluğa ayrılır19. - Floresan işaretçinin yokluğu ile homozigot mutant embriyoları tanımlayın.
NOT: Homozigot mutant embriyolar, floresan işaretli balancer'ı taşımadıkları için floresan protein ekspres etmezler. Yabani tip kontrol embriyoları için bu adımı atlayın. - Anti-MHC antikoru ile işaretlenmiş tüm somatik kas sistemini görüntülemek için lateral yönelimli embriyoları seçin.
NOT: Dorsal veya ventral yönelimli embriyolar, öncelikle kas sisteminin ilgili kısmını ortaya çıkarır. Miyoblast füzyon kusurlarını kapsamlı bir şekilde değerlendirmek için lateral yönelimli embriyolar kullanın. - Sinyal doygunluğu olmadan net MHC floresansı elde etmek için lazer gücünü ve detektör kazancını ayarlayın ve bu ayarları her deneydeki tüm örnekler için sabit tutun. Somatik kas sisteminin tüm derinliğini kapsayacak şekilde z-stack üst ve alt sınırlarını belirleyin.
- Görüntü çözünürlüğünü 1024 × 1024 piksel, pinhole'u 1 Airy ünitesi, hat/kare ortalamasını 1 ve zoom faktörünü 1 olarak ayarlayın ve bu ayarları her deneydeki tüm örnekler için sabit tutun. 40× yağ daldırmalı objektif kullanarak 1.0 µm aralıklarla konfokal z-stack görüntüleri edinin.
- Fenotipin tekrarlanabilirliğini değerlendirmek için genotip başına yaklaşık 6−10 embriyoyu görüntüleyin.
NOT: Homozigot mutant genotipinin doğrulanması gerektiğinde, floresan balancer-işaretçi kanalını MHC kanalıyla eş zamanlı olarak edinin.
5. Füzyon kantifikasyonu için DA1 kasının görüntüsünü alın
- Yanal yönelimli embriyolarda miyoblast füzyon defekti saptadıktan sonra MHC ve Eve ko-boyaması gerçekleştirin.
- Görüntüleme için dorsal yönelimli evre 15 mutant ve kontrol embriyolarını seçin.
NOT: Even-skipped (Eve), dorsal akut kas 1 (DA1) çekirdeklerinde spesifik olarak eksprese edilir20. DA1 kasına dahil olan Eve-pozitif çekirdek sayısını belirleyerek miyoblast füzyonunu nicelendirin. - Sinyal doygunluğu olmadan net MHC ve Eve floresansı elde etmek için görüntüleme parametrelerini ayarlayın. Eve sinyaline dayanarak, DA1 kasının tüm derinliğini kapsayan bir z-yığının (z-stack) sınırlarını belirleyin.
- Yukarıda açıklanan görüntüleme parametrelerini kullanarak konfokal z-yığını görüntüleri edinin. Füzyon nicelendirmesi için genotip başına yaklaşık 6−10 embriyoyu görüntüleyin.
6. Çekirdekleri nicelleştirin ve istatistiksel analiz yapın
- Stereotipik ve tekrarlayıcı kas modellerine göre A1−A7 abdominal hemisegmentlerini belirleyin.
- MHC ile işaretlenmiş DA1 kası içindeki Eve-pozitif çekirdekleri belirleyin. Tüm z-stack'i inceleyin ve her bir DA1 kası içinde farklı odak düzlemlerinde bulunan tüm Eve-pozitif çekirdekleri sayın.
NOT: Her abdominal hemisegment tek bir DA1 kası içerir. Bu nedenle, belirli bir hemisegment içindeki tüm Eve-pozitif çekirdekler, ilgili DA1 kasına dahil edilerek sayılır. - Her embriyo için, A2−A5 gibi aynı abdominal hemisegment setindeki DA1 çekirdeklerini miktarlandırın.
NOT: A1−A7 abdominal hemisegmentlerinden gelen DA1 kasları miktarlandırma için uygun olsa da, yedi hemisegmentin tamamını analiz etmek gereksizdir. Bunun yerine, tutarlılığı sağlamak için her embriyo başına A2−A5 gibi birkaç hemisegmenti miktarlandırın ve tüm embriyolarda aynı hemisegment setini analiz edin. - Her embriyo için DA1 kası başına ortalama çekirdek sayısını hesaplayın ve bu ortalama değeri tek bir bağımsız veri noktası olarak kullanın. Analiz ve grafikleme için bireysel embriyo veri noktalarını istatistiksel analiz yazılımına girin.
- İki koşulu karşılaştırmak için çift kuyruklu Student's t-testi kullanın. Üç veya daha fazla koşulu karşılaştırmak için tek yönlü ANOVA ve ardından Dunnett testi kullanın; p < 0.05 değerini istatistiksel olarak anlamlı kabul edin.
Sonuçlar
Uygun bir mutant alel seçimini örneklendirmek için spook (spo) FlyBase gen rapor sayfası sunulmuştur. spo, steroid hormon biyosentezinde yer alan enzimleri kodlayan “Halloween” genlerinden biridir21,22 ve miyoblast füzyonunu desteklediği gösterilmiştir23. spo FlyBase gen rapor sayfasının “Alleles” (Aleller) bölümü, literatürde bildirilen 12 spo mutant alelini listeler; bunlardan dördü BDSC'ye kaydedilmiştir (Şekil 2A) ve kolayca temin edilebilir. İstenen alel BDSC aracılığıyla temin edilemiyorsa, mutant hattı ilk bildiren araştırma grubundan doğrudan talep edilebilir.
BDSC'den temin edilebilen dört mutant alel arasından, spo1 bir missense mutasyon (G481E) taşırken, spoMI06810 kodlama dizisi içinde, Y341 amino asidinde çerçeve kaymasına (frameshift) neden olan bir MiMIC insersiyonu içerir (Şekil 2B,C). Spo proteini 543 amino asitten oluştuğu için, spoMI06810 (Y341fs)'nin toplam uzunluğunun yaklaşık %40'ı eksik, kısalmış bir protein üreteceği öngörülmektedir ve bu nedenle muhtemelen güçlü bir fonksiyon kaybı (loss-of-function) alelini temsil etmektedir. Bu sebeple, miyoblast füzyonunun fenotipik analizi için spoMI06810, spo1 aleline tercih edilir.
Miyoblast füzyonu, embriyonik evre 12'de (yumurta yumurtlamasından [AEL] 7.3−9.3 saat sonra) başlar ve büyük ölçüde evre 15'in sonunda (11.3−13.3 saat AEL) tamamlanır24. Bu nedenle füzyon fenotipleri; somatik kas paterninin oluştuğu ve çoğu füzyon olayının tamamlandığı evre 15'in geç aşamasındaki embriyolarda değerlendirilir.
Evre 15 embriyoları iki belirgin morfolojik özellik ile tanımlanabilir: dorsal kapanmanın tamamlanması ve orta bağırsağın karakteristik kalp şeklindeki morfolojisinin kazanılması (Şekil 3A–C)19. Evre 14 embriyoları devam eden baş involüsyonu ile ayırt edilebilirken (Şekil 3A), evre 15 embriyoları karakteristik kalp şeklinde orta bağırsak sergiler (Şekil 3B). Evre 16 embriyoları, orta bağırsak daralması ve dört odacığın (gastrik sekumlar; Şekil 3C) oluşumu ile tanımlanabilir19. Ek olarak, MHC protein ekspresyonu evre 14 dahil daha erken evrelerde saptanamazken, evre 15 ve sonraki evrelerde güçlü hale gelir (Şekil 3A–C).
Geç embriyonik 15. evrede, vahşi tip (w1118) embriyolarda vücut duvarı kas yapısı tamamen şekillenmiştir ve çoğu abdominal hemisegment lateral görünümde özdeş, stereotipik bir kas paterni sergiler (Şekil 3B). Bu stereotipik kas paterni, tavşan veya sıçan anti-MHC antikorları kullanılarak görselleştirilebilir (Şekil 3B,D). Buna karşılık, embriyolar dorsal veya ventral yönde görüntülendiğinde daha az kas lifi görülür (Şekil 3E,F). Bu nedenle, embriyoların lateral yönde görüntülenmesi, tüm vücut duvarı kas yapısının görselleştirilmesine olanak tanır ve miyoblast füzyon kusurlarının değerlendirilmesini kolaylaştırır.
Miyoblast füzyon kusurlarını incelemek için, homozigot mutant embriyoların vücut duvarı kas yapısının lateral oryantasyonda görüntülemesi yapılır. Homozigot mutantlar, GFP veya YFP gibi floresan bir dengeleyici (balancer) markörün yokluğu ile tanımlanır. Örneğin, spoMI06810/TM3, twi>UAS-GFP ebeveynlerden türetilen homozigot spo mutant embriyolar GFP negatiftir; öte yandan, dengeleyiciyi taşıyan kardeş embriyolar mezodermde GFP ekspres eder (Şekil 4B,C). Yabanıl tip ve GFP pozitif kardeş embriyolarla karşılaştırıldığında, spo mutant embriyolar, çok sayıda birleşmemiş füzyon yetenekli miyoblastın (FCM'ler; Şekil 4A–C) varlığı ile karakterize edilen bir miyoblast füzyon kusuru sergiler.
Özellikle, spo mutant embriyolarının yüzey kesitine (Z1) kıyasla, daha derin optik kesitlerde (Z3 ve Z4) daha fazla kaynaşmamış FCM gözlemlenmektedir (Şekil 4B). Bu dağılım, embriyonik miyoblast kaynaşması sırasında kurucu hücrelerin ve FCM'lerin mekansal organizasyonunu yansıtmaktadır. Kurucu hücreler ve büyüyen miyotüpler öncelikle mezodermin yüzeysel tabakasında yer alırken, FCM'ler büyüyen miyotüplere doğru göç edip onlarla kaynaşmadan önce daha derin tabakalarda bulunur25. Sonuç olarak, kaynaşmamış miyoblastlar, özellikle kısmi kaynaşma kusurları olan embriyolarda, daha derin konfokal kesitlerde daha boldur. Bu nedenle, kaynaşma fenotipinin şiddetinin olduğundan az tahmin edilmesini önlemek için vücut duvarı kaslığının tüm derinliğini kapsayan z-yığınlarının alınması gereklidir.
Lateral oryantasyonda genel vücut duvarı kaslığının görselleştirilmesi, miyoblast füzyon defektlerinin fenotipik değerlendirmesine olanak tanısa da, DA1 kasının dorsal oryantasyonda görselleştirilmesiyle kantitatif analiz gerçekleştirilebilir. Yabanı tip embriyolarda, DA1 kası tamamen oluşmuştur ve 13,03 ± 0,60 Eve-pozitif çekirdek içerir (Şekil 5A,C). spo mutant embriyolarda, DA1 kasındaki Eve-pozitif çekirdek sayısı 8,16 ± 0,54'e düşmüştür (Şekil 5B,C); bu durum, daha az sayıda FCM'nin DA1 kurucu hücresiyle kaynaştığı bir füzyon defektine işaret eder. Tutarlı ve tekrarlanabilir bir kantifikasyon için, aynı abdominal hemisegmentlerin (A2−A5) DA1 kaslarındaki Eve-pozitif çekirdekler sayılır ve embriyo başına ortalaması alınır; her embriyodan elde edilen ortalama, istatistiksel analiz için tek bir veri noktası olarak kullanılır (Şekil 5C).
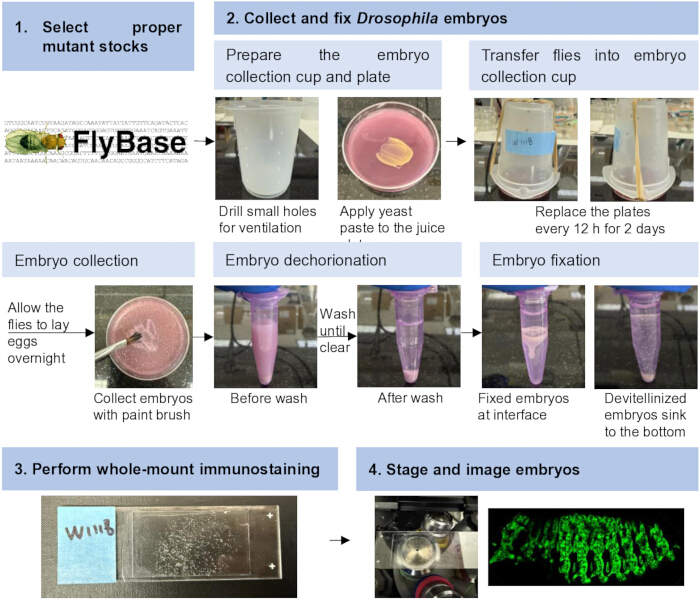
Şekil 1: Drosophila embriyolarında miyoblast füzyonunun genetik, fenotipik ve kantitatif analizi için iş akışı. İş akışı; uygun mutant stoklarının seçimi, embriyo toplama ve fiksasyonu, tüm vücut immün boyama ve montaj, embriyo evreleme ve görüntüleme işlemlerini içerir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
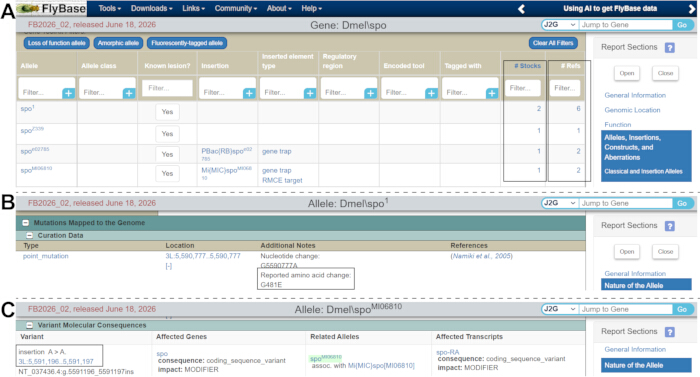
Şekil 2: FlyBase kullanılarak mutant alellerin seçimi. (A) spo için FlyBase gen rapor sayfasının ekran görüntüsü. Mutant aleller “Alleles” bölümünde listelenmiştir. Stocks sütunu (kutulu), mevcut stok sayısını belirtirken, Refs sütunu (kutulu) ilişkili referans sayısını belirtmektedir. (B,C) İki temsilci spo mutant alelinin, spo1 (B) ve spoMI06810 (C), moleküler lezyonları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
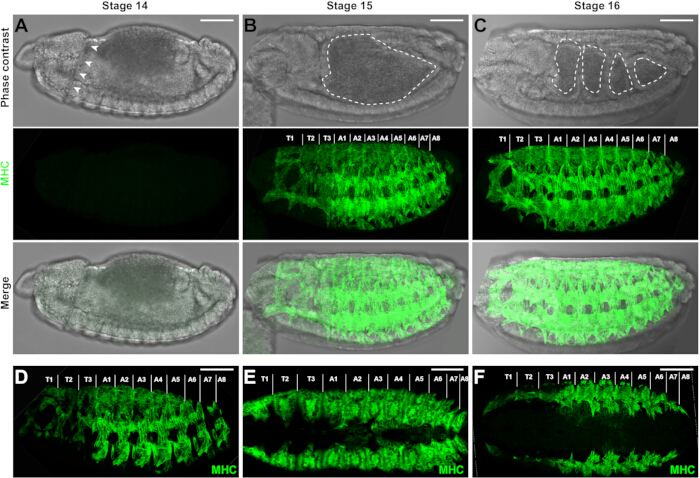
Şekil 3: Drosophila embriyonik kas yapısı. (A–C) 14, 15 ve 16. evrelerdeki yabani tip (WT) embriyoların faz-kontrast görüntüleri, MHC boyalı z-projeksiyon konfokal görüntüleri ve birleştirilmiş görüntüleri. 14. evre embriyoda (A) baş involüsyonu belirgindir (ok uçları). 15. evre embriyoda (B) karakteristik kalp şeklinde bir orta bağırsak (kesikli çizgi) gözlemlenirken, 16. evre embriyoda (C) orta bağırsak dört ayrı bölmeye (kesikli çizgiler) ayrılmıştır. MHC protein ekspresyonu 14. evrede (A) saptanamaz ancak 15. (B) ve 16. (C) evrelerde belirgin hale gelir. Embriyolar; ön taraf sol, arka taraf sağ, dorsal taraf yukarı ve ventral taraf aşağı olacak şekilde yan görünümde gösterilmiştir. Torasik (T1–T3) ve abdominal (A1–A8) hemisegmentler belirtilmiştir. (D) 15. evre WT embriyoda kas yapısının rat anti-MHC antikoru kullanılarak görselleştirilen yan görünüm konfokal görüntüsü. Diğer panellerdeki görüntüler için rabbit anti-MHC antikoru kullanılmıştır. (E,F) 15. evre WT embriyolarda kas yapısının dorsal (E) ve ventral (F) görünümlerinin z-projeksiyon konfokal görüntüleri. Dorsal ve ventral yönelimlerde, yan yönelime kıyasla daha az kas lifi görülmektedir. Ölçek çubuğu = 50 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
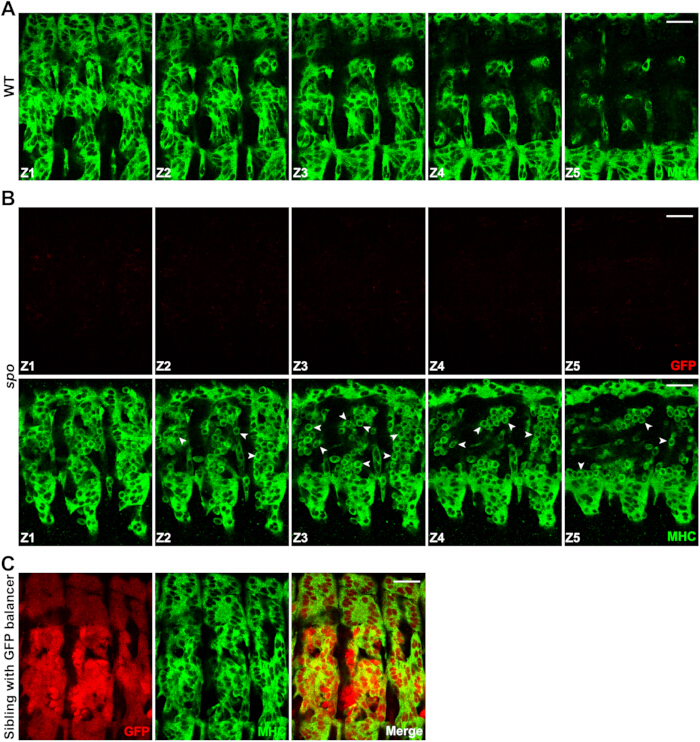
Şekil 4: Yaban tip ve spo mutant embriyolar arasındaki kas yapısının karşılaştırılması. (A) Geç evre 15 WT embriyosunun yan görünümündeki vücut duvarı kas yapısına ait temsili konfokal z-yığın görüntüleri. Miyoblast füzyonu tamamlanmıştır ve kaynaşmamış miyoblast gözlenmemektedir. MHC yeşil renkte gösterilmiştir. (B) spoMI06810/TM3, twi>UAS-GFP ebeveynlerden elde edilen GFP-negatif bir spo mutant embriyosunun yan görünümündeki vücut duvarı kas yapısına ait temsili konfokal z-yığın görüntüleri. GFP floresanının (kırmızı) yokluğu, embriyonun spoMI06810 için homozigot olduğunu gösterir. Ok uçları temsili kaynaşmamış miyoblastları belirtmektedir. Embriyo yüzeyine (Z1) kıyasla daha derin optik kesitlerde (Z3 ve Z4) daha fazla kaynaşmamış miyoblast gözlenmektedir. MHC yeşil renkte gösterilmiştir. (C) Aynı spoMI06810/TM3, twi>UAS-GFP ebeveynlerden elde edilen GFP-pozitif kardeş embriyonun yan görünümüne ait konfokal görüntüler. TM3 balansla üzerindeki twi>UAS-GFP transgeni tarafından yönlendirilen mezodermal GFP ekspresyonu (kırmızı), GFP-pozitif kardeş embriyoları GFP-negatif homozigot spo mutant embriyolardan ayırır. MHC yeşil renkte gösterilmiştir. Ölçek çubuğu = 20 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
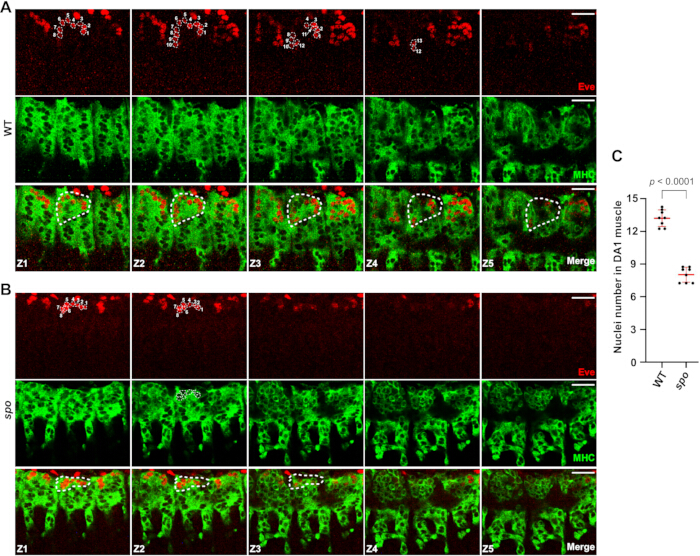
Şekil 5: DA1 kaslarının temsili konfokal z-yığın görüntüleri ve nicelendirmesi. (A,B) Anti-MHC (yeşil) ve anti-Eve (kırmızı) ile işaretlenmiş geç evre 15 WT (A) ve spo mutant (B) embriyolarının dorsal görünümlerine ait konfokal z-yığın görüntüleri. Kas içindeki tüm çekirdekleri yakalamak için konfokal z-yığınları, Eve-pozitif DA1 kasının tüm derinliği boyunca elde edilmiştir. Eve-pozitif çekirdekler, MHC sinyali içinde boyanmamış bölgeler olarak görünmektedir. Temsili bir DA1 kası kesikli çizgi ile çevrelenmiş ve DA1 kası içindeki Eve-pozitif çekirdekler numaralandırılmıştır. (C) WT ve spo mutant embriyoların DA1 kaslarındaki Eve-pozitif çekirdeklerin nicelendirmesi. Her genotip için sekiz embriyo nicelendirilmiştir. Her bir veri noktası, tek bir embriyonun A2–A5 hemisegmentlerindeki DA1 kaslarındaki ortalama çekirdek sayısını temsil eder. Veriler ortalama ± SD (kırmızı çubuklar) olarak sunulmuştur. İstatistiksel anlamlılık, iki yönlü Student's t-testi kullanılarak belirlenmiştir; p < 0.0001. Ölçek çubuğu = 20 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| BDSC stok numarası | Genotip | Amaç |
| 6873 | N1/FM7c, twi>UAS-GFP | Mezodermal GFP ekspresyonu, GFP-negatif, homozigot mutant embriyoların tanımlanmasına olanak tanır. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | Dr.Mio/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | Başa özgü YFP ekspresyonu, YFP-negatif, homozigot mutant embriyoların tanımlanmasına olanak tanır. |
| 23230 | SNA (Sodyum-Potasyum Adenozin Trifosfataz)Kapsam/ CyO, Dfd-YFP | |
| 23232 | Dr.1/TM6B, Dfd-YFP |
Tablo 1: Balansör kromozomlar üzerinde floresan marker geni taşıyan Drosophila stokları.
Tartışma
Burada açıklanan protokol, Drosophila embriyolarındaki miyoblast füzyonunun genetik, fenotipik ve kantitatif analizi için kapsamlı bir iş akışı sunmaktadır. Önemli bir nokta olarak, mutant bir hatta füzyon defektinin gözlemlenmesi, ilgili genin gözlemlenen fenotipten sorumlu olduğunu doğrulamak için ek genetik analizler gerektirir. Stok bakımı sırasında spontane arka plan mutasyonları birikebilir ve mutant fenotiplere katkıda bulunabilir26. Bir yaklaşım, mutant alelin ilgili geni silen kromozomal bir eksiklikle çaprazlanmasıyla oluşturulan trans-heterozigot embriyoları incelemektir. Bu embriyolarda aynı füzyon defektinin gözlemlenmesi, fenotipin ilgisiz arka plan mutasyonlarından ziyade aday genin bozulmasından kaynaklandığı sonucunu destekleyecektir. GAL4/UAS sistemi27 kullananlar gibi genetik kurtarma deneyleri, ilgili genin ekspresyonunun mutant embriyolarda normal miyoblast füzyonunu geri getirip getirmediğini belirleyerek daha fazla doğrulama sağlayabilir.
Drosophila Gen Bozulma Projesi, Drosophila genlerinin yaklaşık %75'ini kapsayan ve halka açık bir mutant hat koleksiyonu oluşturmuş olsa da28, özellikle güçlü fonksiyon kaybı alelleri gibi uygun mutant aleller her ilgi duyulan gen için mevcut olmayabilir. Bu gibi durumlarda, kromozomal defisyans hatları, bir aday genin miyoblast füzyonunda yer alıp almadığını değerlendirmek için alternatif bir kaynak olarak kullanılabilir. Mevcut defisyans hattı koleksiyonları, ökromatik Drosophila genomunun %98'inden fazlasını kapsamakta29 ve neredeyse tüm genlerin fonksiyon kaybı analizine olanak tanımaktadır. Kromozomal defisyanslar, FlyBase gen raporunun “Aberrations” bölümü altında tanımlanabilir. Ancak, her defiyans hattı birden fazla geni sildiği için, homozigot defiyans embriyolarda gözlemlenen bir miyoblast füzyon defekti, daha fazla doğrulama yapılmadan silinen kromozomal bölge içindeki belirli bir gene atfedilemez. Bu nedenle, bir defiyans hattı kullanılarak bir füzyon defekti tespit edildiğinde, aday genin miyoblast füzyonundaki spesifik rolünü belirlemek için tek gen nakavt mutantı oluşturulmalı ve analiz edilmelidir.
Bu protokol, ilgilenilen tekil genlerin mutantlarının fenotipik analizine odaklansa da, iş akışı mevcut eksiklik koleksiyonlarını kullanarak myoblast füzyonunun yeni regülatörleri için geniş ölçekli eksiklik taramalarına da uygulanabilir29. Ek olarak, MHC antikorunun spesifik myoblast füzyon regülatörlerine karşı antikorlarla değiştirilmesi; embriyo toplama, fiksasyon ve immünboyama dahil olmak üzere genel iş akışının, protein lokalizasyonunun füzyojenik sinapsa göre incelenmesi için uyarlanmasına olanak tanır. Son olarak, burada açıklanan yöntemler, myoblast füzyonunun ötesindeki diğer embriyonik gelişim süreçlerinin fenotipik analizi için uyarlanabilir ve böylece protokolün faydası daha geniş bir gelişimsel çalışmalar yelpazesine yayılabilir.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler. ChatGPT 5 (OpenAI) yalnızca dilbilgisi ve dil düzenlemesi için kullanılmıştır. Bilimsel içerik, veri, analiz veya şekiller oluşturmak için kullanılmamıştır.
Teşekkürler
Sinek stokları için Bloomington stok merkezine teşekkür ederiz. Bu çalışma, E.H.C.'ye verilen R01AR085116 ve R35GM136316 numaralı NIH hibeleri tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Agar | Fisher | BP1423-500 | Agar tozu; katı kültür ortamı hazırlamak için kullanılır. |
| Sığır serum albümini (BSA) | Sigma | A7906 | Sığır serum albümini; immünboyama sırasında bloklama solüsyonlarının hazırlanması için kullanılır. |
| Konfokal mikroskop | Leica | SP8 | Boyanmış örneklerin floresan görüntülemesi için kullanılan lazer taramalı konfokal mikroskop. |
| Konfokal mikroskop | Nikon | A1R | Boyanmış örneklerin floresan görüntülemesi için kullanılan lazer taramalı konfokal mikroskop. |
| Lamel | Fisher | 12-545-CP | Cam lamel, 40 mm × 22 mm; mikroskopi için örneklerin montajında kullanılır. |
| Kültür kabı | Corning | 430166 | 60 mm kültür kabı; biyolojik örneklerin taşınması, kültüre edilmesi veya işlenmesi için kullanılır. |
| Kuru maya | Sigma | YSC2 | Organizma kültürü için besin kaynağı olarak kullanılan kuru maya. |
| Formaldehit, %37 | Fisher | BP531-500 | Fiksatif hazırlamak için kullanılan konsantre formaldehit solüsyonu. DİKKAT: Toksik ve uçucudur; uygun kişisel koruyucu donanım kullanılarak ve kimyasal çeker ocak altında işlem yapın. |
| Keçi anti-fare IgG 647 | ThermoFisher | A-21236 | Fare primer antikorlarının floresan tespiti için florofor konjuge keçi anti-fare IgG sekonder antikoru. |
| Keçi anti-tavşan IgG 568 | ThermoFisher | A-11036 | Tavşan primer antikorlarının floresan tespiti için florofor konjuge keçi anti-tavşan IgG sekonder antikoru. |
| Heptan | Fisher | H350 | Örnek fiksasyonu ve permeabilizasyon sırasında kullanılan organik solvent. DİKKAT: Yanıcı ve zararlıdır; uygun kişisel koruyucu donanım ile kimyasal çeker ocak altında işlem yapın. |
| İnkübatör | Percival | I36LL | Kültürlerin veya deneysel organizmaların tanımlanmış çevresel koşullar altında tutulması için kullanılan sıcaklık kontrollü inkübatör. |
| Metanol | Pharmco | 339000ACSBK01 | Örneklerin fiksasyonu,yıkama veya permeabilizasyonu sırasında kullanılan metanol. DİKKAT: Yanıcı ve toksiktir; uygun kişisel koruyucu donanım ile kimyasal çeker ocak altında işlem yapın. |
| Mikroskop lamları | Fisher | 12-550-15 | Görüntüleme için örneklerin montajında kullanılan cam mikroskop lamları. |
| Montaj medyumu | ThermoFisher | P36980 | Floresansı korumak ve boyanmış örnekleri mikroskopi için monte etmek amacıyla kullanılan antifade montaj medyumu. |
| Fare anti-Even skipped (Eve) | DSHB | 2B8 | Even skipped proteinini tanıyan fare monoklonal primer antikor; immünofloresan boyama için kullanılır. |
| Nutatör | Corning | 6720 | Yıkama, bloklama veya antikor inkübasyon basamakları sırasında örneklerin hafif ve sürekli ajitasyonu için kullanılan masaüstü nutasyon mikseri. |
| Plastik beher | Sigma | Z245380 | Sinek toplama kabı oluşturmak için kullanılan 100 mL plastik beher. |
| Tavşan anti-Miyozin ağır zinciri (MHC) | — | — | Drosophila miyozin ağır zincirini tanıyan tavşan primer antikoru; antikor kaynağı Kiehart ve Feghali (1986), Journal of Cell Biology 103, 1517–1525 tarafından tanımlanmıştır. |
| Sıçan anti-Miyozin ağır zinciri (MHC) | DSHB | BB7/21.14 | Miyozin ağır zincirini tanıyan sıçan monoklonal primer antikor; immünofloresan boyama için kullanılır. |
| Sodyum azit (NaN3) | Sigma | S8032 | Antikor veya tampon solüsyonlarında koruyucu olarak kullanılan sodyum azit. DİKKAT: Yüksek derecede toksiktir; yutmaktan, solumaktan, ciltle temastan ve metallerle temastan kaçının. |
| Triton X-100 | Fisher | AAA16046AP | Membran permeabilizasyonu ile yıkama veya bloklama tamponlarının hazırlanması için kullanılan non-iyonik deterjan. |
| 10× fosfat tamponlu salin (PBS) | Fisher | BP3994 | Yıkama, seyreltme ve tampon hazırlama için 1× PBS hazırlamak için kullanılan konsantre fosfat tamponlu salin. |
Kaynaklar
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında