Elektroakupunktur, nucleus tractus solitarius içindeki nöronal aktiviteyi geri getirerek kronik kalp yetmezliğini ve patolojik kardiyak yeniden şekillenmeyi hafifletir. Bu terapötik merkezi nöromodülasyon, aday biyolojik hedef transkripsiyon faktörü YY1'in yukarı regülasyonu ile ilişkilidir.
Araştırma makalesi
Kronik Kalp Yetmezliğinde Elektroakupunkturun Merkezi Mekanizmaları: Nucleus Tractus Solitarius'un Kantitatif Proteomiğinden Elde Edilen Veriler
* These authors contributed equally
Bu makalede
Özet
Özet
Kronik kalp yetmezliği (KKY), otonom disregülasyon ve sempatik aşırı aktivasyonun tetiklediği, küresel çapta kardiyovasküler mortalitenin önde gelen nedenlerinden biridir. Elektroakupunktur (EA), merkezi nöromodülasyon yoluyla kardiyoprotektif etkiler gösterse de, temel bir otonom entegrasyon merkezi olan nucleus tractus solitarius (NTS) içindeki spesifik moleküler hedefleri belirsizliğini korumaktadır. Bunu araştırmak amacıyla, sol anterior descendens koroner arter ligasyonu yoluyla KKY sıçan modeli oluşturulmuştur. Sıçanlar, yedi ardışık gün boyunca bilateral HT7 akupunktur noktalarından EA uygulamasına tabi tutulmuştur. Kardiyak fonksiyon ve miyokardiyal hasar; ekokardiyografi, enzimle bağlantılı immünosorbent analizler ve histolojik boyama kullanılarak değerlendirilmiştir. NTS nöral aktivitesi, c-Fos immünofloresansı ve in vivo elektrofizyoloji ile analiz edilmiştir. Moleküler mekanizmalar, kantitatif proteomik ve biyoinformatik kullanılarak araştırılmış; temel hedefler kantitatif PCR ve Western blotting ile doğrulanmıştır. EA, sol ventrikül ejeksiyon fraksiyonunu iyileştirmiş, miyokardiyal fibrozisi hafifletmiş ve serum kalp yetmezliği belirteçlerini azaltmıştır. Eş zamanlı olarak EA, NTS içindeki spontan nöronal ateşleme hızlarını, yerel alan potansiyeli enerjisini ve c-Fos ekspresyonunu restore etmiştir. Proteomik profilleme, EA tarafından modüle edilen 85 temel diferansiyel eksprese protein tanımlamıştır. Downregüle olan 58 ve upregüle olan 27 proteinin fonksiyonel stratifikasyonu, bu proteinlerin sırasıyla hücre dışı matris organizasyonu ve ATP-bağımlı kromatin yeniden düzenlenmesine katıldığını ortaya koymuştur. Topolojik ağ haritalama, yolak zenginleştirme ve doku ekspresyon profillemesini entegre eden kademeli tarama yaklaşımı, transkripsiyon faktörü YY1'i yüksek yanıt veren bir aday hedef olarak belirlemiştir. In vivo doğrulama, EA'nın YY1 ekspresyonunu upregüle ettiğini onaylamıştır. Genel olarak EA, patolojik kardiyak yeniden şekillenmeyi hafifletmiş ve NTS nöronal aktivitesini restore etmiştir. YY1, bu merkezi nöromodülasyonla ilişkili bir aday hedef olarak tanımlanmış ve KKY'de EA etkilerinin altında yatan mekanizmalara dair moleküler içgörü sağlamıştır.
Giriş
Kronik kalp yetmezliği (KKY), çeşitli kardiyovasküler patolojilerin son evresi olarak yaygın bir şekilde kabul edilmekte ve dünya çapında kardiyovasküler ölümlerin önde gelen nedeni olmaya devam ederek küresel sağlık sistemleri üzerinde büyük bir yük oluşturmaktadır1. KKY'nin patofizyolojik ilerlemesi, temel olarak sürekli sempatik aşırı aktivasyon ve parasempatik çekilme ile karakterize otonom sinir sistemi düzensizliği tarafından yönlendirilir2. Bu nedenle, otonom homeostazın yeniden sağlanması, patolojik kardiyak yeniden şekillenmeyi azaltmak ve genel kardiyak fonksiyonu iyileştirmek için kritik bir terapötik strateji olarak değerlendirilmektedir3.
Elektroakupunktur (EA), geleneksel akupunkturun modern bir gelişimi olup kardiyovasküler durumların yönetimindeki klinik etkinliğiyle yaygın bir kabul görmüştür4. Önceki çalışmalarımız da dahil olmak üzere kapsamlı araştırmalar, bu tedavinin öncelikle merkezi otonom sinir sistemini modüle ederek önemli kardiyoprotektif etkiler gösterdiğini vurgulamıştır. Özellikle, Shenmen (HT7) akupunktur noktasına uygulanan EA'nın, hedeflenmiş merkezi nöral mekanizmalar aracılığıyla aşırı sempatik çıkışı etkili bir şekilde baskılayabildiğini ve sempatovagal dengeyi yeniden kurabildiğini, böylece CHF'nin patolojik ilerleyişini hafiflettiğini göstermişiz5,6,7,8.
Medulla oblongatada bulunan nucleus tractus solitarius (NTS), merkezi otonom dengenin sürdürülmesi için hayati bir entegrasyon merkezidir. Kardiyovasküler refleksler ve periferik duyusal girdiler için birincil aktarma istasyonu olarak görev yapar ve sempatik ile vagal tonus arasındaki dinamik dengeyi düzenler9. Anatomik ve fonksiyonel önemine rağmen, CHF için uygulanan EA tedavisi sırasında bu kritik beyin sapı merkezindeki spesifik moleküler değişiklikler büyük ölçüde bilinmemektedir. Biyoenformatik analizle birleştirilmiş ileri yüksek kapasiteli proteomik, bu merkezi nörobiyolojik süreçte yer alan karmaşık protein ağlarını ve sinyal kaskadlarını tarafsız bir şekilde haritalamak için güçlü bir araç sunar10.
Bu nedenle, bu çalışma HT7 akupunktur noktasındaki EA'nın, CHF'de kalp fonksiyonu ve NTS nöronal aktivitesi üzerindeki etkilerini incelemeyi ve EA tedavisiyle ilişkili NTS içindeki moleküler değişiklikleri karakterize etmeyi amaçlamıştır. İn vivo elektrofizyolojiyi kantitatif proteomik, biyoinformatik analiz ve moleküler doğrulama ile entegre ederek bu çalışma, CHF'de EA aracılı merkezi nöromodülasyonla ilişkili aday moleküler hedefleri belirlemeyi hedeflemiştir.
Protokol
Omurgalı hayvanları içeren tüm yöntemler, AHUCM-rats-2024145 onay numarası ile Anhui Çin Tıbbı Üniversitesi Hayvan Bakım ve Kullanım Komitesi ile uyumlu olarak gerçekleştirilmiştir. Kullanılan reaktifler ve ekipmanlar Malzemeler Tablosu'nda listelenmiştir.
Hayvan hazırlığı ve gruplandırma
Tüm deneylerde, 8 haftalık ve 200 ila 250 g ağırlığında, temiz sınıfa ait erkek Sprague-Dawley sıçanlar kullanılmıştır. Hayvanlar, 24 ± 2 °C sıcaklık ve %50–60 bağıl nemde tutulan kontrollü bir ortamda, standart 12 saatlik ışık-karanlık döngüsünde barındırılmıştır. Tüm sıçanların yeme ve suya serbest erişimi sağlanmış ve herhangi bir deneysel işlemden önce 1 haftalık alışma sürecine tabi tutulmuşlardır.
Fonksiyonel ve merkezi sinirsel aktivitenin değerlendirildiği Deney I için, 24 sıçan rastgele altışarlı dört gruba ayrılmıştır: Sham, CHF, EA ve Sham EA grupları (Şekil 1A). Moleküler hedeflerin ve yüksek kapasiteli proteomiğin değerlendirildiği Deney II için ise, 36 sıçan rastgele on ikişarlı üç gruba atanmıştır: Sham, CHF ve EA. Örneklem büyüklükleri, istatistiksel geçerliliği sağlarken hayvan refahı etiğine ve azaltma ilkesine bağlı kalmak amacıyla Kaynak Denklemi Yöntemi baz alınarak belirlenmiştir (Deney I için E değeri = 20; Deney II için E değeri = 33)11. Bu örneklem büyüklüğü stratejisi, kardiyovasküler hastalıklar için EA üzerine yapılan önceki çalışmalarda kullanılan protokollerle tutarlıdır8,12. Post hoc güç analizleri, 0,90'ı aşan istatistiksel gücün bu dağılımın yeterliliğini desteklediğini göstermiştir. Ön fonksiyonel değerlendirmelerin terapötik etkinlik eksikliğine işaret etmesi nedeniyle Sham EA grubu Deney II'den hariç tutulmuştur.
Kronik kalp yetmezliği modelinin oluşturulması
Sıçanlar cerrahi işlemden önce 12 sa boyunca aç bırakılmış ve suya serbest erişimleri sağlanmıştır. Anestezi %3 isoflurane ile indüklemiş ve işlem boyunca %1,5%–2% isoflurane ile sürdürülmüştür. İsoflurane uçucu bir anestezik olduğu için uygun bir gaz tahliye sistemi kullanılmış ve mesleki maruziyeti önlemek amacıyla işlem iyi havalandırılan bir alanda gerçekleştirilmiştir.
Standart ekstremite elektrokardiyogramları (EKG) sürekli olarak kaydedildi. Kalbi açığa çıkarmak için sol torakotomi gerçekleştirildi ve sol anterior descended koroner (LAD) arter, sol atriyal apandisin 2 ila 3 mm altına 7-0 emilmeyen bir sütür kullanılarak kalıcı olarak bağlandı13. Başarılı iskemi, EKG üzerinde en az 0,2 mV'luk bir ST segment yükselmesi saptanarak doğrulandı (Şekil 1B). Enfeksiyonu önlemek ve ağrıyı hafifletmek amacıyla ameliyat sonrası üç ardışık gün boyunca günlük olarak intraperitonal penisilin (200.000 U/mL) ve subkutan karprofen (5 mg/kg) enjeksiyonları uygulandı.
Sham kontrol kohortu için, LAD koroner arter ligasyonu yapılmaksızın, eşleşen anatomik konuma yüzeysel iğne yerleşimini takiben özdeş bir torakotomi prosedürü uygulanmıştır. Özdeş postoperatif bakım ve izleme sağlanmıştır. Ekokardiyografik değerlendirme, cerrahi sonrası 4. haftada gerçekleştirilmiştir. Sol ventrikül ejeksiyon fraksiyonu (LVEF) ≤45%8 olduğunda (Şekil 1C), modelin başarıyla kurulduğu kabul edilmiştir. Bu kriterleri karşılamayan, preoperatif bazal EKG anomalileri gösteren veya erken ölüm yaşayan hayvanlar sistematik olarak dışlanmıştır. Dışlanan hayvanların yerini hemen doldurmak ve tekdüze bir örneklem büyüklüğünü korumak amacıyla, ek sıçanlara özdeş cerrahi protokoller uygulanmıştır.
Elektroakupunktur müdahalesi
Kabul görmüş karşılaştırmalı anatomik protokollere14 uygun olarak, El-Shaoyin Kalp Meridyenindeki bilateral HT7 akupunkturları, transverse wrist crease'in palmar yüzünde, ulnar kenara yakın, flexor carpi ulnaris tendonunun radial çöküntüsünün doğrudan içinde belirlendi. Yerel bölge rutin olarak dezenfekte edildi. İki adet steril tek kullanımlık akupunktur iğnesi (0.25 x 25 mm), her bir HT7 akupunktur bölgesine 2 ila 3 mm hedef derinliğe kadar dik olarak ilerletildi ve tamamen aynı akupunktur bölgesi içinde kalacak şekilde yaklaşık 1 mm aralıkla konumlandırıldı. Video dokümantasyonu için, yerleştirme derinliği, iğne şaftının yerleştirme öncesinde 3 mm pozisyonundan önceden işaretlenmesiyle görsel olarak doğrulandı.
Yerelleştirilmiş bir elektrik devresi oluşturmak için bir iğne EA cihazının katot terminaline, bitişiğindeki iğne ise anot terminaline bağlandı (Şekil 1D). İzofluran anestezisi altında, birbirini takip eden yedi gün boyunca günlük 30 dakika boyunca, ilgili uzuvlarda gözlemlenebilir ancak hafif kas seğirmeleri oluşturacak şekilde kalibre edilmiş 1 mA şiddetinde ve 2 Hz sabit frekansta sürekli bir elektrik dalga formu uygulandı.
Spesifik olmayan somatosensör yanıtları hesaba katmak için sham müdahale kohortuna minimal bir iğneleme protokolü uygulanmıştır15,16. Steril iğneler, elektrik kabloları bağlanmadan veya akım verilmeden, 30 dakikalık anestezik süresine uygun olarak, aynı HT7 bölgelerine 0.5–1 mm derinliğinde yüzeysel olarak yerleştirilmiştir. Bazal Sham ve CHF kontrol grupları, iğneleme veya elektriksel stimülasyon yapılmadan, yedi ardışık gün boyunca günlük aynı izofluran maruziyetine (günlük 30 dakika boyunca %1.5–%2 izofluran) tabi tutulmuştur. Bu prosedür, tüm deneysel kohortlarda anestezik baz hattını standartlaştırmış ve tekrarlayan volatil anestezinin tetikleyebileceği potansiyel nörosupresif veya kardiyoprotektif artefaktlar kontrol altına alınmıştır.
Ekokardiyografi değerlendirmesi ve hayvan ötanazisi
Müdahalenin ardından, sıçanlar indüksiyon için %3 ve idame için %1 isoflurane ile anestezi altına alınmış ve hayvan platformuna sırt üstü pozisyonda sabitlenmiştir. Göğüs kılları bir epilasyon maddesi kullanılarak dikkatlice temizlenmiş ve açığa çıkan cilde homojen bir şekilde akustik kuplaj maddesi uygulanmıştır. Kardiyak fonksiyon, 18 MHz eko transdüser ile donatılmış bir dijital ultrason sistemi kullanılarak değerlendirilmiştir. LVEF ve sol ventrikül fraksiyonel kısalmasını (LVFS) ölçmek için M-mod ekokardiyografi kaydedilmiş ve nihai analiz için 3 teknik tekrardan elde edilen ortalama değer hesaplanmıştır.
Sonraki kan kaybını ve pıhtılaşmayı önlemek ve enzim bağlı immünosorbent analiz (ELISA) için örnek kalitesini sağlamak amacıyla, hayvanlar anestezi altındayken abdominal aortadan kan alındı. Sıçanlar, kalp atışı ve solunum durana kadar %5 izofluran ile sürekli indüksiyon uygulanarak hemen ötanize edildi.
Doku örnekleri daha sonra deneysel tasarıma göre paylaştırıldı. Deney I için, hematoksilin ve eozin (HE)/Masson boyaması için kalp ve c-Fos immunofloresansı için beyin dokusu toplamak amacıyla grup başına 3 sıçan kullanıldı. Geri kalan üç sıçan in vivo elektrofizyoloji için ayrıldı. Deney II için, proteomik analizler amacıyla grup başına altı sıçanın bilateral NTS dokuları çıkarıldı. Geri kalan altı sıçanın dokuları moleküler doğrulama için toplandı: üçü Western blotting ve qPCR için, üçü ise yalnızca qPCR için kullanıldı.
Enzim bağlı immünosorbent assay
Toplanan kan örneklerinin 4 °C'de 10–20 dk boyunca doğal olarak pıhtılaşması sağlandı. Serumun ayrılması için örnekler 4 °C'de 1.000 x g hızda 15 dk boyunca santrifüj edildi ve süpernatanlar toplandı. Analiz hemen gerçekleştirilmediğinde, serum örnekleri ihtiyaç duyulana kadar −80 °C'de saklandı. N-terminal pro-beyin natriüretik peptid (NT-proBNP) ve kardiyak troponin T (cTnT) serum konsantrasyonları, standart talimatlara uygun olarak spesifik ELISA kitleri kullanılarak belirlendi. Absorbans değerleri ölçüldü ve biyobelirteç seviyeleri standart eğrilere göre hesaplandı.
Histolojik ve immünofloresan boyama
Toplanan kalp dokuları, önceden soğutulmuş %0,9 sodyum klorür çözeltisi ile durulandı, apeksin 5 mm üzerinden kesildi ve parafine gömüldü. Doku kesitleri deparafinize edildi ve yeniden hidrate edildi. HE boyaması, 10 dakika hematoksilin uygulamasının ardından 2,5 dakika eozin karşı boyama yapılarak gerçekleştirildi. Masson boyaması, 60 saniye hematoksilin ve 30–60 saniye Masson trikrom uygulanarak gerçekleştirildi. Kesitler %6–8'lik fosforik asitte farklılaştırıldı ve 5 dakika boyunca açık yeşil ile karşı boyandı. Miyokardiyal fibrozisi değerlendirmek için kollajen hacim fraksiyonu (CVF) nicelendirildi.
Toplanan beyin dokuları %4'lük paraformaldehit ile fikse edildi, dereceli sükroz çözeltilerindeydehidre edildi ve 30 µm kalınlığında kesitler alındı. Paraformaldehit toksik ve şüpheli bir karsinojen olduğu için, uygun kişisel koruyucu ekipman giyilmiş halde kimyasal çeker ocak içerisinde çalışıldı. Kesitler, %0,5 Triton X-100 ve %3 sığır serum albümini içeren bir tamponla bloke edildi, ardından c-Fos'a karşı bir primer antikor ile 4 °C'de gece boyunca inkübe edildi. Kesitler daha sonra fosfat tamponlu salin ile yıkandı ve karşılık gelen sekonder antikorlar ile oda sıcaklığında karanlıkta 2 saat boyunca inkübe edildi. Kesitler, 4',6-diamidino-2-phenylindole (DAPI) içeren bir floresans söndürme çözeltisi ile lam üzerine monte edildi ve c-Fos-pozitif nöronların görüntülemesi yapıldı.
In vivo elektrofizyoloji
Sıçanlar, indüksiyon için %3 ve idame için %1 izofluran ile anestezi altına alınmış ve beyin stereotaksik aparatına sabitlenmiştir. Kafa derisi tıraş edilmiş ve dezenfekte edilmiştir. Bregma'yı açığa çıkarmak için orta hat boyunca bir insizyon yapılmış ve dura mater uzaklaştırılmıştır. Bregma'ya göre şu stereotaksik koordinatlar baz alınarak NTS bölgesi üzerine hassas bir kraniyal delik açılmıştır: anteroposterior (AP) ±12.6 mm, mediolateral (ML) ±0.9–2.1 mm ve dorsoventral (DV) ±7.6–8.1 mm.
Elektrofizyolojik kayıtlar tamamlandıktan sonra, elektrot ucunun kesin stereotaksik konumu doğrulandı. Küçük bir elektrolitik lezyon oluşturmak için kayıt elektroduna 10 s boyunca kısa süreli 1 mA doğrudan akım uygulandı. Deney sonrası beyin sapı kesitlere ayrıldı ve lezyon hattının anatomik olarak NTS içinde yer aldığı histolojik olarak onaylandı.
Sekiz kanallı (2 x 4) bir mikroelektrot dizisi implante edildi ve motorlu bir mikromanipülatör kullanılarak 5 µm/s hızla hedef beyin bölgesine yavaşça ilerletildi. Stabil nöral aktivite sağlandığında, 400 s boyunca sürekli kayıtlar alındı. Nöronal spike boşalımlarını (150–8,000 Hz'de filtrelenmiş, örnekleme hızı 40 kHz) ve lokal alan potansiyellerini (LFP; 0.7–400 Hz'de filtrelenmiş, örnekleme hızı 1 kHz) yakalamak için çok kanallı bir veri toplama sistemi kullanıldı.
Tipik yüksek genlikli girişim sinyallerini ve artifaktları dalga formu çapraz korelasyonu aracılığıyla elemek için spike-sorting yazılımı kullanılmıştır. Sonraki nöronal sinyal analizi, nöral analiz yazılımı kullanılarak gerçekleştirilmiştir. Nöronlar, yalnızca spontan ortalama ateşleme hızları >2 Hz olduğunda ve >3:1 oranında stabil bir sinyal-gürültü oranını koruduklarında aktif olarak sınıflandırılmıştır. 2 Hz eşiği, otonomla ilişkili NTS nöronlarının belirlenmiş fizyolojik özelliklerine dayanarak seçilmiştir; bu eşik, ağırlıklı olarak sessiz hücreleri ve düşük frekanslı solunum-ritmik patlamaları etkili bir şekilde dışlayarak, analizin bazal kardiyovasküler düzenlemeyi yöneten tonik olarak aktif nöronlara odaklanmasını sağlamıştır17,18,19,20. Ortalama nöronal ateşleme frekansı ve spike boşalım raster grafikleri bu kriterlere göre oluşturulmuştur. Nöral osilatuvar enerji karakteristiklerini değerlendirmek için 2D LFP enerji spektrogramları ve 3D güç spektral yoğunluğu (PSD) topografyaları oluşturulmuştur.
Kayıt işleminin ardından insizyon sütüre edildi ve sıçanlar anesteziden tamamen uyanana kadar izlendi. İntraperitonal enjeksiyon yoluyla penisilin uygulanırken, üç ardışık gün boyunca günlük olarak karprofen (5 mg/kg, s.c.) verildi.
Veriden bağımsız kazanım kantitatif proteomik analizi
Toplam protein, bir lizis tamponu ile ekstrakte edildi ve bisinkoninik asit yöntemiyle miktar tayini yapıldı. Proteinler denatüre edildi, redüktif alkilasyona tabi tutuldu ve 37 °C'de 2 saat boyunca tripsin ile sindirildi. Elde edilen peptitler C18 kolon kullanılarak tuzdan arındırıldı, 45 °C'de konsantre edildi ve sonraki kütle spektrometrisi analizi için yeniden süspanse edildi.
Peptidler, %96 tampon A (su içinde %0,1 formik asit) ile dengelenmiş bir tuzak kolona (5 µm C18, 300 µm x 5 mm) yüklendi. Peptidler, tampon A ve tampon B'nin (%80 asetonitril içinde %0,1 formik asit) titizlikle optimize edilmiş bir gradyanı kullanılarak, yüksek verimli bir ultra yüksek performanslı sıvı kromatografi analitik kolonunda ayrıştırıldı.
Kütle spektrometrisi, 1,9 kV'luk bir elektrospray voltajı ile pozitif iyon veri-bağımsız kazanım (DIA) modunda gerçekleştirilmiştir. Tam kütle spektrometre taramaları, 240.000 çözünürlükte, 500% otomatik kazanç kontrolü (AGC) hedefi ve 3 ms maksimum enjeksiyon süresi ile 380 ila 980 m/z kütle aralığında elde edilmiştir. MS/MS spektrumları 80.000 çözünürlükte (AGC hedefi: 500%; maksimum enjeksiyon süresi: 3 ms; RF lens genliği: 40%) elde edilmiştir. Prekürsör iyonlar, 0,6 s'lik tanımlanmış bir döngü süresi altında, 2 Th'lık bir izolasyon penceresi ve 25% normalize edilmiş çarpışma enerjisi ile yüksek enerjili çarpışmalı ayrışma kullanılarak fragmente edilmiştir.
Ham kütle spektrometri verileri DIA-NN yazılımı kullanılarak işlenmiştir. Dahili derin öğrenme algoritması kullanılarak bir spektral kütüphane oluşturulmuş ve trypsin sindirimi ile en fazla 2 kaçırılmış kesim (missed cleavage) parametreleri ile Rattus norvegicus referans proteom veri tabanına karşı kantifikasyon için "match-between-runs" fonksiyonu uygulanmıştır. Nihai kantitatif protein matrisi, hem öncül-iyon hem de protein düzeylerinde %1'lik katı bir yanlış keşif oranı (false discovery rate) eşiği kullanılarak filtrelenmiştir.
Biyoinformatik analizi ve hub gen madenciliği
Biyoenformatik analizler ve veri görselleştirmeleri, öncelikle özelleşmiş ağ görselleştirme yazılımlarıyla birlikte R programlama ortamı kullanılarak gerçekleştirilmiştir. Metodolojik şeffaflığı ve tekrarlanabilirliği sağlamak amacıyla, bu analitik süreçler boyunca kullanılan tüm özel R betikleri Ek Dosya 1'de sunulmuştur. İlk veri kalite kontrolü ve genel dağılım değerlendirmeleri ropls paketi kullanılarak yapılmıştır. Protein tanımlama/nicelik belirleme genel istatistikleri derlenmiş; üç grup arasında kısmi en küçük kareler ayrım analizi (PLS-DA) uygulanmış; ikili karşılaştırmalar için ortogonal kısmi en küçük kareler ayrım analizi (OPLS-DA) gerçekleştirilmiş ve pheatmap paketi kullanılarak örnek korelasyon ısı haritaları oluşturulmuştur.
Temel diferansiyel olarak eksprese edilen proteinler; p-değeri <0,05, kat değişimi (fold change) >1,2 ve projeksiyonda değişken önemi (VIP) skoru >1,0 eşik değerleri kullanılarak taranmıştır. Çift yanardağ grafikleri (double volcano plots) ggplot2 paketi kullanılarak oluşturulmuş, kesişimler ggVennDiagram paketi kullanılarak belirlenmiş ve kesişen proteinleri görselleştirmek için pheatmap paketi kullanılarak hiyerarşik kümeleme ısı haritaları çizilmiştir. Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) zenginleştirme analizleri, Enrichr veri tabanına dayalı olarak enrichR paketi kullanılarak, yukarı regüle olan ve aşağı regüle olan proteinler için ayrı ayrı gerçekleştirilmiştir.
Protein-protein etkileşim ağını oluşturmak için tüm diferansiyel eksprese proteinler, 0.4 güven eşiği ile STRING veri tabanına eşlendi. Etkileşim verileri ağ görselleştirme yazılımına aktarıldı. Topolojik skorları hesaplamak için cytoHubba eklentisi uygulandı ve düğüm renk derinliğine göre en yüksek skorlu ilk 18 gen çıkarıldı. 18 hub adayı yol zenginleştirme analizine tabi tutuldu ve Genotype-Tissue Expression (GTEx) veri tabanı kullanılarak insan dokularındaki ekspresyon seviyelerini değerlendirmek üzere en belirgin ilk 10 protein seçildi. İnsan beyin ekspresyon seviyeleri ve ağ topolojik skorlarına göre en kritik hub gen belirlendi. Spesifik hub gen ile ilişkili alt akış transkripsiyon faktörlerini ve histon modifikasyonlarını tahmin etmek için Cistrome Data Browser kullanıldı.
Western blot ve kantitatif polimeraz zincir reaksiyonu
Toplam protein, fenilmetansülfonil florür lizis tamponu, PMSF ve fosfataz inhibitörleri içeren bir lizat karışımı kullanılarak NTS dokularından ekstrakte edildi. Örnekler, ultrasonik bir hücre parçalayıcı ile homojenize edildi ve süpernatantları toplamak için 4 °C'de 20 dk boyunca 13,800 x g hızında santrifüjle döndürüldü. Protein konsantrasyonları, bisinkoninik asit protein analiz kiti kullanılarak belirlendi. Her örnekten toplam 20 µg protein, %10 sodyum dodekil sülfat-poliakrilamid jel elektroforezi ile ayrıldı ve ardından poliviniliden florür membranlara aktarıldı.
Membranlar, oda sıcaklığında 1 saat boyunca %5 yağsız süt içeren Tris-tamponlu salin Tween (TBST) ile bloke edilmiş ve housekeeping protein olarak β-actin ile Yin Yang 1 (YY1) proteinini hedefleyen spesifik primer antikorlarla 4 °C'de gece boyunca inkübe edilmiştir. Membranlar TBST ile üç kez 5 dakika boyunca yıkanmış ve oda sıcaklığında 1,5 saat boyunca horseradish peroksidaz-konjuge sekonder antikor ile inkübe edilmiştir. Hedef bantlar, geliştirilmiş kemilüminesans kiti kullanılarak görselleştirilmiş, bir görüntüleme sistemi ile yakalanmış ve β-actin'e göre nicelendirilmiştir.
Toplam RNA, bir RNA ekstraksiyon reaktifi kullanılarak NTS dokularından ekstrakte edildi. RNA konsantrasyonu ve saflığı bir spektrofotometre kullanılarak ölçüldü ve bir ters transkripsiyon kiti kullanılarak birinci zincir cDNA sentezlendi. Kantitatif gerçek zamanlı polimeraz zincir reaksiyonu (PCR), bir gerçek zamanlı PCR sisteminde SYBR Green PCR kiti kullanılarak gerçekleştirildi. Amplifikasyon için kullanılan spesifik primer dizileri ve ilgili NCBI Referans Sekans erişim numaraları şunlardı: YY1 (NM_001002271.1), ileri 5'-AGCGTTCGTTGAGAGCTCAA-3' ve geri 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), ileri 5'-TGTGATGACTGTGACCGTGG-3' ve geri 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), ileri 5'-GGTGTGACATTACGGAGCCA-3' ve geri 5'-TCCAGCAGCATCTGTTCCAG-3'; ve gliseraldehit-3-fosfat dehidrogenaz (GAPDH) (NM_017008.4), ileri 5'-GGCACAGTCAAGGCTGAGAATG-3' ve geri 5'-ATGGTGGTGAAGACGCCAGTA-3'. Göreceli mRNA ekspresyon seviyeleri 2-ΔΔCt yöntemi kullanılarak hesaplandı ve internal referans gen GAPDH'ye göre normalize edildi.
İstatistiksel analiz
Tüm deneysel veriler istatistiksel yazılımlar kullanılarak analiz edildi ve ortalama ± standart sapma (SD) olarak sunuldu. Normallik Shapiro-Wilk testi ile değerlendirildi ve varyans homojenliği Brown-Forsythe testi kullanılarak analiz edildi.
İki bağımsız grup arasındaki karşılaştırmalar için, normallik kriterlerini karşılayan verilerde Student's t-testi veya eşli t-testi kullanılmıştır. Normallik varsayımlarını karşılamayan veriler, Mann-Whitney U testi veya Wilcoxon işaretli sıralama testi kullanılarak analiz edilmiştir. Birden fazla grup arasındaki karşılaştırmalar için, normallik ve homojenlik varsayımları karşılandığında, tek yönlü varyans analizi ve ardından Holm-Sidak post hoc testi uygulanmıştır. Bu varsayımların karşılanmadığı durumlarda ise Kruskal-Wallis H testi ve ardından Dunn post hoc testi kullanılmıştır.
Korelasyonlar, R'daki Hmisc paketi kullanılarak hesaplanan Pearson korelasyon katsayısı ile değerlendirildi. Çoklu testlere bağlı olarak artan tip I hata oranını kontrol etmek amacıyla, ilgili p-değerleri stats paketi aracılığıyla Benjamini-Hochberg yanlış keşif oranı yöntemi kullanılarak düzeltildi. Genel istatistiksel anlamlılık düzeyi p <0.05 olarak belirlendi.
Sonuçlar
Elektroakupunktur, kronik kalp yetmezliği olan sıçanlarda kalp fonksiyonlarını iyileştirir ve miyokardiyal hasarı azaltır
EA'nın CHF üzerindeki etkilerini değerlendirmek için, LAD koroner arter ligasyonu aracılığıyla sıçır modeli oluşturulmuş, ardından spesifik EA veya Sham EA müdahaleleri uygulanmıştır. Ekokardiyografi, biyokimyasal analizler ve histolojik boyama dahil olmak üzere sistematik değerlendirmeler yapılmıştır (Şekil 2A). Fonksiyonel olarak, CHF grubu ventrikül dilatasyonu ve kontraktilite bozulması göstermiştir. EA tedavisi, CHF sıçanlarında gözlenen LVEF ve LVFS azalmalarını iyileştirirken, Sham EA grubu CHF grubuyla karşılaştırılabilir kalp fonksiyon seviyeleri sergilemiştir (Şekil 2B ve Şekil 2C).
Ayrıca, EA serum NT-proBNP ve cTnT seviyelerini düşürerek kardiyak yükün azaldığını ve miyokardiyal hasarın hafifletildiğini göstermiştir. Buna karşın, Sham EA grubu, CHF grubu ile benzer biyokimyasal parametreler sergilemiştir (Şekil 2E,F). Histolojik analiz, CHF grubunda miyokardiyal yapısal hasar ve fibrozis olduğunu ortaya koymuştur. EA tedavisi miyokardiyal mimariyi iyileştirmiş ve CVF'yi azaltmışken, Sham EA grubu CHF grubuna benzer patolojik değişiklikleri ve CVF seviyelerini korumuştur (Şekil 2D). Genel olarak EA, CHF'ye karşı kardiyoprotektif etkiler göstermiş, Sham EA müdahalesi ise benzer terapötik sonuçlar üretmemiştir.
Elektroadakupunktur, kronik kalp yetmezliği olan sıçanların nucleus tractus solitariusundaki nöronları aktive eder
NTS'nin EA tedavisine verilen merkezi yanıtta rol oynayıp oynamadığını belirlemek için, nöral eksitasyon belirteci olan c-Fos boyaması yapılarak nöronal aktivasyon değerlendirildi. İmmünofloresan görüntüleme (Şekil 3A) ve kantitatif hücre sayımları (Şekil 3B), NTS'deki c-Fos pozitif nöron sayısının Sham grubuna kıyasla CHF grubunda daha düşük olduğunu ortaya koydu. Bununla birlikte, EA tedavisi c-Fos ekspresyonunu Sham baseline seviyeleriyle karşılaştırılabilir düzeylere yükseltti. Periferik fonksiyonel sonuçlarla paralel olarak, Sham EA grubu, CHF grubu ile benzer c-Fos ekspresyon seviyeleri sergiledi.
Bu NTS nöronlarının fonksiyonel durumunu değerlendirmek için in vivo elektrofizyolojik sinyaller kaydedilmiştir. Spike boşalma izleri (Şekil 3C) ve kantitatif ortalama ateşleme hızı (Şekil 3D), histolojik bulgularla uyumluydu. NTS nöronlarının spontan ateşleme frekansı, CHF koşulları altında azalmıştır. Buna karşılık, EA müdahalesi nöronal ateşleme hızını artırırken, Sham EA prosedürü böyle bir elektrofizyolojik değişiklik oluşturmamıştır.
Bu nöral aktivasyon örüntüsü, lokal alan potansiyeli analizi ile desteklenmiştir. 2D LFP renk ölçekli spektrogramlarda ve 3D güç spektral yoğunluk haritalarında (Şekil 3E) gösterildiği üzere, NTS içindeki nöral osilatuar enerji CHF durumunda azalmıştır. EA tedavisi sonrasında, nöral frekans spektrumu genelinde güç yoğunluğunda bir artış gözlemlenmiş olup, bu durum Sham EA kohortunda görülmeyen bir ağ aktivasyonuna işaret etmektedir.
Bu merkezi aktivasyonun fizyolojik ilişkisini incelemek için, periferik kardiyak metrikler ile merkezi NTS nöronal aktivitesi entegre edilerek Pearson korelasyon analizi gerçekleştirilmiştir (Şekil 3F). Analiz, NTS içindeki ortalama ateşleme hızının ve c-Fos ekspresyonunun LVEF ile pozitif korelasyon gösterdiğini kanıtlamıştır. Aksine, bu merkezi nöral aktivite göstergeleri, serum kalp yetmezliği belirteci NT-proBNP ile negatif bir korelasyon sergilemiştir. Bu korelasyonlar, EA tarafından modüle edilen NTS'nin nöral aktivasyonunun, periferik kardiyoprotektif etkinliği ile bağlantılı olduğunu göstermektedir.
Elektroakupunktur, nucleus tractus solitarius'taki global proteomik profili değiştirir
Önceki fonksiyonel değerlendirmeler sırasında Sham EA grubunda terapötik etkinlik gözlemlenmemesi nedeniyle, proteomik aşamasına yalnızca Sham, CHF ve EA grupları dahil edilmiştir. Doku toplamadan önce, EA'nın terapötik etkilerini değerlendirmek amacıyla grup başına 12 sıçan ekokardiyografik değerlendirmeye tabi tutulmuş ve bu sonuçlar Ek Şekil 1A'da sunulmuştur. Bu değerlendirmenin ardından, her gruptan 6 biyolojik replikat kütle spektrometrisi tabanlı kantitatif proteomik analize tabi tutulmuştur.
Proteomik verilerin güvenilirliğini ve genel dağılımını değerlendirmek için kalite kontrol ve çok değişkenli analizler gerçekleştirilmiştir. Tanımlanan toplam protein sayısı Sham grubunda 5.914, CHF grubunda 5.980 ve EA grubunda 5.836 olarak belirlenmiş olup, bu durum üç deneysel grup arasında karşılaştırılabilir protein tespitine işaret etmektedir (Şekil 4A ve Ek Tablo 1). Kısmi en küçük kareler diskriminant analizi; Sham, CHF ve EA grupları arasında net bir ayrım olduğunu göstermiş ve hastalık durumu ile EA müdahalesiyle ilişkili belirgin küresel proteomik profiller olduğunu ortaya koymuştur (Şekil 4B).
İkili ortogonal kısmi en küçük kareler diskriminant analizi, Sham ve CHF grupları (Şekil 4C) ile CHF ve EA grupları (Şekil 4D) arasındaki ayrımı daha da belirginleştirmiştir. İlgili permütasyon testleri, söz konusu modellerin güvenilirliğini desteklemiştir. Ayrıca, Pearson korelasyon ısı haritası, proteomik örnekler arasında yüksek grup içi korelasyonlar ve belirgin gruplar arası modeller göstererek biyolojik tekrarların tekrarlanabilirliğini desteklemiştir (Şekil 4E). Toplu olarak, bu kalite kontrol ve çok değişkenli analizler, proteomik veri setinin, farklı şekilde eksprese edilen proteinlerin sonraki tanımlamaları ve biyoinformatik analizleri için yeterince sağlam olduğunu göstermiştir.
Elektroakupunktur, nucleus tractus solitarius'taki temel farklı şekilde ifade edilen proteinleri ve sinyal yolaklarını modüle eder
EA'nın moleküler hedeflerini araştırmak için protein değişiklikleri analiz edilmiştir. Volkan grafikleri, Sham'a karşı CHF ve CHF'ye karşı EA karşılaştırmalarında yukarı regüle edilen ve aşağı regüle edilen proteinlerin dağılımını göstermiştir (Şekil 5A, Ek Tablo 2 ve Ek Tablo 3). Terapötik hedefleri belirlemek için bir kesişim analizi gerçekleştirilmiştir. Venn diyagramlarında gösterildiği üzere, CHF grubunda yukarı regüle olan ancak EA tedavisi sonrası aşağı regüle olan 58 protein ile CHF grubunda aşağı regüle olan ve EA müdahalesiyle yukarı regüle olan 27 protein belirlenmiştir (Şekil 5B ve Ek Tablo 4). Bu tarama sonucunda toplam 85 temel diferansiyel ekspresyon gösteren protein elde edilmiştir. Hiyerarşik kümeleme ısı haritası, EA müdahalesinin bu 85 proteinin anormal ekspresyon modellerini modüle ederek profillerini Sham baz hattına doğru kaydırdığını göstermiştir (Şekil 5C).
Bu temel hedeflerin biyolojik fonksiyonlarını belirlemek için, iki farklı protein alt kümesi için ayrı ayrı GO ve KEGG zenginleştirme analizleri gerçekleştirilmiştir. EA tarafından aşağı regüle edilen 58 proteinlik alt küme için GO kabarcık grafiği; hücre dışı matris organizasyonu ve hücre dışı yapı organizasyonu dahil olmak üzere biyolojik süreçlerin yanı sıra, dış kapsülleyici yapı ve kolajen trimer gibi hücresel bileşenlerin ve kolajen bağlanması ile glutamat reseptör bağlanması dahil olmak üzere moleküler fonksiyonların önemli ölçüde zenginleştiğini göstermiştir (Şekil 5D ve Ek Tablo 5). Kiriş ve Sankey diyagramları kullanılarak görselleştirilen sonraki KEGG yolak analizi, bu 58 proteinin protein sindirimi ve emilimi, kas hücrelerindeki hücre iskeleti ve TGF-β sinyal yolu dahil olmak üzere kaskadlara katıldığını ortaya koymuştur (Şekil 5E ve Ek Tablo 6). Bu topolojik görselleştirmeler, COL3A1, COL14A1, MYH11, DCN ve DPF2 dahil olmak üzere belirli proteinleri, birden fazla patolojik yolağı birbirine bağlayan belirgin düğümler olarak vurgulamıştır.
Buna karşılık, EA müdahalesi ile yukarı regüle edilen 27 proteinlik alt küme için fonksiyonel anotasyon gerçekleştirilmiştir. GO zenginleştirme analizi, hücre büyümesinin düzenlenmesi ve DNA şablonlu transkripsiyon elongasyonunun pozitif düzenlenmesi gibi biyolojik süreçlerin yanı sıra, kalsiyuma bağımlı protein bağlanması ve tetrapirol bağlanması gibi moleküler fonksiyonların yer aldığını göstermiştir (Şekil 5F ve Ek Tablo 7). İlgili KEGG kord ve Sankey diyagramları, bu proteinleri ATP-bağımlı kromatin yeniden şekillenmesi ve polikomb baskılayıcı kompleks dahil olmak üzere kritik yolaklarla eşleştirmiştir (Şekil 5G ve Ek Tablo 8). Özellikle, bu ağ haritalaması; YY1, E2F2 ve ENTPD5 gibi, bu merkezi sinyal ağları arasında köprü kuran anahtar proteinleri belirlemiştir. Bu kapsamlı fonksiyonel katmanlandırma, sonraki temel hedef doğrulaması için yapısal temeli oluşturmuştur.
Ağ topolojisi ve ekspresyon profilleme, YY1'i elektroakupunktur müdahalesinin etkileriyle ilişkili bir aday hedef olarak tanımlar
85 diferansiyel eksprese edilen protein arasından hub geni belirlemek için bir protein-protein etkileşim ağı oluşturulmuştur. Topolojik analiz, yüksek bağlantı skorlarına sahip 18 düğüm belirlemiştir (Şekil 6A ve Ek Tablo 9). Ardından, özellikle bu 18 hub protein için KEGG yolak analizi gerçekleştirilmiştir. İlgili kord ve Sankey diyagramları; bu hublar ile ATP bağımlı kromatin yeniden düzenleme, polikomb baskılayıcı kompleks ve TGF-β sinyal yolu dahil olmak üzere zenginleşmiş sinyal kaskadları arasındaki karmaşık ilişkileri haritalandırmıştır (Şekil 6A ve Ek Tablo 10). Bu fonksiyonel profillemeye dayanarak, daha ileri tarama için en belirgin şekilde zenginleşmiş ilk 10 protein seçilmiştir. EA'nın terapötik hedefi merkezi sinir sisteminde yer aldığından, bu 10 aday GTEx insan dokusu ekspresyon veritabanı kullanılarak değerlendirilmiştir (Şekil 6B ve Ek Şekil 1B–J). Sonuçlar, beyin dokularında yalnızca YY1 (Şekil 6B), DMAP1 (Ek Şekil 1C) ve DPF2'nin (Ek Şekil 1D) eksprese edildiğini göstermiştir.
EA'nın yüksek düzeyde yanıt veren aday hedefini izole etmek için, NTS dokularının kullanıldığı in vivo moleküler deneyler gerçekleştirilmiştir. Beyinle zenginleşmiş 3 adayın transkripsiyonel yanıt verebilirliğini değerlendirmek için kantitatif gerçek zamanlı PCR kullanılmıştır. YY1'in mRNA ekspresyonu CHF koşullarında azalmış ve EA tedavisi sonrası artmışken, DPF2 ve DMAP1'in mRNA ekspresyon seviyeleri deneysel gruplar arasında istatistiksel olarak anlamlı bir değişiklik göstermemiştir (Şekil 6C). Bu transkripsiyonel tarama, DPF2 ve DMAP1'i daha ileri doğrulama aşamalarının dışında bırakmış ve YY1'i birincil yanıt veren aday olarak desteklemiştir. Ardından yapılan Western blot analizi, YY1 protein seviyelerinin Sham baz çizgisine kıyasla CHF grubunda azaldığını, EA müdahalesinin ise bu eğilimi tersine çevirerek YY1 protein ekspresyonunu artırdığını göstermiştir (Şekil 6D ve Şekil 6E). Bu deneysel sonuçlar, EA'nın NTS içerisinde YY1 ekspresyonunu yukarıye düzenlediğini göstermektedir.
YY1 ekspresyonunu yöneten upstream düzenleyici mekanizmaları araştırmak için, bununla ilişkili histon modifikasyonları ve transkripsiyon faktörleri analiz edilmiştir. Bu bulguların yalnızca Cistrome Data Browser'dan elde edilen hesaplamalı biyoinformatik öngörülere dayandığını ve doğrudan deneysel ChIP-seq doğrulamasını temsil etmediğini belirtmek önemlidir. Epigenetik öngörüler; H3K27ac, H3K27me3 ve H3K4me3 dahil olmak üzere, YY1 lokusu için yüksek düzenleyici potansiyel skorlarına sahip olan histon modifikasyonlarını öne çıkarmıştır (Şekil 6F). Eş zamanlı olarak, düzenleyici potansiyel skorlaması; CDK9, PRDM1 ve ELL2 gibi transkripsiyon faktörlerini YY1'in upstream düzenleyicileri olarak tanımlamıştır (Şekil 6G). Bu biyoinformatik öngörüler, NTS'de YY1 ekspresyonunu kontrol eden potansiyel epigenetik ve transkripsiyonel ağları ana hatlarıyla belirtmektedir.
Özetle, sunulan veriler, EA müdahalesinin CHF farelerinde sistemik kalp fonksiyonlarını etkili bir şekilde iyileştirdiğini ve miyokard hasarını hafiflettiğini göstermektedir. Bu periferik kardiyoprotektif etkiler, merkezi düzeyde NTS içindeki nöronal ateşleme aktivitesinin ve nöral osilatuar enerjinin geri kazanımıyla birlikte seyretmektedir. Ayrıca, kantitatif proteomik tarama 85 temel diferansiyel eksprese protein tanımlamış ve transkripsiyon faktörü YY1'i oldukça duyarlı bir aday hedef olarak öne çıkarmıştır. Toplu olarak bu bulgular, EA'nın CHF'ye karşı terapötik etkinliğinin NTS nöral fonksiyonunun geri kazanımı ile yakından ilişkili olduğunu ve YY1'in yukarı regülasyonunun bu merkezi nörobiyolojik sürece dahil olabileceğini göstermektedir.
Veri Kullanılabilirliği
Bu çalışmanın bulgularını desteklemek için üretilen ve analiz edilen tüm veriler, makalede ve makalenin Ek Dosya 1'inde yer almaktadır. Kamuya açık veri erişilebilirliği gerekliliğine uymak amacıyla, bu araştırmanın temelini oluşturan tüm mevcut ham veriler Zenodo kamu deposuna aktarılmış olup şu bağlantı üzerinden ücretsiz olarak erişilebilir durumdadır: https://doi.org/10.5281/zenodo.22030720. Ek destekleyici veriler, makul talep üzerine sorumlu yazarlardan temin edilebilir.
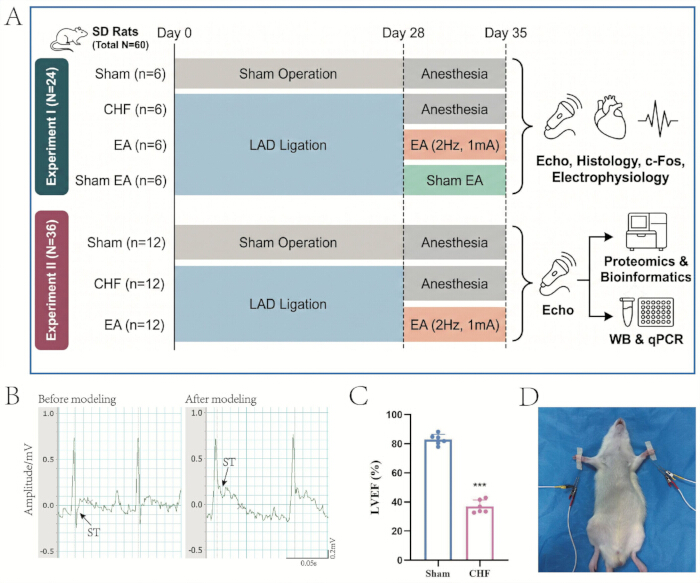
Şekil 1: Deneysel tasarım, kronik kalp yetmezliği sıçan modelinin oluşturulması ve elektroakupunktur müdahalesi. (A) İki bağımsız deneysel seri için zaman çizelgesi ve grup dağılımını içeren genel deneysel akış şeması. (B) LAD koroner arter ligasyonu öncesi ve sonrası temsilci elektrokardiyogram kayıtları; oklar, miyokardiyal iskemiyi doğrulayan ST-segment yükselmesini göstermektedir. (C) Başarılı modellemeyi doğrulamak için cerrahiden 4 hafta sonra yapılan LVEF nicel analizi (biyolojik tekrarlar n = 6, ortalama ± SD). ***p < 0.001, Sham grubuyla karşılaştırıldığında. (D) Bilateral HT7 akupunktur noktalarına uygulanan EA müdahalesi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
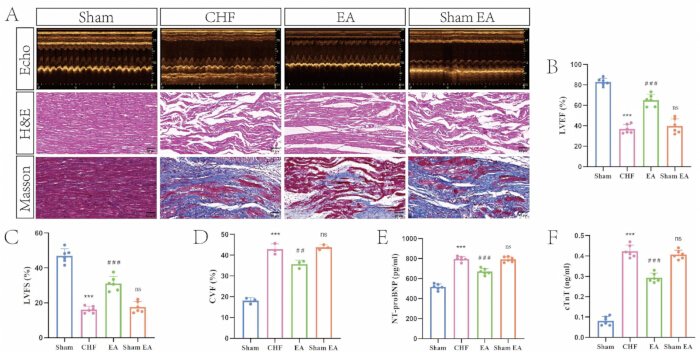
Şekil 2: Elektroakupunktur, kronik kalp yetmezliği olan sıçanlarda kardiyak fonksiyonları iyileştirir ve miyokardiyal hasarı azaltır. (A) 4 deneysel grup boyunca miyokardiyal dokuların hematoksilin-eosin ve Masson trikrom boyama görüntülerinin yanı sıra temsili M-mod ekokardiyogramlar (ölçek çubuğu = 50 µm). (B) Gruplar arasında LVEF'nin kantitatif analizi (biyolojik tekrarlar n = 6, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; ###p < 0.001 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. (C) Gruplar arasında LVFS'nin kantitatif analizi (biyolojik tekrarlar n = 6, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; ###p < 0.001 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. (D) Gruplar arasında CVF'nin kantitatif analizi (biyolojik tekrarlar n = 3, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; ##p < 0.01 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. (E) Gruplar arasında serum NT-proBNP seviyelerinin kantitatif analizi (biyolojik tekrarlar n = 6, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; ###p < 0.001 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. (F) Gruplar arasında serum cTnT seviyelerinin kantitatif analizi (biyolojik tekrarlar n = 6, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; ###p < 0.001 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
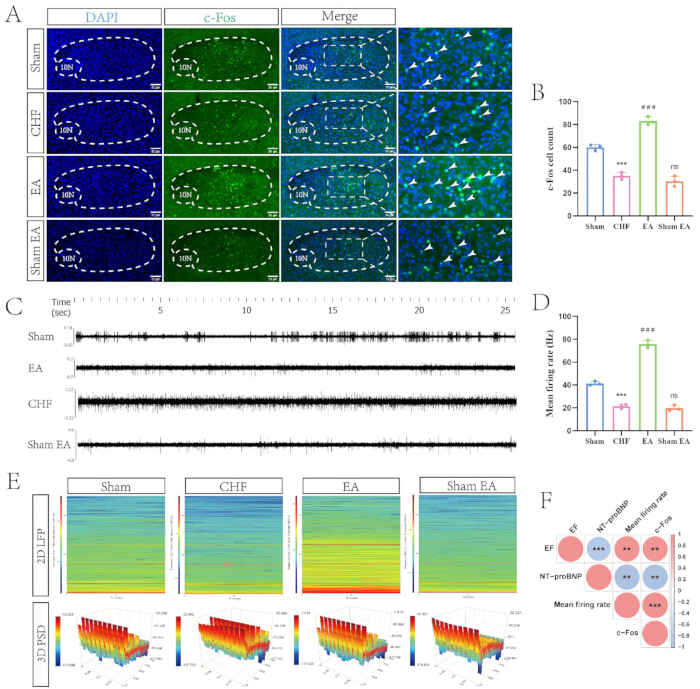
Şekil 3: Elektroakupunktur, kronik kalp yetmezliği olan sıçanlarda nucleus tractus solitarius'taki nöronal aktiviteyi geri kazandırır. (A) Gruplar genelinde NTS'deki c-Fos ekspresyonunun temsili immünofloresan görüntüleri. Çekirdekler DAPI ile karşı boyanmıştır ve c-Fos pozitif hücreler yeşil boyanmıştır. Kesikli çizgiler anatomik bölgeyi belirler ve beyaz ok uçları temsili c-Fos pozitif nöronları gösterir (ölçek çubuğu = 30 µm). (B) Gruplar genelinde c-Fos pozitif hücre sayılarının kantitatif analizi (biyolojik tekrarlar n = 3, ortalama ± SD). ***p < 0.001 Sham grubuna göre; ###p < 0.001 CHF grubuna göre; ns, CHF grubuna göre anlamlı değil. (C) Gruplar genelinde NTS'nin temsili in vivo elektrofizyolojik spike boşalma izleri. (D) Gruplar genelinde ortalama nöronal ateşleme hızının kantitatif analizi (biyolojik tekrarlar n = 3, ortalama ± SD). ***p < 0.001 Sham grubuna göre; ###p < 0.001 CHF grubuna göre; ns, CHF grubuna göre anlamlı değil. (E) NTS içindeki nöral osilatuar enerjiyi gösteren temsili 2D lokal alan potansiyeli spektrogramları ve 3D güç spektral yoğunluk topografileri. (F) Periferik kardiyovasküler fenotipler ile santral nöral aktivite parametreleri arasındaki ilişkileri değerlendiren korelasyon matrisi. Kırmızı ve mavi daireler sırasıyla pozitif ve negatif korelasyonları gösterir. **p < 0.01; ***p < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
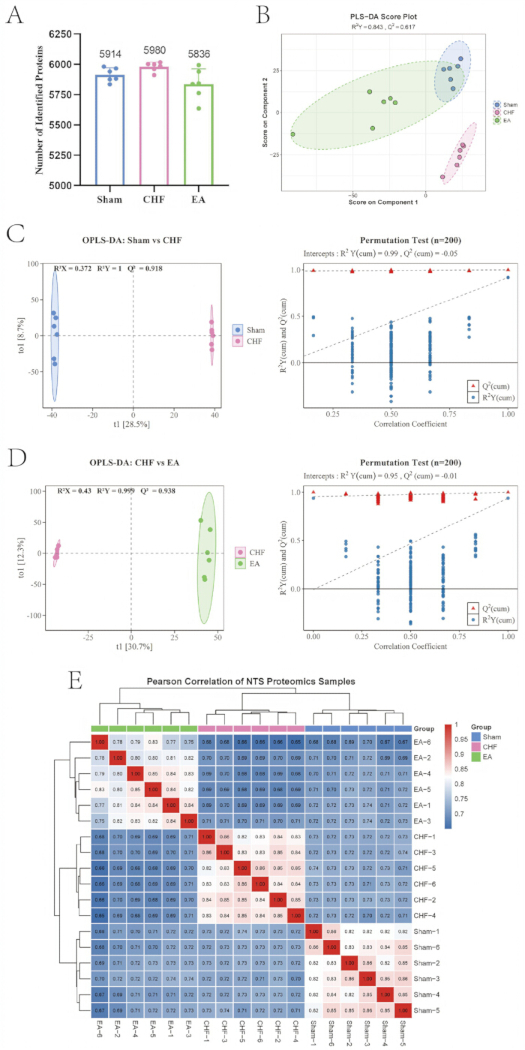
Şekil 4: Nucleus tractus solitarius'taki proteomik profillerin kalite kontrolü ve çok değişkenli istatistiksel değerlendirmesi. (A) 3 deneysel grup genelinde tanımlanan proteinlerin kantitatif genel görünümü (biyolojik tekrarlar n = 6). (B) Gruplar arasındaki genel uzaysal dağılımı ve ayrımı gösteren kısmi en küçük kareler ayrım analizi skor grafiği. (C) Sham ile CHF karşılaştırması için model güvenilirliğini doğrulayan ortogonal kısmi en küçük kareler ayrım analizi skor grafiği ve ilgili permütasyon testi (200 permütasyon). (D) CHF ile EA karşılaştırması için model güvenilirliğini doğrulayan ortogonal kısmi en küçük kareler ayrım analizi skor grafiği ve ilgili permütasyon testi (200 permütasyon). (E) Tüm proteomik örnekler genelinde grup içi tekrarlanabilirliği ve gruplar arası varyansı değerlendiren Pearson korelasyon katsayılarının hiyerarşik kümeleme ısı haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
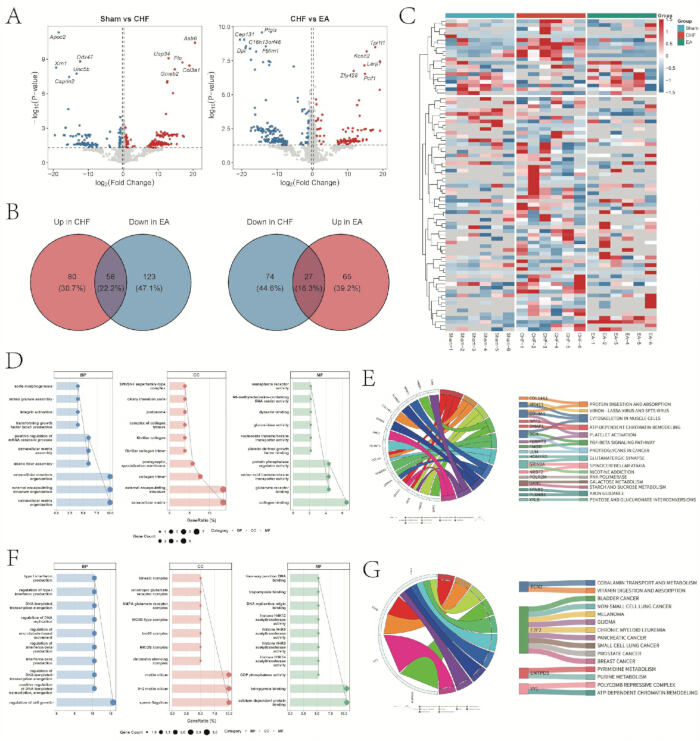
Şekil 5: Nucleus tractus solitarius'ta elektroakupunktur ile modüle edilen temel diferansiyel eksprese proteinlerin tanımlanması ve fonksiyonel zenginleştirme analizi. (A) Sham ile CHF ve CHF ile EA karşılaştırmalarında yukarı regüle ve aşağı regüle proteinlerin dağılımını gösteren volkan grafikleri. (B) EA müdahalesi sonrası aşağı regüle ve yukarı regüle temel proteinleri belirlemek için kesişim analizini haritalandıran Venn diyagramları. (C) Temel diferansiyel eksprese proteinlerin ekspresyon profillerine ait hiyerarşik kümeleme ısı haritası. (D) Aşağı regüle protein alt kümesi için zenginleştirilmiş biyolojik süreçleri, hücresel bileşenleri ve moleküler fonksiyonları detaylandıran GO baloncuk grafikleri. (E) Aşağı regüle proteinler tarafından zenginleştirilen sinyal yolaklarını haritalandıran KEGG koro ve Sankey diyagramları. (F) Yukarı regüle protein alt kümesi için zenginleştirilmiş biyolojik süreçleri, hücresel bileşenleri ve moleküler fonksiyonları detaylandıran GO baloncuk grafikleri. (G) Yukarı regüle proteinler tarafından zenginleştirilen sinyal yolaklarını haritalandıran KEGG koro ve Sankey diyagramları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
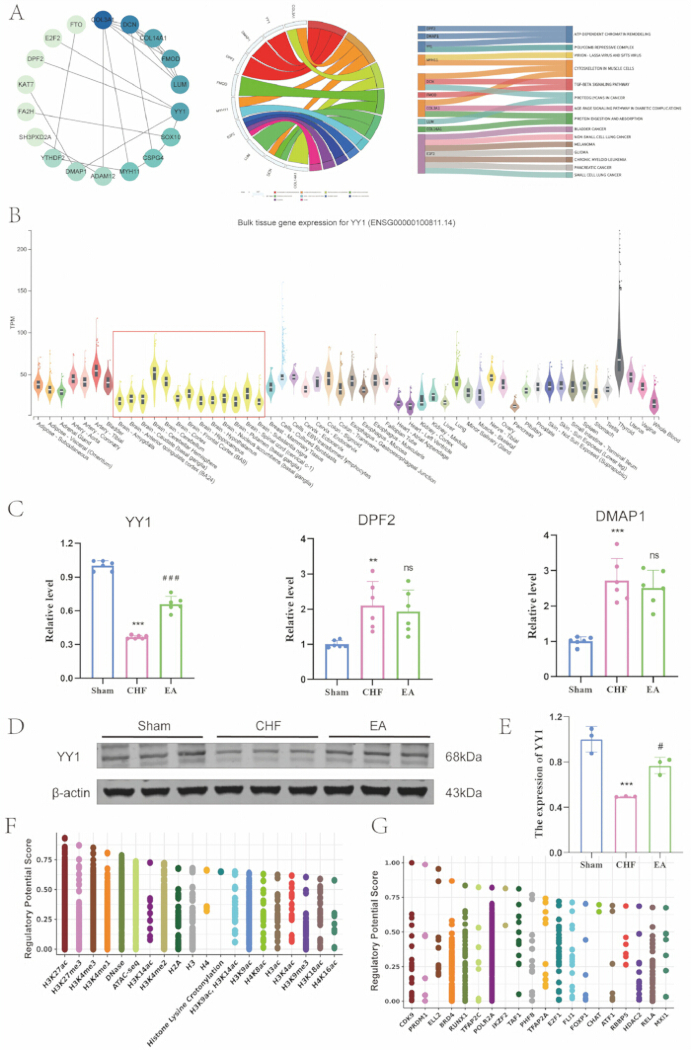
Şekil 6: Ağ topolojisi, doku ekspresyon profili ve moleküler doğrulama, YY1'in elektroakupunktur ile ilişkili bir aday hedef olduğunu belirler. (A) Belirlenen hub proteinlerin protein-protein etkileşim ağı, akor diyagramı ve Sankey diyagramı. (B) GTEx veritabanından türetilen YY1'in insan doku ekspresyon profili; kırmızı kutu beyin dokularını vurgulamaktadır. (C) Gruplar genelinde NTS'deki YY1, DPF2 ve DMAP1 mRNA ekspresyonlarının kantitatif analizi (biyolojik tekrarlar n = 6, ortalama ± SD). **p < 0.01, ***p < 0.001 Sham grubuna kıyasla; ###p < 0.001 CHF grubuna kıyasla; ns, CHF grubuna kıyasla anlamlı değil. (D) Gruplar genelinde NTS'deki YY1 ve β-actin'in temsili Western blot bantları. (E) Gruplar genelinde YY1 protein ekspresyonunun kantitatif analizi (biyolojik tekrarlar n = 3, ortalama ± SD). ***p < 0.001 Sham grubuna kıyasla; #p < 0.05 CHF grubuna kıyasla. (F) Düzenleyici potansiyel skorlarına dayalı olarak YY1 lokusunu düzenleyen epigenetik histon modifikasyonlarının biyoinformatik tahmini. (G) Düzenleyici potansiyel skorlarına dayalı olarak YY1 lokusunu düzenleyen yukarı akış transkripsiyon faktörlerinin biyoinformatik tahmini. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
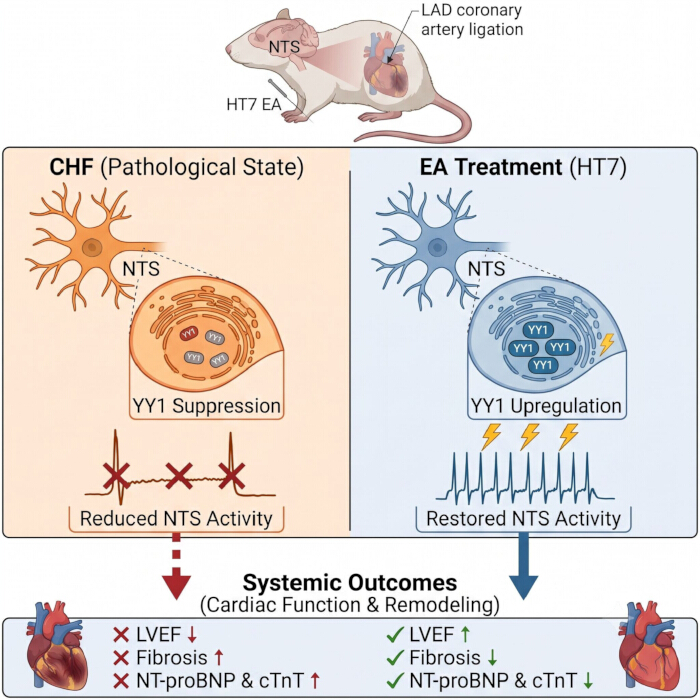
Şekil 7: HT7 noktasındaki elektroakupunktur, YY1 yukarı regülasyonu, nucleus tractus solitarius'taki nöronal aktivitenin geri kazanılması ve kronik kalp yetmezliğinin iyileşmesi arasındaki ilişkiye dair önerilen model. (Sol) Patolojik Durum: LAD koroner arter ligasyonu ile indüklenen CHF modelinde, NTS içindeki nöronal aktivite azalır ve buna transkripsiyon faktörü YY1'in baskılanması eşlik eder. Bu merkezi nöral inhibisyon; LVEF'de azalma, miyokardiyal fibroziste artış ve serum kalp yetmezliği belirteçlerinde yükselme olarak kendini gösteren patolojik kardiyak remodelingle ilişkilidir. (Sağ) EA Tedavisi: HT7 akupunktur noktasındaki EA müdahalesi, NTS'de YY1 ekspresyonunu yukarı regüle eder ve nöronal ateşlemeyi geri kazandırır. Bu merkezi nöromodülasyon, patolojik remodelingi hafifleterek ve sistemik kardiyak fonksiyonu iyileştirerek kardiyoprotektif etkiler gösterir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: Proteomik kohortun kardiyak fonksiyon değerlendirmesi ve aday hub genlerin insan dokusu ekspresyon profilleri. (A) Gruplar genelinde LVEF ve LVFS'nin kantitatif analizi (biyolojik tekrarlar n = 12, ortalama ± SD). ***p < 0.001 Sham grubuyla karşılaştırıldığında; ###p < 0.001 CHF grubuyla karşılaştırıldığında. (B-J) GTEx veri tabanından türetilen; COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I) ve COL14A1 (J) dahil olmak üzere aday hub genlerin insan dokusu ekspresyon profilleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1: Nukleus traktus solitarius'taki global proteomun kapsamlı tanımlama ve nicelik matrisi.Bu tablo, tüm deneysel kohortlardaki eksiksiz kantitatif proteomik veri setini sunmaktadır. Önemli sütunlar arasında Protein ID (UniProt erişim numarası), Gene (gen sembolü), First.Protein.Description (fonksiyonel açıklama) ve Sham, CHF ve EA gruplarındaki (grup başına n = 6) her bir biyolojik replika için normalize edilmiş protein yoğunluk değerleri yer almaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: Sham ve CHF karşılaştırmasındaki proteinler için OPLS-DA değişken önem projeksiyon skorları.Bu tablo, OPLS-DA modeline göre Sham ve CHF gruplarını ayıran özellikleri listelemektedir. Temel sütunlar arasında özellik (belirli protein/genin tanımlayıcısını temsil eder) ve her bir özelliğin grup ayrımına katkısını belirten VIP_değeri (Değişken Önem Projeksiyonu) (eşik değer VIP > 1.0) yer almaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: CHF ile EA karşılaştırmasındaki proteinler için OPLS-DA değişken önem projeksiyon skorları.Bu tablo, OPLS-DA modeline dayanarak CHF ve EA gruplarını ayıran özellikleri listelemektedir. Tablo S2'ye benzer şekilde, özellik sütununu ve karşılık gelen VIP_value değerini içererek EA müdahalesine en duyarlı özellikleri vurgulamaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 4: Elektroakupunktur tarafından modüle edilen, diferansiyel olarak eksprese edilen 85 temel proteinin detaylı listesi.Bu tablo, CHF ile önemli ölçüde değişen ve ardından EA müdahalesiyle geri döndürülen proteinlerin kesişimini sunmaktadır. Önemli sütunlar arasında Protein_ID, Gen, ekspresyon varyasyonunu belirten log2FC (log2 Kat Değişimi), istatistiksel anlamlılık için P_value (eşik değer p < 0,05) ve model katkısını değerlendiren VIP_value yer almaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 5: Downregüle edilen çekirdek protein alt kümesinin Gen Ontolojisi zenginleştirme analizi.Bu tablo, EA tarafından downregüle edilen 58 protein için Gen Ontolojisi (GO) fonksiyonel anotasyonunu göstermektedir. Önemli sütunlar arasında ONTOLOGY (Biyolojik Süreç [BP], Hücresel Bileşen [CC] ve Moleküler Fonksiyon [MF] olarak kategorize edilmiştir), fonksiyonel Açıklama, p.adjust (çoklu testler için düzeltilmiş p-değeri) ve her terimde zenginleşen spesifik genlerle eşleşen geneID yer almaktadır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 6: Azalmış ekspresyona sahip çekirdek protein alt kümesinin Kyoto Gen ve Genom Ansiklopedisi (KEGG) yol zenginleştirme analizi.Bu tablo, ekspresyonu azalmış 58 protein için zenginleşmiş sinyal yolaklarını göstermektedir. Temel sütunlar arasında yolak Terimi, zenginleşmenin istatistiksel anlamlılığını belirten Düzeltilmiş p-değeri ve her bir yolakta yer alan spesifik kesişen Genler bulunmaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 7: Yukarı yönlü regüle edilen çekirdek protein alt kümesinin Gen Ontolojisi zenginleştirme analizi.Bu tablo, EA tarafından yukarı yönlü regüle edilen 27 proteinin Gen Ontolojisi (GO) fonksiyonel açıklamasını göstermektedir. Format ve sütun tanımları (ONTOLOGY [BP, CC, MF], Açıklama, p.adjust, geneID), Tablo S5'te detaylandırılanlarla aynıdır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 8: Yukarı regüle edilen çekirdek protein alt kümesinin Kyoto Encyclopedia of Genes and Genomes yolak zenginleştirme analizi.Bu tablo, yukarı regüle edilen 27 protein için zenginleştirilmiş sinyal kaskadlarını göstermektedir. Format ve sütun tanımları (Terim, Düzeltilmiş p-değeri, Genler), Tablo S6'da ayrıntıları verilenlerle aynıdır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 9: Protein-protein etkileşim ağından türetilen 18 hub proteinin topolojik bağlantı skorları.Bu tablo, temel hub genleri belirlemek için kullanılan ağ topolojik parametrelerini özetlemektedir. Ana sütunlar arasında gen adı ile her bir düğümün biyolojik ağ içindeki bağıl önemini ve bağlantısını nicelleştiren Derece (Degree), Arasındalık Merkeziyeti (Betweenness Centrality) ve Yakınlık Merkeziyeti (Closeness Centrality) gibi merkezi ağ metrikleri yer almaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 10: 18 ağ merkez proteininin Kyoto Encyclopedia of Genes and Genomes yol zenginleştirme analizi.Bu tablo, tanımlanan 18 merkez protein tarafından özel olarak zenginleştirilen spesifik sinyal yollarını sunmaktadır. Temel sütunlar arasında yol Terimi, anlamlılık için Düzeltilmiş p-değeri ve fonksiyonel zenginleştirmeyi sağlayan ilgili Genler yer almaktadır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1: Veri analizi ve görselleştirme için kullanılan R betikleri ve kırpılmamış Western blot görüntüleri. Ek dosya; Pearson korelasyon analizi, çift volkan grafiği oluşturma ve EA ile tersine dönen proteinlerin belirlenmesi, Gen Ontolojisi (GO) zenginleştirme analizi, hiyerarşik kümeleme ısı haritası oluşturma, Kyoto Gen ve Genom Ansiklopedisi (KEGG) zenginleştirme görselleştirmesi, ortogonal kısmi en küçük kareler ayrım analizi (OPLS-DA) ve permütasyon testi, kısmi en küçük kareler ayrım analizi (PLS-DA), proteomik örnek korelasyon ısı haritası oluşturma ve Venn diyagramı analizi için kullanılan R betiklerini içermektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma, CHF sıçan modelinde HT7 akupunktundaki EA'nın merkezi mekanizmalarını araştırmıştır. Fizyolojik ve histolojik veriler, EA'nın LVEF'yi iyileştirdiğini ve miyokardiyal fibrozisi azalttığını göstermiştir. Bu periferik değişikliklerle paralel olarak, in vivo elektrofizyolojik kayıtlar ve nöral haritalama, EA'nın NTS içindeki nöronal ateşleme hızlarını geri kazandırdığını desteklemiştir. Kütle spektrometrisi tabanlı proteomik aracılığıyla NTS'nin moleküler manzarası haritalanmış ve anormal ekspresyon paternleri müdahale ile modüle edilen 85 farklı eksprese protein tanımlanmıştır. Ardından yapılan topolojik analiz ve doku ekspresyon profillemesi, transkripsiyon faktörü YY1'i aday bir biyolojik hedef olarak belirlemiştir. Moleküler doğrulama, EA'nın YY1 ekspresyonunu yukarı yönlü düzenlediğini göstermiştir. Bu bulgular, EA için merkezi bir moleküler ağ oluşturmakta ve YY1'in merkezi otonom regülasyonu CHF'nin iyileştirilmesiyle ilişkilendiren potansiyel bir nörobiyolojik hedef olduğunu önermektedir. Kapsamlı merkezi mekanizmalar Şekil 7'de özetlenmiştir.
NTS, merkezi kardiyovasküler refleksler ve otonom regülasyon için entegrasyon merkezi olarak hizmet eder21,22. Kardiyovasküler hastalıklar bağlamında KKY, sempatik aşırı aktivasyon ve vagal geri çekilme ile karakterize süregelen bir otonom dengesizliği içerir23. Bu durumun patofizyolojik ilerlemesi sırasında, periferik baroreseptörlerin hassasiyeti azalır ve bu da NTS'ye giden eksitatör afferent girdileri düşürür24. Sonuç olarak, bu nöral körelme, kaudal ventrolateral medullanın aktivasyonunda azalmaya ve ardından rostral ventrolateral medullanın disinhibisyonuna yol açarak aşırı merkezi sempatik çıkışla sonuçlanır25. Bu mekanizmalarla paralel olarak, elektrofizyolojik ve histolojik veriler, KKY durumunda NTS nöronlarının spontan ateşleme frekansının ve c-Fos ekspresyonunun azaldığını göstermiştir. Hedefe yönelik bir nöromodülasyon yaklaşımı olarak, EA tarafından üretilen somatosensoriyel afferent sinyallerin teorik olarak periferik sinirler aracılığıyla omuriliğin dorsal boynuzuna iletildiği ve NTS dahil olmak üzere beyin sapı yapılarına yükseldiği öne sürülmektedir26. Sonuçlar, HT7 akupunktura uygulanan EA müdahalesinin, bu beyin bölgesindeki nöral osilatuar enerjiyi artırdığını ve nöronal ateşleme hızını geri kazandırdığını göstermiştir. Fizyolojik olarak, geri kazanan NTS nöronal aktivitesi medulladaki inhibitör internöronların aktivasyonunu kolaylaştırır, böylece hiperaktif sempatik premotor nöronları baskılarken eş zamanlı olarak parasempatik efferent sinyalleri artırır27. Bu merkezi nöral mekanizmaları periferik kardiyovasküler fenotiplerle ilişkilendiren korelasyon analizi, bu merkezi nöral aktivasyonun LVEF ile pozitif, periferik kalp yetmezliği belirteci NT-proBNP ile ise negatif ilişkili olduğunu desteklemiştir. Bu bulgular, EA'nın NTS nöronlarının patolojik inhibisyonunu hafifleterek ve merkezi otonom homeostazı teşvik ederek periferik kardiyoprotektif etkilerini gösterebileceğini belirtmektedir.
Bu merkezi nöromodülasyonun temelindeki moleküler yolları aydınlatmak için NTS'nin proteomik manzarası analiz edildi. Kütle spektrometrisi tabanlı proteomik, ekspresyon paternleri müdahale ile modüle edilen 85 protein belirledi. Fonksiyonel stratifikasyon, EA tarafından aşağı regüle edilen 58 proteinlik bir alt kümenin belirgin şekilde hücre dışı matris organizasyonu ve transforme edici büyüme faktörü β-sinyal yolu ile ilişkili olduğunu ortaya koydu. Merkezi sinir sistemindeki hücre dışı matris, sinaptik terminalleri fiziksel olarak saran ve yerel iyon homeostazını düzenleyen perineuronal ağlar da dahil olmak üzere organize bir kafes oluşturur28. Kalp yetmezliği gibi kronik patolojik stres durumlarında, aberan hücre dışı matris birikimi beyin sapında kısıtlayıcı bir mikroortam yaratır29. Bu yapısal yeniden şekillenme, sinaptik yapısal plastisiteyi fiziksel olarak engeller ve nöral devreleri sempatik hiperaktivite durumunda tutar30. EA, DCN ile birlikte COL3A1 ve COL14A1 gibi yapısal proteinlerin ekspresyonunu modüle ederek bu patolojik hücre dışı bariyeri yeniden şekillendirir. Eş zamanlı olarak, NTS içinde gerçek miyosit varlığını değil, genel yapısal ve integrin aracılı değişiklikleri belirten "kas hücrelerinde sitoiskelet" KEGG yolu altında kategorize edilen ilgili sinyal kaskadlarının zenginleşmesi, hücre dışı değişikliklerin hücre içi kompartımana iletildiğini göstermektedir31. Bu mekanotransdüksiyon sinyali, dendritik dikenlerin dinamik döngüsünü geri kazandırır ve otonom refleks arkındaki sinaptik iletimi ve etkinliği düzenler32.
Hücre dışı yapısal yeniden organizeasyonun ötesinde, müdahale ile yukarı regüle edilen 27 proteinin fonksiyonel anotasyonu, ATP bağımlı kromatin yeniden modellenmesinin rol oynadığını göstermiştir. Sürdürülebilir kardiyovasküler otonom dengesizlik, yoğunlaşmış kromatinin nöral inhibisyonu düzenleyen genlerin promotör bölgelerine erişimini sınırladığı epigenetik kısıtlamalarla sürdürülür33. ATP bağımlı kromatin yeniden modelleme kompleksleri, nükleozomları kaydırmak veya uzaklaştırmak için ATP hidrolizinden gelen enerjiyi kullanır ve böylece genomik lokusları aktif transkripsiyona açar34. Bu yolağın zenginleşmesi, DNA şablonlu transkripsiyon elongasyonunun pozitif regülasyonu ile birlikte, EA'nın hastalıkla ilişkili transkripsiyonel hafızayı yeniden modellemek için epigenetik düzeyde etki ettiğini göstermektedir35. Hücre dışı mikroçevrenin yapısal gevşemesi, nükleer epigenetik modifikasyonlara dönüşerek YY1 ve E2F2 gibi kilit proteinler tarafından köprülenen nöroprotektif gen ağlarının koordineli transkripsiyonunu kolaylaştırır36,37. EA'nın terapötik etkinliğini sağlayan biyolojik hedefi sistematik olarak izole etmek için kademeli bir tarama stratejisi uygulanmıştır. Diferansiyel olarak eksprese edilen 85 protein, 10 belirgin hub adayı belirlemek amacıyla topolojik ağ haritalama ve yolak zenginleştirme analizi ile filtrelenmiştir. Sonraki doku ekspresyon profillemesi, insan beyin dokularında yalnızca YY1 ve DPF2'nin, DMAP1 ile birlikte eksprese edildiğini doğrulamıştır. In vivo moleküler doğrulama, transkripsiyonel yanıt eksikliği nedeniyle DPF2 ve DMAP1'i daha da dışlamış ve YY1'in yüksek düzeyde yanıt veren bir aday hedef olduğunu onaylamıştır. YY1, merkezi sinir sistemi gelişimi ve nöronal plastisite üzerinde kontrol uygulayan bir çinko parmak transkripsiyon faktörüdür38. Olgun nöral devrelerde YY1, mitokondriyal homeostazı koruyarak ve oksidatif stresi hafifleterek nöroprotektif bir regülatör olarak işlev görür39. CHF'nin patolojik ilerlemesi sırasında, sürdürülen hemodinamik stres ve periferik inflamasyon, beyinsapı nöronlarında metabolik disfonksiyon ve yapısal hasara yol açar40. Deneysel veriler, CHF koşulları altında NTS'de YY1 ekspresyonunun baskılandığını, EA müdahalesinin ise bu patolojik baskınlığa karşı etkili olduğunu göstermiştir. Ampirik doğrulamadan ziyade tamamen hesaplamalı biyoinformatik tahminlerine dayanarak YY1'in, downstream nöroprotektif gen ağlarının transkripsiyonunu koordine etmek için H3K27ac ve H3K4me3 gibi aktif histon modifikasyonlarıyla etkileşime girdiği varsayılmaktadır 41. YY1 aktivitesinin geri kazanılması, nöronal metabolik yolakların onarımını kolaylaştırabilir ve sinaptik bağlantıların yapısal bütünlüğünü destekleyebilir. Sonuç olarak, modüle edilen NTS nöronları, periferik barorefleks girdilerini işleme kapasitelerini artırır ve descending sempatik premotor yolaklar üzerinde inhibitör kontrol uygular; bu da CHF ile ilişkili kardiyovasküler kötüleşmeyi iyileştirir42.
Bu keşiflere rağmen, çeşitli metodolojik kısıtlamaların titizlikle değerlendirilmesi gerekmektedir. İlk olarak, mevcut deneysel tasarım, doğrudan fonksiyonel kanıtlar olmaksızın korelasyonel omiklere ve ekspresyon profillemesine dayanmıştır. Gelecekteki araştırmalar; NTS içinde viral vektör aracılı nakavt veya aşırı ekspresyon gibi hedeflenmiş genetik manipülasyonların yanı sıra ampirik ChIP-seq veya CUT-seq gibi yöntemleri kapsamalıdır.&YY1'in nedensel rolünü kesin olarak belirlemek ve downstream epigenetik ağlarını doğrulamak için etiketleme analizleri (tag assays) gerekmetedir. İkinci olarak, proteomik aşamadan Sham EA kohortunun hariç tutulması, spesifik olmayan somatosensör stimülasyonla indüklenen moleküler imzaların kesin olarak dışlanması kapasitemizi sınırlamaktadır. Ancak, mevcut tasarımda CHF ve EA gruplarının Sham baz hattına göre karşılaştırılması, EA'ya özgü moleküler değişiklikleri izole etmek için yeterli kabul edilmektedir. Bunun nedeni, müdahale uygulanmayan tüm kohortların, özellikle Sham ve CHF gruplarının, günlük isofluran anestezi maruziyetine ilişkin katı bir baz hattı standardizasyonundan geçmiş olması ve bunun en derin spesifik olmayan nörolojik stres karıştırıcı değişkenlerini etkili bir şekilde minimize etmiş olmasıdır. Ayrıca, başlangıç fonksiyonel verilerimiz, Sham EA'nın CHF grubuna kıyasla anlamlı bir kardiyovasküler veya nöral aktivasyon uyandırmadığını göstermiştir; bu durum, elektrik akımı olmaksızın uygulanan yüzeysel somatosensör stimülasyonun, önemli bir merkezi moleküler yeniden programlamayı tetiklemek için gerekli eşiğe ulaşmadığını göstermektedir. Üçüncü olarak, çalışma standart akupunktur noktası dışı kontrol gruplarından yoksundur, bu da HT7 akupunktur noktası özgüllüğünün kesin olarak doğrulanmasını engellemektedir. Ayrıca, önerilen HT7-NTS afferent nöral yolları, doğrudan nöral izleme veya sinir blokajı doğrulaması olmadan spekülatif kalmaktadır. Son olarak, in vivo elektrofizyoloji, spesifik eksitatör ve inhibitör nöronal alt popülasyonlar arasında ayrım yapmadan tek bir zaman noktasında global NTS aktivitesini değerlendirmiş ve uzun süreli nöral plastisiteyi analiz etmemiştir. Merkezi nörobiyolojik mekanizmaları geliştirmek için sonraki araştırmaların bu kritik boşlukları gidermesi gerekmektedir.
Sonuç olarak, bulguların korelasyonel doğasını kabul ederek bu sonuçları entegre eden bu araştırma, EA'nın NTS nöronal fonksiyonunu geri yükleyerek patolojik kardiyak remodeling'i hafiflettiğini gösteren değerli bir moleküler çerçeve sunmaktadır. Bu veriler, YY1'in merkezi kardiyovasküler nöromodülasyon için oldukça duyarlı bir aday hedef olduğunu vurgulamakta ve kalp yetmezliği yönetiminde akupunktur terapisinin klinik uygulaması için yeni nörobiyolojik içgörüler sağlamaktadır.
Açıklamalar
Tüm yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler. Yazarlar ayrıca, metnin hazırlık sürecinin hiçbir aşamasında yapay zeka araçlarının kullanılmadığını beyan ederler.
Teşekkürler
Bu çalışmaya katkıda bulunan tüm araştırmacılara içten teşekkürlerimizi sunar ve deney hayvanlarının fedakarlığını saygıyla anarız. Bu çalışma, Çin Ulusal Temel Araştırma ve Geliştirme Programı (hibe no. 2022YFC3500500 ve 2022YFC3500502) ve Xu Nenggui Üniversite Düzeyi Yetenek Destek Programı (hibe no. DT2400000222) tarafından desteklenmiştir. Fon sağlayanların; çalışma tasarımında, veri toplama ve analizinde, yayın kararında veya taslağın hazırlanmasında herhangi bir rolü olmamıştır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Yetişkin erkek Sprague-Dawley sıçanları | Liaoning Changsheng Biotechnology Co., Ltd. | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| Akupunktur iğneleri | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| DAPI içeren antifade montaj medyumu | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Anti-YY1 primer antikor | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| Anti-Beta Actin primer antikor | 66009-1-Ig | AB_2687938 | |
| Sığır serum albümini (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| BCA protein analiz kiti | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) tavşan mAb | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | The Cytoscape Consortium | version 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| Elektroakupunktur cihazı | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| Sekiz kanallı (2 × 4) mikroelektrot dizisi | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| ELISA kiti (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| ELISA kiti (cTnT) | MM-0795R2 | — | |
| Geliştirilmiş kemilüminesans kiti | Proteintech Group, Inc | PK10001 | — |
| Keçi anti-tavşan IgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| HRP-konjuge Keçi Anti-Fare IgG sekonder antikor | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | N/A |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| ImageJ yazılımı | National Institutes of Health | version 4.0 | SCR_003070 |
| Görüntüleme sistemi | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Çok kanallı küçük hayvan anestezi cihazı | RWD Life Science Co., Ltd | R510-22-10 | — |
| Mikroskop | Olympus Optical Co., Ltd. | DP72 | — |
| NeuroExplorer yazılımı | Beijing Plexon Technology Co., Ltd. | version 5.0 | SCR_001818 |
| Offline Sorter yazılımı | Beijing Plexon Technology Co., Ltd. | version 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Powerlab standart ekstremite II derivasyon sistemi | AD Instruments International Trading Co., Ltd. | ML118 | — |
| PepMap Neo Trap Kolonu | Thermo Fisher Scientific | — | — |
| Fosfataz inhibitörleri | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| R yazılımı | — | version 4.5.2 | SCR_001905 |
| RIPA lizis tamponu | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Küçük hayvan dijital ultrason sistemi | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| İstatistik yazılımı | GraphPad Software | Version 8.0 | SCR_002798 |
| The OmniPlex çok kanallı veri toplama sistemi | Beijing Plexon Technology Co., Ltd. | version 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Vanquish Neo UHPLC sistemi | Thermo Fisher Scientific | — | — |
| µPAC Neo yüksek verimli kolon | Thermo Fisher Scientific | — | — |
Kaynaklar
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.