Entegre bulk ve tek hücre transkriptomik analizleri, keloidler için hem metabolizmasıyla ilgili altı tanısal biyobelirteç tanımlamıştır. Deneysel doğrulama, keloid fibroblastlarında feline leukemia virus subgroup C receptor 1 (FLVCR1) disregülasyonunu desteklemiş; moleküler kenetleme ise daha fazla fonksiyonel araştırmayı gerektiren potansiyel bir FLVCR1 etkileşimli bileşik olarak (+)-gallocatechin'i tanımlamıştır.
Araştırma makalesi
Transkriptomik Analiz ve Kültürlenmiş İnsan Fibroblastları Kullanılarak Keloidlerde Hem Metabolizması ile İlişkili Biyobelirteçlerin Tanımlanması
Bu makalede
Özet
Özet
Keloid, yüksek nüksetme oranına sahip ve patogenezi tam olarak açıklanamamış, etkili terapötik hedefleri bulunmayan fibroproliferatif bir bozukluktur. Güncel kanıtlar, özellikle hem metabolizmasındaki metabolik yeniden programlamanın fibrozisi tetikleyebileceğini göstermektedir. Bu çalışma, keloid patogenezinde hem metabolizmasının, özellikle de feline leukemia virus subgroup C receptor 1 (FLVCR1) proteininin rolunu araştırmakta ve bunun diyagnostik ile terapötik potansiyelini incelemektedir. Toplu RNA-seq veri setleri ve tek hücre RNA-seq (scRNA-seq) verileri analiz edilmiştir. Diferansiyel ekspresyon, en küçük mutlak büzülme ve seçme operatörü (LASSO) ve rastgele orman (RF) modelleri kullanılarak hem metabolizmasıyla ilişkili diyagnostik biyobelirteçler belirlenmiştir. İmmün infiltrasyon, tek hücre haritalama, mikroRNA (miRNA) ağ oluşturma ve geleneksel Çin tıbbı bileşikleriyle moleküler kenetleme çalışmaları gerçekleştirilmiştir. Altı adet hem metabolizmasıyla ilişkili biyobelirteç tanımlanmış ve yüksek doğruluk oranına sahip diyagnostik bir nomogram oluşturulmuştur. Endotelyal hücrelerde ve melanositlerde zenginleşen FLVCR1'in, T foliküler yardımcı hücrelerle negatif korelasyon gösterdiği belirlenmiş, bu durum immunometabolik bir etkileşime işaret etmiştir. miRNA düzenleyici ağ analizi, altı biyobelirtecin tamamını ortak hedefleyen beş miRNA ortaya çıkarmıştır. Moleküler kenetleme çalışmaları, (+)-gallocatechin'in yüksek afiniteli bir FLVCR1 ligandı olduğunu belirlemiştir. Bu bulgular, keloid patogenezindeki immunolojik değişiklikler ile FLVCR1 ile ilişkili hem metabolizması arasında bir bağlantı olduğunu göstermektedir. Biyobelirteç paneli keşifsel diyagnostik potansiyel sergilemiş ve (+)-gallocatechin, daha fazla doğrulanmaya ihtiyaç duyan bir FLVCR1 ile etkileşen bileşik adayı olarak tanımlanmıştır. Bu çalışma, keloidi metabo-fibrotik spektrum içinde yeniden çerçevelendirmekte ve metabolik-immün müdahaleyi yeni bir terapötik strateji olarak önermektedir.
Giriş
Orijinal cilt yaralanmasının sınırlarının ötesine uzanan aşırı hücre dışı matris birikimi ile karakterize fibroproliferatif bir bozukluk olan keloid, küresel nüfusun %4-16'sını etkilemektedir ve Afrika, Asya ve Hispanik kökenli bireyler arasında belirgin şekilde daha yüksek prevalansa sahiptir1,2. Histolojik olarak benign doğasına rağmen keloid; kalıcı pruritus, ağrı, fonksiyonel kontraktür ve kozmetik deformasyon yoluyla önemli fiziksel ve psikososyal yükler oluşturur. İntralezyonal kortikosteroidler, cerrahi eksizyon, radyoterapi ve lazer terapiyi içeren mevcut terapötik modaliteler, monoterapi sonrası %50'yi aşan nüks oranları ile suboptimal kalmaya devam etmektedir3,4,5. Bu terapötik çıkmaz, keloid patogenezine dair anlayışımızdaki temel bir boşluğu, özellikle de fibrotik kaskadı kanonik profibrotik sinyallemenin ötesinde başlatan ve sürdüren üst akış sürücülerini vurgulamaktadır.
Güncel araştırmalar ağırlıklı olarak TGF-β/Smad sinyal yolu gibi kanonik yolaklara ve aberan fibroblast aktivasyonuna odaklanmıştır6,7,8. Keloid dokularda immün hücre infiltrasyonu —özellikle M2 polarize makrofajlar, regülatör T hücreleri ve disregüle dendritik hücreler— belgelenmiş olsa da9,10, bu incelemeler immün değişiklikleri büyük ölçüde üst düzey düzenleyicilerden ziyade fibroblast disfonksiyonunun alt akış sonuçları olarak ele almaktadır. Kritik bir nokta olarak, bu immünofibrotik etkileşimi aktif olarak şekillendirebilecek metabolik programlar, keloid patogenezinde tamamen keşfedilmemiş durumdadır11,12,13. Metabolik yeniden yapılandırmanın doku yeniden modellemesinin ana düzenleyicisi olarak hizmet ettiği fibrotik bozukluklardaki gelişen paradigmalar göz önüne alındığında, bu bilgi boşluğu oldukça dikkat çekicidir.
Metabolik yeniden programlama, son zamanlarda birçok organ sisteminde fibrojenezin merkezi bir noktası olarak ortaya çıkmıştır. Pulmoner ve hepatik fibroziste, taşıyıcıların, temizleyicilerin veya biyosentetik enzimlerin değişen ekspresyonu yoluyla bozulmuş hem homeostasisi; kolajen depolanmasını doğrudan teşvik eden oksidatif stres, ferroptozis ve steril inflamasyonu tetikler14. Hem birikimi, fibroblast aktivasyonunu yönlendirmek için NLRP3 inflamazomunu aktive ederken, kedi lösemi virüsü alt grup C reseptör 1 (FLVCR1) eksikliği, çözülemeyen hem toksisitesi aracılığıyla doku fibrozisini şiddetlendirir. Bu bulgular, hem metabolizmasını yalnızca temel bir süreç olarak değil, fibrotik kaskadları başlatma yeteneğine sahip dinamik bir sinyal merkezi olarak konumlandırmaktadır; bu paradigma henüz kutanöz fibroproliferatif bozukluklarda test edilmemiştir.
Hem aracılı immünomodülasyonun makuliyeti, kanser ve kronik inflamasyon modellerinden gelen mekanistik kanıtlarla daha da desteklenmektedir. Hem, immün hücre kaderini doğrudan modüle eden bir sinyal molekülü olarak işlev görür: TLR4/NF-κB sinyali aracılığıyla M1'den M2'ye makrofaj polarizasyonunu teşvik eder15, Bach2 aracılı transkripsiyonel baskılama yoluyla T hücresi farklılaşmasını etkiler16 ve FLVCR1 bağımlı hem ihracı yoluyla dendritik hücre maturasyonunu kritik şekilde düzenler17,18. Özellikle, hücresel hem homeostazı için temel olan bir plazma membranı hem ihracatçısı olan FLVCR1'in, yakın zamanda immün hücre gelişimi ve endotelyal disfonksiyon ile ilişkili olduğu ortaya konmuştur19. Bu yakınsayan kanıt hatları, FLVCR1'i hem metabolik disregülasyonu patolojik immün yeniden şekillenmeye bağlayan makul bir moleküler bağlantı noktası olarak konumlandırmaktadır; bu hipotez, keloidin karakteristik immün açısından zengin mikroçevresi göz önüne alındığında, keloid patogenezi için derin etkiler taşımaktadır.
Diğer hastalık bağlamlarında hem-immün etkileşiminin anlaşılmasında önemli ilerlemeler kaydedilmesine rağmen, disregüle hem metabolizmasının keloidlerde patolojik immün manzarayı başlatan veya artıran bir üst akış sürücüsü olarak görev yapıp yapmadığı tamamen keşfedilmemiş durumdadır. Bu kritik bilgi boşluğu, birbiriyle bağlantılı birkaç nedenden dolayı acil araştırma gerektirmektedir: keloidler; kalıcı inflamasyon ve oksidatif stres dahil olmak üzere, pulmoner ve hepatik fibrozis gibi metabolik kaynaklı fibrotik bozukluklarla ortak karakteristik patolojik özellikler paylaşmaktadır ve bu durum, temel düzenleyici mekanizmalarda potansiyel bir ortaklığa işaret etmektedir. FLVCR1 merkezli hem ihracat mekanizmasının, makrofaj polarizasyonu ve dendritik hücre maturasyonu gibi temel immün fonksiyonları doğrudan yönettiği deri dışı dokularda mekanistik olarak doğrulanmıştır ve bu durum, mekanizmanın keloid immünopatolojisine uyarlanması için sağlam bir teorik temel sağlamaktadır20. En önemlisi, bu metabolik-immün aksın hedeflenmesi, yalnızca alt akıştaki fibrotik etkileri baskılayan mevcut semptomatik tedavilerin ötesine geçerek, hastalık ilerlemesinin metabolik kökeninde üst akış müdahalesini potansiyel olarak mümkün kılan paradigmaları değiştiren bir fırsat sunmaktadır21.
Bu temel dayanağı temel alarak, FLVCR1 merkezli hem metabolizması disregülasyonunun, keloid patogenezini tetiklemek için immün mikroçevreyi aktif olarak yeniden şekillendirdiği hipotezini kurduk. Bu hipotezi sistematik olarak doğrulamak için, çok aşamalı bir yaklaşımda bulk ve tek hücre transkriptomik analizlerini entegre ettik: öncelikle, makine öğrenimi algoritmaları ve bağımsız kohort doğrulaması kullanarak keloid dokularında hem metabolizmasıyla ilişkili tanısal biyobelirteçleri tanımladık ve doğruladık; ardından, tek hücre çözünürlüklü haritalama yoluyla bu biyobelirteçlerin endotel hücreler, fibroblastlar, melanositler ve immün alt kümeler dahil olmak üzere farklı hücresel kompartımanlardaki uzamsal ekspresyon modellerini belirledik; sonrasında, fonksiyonel immün-metabolik bağlantılar kurmak için bunların spesifik immün hücre popülasyonları ile kantitatif korelasyonlarını tanımladık; ve son olarak, ilaçla müdahale edilebilir noktaları belirlemek için FLVCR1 merkezli bir mikroRNA (miRNA) düzenleyici ağ oluşturduk ve geleneksel Çin tıbbı bileşikleri ile moleküler kenetleme gerçekleştirdik. Bu kapsamlı araştırma, keloid patogenezinde daha önce fark edilmemiş bir hem metabolizması-immün eksenini ortaya çıkarmakla kalmayıp, aynı zamanda bu dirençli fibroproliferatif bozukluk için hem tanısal hem de terapötik potansiyele sahip, translasyonel olarak ilgili bir biyobelirteç paneli sunmaktadır.
Protokol
Tüm veriler Gene Expression Omnibus (GEO) dahil olmak üzere halka açık veri tabanlarından elde edildiği ve doğrudan herhangi bir tanımlanabilir insan katılımcısı veya hayvan denek yer almadığı için bu çalışma için etik onay ve bilgilendirilmiş onam gerekmemiştir.
Veri toplama ve ön işleme
Hem metabolizması ile ilişkili genler, REACTOME_Heme_Biosynthesis, REACTOME_Heme_Degradation, Wikipathway_Heme_Biosynthesis, REACTOME_Scavenging_Heme_from_Plasma ve HALLMARK_Heme_Metabolism gen setlerini içerecek şekilde Moleküler İmza Veritabanından (MSigDB; bkz. Materyaller Tablosu ve Ek Tablo S1) elde edilmiştir. Bu çalışmada analiz edilen tüm veri setleri, halka açık kaynaklardan temin edilmiştir. Gene Expression Omnibus (GEO) veritabanından iki toplu gen ekspresyon mikroarray veri seti alınmıştır: 18 keloid ve 14 normal cilt örneğinden oluşan GSE44270 ile 10 keloid ve 9 normal cilt örneğinden oluşan GSE7890. GSE44270 ve GSE7890, sırasıyla GPL6244 ve GPL570 platformlarında oluşturulmuştur. Seri matris dosyaları ve ilgili örnek bilgileri indirilmiş ve R ortamına aktarılmıştır. Seri matris dosyalarındaki ekspresyon değerleri, orijinal veri gönderenler tarafından önceden işlenmiş ve normalize edildiği için, ek bir log2 transformasyonu veya örnekler arası normalizasyon gerçekleştirilmemiştir. İki veri seti, farklı mikroarray platformlarında oluşturuldukları için birbirinden bağımsız olarak işlenmiş ve birleştirilmemiştir. Veri setleri, aşağıda açıklanan şekilde ön işlemden geçirilmiştir (bkz. Materyaller Tablosu). Gen probları ilgili gen sembolleriyle eşleştirilmiş; gen anotasyonları eksik olan veya birden fazla genle eşleşen problar kapsam dışı bırakılmıştır. Birden fazla prob setine sahip genler için, ekspresyon değeri tespit edilen en yüksek ekspresyon seviyesine göre atanmıştır. Ek olarak, üç keloid örneği içeren GSE163973'ten tek hücre RNA dizileme verileri (scRNA-seq) indirilmiş ve orijinal çalışmada tanımlanan kalite kontrol standartları takip edilerek işlenmiştir.
Keloidde hem metabolizmasıyla ilişkili tanısal belirteçlerin taranması ve doğrulanması
Keloidlerde diferansiyel olarak eksprese edilen hem metabolizmasıyla ilişkili genleri belirlemek için, GSE44270 veri setine R fonksiyonu wilcox.test kullanılarak Wilcoxon sıra toplamı testi uygulandı ve anlamlılık eşiği P < 0.05 olarak belirlendi. Keloid için potansiyel tanısal belirteçleri tanımlamak amacıyla iki makine öğrenimi modeli kullanıldı: rastgele orman (RF) ve en küçük mutlak küçültme ve seçme operatörü (LASSO) lojistik regresyon. Tekrarlanabilirliği sağlamak için Rastgele Orman analizi 1 rastgele tohum değeriyle gerçekleştirildi (Malzemeler Tablosu'na bakınız). Model, 500 ağaç (ntree = 500) kullanılarak oluşturuldu ve gen önemi, düğüm safsızlığındaki ortalama azalmaya (IncNodePurity) göre değerlendirildi. Önemi 0.3'ten büyük olan genler, Rastgele Orman türevli aday biyobelirteçler olarak seçildi. LASSO lojistik regresyonu α = 1 ile gerçekleştirildi ve model eğitimi sırasında 50 lambda değeri değerlendirildi (Malzemeler Tablosu'na bakınız). Optimal ceza parametresi, binomiyal yanıt ile cv.glmnet fonksiyonu kullanılarak 5-katlı çapraz doğrulama ile belirlendi. Sıfır olmayan regresyon katsayılarına sahip genler, LASSO ile seçilmiş adaylar olarak tutuldu. Son olarak, Rastgele Orman ve LASSO regresyonu ile tanımlanan genlerin kesişimi, nihai tanısal gen imzası olarak kabul edildi. Nihai tanısal gen imzası, nomogram tabanlı bir model kullanılarak değerlendirildi. Tüm özellik seçimi ve model parametre tahmini yalnızca keşif kohortunda (GSE44270) gerçekleştirildi ve oluşturulan altı genlik imza, bağımsız doğrulama kohortunda (GSE7890) daha detaylı değerlendirildi. Nomogramın tanısal performansı, alıcı işletim karakteristik eğrisi altındaki alan (AUC) hesaplanarak değerlendirildi. Model stabilitesini incelemek için analiz, beş katlı çapraz doğrulamayı ve 1.000 bootstrap yeniden örnekleme iterasyonunu içerdi ve buradan iyimserlik düzeltmeli bir AUC elde edildi. Ardından, nomogramın potansiyel net faydasını tahmin etmek için karar eğrisi analizi (DCA) kullanıldı; ancak bu sonuç, küçük örneklem boyutu nedeniyle dikkatle yorumlandı.
İmmün hücre infiltrasyonu ve korelasyon analizi
İmün hücre zenginleştirmesi, tek örnekli gen seti zenginleştirme analizi (ssGSEA) ile değerlendirildi (Materyal Tablosu'na bakınız). İmün hücre imza matrisi, Charoentong ve ark.22 tarafından daha önce yayınlanmış bir çalışmadan elde edildi ve 28 adaptif ve doğuştan gelen immün hücre popülasyonunu temsil eden 782 marker gen içeriyordu. Analiz, sürekli ve normalize edilmiş mikroarray ekspresyon değerleri üzerinde bir Gaussian çekirdeği kullanılarak gerçekleştirildi. Marker genlerin ekspresyon matrisiyle eşleştirilmesinden sonra minimum 10'luk bir gen seti boyutu şart koşuldu ve elde edilen ssGSEA skorları normalize edildi. Diğer tüm ayarlar varsayılan değerlerinde bırakıldı. Daha sonra, immün hücre zenginleştirme skorları ile tanısal gen ekspresyonu arasındaki ilişkileri değerlendirmek için Pearson korelasyon katsayıları hesaplandı. Ortaya çıkan korelasyon matrisi bir korelasyon grafiği olarak görselleştirildi ve seçilen ilişkiler lollipop grafikleri olarak sunuldu (Materyal Tablosu'na bakınız).
Tek hücreli RNA sekanslama veri işleme ve analizi
Tek hücreli RNA dizileme verileri GSE163973'ten elde edilmiş olup, mevcut analize yalnızca KF1, KF2 ve KF3 olmak üzere üç keloid örneği dahil edilmiştir. Ekspresyon verileri aşağıda açıklanan şekilde içe aktarılmış ve işlenmiştir (bkz. Materyal Tablosu). Toplam benzersiz moleküler tanımlayıcı (UMI) sayıları 200'den az veya 6.000'den fazla olan hücreler hariç tutulmuş ve tahmin edilen dubletler kaldırılmıştır. Her bir hücre için gen ekspresyon sayıları, toplam hücresel ekspresyona göre normalize edilmiş, 10.000'lik bir ölçek faktörü ile çarpılmış ve logaritmik olarak dönüştürülmüştür. Veri ölçeklendirme sırasında seriyle ilişkili varyasyonlar regresyonla giderilmiş ve ortaya çıkan ölçeklendirilmiş artıklar alt analizler için kullanılmıştır. Ortalama ekspresyonlarına ve dağılımlarına göre en yüksek değişkenliğe sahip ilk 2.000 gen seçilmiş ve bunlar üzerinde temel bileşen analizi gerçekleştirilmiştir. Öklid mesafelerine dayalı bir k-en yakın komşu grafiği oluşturmak için ilk 15 temel bileşen kullanılmış ve bu grafik daha sonra paylaşılan en yakın komşu grafiğine dönüştürülmüştür. Hücreler, 0,8 çözünürlükte Louvain algoritması ile kümelenmiş ve aynı 15 temel bileşen kullanılarak tekdüze manifold yaklaşık ve projeksiyonu gerçekleştirilmiştir. Hücre tipleri, orijinal çalışmada rapor edilen hücre tipi tanımlarına göre isimlendirilmiş ve sonuçlanan anotasyonlar metaveri alanına kaydedilmiştir. Hücre tipi anotasyonları ve küme atamaları, tekdüze manifold yaklaşık ve projeksiyon koordinatları üzerinde görselleştirilmiş ve tanısal gen ekspresyonu, isimlendirilmiş hücre popülasyonları genelinde görüntülenmiştir.
miRNA–mRNA düzenleyici ağının oluşturulması
miRNA–mRNA regülatör ağı aşağıda açıklandığı şekilde oluşturulmuştur (Materyaller Tablosuna bakınız). Organizma olarak Homo sapiens seçilmiş ve gen tanımlayıcılar Resmi Gen Sembolleri olarak girilmiştir. Aday genler Gen–miRNA Etkileşimleri modülüne yüklenmiş ve etkileşim veri tabanı olarak TarBase v9.0 seçilmiştir. TarBase, deneysel olarak doğrulanmış miRNA–gen regülatör etkileşimlerini içerir. Ağ kurulumu için yalnızca girilen aday genleri içeren deneysel olarak desteklenen miRNA–mRNA etkileşimleri tutulmuş, deneysel kanıtı olmayan öngörülen etkileşimler ise hariç tutulmuştur. Ek bir güven puanı eşiği uygulanmamıştır.
Yapı tabanlı sanal tarama ve moleküler kenetlenme analizi
Bileşik kütüphanesindeki aday ligandları insan FLVCR1'e (feline leukemia virus subgroup C receptor-related protein 1; bkz. Malzeme Tablosu) karşı önceliklendirmek için yapı tabanlı sanal tarama (SBVS) iş akışı kullanılarak sanal tarama gerçekleştirilmiştir. İnsan FLVCR1'in üç boyutlu yapısı Protein Veri Bankası'ndan (PDB ID: 8UBZ) alınmıştır. Bu yapı, 3.02 Å global çözünürlükte tek parçacıklı kriyo-elektron mikroskobisi ile belirlenmiş kolin bağlı insan FLVCR1'i temsil etmektedir (EMDB erişim numarası: EMD-42110). Deneysel olarak belirlenmiş yapı, FLVCR1'in substrat bağlı konformasyonunu içermesi ve böylece fizyolojik olarak ilgili ligand bağlama boşluğunu tanımlamak için yapısal bilgi sağlaması nedeniyle seçilmiştir. Reseptör hazırlığı sırasında, substrat giriş ve ligand bağlama bölgesini çevreleyen yapısal ortamı korumak için birlikte çözünürlüğe sahip kolin (CHT) ve kolesterol hemisüksinat (Y01) molekülleri tutulmuştur. Kenetleme arama alanı, birlikte çözünürlüğe sahip kolin bağlama bölgesini kapsayacak şekilde FLVCR1 substrat/ligand bağlama boşluğu etrafında tanımlanmıştır. Izgara kutusu x = 160.587 Å, y = 160.613 Å ve z = 160.484 Å noktasına merkezlenmiştir. Kenetleme kutusunun boyutları, substrat bağlama boşluğunun ve onu çevreleyen kalıntıların yeterince kapsanmasını sağlamak için [X × Y × Z Å] olarak ayarlanmıştır. Aday bileşikler daha sonra bu önceden tanımlanmış bağlama bölgesine kenetlenmiştir. Kenetleme pozları, öngörülen bağlanma afinitelerine göre sıralanmış olup, daha negatif kenetleme skorları daha elverişli öngörülen ligand–FLVCR1 etkileşimlerini göstermiştir. En üst sırada yer alan bileşikler, sonraki bağlanma modu ve protein–ligand etkileşim analizleri için seçilmiştir.
Moleküler dinamik simülasyonu ve MM/GBSA bağlanma serbest enerjisi hesaplaması
Öngörülen protein-ligand kompleksini daha ayrıntılı incelemek için moleküler dinamik (MD) simülasyonu kullanılmıştır (bkz. Malzeme Tablosu). Ligand topolojisi, Genel Amber Kuvvet Alanı (GAFF) parametrelerinin atanması ve kısıtlanmış elektrostatik potansiyel (RESP) yüklerinin dahil edilmesiyle hazırlanmıştır. Kompleks daha sonra Amber99SB-ILDN kuvvet alanı ile tanımlanmış, 3 noktalı su modeline sahip aktarılabilir bir moleküller arası potansiyele yerleştirilmiş ve üç Na⁺ iyonu ile nötralize edilmiştir. En dik iniş (steepest-descent) enerji minimizasyonunun ardından sistem, her aşamada 100.000 adım ile önce sabit parçacık sayısı, hacim ve sıcaklık topluluğu (NVT) altında 100 ps, ardından sabit parçacık sayısı, basınç ve sıcaklık topluluğu (NPT) altında başka bir 100 ps boyunca dengelenmiştir. Sonrasında, 300 K ve 1 bar'da, 2 fs zaman adımı kullanılarak 100 ns'lik bir üretim çalışması gerçekleştirilmiştir. Elde edilen yörünge; karekök ortalama sapma (RMSD), karekök ortalama dalgalanma (RMSF), jirasyon yarıçapı (Rg), çözücüye erişilebilir yüzey alanı (SASA), hidrojen bağı kalıcılığı ve moleküler mekanik/genelleştirilmiş Born yüzey alanı (MM/GBSA) bağlanma serbest enerjisi açısından analiz edilmiştir.
Hücre kültürü
NHDF normal insan dermal fibroblast hücre hattı ve PKF primer keloid fibroblast hücre hattı; %2 fetal calf serum, rekombinant insan temel fibroblast büyüme faktörü (1 ng/mL) ve insülin (5 µg/mL) ile takviye edilmiş fibroblast büyüme ortamında kültüre edildi. Her iki hücre hattı da %5 CO₂ içeren, 37 °C'ye ayarlanmış nemlendirilmiş bir inkübatörde tutuldu ve %80–90 konfluense ulaştıklarında pasajlandı.
Western blot analizi
Toplam protein; radyoimmünopresipitasyon analizi, fenilmetilsülfonil florür, bir proteaz inhibitör kokteyli ve fosfataz inhibitörlerinden oluşan bir lizis tamponu ile NHDF ve PKF hücrelerinden izole edildi. Protein konsantrasyonu bir bisinsininik asit analizi ile belirlendikten sonra, eşit miktardaki proteinler sodyum dodekilsülfat-poliakrilamid jel elektroforezi ile ayrıştırıldı ve bir poliviniliden florür membrana aktarıldı. Membran, Tween/Tris-tamponlu saline içinde hazırlanan %5 yağsız kuru süt ile oda sıcaklığında 90 dk boyunca bloklandı ve ardından FLVCR1 (tavşan poliklonal, 1:1.000) ve GAPDH (fare monoklonal, 1:20.000) karşıtı primer antikorlar ile 4 °C'de gece boyunca inkübe edildi. Ertesi gün, sekonder antikor ile inkübasyon oda sıcaklığında 90 dk boyunca gerçekleştirildi. Bant yoğunlukları ImageJ ile ölçüldü ve göreceli protein seviyeleri GAPDH iç kontrolüne göre normalize edildi. Her western blot analizi için en az üç bağımsız biyolojik tekrar kullanıldı.
Gerçek zamanlı floresan kantitatif ters transkripsiyon PCR (qRT-PCR) analizi
Toplam RNA, referans verilen kit ile NHDF ve PKF hücrelerinden hazırlandı. Ardından, referans verilen qPCR için cDNA Sentez Karışımı (dsDNase içeren) ile cDNA üretildi. qRT-PCR işlemi bir real-time PCR sisteminde gerçekleştirildi ve FLVCR1 ekspresyonu referans verilen SYBR Green Fast Mix ile ölçüldü. Normalizasyon için iç referans olarak GAPDH mRNA kullanıldı. Her qRT-PCR reaksiyonu teknik olarak üç tekrar şeklinde yürütüldü ve göreceli mRNA seviyeleri 2−ΔΔCt yöntemiyle hesaplandı. Her deney bağımsız olarak en az üç kez gerçekleştirildi ve primer dizileri Ek Tablo S2'de sunulmuştur.
İstatistiksel analiz
Grup farkları Wilcoxon sıra toplamı testi ile test edildi ve değerler ortalama ± standart sapma (SD) olarak raporlandı. Sürekli değişkenler arasındaki ilişkiler Pearson korelasyon katsayısı kullanılarak incelendi. P < 0,05 olan sonuçlar istatistiksel olarak anlamlı kabul edildi. Anlamlılık düzeyleri ns, P > 0,05; *, P < 0,05; **, P < 0,01; ***, P < 0,001 ve ****, P < 0,0001 olarak belirtildi.
Sonuçlar
Bir makine öğrenimi algoritması kullanarak keloid için aday tanısal biyobelirteçlerin taranması
Bu çalışmaya toplam 283 hem metabolizmasıyla ilişkili gen dahil edilmiştir. Keloid ve normal cilt dokularını karşılaştıran GSE44270 veri setinin diferansiyel ekspresyon analizi, anlamlı düzeyde diferansiyel ekspresyon gösteren 25 gen belirlemiştir (Şekil 1A ve Ek Tablo S3). Hastalıkla ilişkili biyobelirteçleri daha ayrıntılı taramak amacıyla yapılan LASSO regresyonu ile 9 aday gen tanımlanmış (Şekil 1B,C ve Ek Tablo S3), rastgele orman (RF) algoritması ise yüksek öngörü önemine sahip 11 gen seçmiştir (Şekil 1D ve Ek Tablo S3). LASSO ve RF sonuçları arasındaki örtüşme bir Venn diyagramı kullanılarak görselleştirilmiş ve sonuç olarak FLVCR1, TMCC2, EIF2AK1, XK, HPX ve KEL olmak üzere altı temel biyobelirteç elde edilmiştir (Şekil 1E ve Ek Tablo S3). GSE44270 kohortunda yapılan alıcı işletim karakteristiği (ROC) analizi, altı biyobelirtecin tamamı için başarılı bir tanısal performans ortaya koymuştur; AUC değerleri FLVCR1 için 0.8016, TMCC2 için 0.7063, EIF2AK1 için 0.7817, XK için 0.7460, HPX için 0.7500 ve KEL için 0.7857 olarak bulunmuştur (Şekil 1F). Bu altı biyobelirtece dayanarak, R dilindeki rms paketi kullanılarak keloid için bir tanısal nomogram oluşturulmuştur (Şekil 1G).
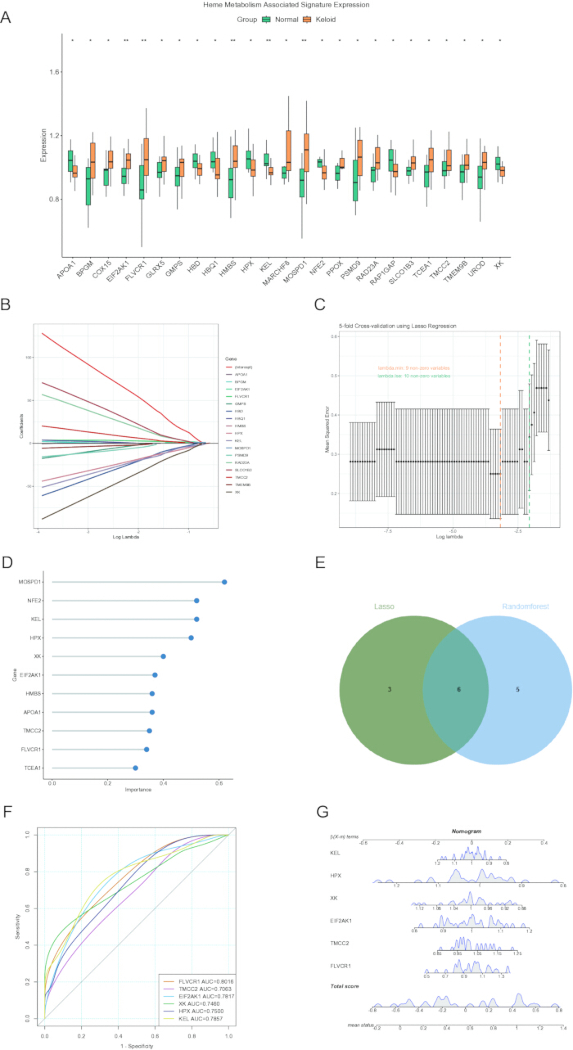
Şekil 1: Makine öğrenimi algoritmaları kullanılarak keloid ile ilişkili aday hem metabolizmasıyla ilgili genlerin tanımlanması. (A) Keloid ve normal dokular arasında hem metabolizmasıyla ilgili genlerin diferansiyel ekspresyonunu gösteren kutu grafiği. (B,C) Aday diyagnostik markerların taranması için LASSO lojistik regresyon analizi. (D) RF algoritması tarafından seçilen aday biyobelirteçler. (E) İki makine öğrenimi algoritması tarafından tanımlanan örtüşen genleri gösteren Venn diyagramı. (F) Aday biyobelirteçlerin diyagnostik performansını değerlendiren ROC eğrisi analizi. (G) Altı gen imzasına dayalı keloid öngörüsü için nomogram. Kısaltmalar: LASSO, least absolute shrinkage and selection operator; RF, random forest; ROC, receiver operating characteristic. İstatistiksel anlamlılık: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ve ****, P < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tanısal nomogramın öngörü performansı, hem eğitim kohortunda (GSE44270) hem de doğrulama kohortunda (GSE7890) değerlendirilmiştir. Model, sırasıyla 0,984 (%95 GA: 0,950–1,000) ve 0,922 (%95 GA: 0,806–1,000) AUC değerlerine ulaşarak mükemmel tanısal doğruluk göstermiştir (Şekil 2A,D). Altı genli tanısal imzanın sağlamlığını ve potansiyel aşırı öğrenme (overfitting) durumunu daha ayrıntılı değerlendirmek amacıyla, keşif kohortunda (GSE44270) ek dahili doğrulama analizleri gerçekleştirilmiştir. Beş katlı çapraz doğrulama, alt kümeler arasında 0,925 ortalama AUC ile tutarlı bir ayırt edici performans sergilemiş ve bu durum, modelin eğitim örneklerindeki varyasyonlara rağmen stabil bir sınıflandırma performansı koruduğunu göstermiştir. Ayrıca, 1.000 yeniden örnekleme yinelemesi ile yapılan bootstrap doğrulaması 0,930 ortalama AUC (%95 GA: 0,794–1,000) sağlamıştır. Sınırlı örneklem boyutunun neden olduğu potansiyel iyimserlik (optimism) için yapılan düzeltme sonrası, iyimserlikten arındırılmış AUC 0,930 olarak kalmış; bu da altı genli imzanın tanısal performansının dahili doğrulama sonrası nispeten stabil olduğunu göstermiştir. Dahası, karar eğrisi analizi (DCA), sınırlı örneklem boyutu nedeniyle bulguların dikkatle yorumlanması gerekse de, nomogramın bir dizi eşik olasılığı boyunca alternatif tanı stratejilerine göre daha yüksek potansiyel net fayda sergilediğini ortaya koymuştur (Şekil 2B,E). Ek olarak, keloid örnekleri hem eğitim hem de doğrulama kohortlarında sağlıklı kontrollere göre anlamlı derecede daha yüksek risk skorları sergilemiş (Şekil 2C,F), bu da tanısal modelin stabilitesini ve güvenilirliğini daha da kanıtlamıştır.
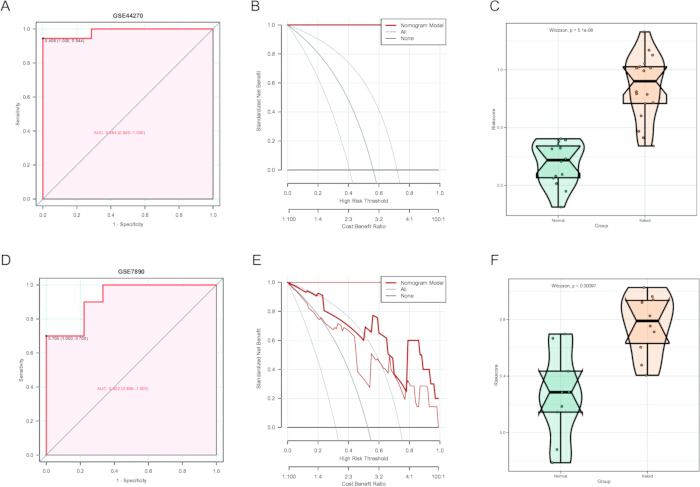
Şekil 2: Keloid öngörüsü için nomogramın doğrulanması. (A) GSE44270 veri setinde nomogramın öngörücü performansını değerlendiren ROC eğrisi. (B) GSE44270'de nomogramın klinik faydasını değerlendiren DCA. (C) GSE44270'deki keloid ve sağlıklı örnekleri karşılaştıran risk skoru dağılımı. (D) Bağımsız GSE7890 veri setinde nomogramın öngörücü performansını değerlendiren ROC eğrisi. (E) GSE7890'da nomogramın klinik faydasını değerlendiren DCA. (F) GSE7890'daki keloid ve sağlıklı örnekleri karşılaştıran risk skoru dağılımı. Kısaltmalar: ROC = alıcı işletim karakteristiği; DCA = karar eğrisi analizi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tanısal biyobelirteçler keloidin bağışıklık özellikleri ile ilişkilidir
Altı tanısal biyobelirteç ile immün mikroçevre arasındaki ilişkiyi araştırmak amacıyla, biyobelirteç ekspresyonu ile immün hücre infiltrasyonu arasındaki ilişkileri değerlendirmek için korelasyon analizi gerçekleştirilmiştir. Sonuçlar, altı biyobelirtecin tamamının birden fazla infiltre immün hücre popülasyonu ile anlamlı düzeyde ilişkili olduğunu ortaya koymuştur (Şekil 3A). Özellikle, FLVCR1 ekspresyonu, T foliküler yardımcı hücrelerle negatif ilişkiliydi (Şekil 3B). TMCC2 doğal öldürücü hücreler ve aktive olmuş dendritik hücrelerle pozitif korelasyon gösterirken, olgunlaşmamış dendritik hücreler ve olgunlaşmamış B hücreleri ile negatif korelasyon göstermiştir (Şekil 3C–F). Ayrıca, EIF2AK1 ekspresyon, CD56 ile negatif yönde ilişkiliydiboyut doğal öldürücü hücreler (Şekil 3G), öte yandan XK eosinofillerle negatif ilişkiliydi (Şekil 3H).
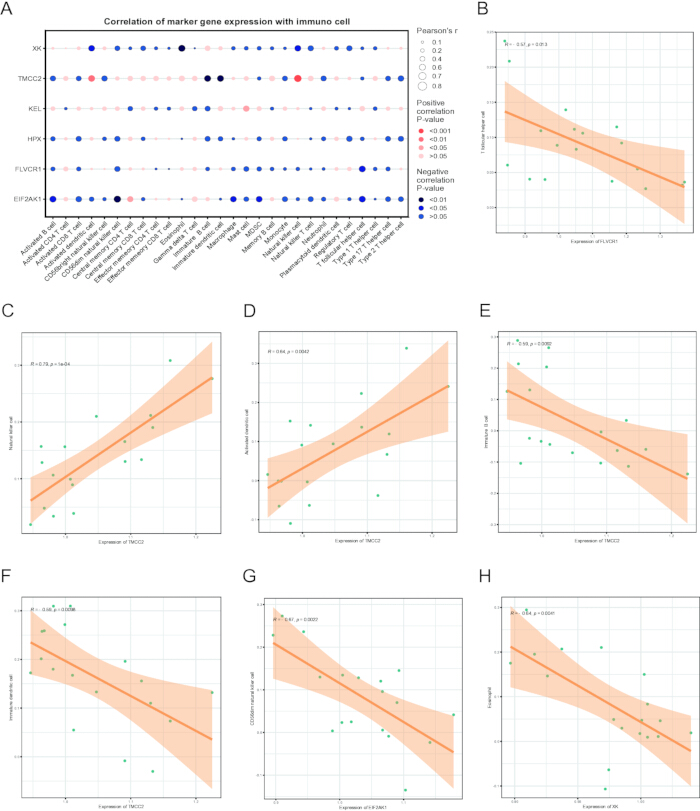
Şekil 3Aday hem metabolizmasıyla ilişkili genler ile immün hücre infiltrasyonu arasındaki korelasyon. (A) Aday genler ile bağışıklık hücresi popülasyonları arasındaki korelasyonları gösteren ısı haritası. Kırmızı pozitif korelasyonları, mavi ise negatif korelasyonları göstermektedir. (B). Arasındaki korelasyon FLVCR1 ekspresyonu ve T foliküler yardımcı hücreler. (C-F) Arasındaki korelasyonlar TMCC2 sırasıyla ekspresyon ve doğal öldürücü hücreler, aktive dendritik hücreler, immatür dendritik hücreler ve immatür B hücreleri. (G) Arasındaki korelasyon EIF2AK1 ekspresyonu ve CD56dim doğal öldürücü hücreler. (H). Arasındaki korelasyon XK ekspresyon ve eozinofiller. Kısaltmalar: FLVCR1 = kedi lösemi virüsü alt grubu C reseptörü 1; TMCC2 = transmembran ve sarmal-bobin bölgeleri 2; EIF2AK1 = ökaryotik translasyon başlatma faktörü 2 alfa kinaz 1; CD56boyut = farklılaşma kümesi 56 dim. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
Tek hücreli transkriptom veri analizi
Tanımlanan diyagnostik biyobelirteçlerin keloid mikroçevresindeki ekspresyon modellerini karakterize etmek için GSE163973 tek hücre RNA sekanslama veri setini analiz ettik. Kalite kontrol ve veri entegrasyonunun ardından, sonraki analizler için 21.488 yüksek kaliteli hücre tutuldu. Toplam benzersiz moleküler tanımlayıcı (UMI) sayıları 200'den az veya 6.000'den fazla olan hücreler hariç tutuldu ve potansiyel dubletler DoubletDetection paketi kullanılarak belirlenip çıkarıldı. En yüksek ekspresyon değişkenliği gösteren 2.000 gen seçildi ve ardından boyut indirgeme ve Uniform Manifold Approximation and Projection (UMAP) ile görselleştirme yapıldı. Endotelyal hücreler, fibroblastlar, kas lifleri, keratinositler, bağışıklık hücreleri, lenfatik endotelyal hücreler, glandüler hücreler, nöral hücreler, melanositler ve sınıflandırılmamış bir hücre popülasyonu dahil olmak üzere toplam 10 ana hücre popülasyonu belirlendi (Şekil 4A,B). Ekspresyon profilleme, diyagnostik biyobelirteçlerin hücre tipine özgü belirgin dağılım modellerini ortaya çıkardı. FLVCR1 ağırlıklı olarak endotelyal hücrelerde ve melanositlerde eksprese edilirken, EIF2AK1 nöral hücrelerde, glandüler hücrelerde ve fibroblastlarda nispeten yüksek ekspresyon gösterdi. HPX temel olarak melanositlerde zenginleşmişken, KEL glandüler hücrelerde baskın ekspresyon sergiledi (Şekil 4C,D).
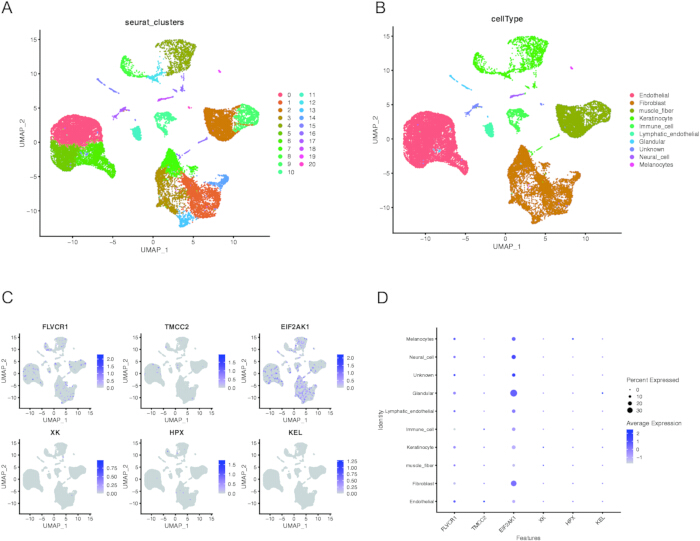
Şekil 4: Keloid tek hücre transkriptomunda hem metabolizmasıyla ilişkili tanısal biyobelirteçlerin dağılımı. (A) Keloid örneklerinden alınan 21.488 hücreden oluşan 21 hücre kümesini gösteren UMAP grafiği. (B) Orijinal çalışmada rapor edilen açıklamalara dayalı hücre tipi anotasyonları. (C) Farklı hücre tipleri genelinde hem metabolizmasıyla ilişkili tanısal biyobelirteçlerin ekspresyonunu gösteren özellik grafikleri. (D) Farklı hücre tipleri genelinde hem metabolizmasıyla ilişkili tanısal biyobelirteçleri eksprese eden hücrelerin yüzdelerini ve ortalama ekspresyon seviyelerini gösteren balon grafiği. Kısaltma: UMAP = uniform manifold approximation and projection. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Aday tanısal biyobelirteçlerin tanımlanması ve etkileşim ağı analizi
Aday tanısal biyobelirteçlerin temelindeki düzenleyici mekanizmaları incelemek için bir miRNA–mRNA düzenleyici ağı oluşturulmuştur. Öngörülen etkileşimlerin güvenilirliğini artırmak amacıyla, aday biyobelirteçleri hedefleyen örtüşen miRNA'lar belirlenmiştir. Altı tanısal biyobelirteç ile etkileşime giren toplam 282 miRNA elde edilmiş olup, ortaya çıkan düzenleyici ağ Şekil 5'te gösterilmiştir. Özellikle hsa-miR-34a-5p, hsa-let-7a-5p, hsa-let-7d-5p, hsa-let-7e-5p ve hsa-miR-26b-5p'nin altı aday biyobelirtecin tamamını eş zamanlı olarak düzenlediği öngörülmüştür.
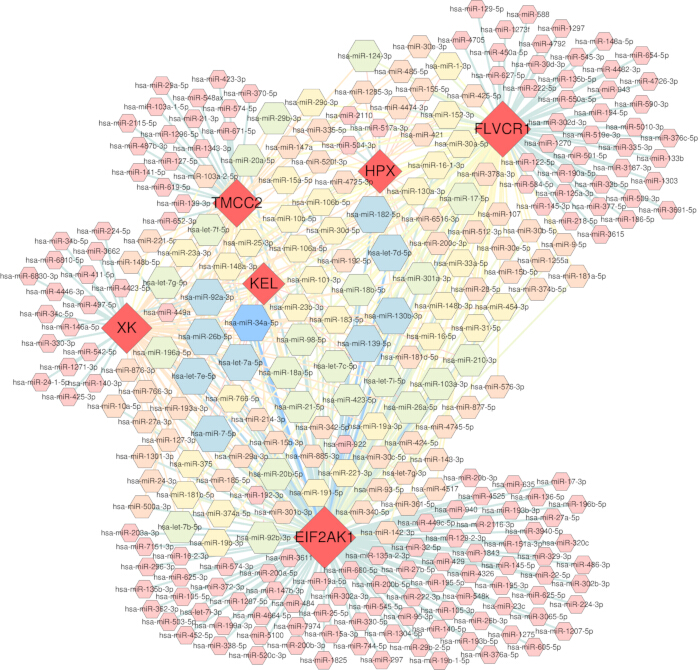
Şekil 5: Hem metabolizmasıyla ilişkili diyagnostik biyobelirteçlerin miRNA düzenleyici ağı. Ağ, altı diyagnostik biyobelirteç geni (FLVCR1, HPX, TMCC2, KEL, XK ve EIF2AK1) ile bunlarla ilişkili miRNA'lar arasındaki düzenleyici ilişkileri göstermektedir. Gen düğümleri diyagnostik biyobelirteçleri, çevreleyen düğümler ise miRNA'ları temsil eder. Kenarlar, deneysel olarak desteklenen miRNA–mRNA etkileşimlerini belirtir. Kısaltmalar: FLVCR1 = feline leukemia virus subgroup C receptor 1; HPX = hemopexin; TMCC2 = transmembrane and coiled-coil domains 2; KEL = Kell metallo-endopeptidase; XK = X-linked Kx blood group; EIF2AK1 = eukaryotic translation initiation factor 2 alpha kinase 1; miRNA = mikroRNA; mRNA = haberci RNA. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
FLVCR1 ekspresyonunun deneysel doğrulaması ve potansiyel terapötik bileşiklerin moleküler kenetleme analizi
Biyoinformatik bulguları doğrulamak ve tanımlanan merkez genin fonksiyonel ilgisini teyit etmek amacıyla, PKF ve NHDF'de FLVCR1 ekspresyonunu deneysel olarak değerlendirdik. Hem qRT-PCR hem de western blot analizleri, FLVCR1'in keloid fibroblastlerinde normal kontrollere kıyasla anlamlı düzeyde artırıldığını tutarlı bir şekilde göstermiştir (Şekil 6A–C, Ek Şekil S1 ve Ek Tablo S4). Bu artmış hücresel ekspresyon, FLVCR1 ile ilişkili hem metabolik disregülasyonun keloid patogenezindeki potansiyel rolünü desteklemektedir.
FLVCR1'in hem metabolizmasıyla ilişkili immün değişikliklerdeki potansiyel rolü göz önüne alındığında, bir sonraki aşamada bu patojenik ekseni kesmek amacıyla doğrudan FLVCR1'i hedefleyebilecek potansiyel terapötik bileşiklerin belirlenmesi hedeflenmiştir. Hazırlanan protein yapısı ve bir geleneksel Çin tıbbı (TCM) bileşik kütüphanesi kullanılarak yüksek çıktılı sanal tarama gerçekleştirilmiştir. En elverişli docking skorlarına sahip 20 bileşik, ileri değerlendirme için seçilmiştir (Ek Tablo S5). Genel olarak, daha düşük bağlanma enerjisi daha güçlü bir bağlanma afinitesini gösterir ve −5 kcal/mol altındaki docking enerjileri stabil ligand-protein etkileşimlerinin göstergesi olarak kabul edilir. Taranan bileşikler arasında (+)-Gallocatechin, (−)-Epicatechin, (−)-Gallocatechin ve Cyanidin (klorür), FLVCR1'e karşı elverişli bağlanma afiniteleri sergilemiştir. Özellikle (+)-Gallocatechin; GLU214, ASN245, GLN246 ve GLN471 ile dört hidrojen bağı oluşturarak FLVCR1 ile en güçlü etkileşimi göstermiş ve bu durum stabil bir ligand-protein bağlanma moduna işaret etmiştir (Şekil 6D–G). Bu bulgular, (+)-gallocatechin'in FLVCR1'i hedefleyen mekanizma tabanlı terapötik müdahale için gelecek vadeden bir aday olduğunu vurgulamaktadır.
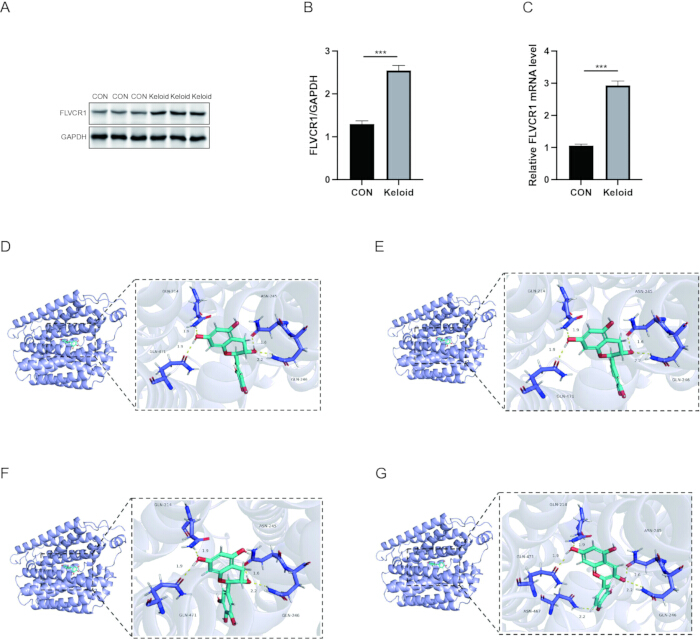
Şekil 6: FLVCR1 ekspresyonunun deneysel doğrulaması ve FLVCR1'i hedefleyen potansiyel bileşiklerin moleküler kenetlenmesi. (A) CON ve keloid örneklerinde FLVCR1 protein ekspresyonunu gösteren temsili western blot görüntüleri. GAPDH yükleme kontrolü olarak kullanılmıştır. (B) GAPDH'ye göre normalize edilmiş FLVCR1 protein düzeylerinin kantifikasyonu. (C) CON ve keloid fibroblastlarında FLVCR1'in göreli mRNA ekspresyon düzeyleri qRT-PCR ile belirlenmiştir. GAPDH internal referans olarak kullanılmıştır. (D–G) FLVCR1 ile seçilen küçük moleküllü bileşikler arasındaki öngörülen bağlanma modlarının üç boyutlu temsilleri: (D) (+)-Gallocatechin. (E) (-)-Epicatechin. (F) (-)-Gallocatechin. (G) Cyanidin (Chloride). Kısaltmalar: FLVCR1 = feline leukemia virus subgroup C receptor 1; CON, kontrol; GAPDH, glyceraldehyde-3-phosphate dehydrogenase; qRT-PCR, quantitative reverse transcription polymerase chain reaction; SD, standart sapma. Veriler ortalama ± SD olarak sunulmuştur. İstatistiki anlamlılık: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ve ****, P < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Moleküler dinamik simülasyonu ile FLVCR1–(+)-Gallocatechin kompleksinin stabilitesinin doğrulanması
Tahmin edilen ligand–protein bağlanma modunun güvenilirliğini incelemek için FLVCR1–(+)-gallocatechin kompleksi için moleküler dinamik (MD) simülasyonu gerçekleştirilmiştir. Analiz; RMSD, RMSF, jiro yarıçapı (Rg), SASA, hidrojen bağı analizi ve MM/GBSA hesaplamaları kullanılarak, kompleksin zamanla yapısal olarak stabil kalıp kalmadığına ve ligand bağlanmasının proteinin konformasyonel davranışını değiştirip değiştirmediğine odaklanmıştır. RMSD analizi (Şekil 7A), hem apo proteinin hem de liganda bağlı kompleksin ilk 20 ns içinde başlangıç dalgalanmaları yaşadığını, ardından kademeli bir stabilizasyon gerçekleştiğini göstermiş ve bu durum sistemlerin simülasyon sırasında dengeye ulaştığına işaret etmiştir. Dengelenmeden sonra, FLVCR1–(+)-Gallocatechin kompleksinin RMSD değeri 0.2 nm'nin altında kalmış ve bu da ligand bağlanmasının FLVCR1'in yapısal stabilitesinin korunmasına katkıda bulunduğunu göstermiştir. RMSF analizi (Şekil 7B), kalıntıların çoğunun simülasyon boyunca sınırlı dalgalanmalar sergilediğini göstererek genel protein bütünlüğünün korunduğuna işaret ederken, birkaç esnek bölge ligand yerleşiminde rol oynayan loop bölgelerini temsil etmiş olabilir. Ayrıca, stabil Rg ve SASA profilleri (Şekil 7C,D), kompleksin belirgin bir yapısal genişleme veya çözücü maruziyetinde değişiklik olmaksızın kompakt bir konformasyonu koruduğunu göstermiştir. Hidrojen bağı analizi (Şekil 7E), FLVCR1–(+)-Gallocatechin kompleksinin simülasyon sırasında yaklaşık 3–4 hidrojen bağı ile kalıcı intermoleküler etkileşimleri sürdürdüğünü ortaya koyarak ligand–protein birlikteliğinin stabilitesini desteklemiştir. MM/GBSA analizi ayrıca, FLVCR1–(+)-Gallocatechin kompleksinin elverişli bir bağlanma serbest enerjisi (ΔGtotal = −34.87 ± 4.13 kcal/mol) sergilediğini göstermiştir (Ek Tablo S6). Enerji ayrıştırma analizi, polar solvatasyon enerjisinden gelen elverişsiz katkıya (ΔGsolvation = 25.55 ± 0.74 kcal/mol) rağmen (Ek Tablo S6), van der Waals etkileşimlerinin (ΔVDWAALS = −46.34 ± 2.16 kcal/mol) ve elektrostatik etkileşimlerin (ΔEelec = −14.09 ± 3.45 kcal/mol) bağlanmaya temel elverişli katkılar olduğunu göstermiştir. Toplu olarak, bu MD simülasyon sonuçları (+)-Gallocatechin'in FLVCR1 ile stabil bir kompleks oluşturduğunu kanıtlamış ve docking ile tahmin edilen bağlanma modunun güvenilirliğini daha da desteklemiştir.
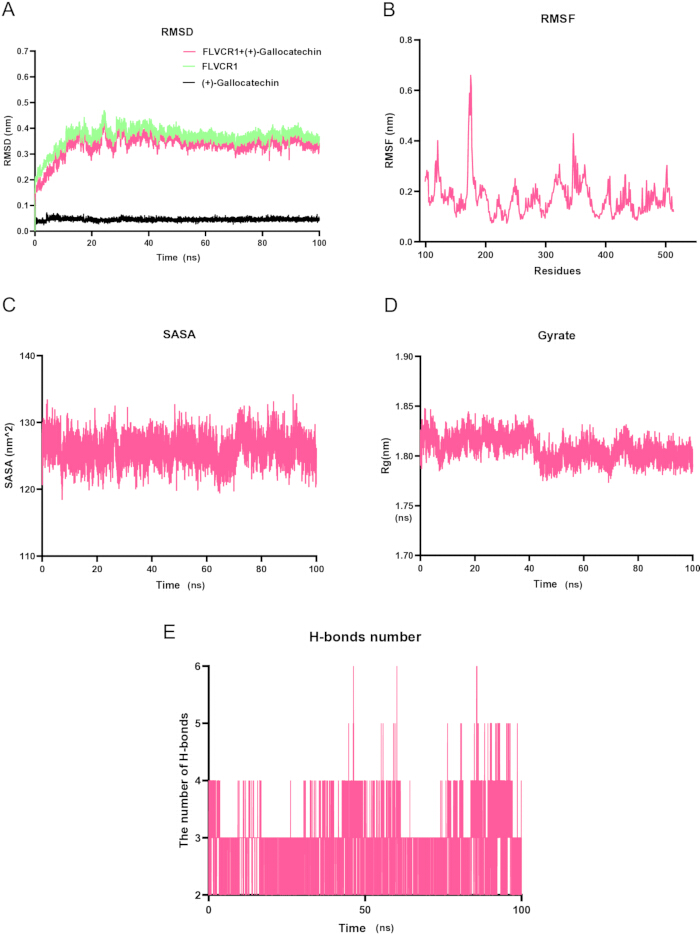
Şekil 7: FLVCR1–(+)-Gallocatechin kompleksinin moleküler dinamik simülasyon analizi. (A) 100 ns süren moleküler dinamik simülasyonu sırasında apo FLVCR1 ve FLVCR1–(+)-Gallocatechin kompleksinin RMSD profilleri. (B) Simülasyon sırasında FLVCR1'in kalıntı düzeyindeki dalgalanmalarını gösteren RMSF profili. (C) FLVCR1–(+)-Gallocatechin kompleksinin çözücüye erişilebilir yüzey alanındaki değişimleri gösteren SASA profili. (D) Simülasyon sırasında FLVCR1–(+)-Gallocatechin kompleksinin kompaktlığını değerlendiren Rg profili. (E) Simülasyon boyunca FLVCR1 ve (+)-Gallocatechin arasındaki dinamik moleküller arası etkileşimleri gösteren hidrojen bağı analizi. Kısaltmalar: FLVCR1 = feline leukemia virus subgroup C receptor 1; RMSD = root mean square deviation; RMSF = root mean square fluctuation; SASA = solvent-accessible surface area; Rg = radius of gyration. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Veri Kullanılabilirliği:
Bu çalışmada analiz edilen halka açık transkriptomik veri setlerine Gene Expression Omnibus (GEO) üzerinden GSE44270, GSE7890 ve GSE163973 erişim numaraları ile ulaşılabilir. qRT-PCR ölçümleri, orijinal western blot görüntüleri ve western blot kantifikasyon verileri dahil olmak üzere, bu çalışmada üretilen ve deneysel doğrulamaya temel oluşturan kaynak veriler Ek Şekil S1, Ek Tablo S1, Ek Tablo S2, Ek Tablo S3 ve Ek Tablo S4 olarak sunulmuştur. Moleküler kenetlenme sonuçları ve MM/GBSA bağlanma serbest enerjisi verileri ise Ek Tablo S5 ve Ek Tablo S6'da verilmiştir.
Ek Şekil S1: Western blotting orijinal verileri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo S1: Hem metabolizması ile ilişkili genler.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo S2: Seçilen genlerin primer dizileri. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo S3: Keloidde potansiyel tanısal biyobelirteçlerin belirlenmesi için makine öğrenimi yaklaşımları.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo S4: FLVCR1 ekspresyonunun deneysel doğrulamasını destekleyen ham veriler.Bu dosyayı indirmek için lütfen buraya tıklayınız.
Ek Tablo S5: FLVCR1 ile moleküler kenetleme yoluyla belirlenen en iyi 20 aday bileşik.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo S6: FLVCR1–(+)-Gallocatechin kompleksinin MM/GBSA bağlanma serbest enerjisi analizi.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma; keloid oluşumunda bozulmuş hem metabolizması, FLVCR1 ekspresyonu ve immün mikroçevre değişiklikleri arasında potansiyel bir ilişkiyi tanımlamaktadır. Bulk ve tek hücreli transkriptomik verileri entegre ederek, FLVCR1'in hem ihracat eksikliğini patolojik immün yeniden programlama ile ilişkilendiren moleküler bir bağlantı noktası olduğunu saptadık ve keloidi, yeni ortaya çıkan "metabo-fibrotik" bozukluklar spektrumuna konumlandırdık23,24,25. FLVCR1'in potansiyel önemi, birden fazla analitik düzeydeki yakınsak kanıtlarla desteklenmektedir. Bulk transkriptomik, keloid dokularında güçlü bir tanısal kapasiteyle beraber anlamlı bir yukarı regülasyon olduğunu ortaya koyarken; tek hücre çözünürlüklü haritalama, ekspresyonun ağırlıklı olarak endotel hücrelerinde ve melanositlerde lokalize olduğunu göstermiştir; bu iki hücre tipi, sırasıyla aberrant anjiyogenez ve hiperpigmentasyon yoluyla keloid patogenezinde kritik rol oynamaktadır26,27. En çarpıcı şekilde, FLVCR1 ekspresyonu, fibrotik mikroçevrelerde Th2'ye eğilimli immüniteyi ve kolajen birikimini desteklediği giderek daha fazla kabul edilen bir lenfosit alt kümesi olan T foliküler yardımcı (Tfh) hücreleri ile güçlü bir negatif korelasyon sergilemiştir28. Önceki çalışmalar, FLVCR1 aracılı hem ihracatının dendritik hücre maturasyonu ve antijen sunumu ile ilişkili olduğunu göstermiş29, bu da FLVCR1 ile ilişkili hem homeostazı ile immün regülasyon arasında potansiyel bir bağlantı olduğunu düşündürmüştür. Dolayısıyla, gözlemlenen FLVCR1 yukarı regülasyonu ve Tfh hücre infiltrasyonu ile olan negatif korelasyonu, potansiyel olarak IL-4 ve IL-13 gibi Tfh ile ilişkili profibrotik sitokinleri içeren immün homeostazdaki değişiklikleri yansıtıyor olabilir29,30,31.
Ayrıca, FLVCR1 disfonksiyonundan kaynaklanan hücre içi hem birikiminin, hemin hasarla ilişkili bir moleküler patern (DAMP) olarak steril inflamasyonu tetiklediği ve hepatik fibroziste iyi belgelenmiş bir mekanizma olan NLRP3 inflamozomunu aktive ettiği düşünülmektedir32,33,34. Bu tür bir inflamozom aktivasyonu, IL-1β/IL-18 salınımını teşvik ederek TLR4/NF-κB sinyalleri aracılığıyla M2 makrofaj polarizasyonunu yönlendirecek ve oksidatif stres ile fibroblast aktivasyonundan oluşan kendi kendini sürdüren bir döngü oluşturacaktır35,36. Topluca bu veriler, FLVCR1'in keloidde bir aday biyobelirteç ve hem metabolizması-immün etkileşimlerine olası bir katkı sağlayıcı olduğunu desteklemektedir; ancak önerilen mekanik kaskad doğrudan fonksiyonel doğrulama gerektirmektedir. Hücre içi hem retansiyonu öncelikle oksidatif hasarı indükler ve inflamozomu aktive eder, bu dale ardından dendritik hücre disfonksiyonuna yol açarak foliküler yardımcı T hücrelerine ve Th2 tipi immün yanıtlara doğru kaymayı teşvik eder; bu immün sapma, makrofaj polarizasyonunu M2 fenotipine doğru daha fazla yönlendirerek nihayetinde fibroblast aktivasyonuna ve fibrogenezin ilerlemesine yol açar.
FLVCR1'in tek başına etkisinin ötesinde, altı biyobelirtecin tamamının sinerjik disregülasyonu, birden fazla düzenleyici düğümde hem homeostasisinin koordineli bir şekilde çöktüğünü ortaya koymaktadır. Aktive olmuş dendritik hücrelerle pozitif, ancak olgunlaşmamış alt kümelerle negatif korelasyon gösteren TMCC2, hem stresi ortamında immün yetkinliği geri kazandırmaya çalışan kompanzatuar bir mekanizmayı temsil ediyor olabilir37,38. Keloid fibroblastlerinde ve glandüler hücrelerde yüksek düzeyde eksprese edilen EIF2AK1, protein sentezini küresel olarak baskılarken stres yanıt genlerini seçici olarak yukarı regüle etmek için eIF2α'yı fosforile eden, hem fazlalığının doğrudan moleküler sensörü olarak görev yapar39,40,41. Bu durum, EIF2AK1'i hem akümülasyonunu fibroblast fenotipik değişimine dönüştüren kritik köprü olarak konumlandırır ve keloid fibroblastlerinin apoptoza karşı neden artmış direnç ve abartılı kolajen üretimi sergilediğini potansiyel olarak açıklar42,43,44. Birincil plazma hem temizleyicisi olan HPX, melanositlerde kısıtlı ekspresyon göstermiştir; bu da pigment açısından zengin kompartmanlarda hem toksisitesini tamponlamaya yönelik hücre-otonom bir girişimi düşündürmektedir45,46,47. XK ve KEL'in eş zamanlı disregülasyonu, eritroid serisi hem işleme mekanizmasını keloid patogenezine daha fazla dahil etmektedir; bu bulgu, keloidlerin neden sıklıkla mikrohemorajili travma bölgelerinde ortaya çıktığını anlamak açısından ilgi çekici çıkarımlara sahiptir. Bu altı geni bağımsız belirteçler olarak görmek yerine, onların kolektif disregülasyonunu; bozulmuş dışa aktarım (FLVCR1), algılama (EIF2AK1), temizleme (HPX) ve membran trafiğinin (XK, KEL) pro-fibrotik, hem açısından zengin bir mikroçevre oluşturmak üzere birleştiği, sistem çapında bir hem kompartmanizasyon yetmezliğinin kanıtı olarak yorumluyoruz.
Bu metabolik-immün model, etkileyici bir epigenetik katmanla daha da güçlendirilmektedir: belirli miRNA'ların (örneğin, let-7 ailesi ve miR-34a-5p) aşağı regülasyonunun, hem hem metabolizmasıyla ilişkili hem de fibrotik yolakların baskılanmasını aynı anda kaldırabileceği bir ceRNA ağı tanımladık; ancak bu düzenleyici modelin daha fazla doğrulanması gerekmektedir23. Tek hücreli analizin sağladığı uzamsal çözünürlük, bu sürecin temelindeki hücresel koreografiyi aydınlatmakta ve yapısal hücrelerdeki metabolik disfonksiyonun, parakrin hem sinyali yoluyla immün hücrelerce zengin mikroçevreyi nasıl aktif olarak oluşturduğunu göstermektedir; böylece anlayışımızı bir "toplu doku" perspektifinden dinamik bir hücresel ekosistem modeline dönüştürmektedir48,49,50. Endotelial hem birikimi, hem oksijenaz-1 indüksiyonu ve adezyon moleküllerinin yukarı regülasyonu aracılığıyla vasküler sızıntıyı ve lökosit ekstravazasyonunu teşvik ederek keloidde gözlemlenen immün hücrelerce zengin mikroçevrenin oluşmasına neden olabilir51,52,53. Eş zamanlı olarak, melanositlerdeki FLVCR1 ekspresyonu, keloid hiperpigmentasyonuna ilişkin klinik gözlemlerle uyumludur ve pigmenter ve fibrotik yolaklar arasında paylaşılan —muhtemelen oksidatif stres yanıtları tarafından aracılık edilen— metabolik hassasiyetlere işaret etmektedir54,55. Bu uzamsal haritalama, anlayışımızı bir "toplu doku" perspektifinden, yapısal hücrelerdeki (endotel, melanositler) metabolik disfonksiyonun parakrin hem sinyali yoluyla immün hücre davranışını aktif olarak şekillendirdiği bir hücresel ekosistem modeline dönüştürmektedir.
Translasyonel bir bakış açısıyla, altı biyobelirtecin tamamını entegre eden nomogramımız, herhangi bir tekil belirteci önemli ölçüde geride bırakarak neredeyse mükemmel bir tanısal doğruluk elde etmiş ve karar eğrisi analizi yoluyla belirgin bir klinik net fayda göstermiştir. Daha dikkat çekici bir şekilde, moleküler kenetlenme, yeşil çayda ve geleneksel Çin tıbbi bitkilerinde bol miktarda bulunan biyoaktif bir polifenol olan (+)-gallocatechin'in; GLU-214, ASN-245, GLN-246 ve GLN-471 ile stabil hidrojen bağları oluşturan, yüksek afiniteli bir FLVCR1 ligandı olduğunu belirlemiştir. Kateşinlerin kolajen sentezini baskıladığına, transforme edici büyüme faktörü-beta 1 sekresyonunu inhibe ettiğine ve keloid fibroblastlarında oksidatif stresi azalttığına dair önceki kanıtlar göz önüne alındığında, bu bulgu özellikle ikna edicidir56,57,58. (+)-gallocatechin'in, hem kapasitesini artırmak için FLVCR1 konformasyonunu stabilize edebileceği ve böylece fibrozisin metabolik tetikleyicisini kaynağında kesebileceği hipotezini kuruyoruz; bu strateji, yalnızca aşağı akışta kolajen üretimini baskılayan mevcut terapilerden temel olarak farklıdır. Bu tür bir metabolik müdahalenin keloid nüksünü etkileyip etkileyemeyeceği, daha fazla deneysel ve klinik doğrulamayı gerektirmektedir.
Elbette, bu çalışmanın da kısıtlılıkları bulunmaktadır. İlk olarak, analizlerimiz büyük ölçüde hesaplamalı düzeyde kalmıştır ve FLVCR1 ekspresyonu ile T foliküler yardımcı (Tfh) hücre infiltrasyonu arasında gözlemlenen ilişki doğrudan bir nedensellik kurmamaktadır. FLVCR1'in immün düzenlemedeki potansiyel rolünü açıklığa kavuşturmak için Tfh hücrelerinin akış sitometrisi ile doğrulanması ve keloid fibroblastlerinde FLVCR1 nakavt veya aşırı ekspresyonunu içeren fonksiyonel çalışmaların yanı sıra fibroblast-immün hücre etkileşimi veya kondisyonlu ortam analizleri gereklidir. İkinci olarak, nispeten küçük örneklem boyutu, altı genli imzanın tahmini performansı konusunda belirsizliğe ve aşırı iyimserliğe yol açabilir. Dahili doğrulama yapılmış olsa da, tanısal performansın ve kalibrasyonun güvenilir değerlendirmesi sınırlı kalmaktadır. Bu nedenle, altı genli panel, daha büyük ve bağımsız kohortlarda daha fazla doğrulama gerektiren keşifsel bir moleküler imza olarak değerlendirilmelidir. Üçüncü olarak, hasta arası heterojenliği ve nadir hücre popülasyonlarını daha iyi yakalayabilmek için tek hücreli veri setinin genişletilmesi gerekmektedir. Dördüncü olarak, biyobelirteç ekspresyonunun protein düzeyinde doğrulanması ve immünohistokimya yoluyla mekansal lokalizasyonun belirlenmesi, bulgularımızın klinik geçerliliğini güçlendirecektir. Son olarak, moleküler kenetlenme (+)-gallocatechin ile FLVCR1 arasında potansiyel bir bağlanma olduğunu öne sürse de, klinik uygulamadan önce in vitro bağlanma analizleri ve in vivo etkinlik çalışmaları gereklidir. Bu kısıtlılıklara rağmen bulgularımız, FLVCR1 ile ilişkili hem metabolizmasını keloiddeki immün değişikliklerle ilişkilendiren çok boyutlu bir çerçeve sunmakta ve daha ileri araştırmalar için potansiyel moleküler biyobelirteçler ile terapötik adaylar tanımlamaktadır.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Yazarların katkıları
Qiuyan Yang çalışmanın tasarımına katkıda bulunmuştur. Jianping Zhang veri toplama sürecine katkıda bulunmuştur. Qiuyan Yang ve Xiaofang Sun istatistiksel analize katkıda bulunmuşlardır. Qiuyan Yang ve Jing Wang diyagramların oluşturulmasına ve taslağın tamamlanmasına katkıda bulunmuşlardır. Tüm yazarlar taslağın nihai versiyonunu okumuş ve onaylamışlardır.
Teşekkürler
GSE44270, GSE7890 ve GSE163973 veri setlerini oluşturup Gene Expression Omnibus (GEO) veri tabanı aracılığıyla kamuya açık olarak paylaşan araştırmacılara teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| AmberTools | Amber Project | https://ambermd.org/AmberTools.php | Versiyon 22; GAFF kuvvet alanı kullanılarak ligand parametrelerinin oluşturulması |
| Anti-FLVCR1 | Proteintech | 26841-1-AP | |
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| AutoDock Vina | The Scripps Research Institute | https://vina.scripps.edu/ | Versiyon 1.2.3; Moleküler kenetleme ve ligand bağlama afinitesinin tahmini |
| AutoDockTools | The Scripps Research Institute | https://ccsb.scripps.edu/autodocksuite/adt/ | Versiyon 1.5.6; Moleküler kenetleme için ligand ve reseptör hazırlığı |
| BCA protein assay kit | Servicebio | G2026 | |
| dsDNase içeren qPCR için cDNA sentez karışımı | UnionScript | qRT-PCR için ters transkripsiyon | |
| ChemBio3D | PerkinElmer | https://revvitysignals.com/products/research/chemdraw | Versiyon 14.0; Ligandların 3D konformasyonel optimizasyonu ve enerji minimizasyonu |
| Kemilüminesans görüntüleme sistemi | Western blot bantlarının görselleştirilmesi | ||
| DoubletDetection paketi | GitHub / JonathanShor | https://github.com/JonathanShor/DoubletDetection | scRNA-seq analizinde öngörülen dubletlerin tespiti ve kaldırılması |
| ECL kemilüminesans substratı | Western blot sinyal tespiti | ||
| Fetal sığır serumu | Final konsantrasyonu 2%; Fibroblast kültür medyumu için takviye | ||
| Fibroblast Growth Medium 2 | PromoCell | C-23020 | |
| FLVCR1 ve GAPDH primerleri | Ek Tablo S2 | Hedef ve referans genlerin qRT-PCR amplifikasyonu | |
| Gaussian | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W; Ligand parametrizasyonu için RESP atomik yüklerinin hesaplanması |
| Jel elektroforez cihazı | SDS-PAGE protein ayrımı | ||
| GEOquery paketi | Bioconductor | https://bioconductor.org/packages/GEOquery/ | Versiyon 2.68.0; GEO veritabanından gen ekspresyonu ve meta verilerin alınması |
| ggplot2 paketi | CRAN | https://cran.r-project.org/package=ggplot2 | Versiyon 4.0.2; Veri görselleştirme |
| glmnet paketi | CRAN | https://cran.r-project.org/package=glmnet | Versiyon 4.1.10; LASSO özellik seçimi |
| GROMACS | GROMACS Development Team | https://www.gromacs.org/ | Versiyon 2022.3; Moleküler dinamik simülasyonları ve trajektori analizi |
| GS AntiQ qPCR SYBR Green Fast Mix (Universal) | Genesand | SQ410 | |
| GSE163973 | GEO database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE163973 | 3 keloid örneği; Tek hücreli ekspresyon analizi |
| GSE44270 | GEO database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE44270 | 18 keloid ve 14 normal örnek; Diferansiyel ekspresyon ve biyobelirteç taraması |
| GSE7890 | GEO database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE7890 | 10 keloid ve 9 normal örnek; Tanısal biyobelirteçlerin bağımsız doğrulaması |
| GSVA paketi | Bioconductor | https://bioconductor.org/packages/GSVA/ | Versiyon 1.48.3; ssGSEA tabanlı immün hücre infiltrasyonu analizi |
| HRP-konjuge keçi anti-fare IgG | Abcam | ab97040 | |
| HRP-konjuge keçi anti-tavşan IgG | Abcam | ab97051 | |
| Nemlendirilmiş CO2 inkübatörü | 37 °C, %5 CO2; NHDF ve PKF hücrelerinin sürdürülmesi | ||
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Western blot bant yoğunluğunun kantifikasyonu |
| İnsülin | Final konsantrasyonu 5 μg/mL; Fibroblast kültür medyumu için takviye | ||
| Molecular Signatures Database (MSigDB) | Broad Institute | https://www.gsea-msigdb.org/gsea/msigdb | Versiyon 2024.1.Hs; Hem metabolizması ile ilişkili gen setlerinin kaynağı |
| NetworkAnalyst | NetworkAnalyst | https://www.networkanalyst.ca/ | Versiyon 3.0; miRNA-mRNA etkileşim ağının oluşturulması |
| NHDF | Procell | CP-H106 | |
| Yağsız kuru süt | %5 çözelti; Western blot analizi için membran bloklama | ||
| Optik sızdırmazlık filmi veya kapaklar | qRT-PCR reaksiyonlarının kapatılması | ||
| PBS | Procell | PB180327 | |
| PDB ID: 8UBZ | RCSB PDB | https://www.rcsb.org/structure/8UBZ | İnsan FLVCR1 yapısı; Yapı tabanlı sanal tarama için FLVCR1 protein yapısının kaynağı |
| Fosfataz inhibitörleri | Protein lizis tamponu için takviye | ||
| PKF | Procell | GCP-H235 | |
| PMSF | Servicebio | G2008-1ML | |
| pROC paketi | CRAN | https://cran.r-project.org/package=pROC | Versiyon 1.19.0.1; ROC eğrisi ve AUC analizi |
| Proteaz inhibitör kokteyli | Roche | 4693124001 | |
| Protein transfer cihazı | Proteinlerin PVDF membrana transferi | ||
| PVDF membran | Millipore | IPVH08100 | |
| PyMOL | Schrödinger, LLC | https://pymol.org/ | Versiyon 2.6.1; Protein-ligand kenetleme pozlarının ve moleküler etkileşimlerin görselleştirilmesi ve analizi |
| qRT-PCR plakaları veya tüpleri | qRT-PCR reaksiyon kurulumu | ||
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | Versiyon 4.3.1; İstatistiksel ve biyoinformatik analizler |
| randomForest paketi | CRAN | https://cran.r-project.org/package=randomForest | Versiyon 4.7.1.2; Rastgele orman özellik seçimi |
| REACTOME_HEME_BIOSYNTHESIS; REACTOME_HEME_DEGRADATION; WIKIPATHWAYS_HEME_BIOSYNTHESIS; REACTOME_SCAVENGING_HEME_FROM_PLASMA; HALLMARK_HEME_METABOLISM | Molecular Signatures Database (MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | Versiyon 2024.1.Hs; Birleştirme sonrası 283 benzersiz gen; Hem metabolizması ile ilişkili genlerin tanımı |
| Real-time PCR sistemi | qRT-PCR amplifikasyonu ve tespiti | ||
| Rekombinant insan bazal fibroblast büyüme faktörü | Final konsantrasyonu 1 ng/mL; Fibroblast kültür medyumu için takviye | ||
| RIPA tamponu | Servicebio | G2002 | |
| rms paketi | CRAN | https://cran.r-project.org/package=rms | Versiyon 6.7.1; Nomogram oluşturma |
| SDS-PAGE reaktifleri veya dökülmüş jeller | SDS-PAGE ile protein ayrımı | ||
| Seurat paketi | CRAN | https://satijalab.org/seurat/ | Versiyon 5.4.0; scRNA-seq ön işleme, kümeleme ve görselleştirme |
| TarBase | DIANA Tools | https://carolina.imis.athena-innovation.gr/diana_tools/ | Versiyon 9.0; Deneysel olarak desteklenen miRNA-mRNA etkileşimlerinin kaynağı |
| Total RNA Kit II | Omega | R6934-01 | |
| Geleneksel Çin tıbbı aktif bileşik kütüphanesi | Sanal tarama için aday bileşiklerin kaynağı | ||
| Tween/Tris-tamponlu salin | Bloklama tamponu hazırlama ve membran yıkama | ||
| UnionScript First-strand cDNA Synthesis Mix for qPCR (with dsDNase) | Genesand | SR511 |
Kaynaklar
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.