Diyabetik farelerde sekiz haftalık koşu bandı egzersizi; kardiyak, intestinal bariyer ve Nlrp3 ile ilişkili transkripsiyonel değişikliklerin yanı sıra, özellikle Akkermansia muciniphila artışı olmak üzere değişmiş gut mikrobiyotası ile ilişkilendirilmiştir.
Araştırma makalesi
Koşu Bandı Egzersizi, Diyabetik Farelerde Bağırsak Bariyeri ve Kardiyak Nlrp3 Gen Ekspresyon Değişiklikleri ile İlişkilidir
Bu makalede
Özet
Özet
Bu çalışma, diyabetik bir fare modelinde egzersiz, bağırsak bariyeri ile ilişkili gen ekspresyonu ve kardiyak Nlrp3 inflamazomla ilişkili gen ekspresyonu arasındaki ilişkileri araştırmıştır. Erkek C57BL/6J farelerde, düşük doz streptozotocin ile kombine edilmiş yüksek yağlı diyet kullanılarak metabolik düzensizlik indüklenmiş ve ardından 8 haftalık treadmill egzersizi uygulanmıştır (5° eğim, 12 m/min, günde 20–50 dk, haftada 5 gün). Sedanter diyabetik farelerle karşılaştırıldığında, egzersiz yapan farelerde daha düşük açlık glukozu, insülin direnci ve serum lipid seviyeleri ile birlikte daha yüksek kolonik Occludin mRNA ekspresyonu (relatif ekspresyon: diyabetik farelerde 0,38 ± 0,04, egzersiz yapan farelerde 0,79 ± 0,05, P < 0,001), daha düşük kardiyak Nlrp3, IL-1β, TNF-α, Col1a1, ve Tgfb1 mRNA ekspresyonu ve daha düşük bir Bax/Bcl-2 mRNA oranı (3,06 ± 0,19'a karşı 1,48 ± 0,10, P < 0,001) görülmüştür. Seçilen altı taksonun dışkı qPCR analizi, egzersizin Akkermansia muciniphila (0,31 ± 0,04'ten 0,84 ± 0,07'ye) ve Lactobacillus (0,48 ± 0,05'ten 1,01 ± 0,07'ye) relatif bolluklarının artması ve Escherichia coli (3,84 ± 0,33'ten 1,68 ± 0,13'e, P < 0,01) bolluğunun azalması ile ilişkili olduğunu göstermiştir. Egzersiz yapan farelerde, A. muciniphila bolluğu ile kardiyak Nlrp3 mRNA ekspresyonu arasında negatif korelasyon saptanmıştır (R = −0,81, P = 0,0046). Bu korelasyonel bulgular, diyabetik farelerde egzersiz, kardiyak ve intestinal transkripsiyonel değişiklikler ile seçili bağırsak mikrobiyal taksonları arasındaki ilişkileri göstermekte ancak nedensel ilişkiler kurmamaktadır. Tüm moleküler bulgular mRNA seviyesindeki değişikliklerle sınırlıdır ve bağırsak bariyeri fonksiyonunu, inflamazom aktivasyonunu, miyokardiyal fibrozisi, apoptozu veya diğer fonksiyonel veya protein seviyesindeki etkileri kanıtlamamaktadır.
Giriş
Diabetes mellitus, büyüyen küresel bir sağlık tehdididir ve diyabetik kardiyak komplikasyonlar, sınırlı spesifik tedavileri olan ciddi durumlar olmaya devam etmektedir1,2,3,4. Egzersiz eğitimi, diyabetik hayvan modellerinde kardiyak fonksiyonu iyileştirebilir5,6, ancak altta yatan mekanizmalar, özellikle bağırsak mikrobiyotası ve intestinal bariyeri içerenler, henüz tam olarak anlaşılamamıştır.
Bağırsak mikrobiyotası, konakçının metabolizmasını ve immünitesini düzenler7. Diyabette, bağırsak disbiyozu ve bozulmuş bariyer bütünlüğü, lipopolisakkarit (LPS) translokasyonunu artırabilir, TLR4 aracılı inflamasyonu teşvik edebilir ve miyokardiyal hasarı şiddetlendirebilir8,9. Bağırsak kaynaklı bu inflamatuar yük, kardiyak disfonksiyon da dahil olmak üzere diyabetik komplikasyonların ilerlemesine katkıda bulunabilir. Akkermansia ve Faecalibacterium gibi faydalı bakteriler azalabilirken, E. coli gibi bakteriler artabilir10,11. Bu tür mikrobiyal değişiklikler, lokal bağırsak inflamasyonuna ve sistemik endotoksemiye katkıda bulunarak kalp dahil uzak organları potansiyel olarak etkileyebilir. NLRP3 inflamozomu, diyabetik kardiyak patolojide kardiyak inflamasyonun önemli bir mediyatörüdür ve aktivasyonu bağırsak mikrobiyal metabolitleri tarafından modüle edilebilir12,13. Belirli mikrobiyal ürünlerin, özellikle kısa zincirli yağ asitlerinin ve LPS'nin, NLRP3 priminglemesi ve birleşimi üzerinde zıt etkileri vardır; bu durum, bağırsak mikrobiyal ortamı ile miyokardiyal inflamatuar durum arasında potansiyel bir ilişki olduğunu göstermektedir.
Egzersiz, bağırsak mikrobiyotasını değiştirebilir ve bağırsak bariyer fonksiyonunu iyileştirebilir14,15, ancak diyabetik modellerde egzersiz, bağırsak bariyeri ile ilişkili gen ekspresyonu ve kardiyak NLRP3 inflamazom ile ilişkili gen ekspresyonu arasındaki ilişkiler tam olarak anlaşılamamıştır. Bağırsak epitelyumu, lüminal mikroplar ile sistemik dolaşım arasında bir arayüz görevi görür ve bu nedenle bağırsak mikrobiyotasındaki değişiklikler ile kardiyak inflamatuar yanıtlar arasındaki ilişkilere katkıda bulunabilir. Buna rağmen, diyabetik modellerde egzersizle indüklenen bağırsak bariyeri değişiklikleri, NLRP3 inflamazom aktivasyonu ve kardiyak koruma arasında nedensel bir ilişkiyi kuran doğrudan deneysel kanıtlar hala eksiktir.
Bu nedenle, koşu bandı egzersizinin diyabetik farelerde kardiyak transkripsiyonel değişiklikler, seçili bağırsak mikrobiyal taksonların değişimi, bağırsak bariyeriyle ilgili gen ekspresyonunun korunması ve kardiyak NLRP3 inflamozomla ilgili gen ekspresyonunun azalması ile ilişkili olacağı hipotezi kurulmuştur. Düşük doz streptozotocin ile kombine edilmiş yüksek yağlı bir diyet kullanılarak diyabetik fare modeli oluşturulmuş ve ardından 8 haftalık koşu bandı egzersizi müdahalesi uygulanmıştır. Değerlendirmeler; metabolik parametreleri, kolonik Occludin mRNA ekspresyonunu, kardiyak NLRP3 inflamozomla ilgili gen ekspresyonunu ve inflamatuar, fibrotik ve apoptotik gen ekspresyon markerlarını içermiştir. Bağırsak mikrobiyotasındaki egzersize bağlı değişiklikleri değerlendirmek için seçili bağırsak mikrobiyal taksonlar da nicelendirilmiştir. Seçili bağırsak mikrobiyal taksonlar, bağırsak bariyeriyle ilgili gen ekspresyonu ve kardiyak transkripsiyonel markerlar arasındaki ilişkileri incelemek için korelasyon analizleri kullanılmıştır. Bu analizler, nedensel bir bağırsak bariyeri-NLRP3 mekanizması kurmaktan ziyade ilişkileri belirlemek amacıyla tasarlanmıştır.
Protokol
Tüm hayvan prosedürleri, uluslararası bir laboratuvar hayvan bakımı akreditasyon kuruluşu tarafından akredite edilmiş bir hayvan tesisinde gerçekleştirilmiştir. Protokol, tesisin Kurumsal Hayvan Bakım ve Kullanım Komitesi (IACUC; onay kimliği: VS212500103) tarafından incelenmiş ve onaylanmıştır. Ana kurumda bu spesifik model için lisanslı bir hayvan tesisi bulunmadığından, deneyler onaylı bir harici tesiste yürütülmüştür.
Diyabetik fare modelinin oluşturulması
Erkek C57BL/6J fareler (8 haftalık, spesifik patojenden arındırılmış derece, vücut ağırlığı 20–22 g), standart yem ve suya serbest erişimle, kontrollü koşullar altında (22 ± 2 °C, %50 ± 10 bağıl nem, 12 saatlik ışık/karanlık döngüsü) 1 hafta boyunca alıştırılmıştır.
Alıştırma döneminin ardından fareler, rastgele sayılar tablosu kullanılarak rastgele bir şekilde normal kontrol grubuna (Kontrol, n = 10) veya diyabet indüksiyon grubuna ayrıldı. Deneysel prosedürler ve sonuç ölçümleri, grup dağılımından haberdar olmayan araştırmacılar tarafından gerçekleştirildi. Hayvanlar, spesifik patojen içermeyen koşullar altında, zenginleştirilmiş altlığa sahip standart polikarbonat kafeslerde her kafese dört adet gelecek şekilde barındırıldı. Östrus döngüleri ile ilişkili potansiyel değişkenliği en aza indirmek ve yüksek yağlı diyet/STZ modelinin erkeklerde daha tutarlı metabolik fenotipler üretmesi nedeniyle yalnızca erkek fareler kullanıldı.
Diyabet indüksiyonu uygulanan fareler, 4 hafta boyunca yüksek yağlı diyetle (kcal'nin %60'ı yağdan) beslenmiş, ardından 5 ardışık gün boyunca intraperitonal streptozotosin (STZ; vücut ağırlığı başına 30 mg/kg) enjeksiyonlarına tabi tutulmuştur. STZ, 0.1 mol/L sitrat tamponu (pH 4.5) içinde taze olarak çözülmüş, ışıktan korunmuş ve hazırlandıktan sonraki 15 dk içinde uygulanmıştır. Kontrol farelerine eşit hacimlerde sitrat tamponu verilmiştir. Son enjeksiyondan bir hafta sonra, 6 saatlik açlığın ardından kuyruk ucundan alınan kandan açlık kan glukozu (FBG) ölçülmüştür. FBG düzeyi ≥ 11.1 mmol/L olan fareler diyabetik olarak kabul edilmiştir. Bu fareler, diyabete bağlı gen ekspresyonu değişikliklerinin gelişmesine olanak sağlamak için ek 4 hafta boyunca yüksek yağlı diyetle beslenmeye devam etmiştir.
Toplam 35 fareye model indüksiyonu uygulanmış ve bunlardan 28'i diyabet kriterlerini karşılamıştır. Vücut ağırlığı ve gıda alımı haftalık olarak izlenmiş ancak dışlama kriteri olarak kullanılmamıştır. Modelleme veya müdahale aşamalarında hiçbir hayvan ölmemiş veya dışlanmamıştır. Başarıyla modellenen fareler, rastgele bir diyabet grubuna (DM, n = 10) ve bir egzersiz müdahale grubuna (DM+Ex, n = 10) ayrılmıştır. Nihai örneklem büyüklüğü, tüm analizlerde her bir fare deneysel birim olacak şekilde grup başına n = 10 olarak belirlenmiştir.
Koşu bandı egzersizi müdahalesi
DM+Ex grubundaki fareler, 8 hafta boyunca haftada 5 gün, 5° eğimde ve 12 m/min hızda koşu bandı egzersizi yapmıştır. Tüm egzersiz seansları saat 09:00 ile 11:00 arasında gerçekleştirilmiştir. Müdahale öncesinde fareler, 0° eğimde günde 5 dk boyunca 6 m/min hızla 3 gün boyunca koşu bandına alıştırılmıştır. Her egzersiz seansı, 6 m/min hızda 5 dk ısınma ve 6 m/min hızda 5 dk soğuma aşamalarını içermiştir. Koşmayı teşvik etmek için hafifçe dürtme yöntemi kullanılmış, elektriksel stimülasyona başvurulmamıştır.
Günlük koşu süreleri 1. haftada 20 min, 2. haftada 25 min, 3. haftada 30 min, 4. haftada 35 min, 5. haftada 40 min, 6. haftada 45 min ve 7–8. haftalarda 50 min olarak uygulanmıştır. Elleçleme ve çevresel maruziyeti kontrol etmek amacıyla, kontrol ve DM fareleri eşdeğer sürelerle sabit koşu bantlarına yerleştirilmiştir. Önceden tanımlanmış dışlama kriteri, öngörülen egzersiz seanslarının %80'inden fazlasını tamamlayamama olarak belirlenmiştir. Hiçbir hayvan bu kriteri karşılamamıştır; tüm hayvanlar öngörülen egzersiz seanslarını tamamlamış ve herhangi bir advers olay gözlemlenmemiştir.
Numune toplama
Son egzersiz seansından on iki saat sonra, fareler 6 s boyunca aç bırakılmış ve izofluran inhalasyonu ile anestezi uygulanmıştır (%3 indüksiyon ve %100 O₂ altında 1 L/dk akış hızında %1,5–2 idame). Retro-orbital venöz pleksustan yaklaşık 500 µL kan toplanmış, oda sıcaklığında 30 dk boyunca pıhtılaşmaya bırakılmış ve 4 °C'de 15 dk boyunca 3.000 × g hızda santrifüj edilmiştir. Elde edilen serum −80 °C'de saklanmıştır.
Fareler daha sonra derin anestezi altında servikal dislokasyonla ötanize edildi. Kalpler hızla çıkarıldı ve buz gibi soğuk fosfat tamponlu salin (PBS) ile yıkandı. Sol ventrikül dokusu izole edildi; bir kısmı RNA ekstraksiyonu için sıvı azot içinde şok donduruldu ve −80 °C'de saklandı, kalan doku ise %4'lük paraformaldehit ile fikse edildi. Yaklaşık 1 cm distal kolon dokusu toplandı, PBS ile yıkandı, şok donduruldu ve −80 °C'de saklandı. Kafes kontaminasyonunu en aza indirmek için taze dışkı örnekleri sabah 09:00 ile 10:00 saatleri arasında doğrudan rektumdan toplandı, steril tüplere aktarıldı ve toplandıktan sonra 15 dakika içinde −80 °C'de saklandı.
Serum biyokimyasal ölçümleri
FBG, bir kan glukoz ölçüm sistemi kullanılarak ölçülmüştür. Serum insülini enzimle bağışlı immünosorbent analizle belirlenmiş, toplam kolesterol ve trigliseridler ise otomatik bir biyokimyasal analizör kullanılarak ölçülmüştür. İnsülin direnci, homeostatik model değerlendirmesi kullanılarak hesaplanmıştır: HOMA-IR = FBG (mmol/L) × insülin (mIU/L)/22.5.
Miyokard dokusundan RNA ekstraksiyonu ve gerçek zamanlı kantitatif PCR
Yaklaşık 30 mg sol ventrikül dokusu, fenol-guanidinyum bazlı bir RNA ekstraksiyon reajeninde homojenize edildi ve toplam RNA, reajen protokolüne uygun olarak ekstrakte edildi. RNA konsantrasyonu ve saflığı spektrofotometrik olarak değerlendirildi ve 1,8–2,0 arası A260/A280 oranı kabul edilebilir olarak değerlendirildi. Toplam RNA (1 µg), tamamlayıcı DNA'ya (cDNA) ters transkripsiyonla çevrildi.
Kantitatif PCR (qPCR), floresan DNA-bağlayıcı qPCR master mix, her birinden 0.4 µmol/L ileri ve geri primerler ile 2 µL cDNA kalıbı içeren 20 µL'lik bir reaksiyon karışımında gerçekleştirilmiştir. Amplifikasyon koşulları 95 °C'de 30 saniye, ardından 95 °C'de 5 saniye ve 60 °C'de 34 saniye şeklinde 40 döngü olarak uygulanmıştır. Amplifikasyon özgüllüğünü doğrulamak için 65–95 °C aralığında erime eğrisi analizi yapılmıştır. Tüm reaksiyonlar çift örnek (duplicate) olarak gerçekleştirilmiş; kalıpsız (no-template) ve ters transkripsiyonsuz (no-reverse-transcription) kontroller eklenmiştir. Tüm primer çiftleri için amplifikasyon verimlilikleri %90–105 arasında değişmiştir. Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 ve Gapdh için kullanılan primerler Tablo 1'de listelenmiştir. Relatif gen ekspresyonu 2−ΔΔCt yöntemi kullanılarak hesaplanmış ve Kontrol grubuna göre kat değişimi (fold change) olarak ifade edilmiştir.
Fekal mikrobiyota DNA ekstraksiyonu ve qPCR kantifikasyonu
Toplam mikrobiyal DNA, bir dışkı DNA ekstraksiyon protokolü kullanılarak dışkı örneklerinden izole edildi. Seçilen altı bakteriyel taksonun—Faecalibacterium prausnitzii, Akkermansia muciniphila, Lactobacillus cinsi, Bifidobacterium cinsi, Escherichia coli ve Desulfovibrio cinsi—nispi bollukları, Tablo 1'de listelenen taksona özgü primerler kullanılarak qPCR ile belirlendi. Toplam bakteriyel bolluk için referans olarak üniversal bakteriyel 16S rRNA primerleri kullanıldı.
Bağıl bolluk, referans olarak toplam bakteriyel 16S rRNA kullanılarak 2−ΔΔCt yöntemiyle hesaplandı ve Kontrol grubuyla normalize edildi. Amplifikasyon verimliliğini doğrulamak için, bilinen konsantrasyonlardaki plazmit DNA'nın seri dilüsyonları kullanılarak her bir hedef için standart eğriler oluşturuldu. Tüm reaksiyonlar, erime eğrisi analizi ile birlikte çift örnekle (duplicate) gerçekleştirildi. Bakteriyel taksonlar 16S rRNA gen kopya sayısı açısından farklılık gösterdiğinden, sonuçlar mutlak kopya sayıları yerine 2−ΔΔCt bağıl bolluğu olarak raporlandı.
Kolonik Occludin ekspresyonunun değerlendirilmesi
Yukarıda açıklandığı üzere, toplam RNA ekstraksiyonu ve cDNA sentezi için yaklaşık 30 mg kolonik doku işlendi. Occludin mRNA ekspresyonu, şu primerler kullanılarak qPCR ile ölçüldü: ileri, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; geri, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Dahili referans olarak Gapdh kullanıldı ve bağıl ekspresyon 2−ΔΔCt yöntemi kullanılarak hesaplandı.
İstatistiksel analiz
Veriler ortalama ± standart sapma (SD) olarak sunulmuştur. Normallik Shapiro-Wilk testi ile, varyansların homojenliği ise Levene testi ile değerlendirilmiştir. Parametrik varsayımları karşılayan gruplar arası veriler, tek yönlü varyans analizi (ANOVA) ve ardından post hoc ikili karşılaştırmalar için Tukey'nin dürüst anlamlı fark (HSD) testi kullanılarak analiz edilmiştir. İki grup arasındaki karşılaştırmalar, eşleştirilmemiş çift kuyruklu Student t-testi ile gerçekleştirilmiştir.
Değişkenler arasındaki ilişkileri değerlendirmek için Spearman sıra korelasyonu kullanılmıştır. Korelasyon ısı haritası için, deneysel grup kontrol edilerek kısmi Spearman korelasyonları hesaplanmıştır. P değerleri, Benjamini-Hochberg yanlış keşif oranı (FDR) prosedürü kullanılarak çoklu karşılaştırmalar için ayarlanmış ve FDR ile düzeltilmiş P < 0.05 istatistiksel olarak anlamlı kabul edilmiştir. Uygulanabilir olan yerlerde etki büyüklükleri (ANOVA için Cohen's f ve korelasyonlar için r) ve temel ortalama farklar için %95 güven aralıkları rapor edilmiştir. Tüm istatistiksel analizler, istatistiksel hesaplama yazılımı (versiyon 4.2.0) kullanılarak gerçekleştirilmiştir.
Sonuçlar
Koşu bandı egzersizi, diyabetik farelerde metabolik anomalilerin iyileşmesiyle ilişkilendirilmiştir
Kontrol grubuyla karşılaştırıldığında, diyabetik fareler anlamlı derecede daha yüksek açlık kan glukozu (18.23 ± 0.61'e karşı 6.03 ± 0.21 mmol/L, P < 0.001), serum insülini (16.30 ± 1.04'e karşı 8.23 ± 0.38 mIU/L, P < 0.001), HOMA-IR (13.19 ± 1.18'e karşı 2.21 ± 0.17, P < 0.001), toplam kolesterol (4.62 ± 0.23'e karşı 2.01 ± 0.09 mmol/L, P < 0.001) ve trigliserid (2.12 ± 0.15'e karşı 0.80 ± 0.08 mmol/L, P < 0.001) değerleri sergilemiştir. 8 haftalık koşu bandı egzersiz müdahalesinin ardından, bu parametreler diyabetik farelerle karşılaştırıldığında sırasıyla 12.03 ± 0.63 mmol/L, 10.61 ± 0.71 mIU/L, 5.69 ± 0.67, 3.09 ± 0.24 mmol/L ve 1.20 ± 0.14 mmol/L seviyelerine gerilemiştir (P < 0.01 veya P < 0.001); ancak değerlerin çoğu Kontrol grubundakilerden daha yüksek kalmaya devam etmiştir (Şekil 1A–E). Tek yönlü ANOVA, tüm parametreler için anlamlı grup etkileri göstermiştir (tüm F(2,27) > 25.0, P < 0.001).
Egzersiz eğitimi, daha yüksek kolonik Occludin mRNA ekspresyonu ve daha düşük kardiyak inflamozomla ilişkili gen ekspresyonu ile ilişkilendirilmiştir
Diyabetik farelerde, kolonik Occludin mRNA ekspresyonu Kontrol grubuna göre yaklaşık %62 daha düşüktü (0,38 ± 0,04'e karşı 1,00 ± 0,06, P < 0,001). Eş zamanlı olarak, kardiyak Nlrp3, Il1b ve Tnfa mRNA ekspresyonları, Kontrol değerlerinin sırasıyla 5,6 katı, 6,5 katı ve 5,1 katına yükseldi (tüm P < 0,001). Egzersiz müdahalesinin ardından, Occludin mRNA ekspresyonu 0,79 ± 0,05'e yükselirken (P < 0,001, diyabetik farelere kıyasla), Nlrp3, Il1b ve Tnfa mRNA ekspresyonları sırasıyla 2,30 ± 0,21, 2,66 ± 0,25 ve 2,14 ± 0,17'ye geriledi (tüm P < 0,001, diyabetik farelere kıyasla; Şekil 2A–D).
Egzersiz, daha düşük miyokardiyal fibrozis ve apoptoz ile ilişkili gen ekspresyonu ile ilişkilendirilmiştir
Diyabetik grup, Kontrol grubu ile karşılaştırıldığında, fibrozla ilişkili Col1a1 (4,46 ± 0,29-kat, P < 0,001) ve Tgfb1 (4,17 ± 0,24-kat, P < 0,001) genlerinin kardiyak ekspresyonunda artış ve daha yüksek bir Bax/Bcl2 mRNA oranı (3,06 ± 0,19, P < 0,001) göstermiştir. Egzersiz eğitimini takiben, Col1a1 ve Tgfb1 mRNA ekspresyonları sırasıyla 2,02 ± 0,16 ve 1,92 ± 0,16'ya düşmüş (her ikisi de diyabetik farelere kıyasla P < 0,001) ve Bax/Bcl2 mRNA oranı 1,48 ± 0,10'a gerilemiştir (diyabetik farelere kıyasla P < 0,001; Şekil 3A–C).
Egzersiz, diyabetik farelerde seçili bağırsak mikrobiyal taksonlarındaki değişikliklerle ilişkilendirilmiştir
Kontrol grubu ile karşılaştırıldığında, diyabetik farelerde seçilen dört bakteriyel taksonun göreli bollukları anlamlı derecede daha düşük saptanmıştır: F. prausnitzii (0,25 ± 0,03'e karşı 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04'e karşı 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05'e karşı 0,99 ± 0,04) ve Bifidobacterium (0,56 ± 0,06'ya karşı 1,00 ± 0,06; tüm P < 0,001). Buna karşılık, E. coli (3,84 ± 0,33'e karşı 0,99 ± 0,08) ve Desulfovibrio (3,07 ± 0,26'ya karşı 0,99 ± 0,07) göreli bollukları anlamlı derecede daha yüksek bulunmuştur (her ikisi için P < 0,001). Egzersiz müdahalesi; F. prausnitzii, A. muciniphila, Lactobacillus ve Bifidobacterium'ın anlamlı derecede daha yüksek göreli bollukları ile ilişkilendirilmiş olup (P < 0,01 veya P < 0,001), A. muciniphila 0,84 ± 0,07 değerine ulaşmıştır. Eş zamanlı olarak, E. coli ve Desulfovibrio'nun göreli bollukları sırasıyla 1,68 ± 0,13 ve 1,52 ± 0,08'e düşmüştür (her ikisi için diyabetik farelere kıyasla P < 0,001; Şekil 4A–F).
Seçilen mikrobiyal değişiklikler, kardiyak ve kolonik gen ekspresyonu ile korele edilmiştir
Kardiyak ve kolonik dokulardaki seçilmiş mikrobiyal taksonların göreceli bollukları ile gen ekspresyon belirteçleri arasındaki ilişkileri değerlendirmek için Spearman korelasyon analizi gerçekleştirilmiştir (Şekil 5A). A. muciniphila'nın göreceli bolluğu, kardiyak Nlrp3 mRNA'sı (R = −0.81, P = 0.0046) ve Tnfa mRNA'sı (R = −0.80, P = 0.0054) ile negatif korelasyon göstermiştir. E. coli'nin göreceli bolluğu, kolonik Occludin mRNA ekspresyonu ile pozitif korelasyon göstermiştir (R = 0.66, P = 0.036; Şekil 5B–D). Bu bulgular, seçilen bağırsak mikrobiyal taksonları ile kardiyak ve kolonik transkripsiyonel belirteçler arasında ilişkiler olduğunu göstermiş ancak nedensel ilişkiler kurmamıştır.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışma sırasında oluşturulan ve/veya analiz edilen veri setleri, makul bir talep üzerine sorumlu yazardan temin edilebilir.
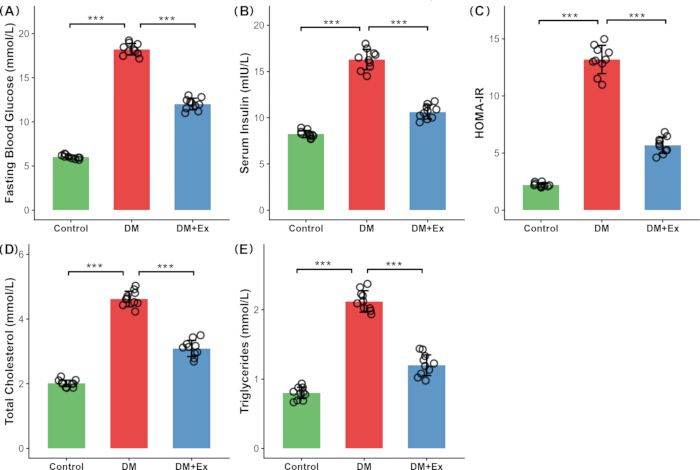
Şekil 1: Treadmill egzersizinin diyabetik farelerde metabolik parametreler üzerindeki etkileri. (A) Açlık kan glukozu. (B) Serum insülini. (C) HOMA-IR. (D) Toplam kolesterol. (E) Kontrol, DM ve DM+Ex gruplarında trigliseridler. Veriler, her bir sütun üzerine yerleştirilmiş bireysel veri noktalarıyla birlikte ortalama ± SD (n = grup başına 10) olarak sunulmuştur. Gruplar arası karşılaştırmalar, tek yönlü ANOVA ve ardından Tukey post hoc testi kullanılarak gerçekleştirilmiştir. *P < 0.05, **P < 0.01, ***P < 0.001; ns = anlamlı değil. Kısaltmalar: DM = diyabet modeli; Ex = egzersiz; HOMA-IR = insülin direncinin homeostatik model değerlendirmesi; SD = standart sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
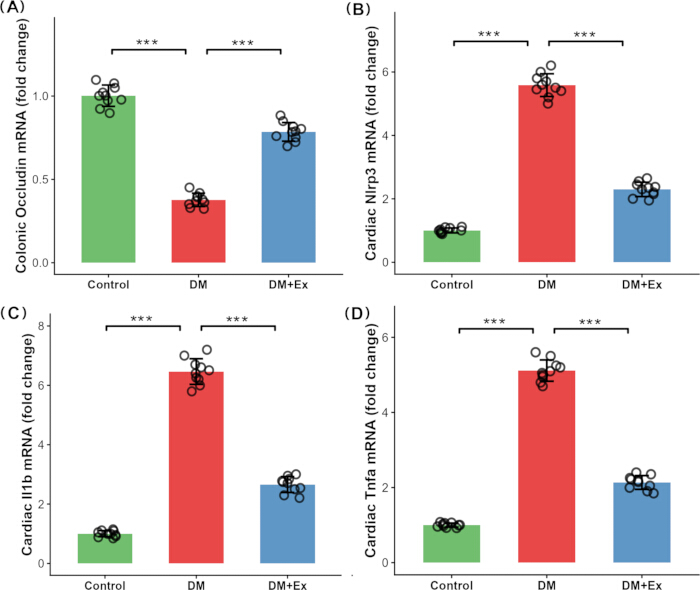
Şekil 2: Treadmill egzersizinin diyabetik farelerde bağırsak bariyeri ile ilişkili ve kardiyak inflamozomla ilişkili gen ekspresyonu üzerindeki etkileri. (A) Relatif kolonik Occludin mRNA ekspresyonu. (B) Relatif kardiyak Nlrp3 mRNA ekspresyonu. (C) Relatif kardiyak Il1b mRNA ekspresyonu. (D) Relatif kardiyak Tnfa mRNA ekspresyonu. Gen ekspresyonu Gapdh değerine göre normalize edilmiş ve Kontrol grubuna göre kat değişimi olarak ifade edilmiştir. Veriler ortalama ± SD (n = grup başına 10) olarak sunulmuştur. *P < 0.05, **P < 0.01, ***P < 0.001. Kısaltmalar: IL-1β = interlökin-1β; TNF-α = tümör nekroz faktörü-α; SD = standart sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
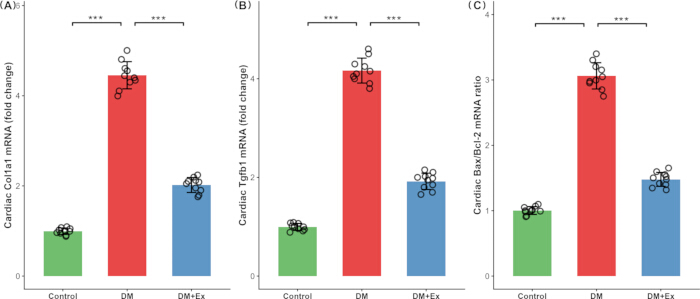
Şekil 3: Koşu bandı egzersizinin diyabetik farelerde miyokardiyal fibrozla ilişkili ve apoptozla ilişkili gen ekspresyonu üzerindeki etkileri. (A) Relatif kardiyak Col1a1 mRNA ekspresyonu. (B) Relatif kardiyak Tgfb1 mRNA ekspresyonu. (C) Bax/Bcl2 mRNA oranı. Gen ekspresyonu Gapdh ile normalize edilmiş ve Kontrol grubuna göre kat değişimi olarak ifade edilmiştir. Bax/Bcl2 oranı, relatif mRNA ekspresyon değerlerinden hesaplanmıştır. Veriler, her bir sütunun üzerine bireysel veri noktaları eklenmiş şekilde ortalama ± SD (n = grup başına 10) olarak sunulmuştur. *P < 0.05, **P < 0.01, ***P < 0.001. Kısaltmalar: Col1a1 = kollajen tip I alfa 1; Tgfb1 = transforming büyüme faktörü-β1; Bax = BCL2-ilişkili X proteini; Bcl2 = B-hücreli lenfoma 2; SD = standart sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
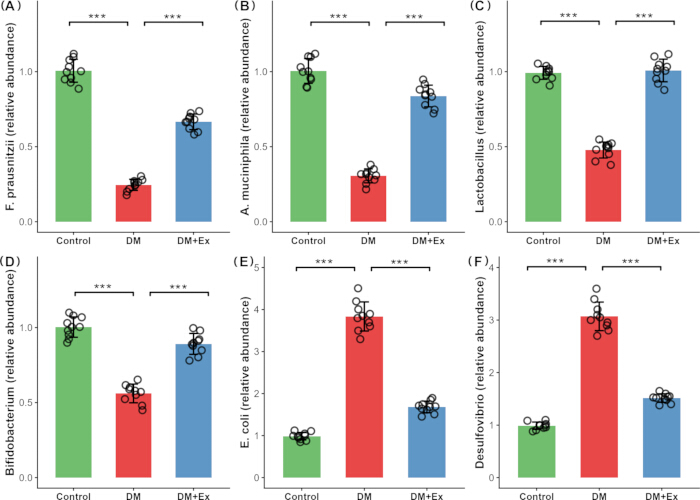
Şekil 4: Koşu bandı egzersizinin diyabetik farelerde seçilen bağırsak mikrobiyal taksonlarının göreceli bollukları üzerindeki etkileri. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Göreceli bolluklar, toplam bakteriyel 16S rRNA'ya oranla taksona özgü 16S rRNA hedefleri kullanılarak qPCR ile belirlenmiş ve Kontrol grubuna göre normalize edilmiştir. Veriler ortalama ± SD (n = grup başına 10) olarak sunulmuştur. *P < 0.05, **P < 0.01, ***P < 0.001. Kısaltma: SD = standart sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
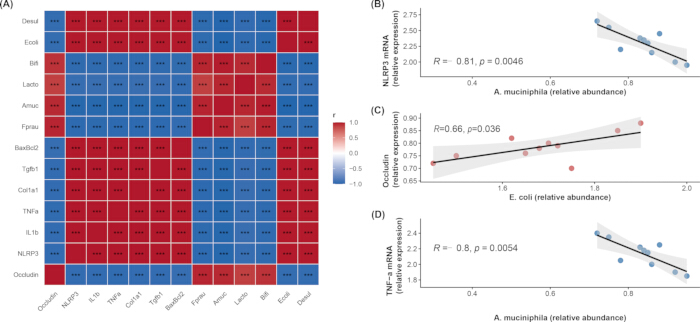
Şekil 5: Seçili bağırsak mikrobiyal taksonları ile kardiyak ve kolonik gen ekspresyon parametreleri arasındaki korelasyon analizi. (A) Seçili bakteriyel taksonlar ile kolonik Occludin mRNA, kardiyak Nlrp3, Il1b ve Tnfa mRNA'ları, Col1a1 ve Tgfb1 mRNA'ları ile Bax/Bcl2 mRNA oranı arasındaki Spearman korelasyon katsayılarını gösteren ısı haritası. Korelasyonlar, deneysel grup kontrol edilerek, her üç gruptan elde edilen veriler kullanılarak kısmi Spearman korelasyonları olarak hesaplanmıştır (n = 30). Renk ölçeği, negatif korelasyonlar için maviden pozitif korelasyonlar için kırmızıya kadar uzanmaktadır. Isı haritasındaki yıldızlar, FDR düzeltmesi sonrası anlamlılığı belirtir (*P < 0.05, **P < 0.01, ***P < 0.001). (B) DM+Ex grubu içerisinde A. muciniphila relatif bolluğu ile kardiyak Nlrp3 mRNA ekspresyonu arasındaki korelasyon. (C) DM+Ex grubu içerisinde E. coli relatif bolluğu ile kolonik Occludin mRNA ekspresyonu arasındaki korelasyon. (D) DM+Ex grubu içerisinde A. muciniphila relatif bolluğu ile kardiyak Tnfa mRNA ekspresyonu arasındaki korelasyon. Her nokta tek bir fareyi temsil etmektedir. Görselleştirme için doğrusal regresyon çizgileri ve %95 güven aralıkları gösterilmiştir. Kısaltmalar: DM = diyabet modeli; Ex = egzersiz; FDR = yanlış keşif oranı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Gen/Mikrobiyal | İleri Primer | Ters Primer |
| Tnf-$\alpha$ | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Toplam bakteri (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tablo 1: Gerçek zamanlı kantitatif PCR için kullanılan primer dizileri.
Tartışma
Bu çalışmada, egzersize bağlı metabolik, intestinal, kardiyak ve mikrobiyal değişiklikleri değerlendirmek için yüksek yağlı diyetle kombine edilmiş düşük doz STZ ile indüklenmiş bir diyabetik fare modeli kullanılmıştır. Sekiz haftalık treadmill egzersizi; metabolik parametrelerde iyileşme, kolonik Occludin mRNA ekspresyonunda artış, kardiyak Nlrp3 inflamozomla ilişkili gen ekspresyonunda azalma ve miyokardiyal inflamasyon, fibrozis ve apoptozla ilişkili gen ekspresyonunda azalma ile ilişkilendirilmiştir. Egzersiz ayrıca seçili bağırsak mikrobiyal taksonlarının göreceli bolluğundaki değişikliklerle de ilişkilendirilmiştir. Topluca bu bulgular, nedensellik kanıtlanmamış olsa da, egzersize bağlı kardiyak transkripsiyonel değişikliklerin bağırsak bariyeriyle ilişkili gen ekspresyonundaki ve seçili bağırsak mikrobiyal taksonlarındaki değişimlerle ilişkili olabileceğini göstermektedir.
Diyabetik modelden beklendiği üzere, farelerde iyi tanımlanmış patolojik paradigma ile uyumlu olarak hiperglisemi, hiperinsülinemi, insülin direnci ve dislipidemi dahil olmak üzere belirgin metabolik bozukluklar gelişti16,17. 8 haftalık egzersiz rejimi, açlık glikozunda yaklaşık %34 ve HOMA-IR'de %57 oranında azalmalarla ilişkilendirildi ve bu durum insülin direncinde kısmi iyileşmeye işaret etti. Miyokard düzeyinde egzersiz; aerobik egzersizi AMPK aktivasyonu ve NF-κB inhibisyonu ile ilişkilendiren önceki çalışmalarla uyumlu olarak, proinflamatuar (Tnfa, Il1b), profibrotik (Tgfb1, Col1a1) ve apoptozla ilişkili (Bax/Bcl2) mRNA markerlarının ekspresyonunda %40–60 oranında azalmalarla ilişkilendirildi18,19. Ancak, bu parametrelerin hiçbiri Kontrol seviyelerine dönmedi; bu da 8 haftalık müdahalenin, kalıcı glisemik hafıza etkileriyle ilişkili olabilecek mevcut diyabetle ilişkili transkripsiyonel fenotipi normalize etmek için yetersiz olduğunu göstermektedir20.
Diyabetik farelerde kolonik Occludin mRNA ekspresyonu yaklaşık %62 daha düşük olup, bu durum intestinal bariyerle ilişkili gen ekspresyonunun azaldığını göstermektedir. Eş zamanlı olarak, kardiyak Nlrp3, Il1b ve Tnfa mRNA ekspresyonları sırasıyla 5,6 kat, 6,5 kat ve 5,1 kat artmıştır. NLRP3 inflamazomu, doğuştan gelen bağışıklık sisteminin önemli bir sensörüdür ve diyabetik kardiyak patolojide rol oynadığı bilinmektedir. Hiperglisemi; reaktif oksijen türleri (ROS) ve tiyoredoksin etkileşimli protein (TXNIP) yolakları aracılığıyla miyokardiyal Nlrp3 gen ekspresyonunu artırabilir ve bunun sonucunda IL-1β ve IL-18 ile ilişkili inflamatuar sinyalizasyon üzerinde etkiler oluşturabilir21,22. İntestinal bariyer bozulmasına ikincil olarak gelişen sistemik lipopolisakkarit (LPS) translokasyonundaki artış, NLRP3 priming işlemi için üst akış uyaranı olarak da tanımlanmıştır23. LPS, TLR4/MyD88/NF-κB sinyalizasyon ekseni üzerinden Nlrp3 ve pro-Il1b ekspresyonunu artırarak inflamazom priming için gerekli olan ilk sinyali sağlar24. Mevcut diyabetik modelde, kolonik Occludin mRNA ekspresyonundaki azalma ve kardiyak inflamazomla ilişkili gen ekspresyonundaki artışla birlikte, E. coli'nin göreceli bolluğunda bir artış gözlemlenmiştir. Bu paralel değişimler, olası bir gut-ilişkili inflamatuar yolak ile uyumludur ancak artmış LPS translokasyonunu veya nedensel bir gut-kalp mekanizmasını kanıtlamamaktadır.
Egzersiz müdahalesi, kolonik Occludin mRNA ekspresyonunun Kontrol değerinin yaklaşık %79'una yükselmesiyle ilişkilendirilirken; kardiyak Nlrp3, Il1b ve Tnfa mRNA ekspresyonları sırasıyla Kontrol değerlerinin yaklaşık 2,3-, 2,7- ve 2,1-katına azalmıştır. Bu bulgular, egzersiz sonrası daha yüksek bağırsak bariyeriyle ilişkili gen ekspresyonu ile daha düşük kardiyak inflamatuar gen ekspresyonu arasında bir ilişki olduğunu göstermektedir. Önceki çalışmalar; egzersizin, artan mukus üretimi, sıkı bağ proteinlerinin düzenlenmesi ve gelişmiş intestinal perfüzyon aracılığıyla bağırsak bariyer fonksiyonunu destekleyebileceğini öne sürmüştür25,26,27,28. Bununla birlikte, mevcut veriler mRNA ölçümleriyle sınırlı kalmış ve bu nedenle söz konusu fonksiyonel mekanizmaları doğrulamamıştır.
Hedefli bağırsak mikrobiyotası analizi, egzersizin diyabetle ilişkili seçilmiş taksonların göreli bolluklarındaki değişikliklerin kısmen geri çevrilmesiyle, özellikle A. muciniphila artışı ve E. coli azalmasıyla ilişkili olduğunu göstermiştir. Bu karşılıklı değişiklikler, söz konusu taksonlar ile bariyer koruması ve endotoksinle ilişkili süreçler arasında daha önce tanımlanmış olan ilişkilerle tutarlıdır29,30,31. Bununla birlikte, yalnızca seçili taksonlar quantify edildiği için, bulgular bağırsak mikrobiyotasının kapsamlı bir yeniden yapılandırılmasından ziyade, spesifik bakterilerin göreli bolluklarındaki egzersize bağlı değişiklikler olarak yorumlanmalıdır.
Korelasyon analizi, seçilen mikrobiyal taksonlar ile transkripsiyonel belirteçler arasındaki ilişkileri daha detaylı olarak belirlemiştir. Egzersiz müdahale grubunda, A. muciniphila bolluğu, kardiyak Nlrp3 (R = −0.81, P = 0.0046) ve Tnfa (R = −0.80, P = 0.0054) mRNA ekspresyonu ile negatif korelasyon göstermiştir. Buna karşılık, E. coli bolluğu, kolonik Occludin mRNA ekspresyonu ile pozitif korelasyon göstermiştir (R = 0.66, P = 0.036; Şekil 5C). E. coli ve Occludin mRNA arasındaki pozitif ilişki, başlangıçtaki hipotezin aksinedir ve seçilen bağırsak mikrobiyal taksonları ile bağırsak bariyeriyle ilişkili gen ekspresyonu arasındaki ilişkinin basit bir doğrusal modelle açıklanamayacağını göstermektedir. Bu korelasyonlar; egzersiz, seçilen mikrobiyal taksonlar ve konak transkripsiyonel belirteçleri arasındaki ilişkilerle tutarlıdır ancak nedensellik kurmamıştır. A. muciniphila eksikliğinin bağırsak geçirgenliğini ve metabolik endotoksemiyi artırabileceğini gösteren önceki kanıtlar32 ile NLRP3'ü diyabetik kardiyak patolojiye bağlayan kanıtlar33, bu ilişkiler için biyolojik bir bağlam sağlamaktadır. Yine de, mevcut çalışma, artan A. muciniphila miktarının mukus bariyer fonksiyonunu iyileştirdiğini, LPS translokasyonunu azalttığını veya TLR4/NLRP3 aracılı kardiyak enflamasyonu hafiflettiğini doğrudan kanıtlamamıştır.
Bu çalışmanın çeşitli kısıtlamaları bulunmaktadır. İlk olarak, 16S amplikon sekanslama veya metagenomik sekanslama yerine, altı temsilci bakteriyel taksonu nicelendirmek için hedefli 16S rRNA qPCR kullanılmıştır. Sonuç olarak, bağırsak mikrobiyota topluluk yapısının ve fonksiyonel kapasitesinin kapsamlı bir değerlendirmesi yapılamamış; daha geniş topluluk değişimleri veya fonksiyonel yolaklar değerlendirilememiştir. Bu nedenle bulgular, bağırsak mikrobiyota yeniden şekillenmesinden ziyade, seçili taksonların göreli bolluklarındaki değişimler olarak tanımlanmıştır. İkinci olarak, dolaşımdaki LPS seviyeleri, plazma SCFA konsantrasyonları ve bağırsak geçirgenliği doğrudan ölçülmemiş, bu da mekanistik yorumlamayı kısıtlamıştır. Üçüncü olarak, çalışma öncelikle mRNA ekspresyon verilerine dayanmıştır. Bariyer bütünlüğü, inflamozom aktivasyonu, fibrozis ve apoptozun protein düzeyindeki ve fonksiyonel doğrulamaları gerçekleştirilmemiştir. Buna bağlı olarak, sonuçlar transkripsiyonel değişikliklerle sınırlandırılmış ve fonksiyonel veya protein düzeyindeki etkiler saptanmamıştır. Dördüncü olarak, yalnızca bir egzersiz yoğunluğu ve süresi rejimi incelenmiş, bu durum diyabetle ilişkili kardiyak transkripsiyonel değişiklikler için optimal bir egzersiz reçetesine ilişkin çıkarımları kısıtlamıştır. Beşinci olarak, sadece erkek fareler çalışılmış olup, bulgular dişiler için genellenemeyebilir. Altıncı olarak, sağlıklı bir egzersiz kontrol grubunun yokluğu, diyabete özgü yanıtların egzersizin fizyolojik etkilerinden ayırt edilme yeteneğini kısıtlamıştır. Yedinci olarak, ekokardiyografi ve kardiyak histopatoloji yapılmamıştır; bu nedenle model, onaylanmış bir diyabetik kardiyomiyopati modeli yerine diyabetik fare modeli olarak tanımlanmış ve tüm kardiyak bulgular transkripsiyonel değişikliklerle sınırlandırılmıştır. Son olarak, grup etkisini kontrol eden kısmi korelasyon analizi bu endişeyi azaltmak için kullanılmış olsa da, gözlemlenen bazı korelasyonlar grup içi biyolojik ilişkilerden ziyade grup ayrımını yansıtmış olabilir.
Özetle, diyabetik farelerde 8 haftalık koşu bandı egzersizi, metabolik iyileşme ile kardiyak ve kolonik transkripsiyonel değişikliklerle ilişkilendirilmiştir. Bu değişiklikler, seçili bağırsak mikrobiyal taksonlarının göreceli bolluğundaki değişimlerle, özellikle A. muciniphila artışı ve E. coli azalmasıyla birlikte gerçekleşmiştir. Gözlemlenen bu ilişkiler; egzersiz, seçili bağırsak mikrobiyal taksonları, bağırsak bariyeriyle ilişkili gen ekspresyonu ve kardiyak inflamazomla ilişkili transkripsiyon arasındaki ilişkilerin daha fazla araştırılmasını desteklemektedir. Önerilen mekanizmaları test etmek ve nedensellik kurmak için daha geniş mikrobiyom profillemesi, SCFA kantifikasyonu, bağırsak geçirgenlik analizleri ve protein düzeyinde veya histolojik validasyon içeren gelecek çalışmalara ihtiyaç duyulacaktır. Gözlemlenen ilişkilerin nedensel yolakları yansıtıp yansıtmadığını belirlemek için fekal mikrobiyota transplantasyonu, A. muciniphila takviyesi veya NLRP3 inhibisyonu kullanan ek müdahale çalışmaları gerekecektir.
Açıklamalar
Yazarlar, bu makalede rapor edilen çalışmayı etkilediği görülebilecek herhangi bir rakip finansal çıkar veya kişisel ilişki olmadığını beyan ederler. Bu taslağın veya şekillerin hazırlanmasında hiçbir yapay zeka aracı kullanılmamıştır.
YAZAR KATKILARI:
H.H. ve G.Z. çalışmayı tasarladı ve planladı. H.H., G.Z. ve Y.X. hayvan deneylerini gerçekleştirdi ve örnek topladı. H.H. ve G.Z. moleküler biyoloji deneylerini yürüttü ve verileri elde etti. H.H. ve Y.X. istatistiksel analizi gerçekleştirdi. H.H. taslağı hazırladı. H.W. taslağı önemli entelektüel içerik açısından kritik bir şekilde gözden geçirdi. Tüm yazarlar final metnini okudu ve onayladı
Teşekkürler
Bu araştırma, kamu, ticari veya kar amacı gütmeyen sektörlerdeki finansman kuruluşlarından herhangi bir özel hibe almamıştır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Accu-Chek glukometre ve test çubukları | Roche | Accu-Chek Active | Açlık kan glukoz ölçümü için kullanıldı |
| Otomatik biyokimyasal analizör | Hitachi | 7180 | Serum biyokimyasal ölçümleri için kullanıldı |
| C57BL/6J fareleri (erkek, 8 haftalık) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Diyabetik fare modelini oluşturmak için kullanılan deneysel hayvanlar |
| Sitrat tamponu (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | Streptozotosin solüsyonunun hazırlanması için kullanıldı |
| Fare insülini için enzimle ilişkili immunosorbent analiz (ELISA) kiti | Wuhan HuaMei Biotech | CSB-E05070m | Serum insülin ölçümü için kullanıldı |
| Yüksek yağlı diyet (%60 kcal yağdan) | Research Diets | D12492 | Diyabetik modelin indüksiyonu ve sürdürülmesi için kullanıldı |
| İzofluran | RWD Life Science | R510-22-10 | İnhalasyon anestezisi için kullanıldı |
| Mikrosantrifüj | Eppendorf | 5424 R | Numune santrifüjlemesi için kullanıldı |
| NanoDrop 2000 spektrofotometre | Thermo Fisher Scientific | ND-2000 | RNA konsantrasyonu ve saflığını değerlendirmek için kullanıldı |
| Paraformaldehit (%4, PBS içinde) | Servicebio | G1101 | Doku numunelerinin fiksasyonu için kullanıldı |
| Fosfat tamponlu salin (PBS) | Servicebio | G0002 | Doku numunelerinin yıkanması ve durulanması için kullanıldı |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Gerçek zamanlı kantitatif PCR için kullanıldı |
| PrimeScript RT Reagent Kit (qPCR için) | TaKaRa (Takara Bio) | RR037A | RNA'nın cDNA'ya ters transkripsiyonu için kullanıldı |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Fekal numunelerden mikrobiyal DNA ekstraksiyonu için kullanıldı |
| R Yazılımı | R Foundation | 4.2.0 | İstatistiksel analiz için kullanıldı |
| Gerçek zamanlı PCR sistemi (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Gerçek zamanlı kantitatif PCR amplifikasyonu ve tespiti için kullanıldı |
| Streptozotosin (STZ) | Sigma-Aldrich | S0130 | Diyabetik fare modelini indüklemek için yüksek yağlı diyet ile birlikte kullanıldı |
| Toplam Kolesterol (TC) Analiz Kiti | Nanjing Jiancheng Bioengineering Institute | A111-1 | Serum toplam kolesterol ölçümü için kullanıldı |
| Koşu bandı (motorlu, eğim kontrollü) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Koşu bandı egzersiz müdahalesi için kullanıldı |
| Trigliserid (TG) Analiz Kiti | Nanjing Jiancheng Bioengineering Institute | A110-1 | Serum trigliserid ölçümü için kullanıldı |
| TRIzol Reajanı | Invitrogen (Thermo Fisher) | 15596018 | Doku numunelerinden toplam RNA ekstraksiyonu için kullanıldı |
Kaynaklar
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.