Bu çalışma, elektrokimyasal deteksiyon ile eşleştirilmiş yüksek performanslı sıvı kromatografisi (HPLC-ECD) kullanarak Drosophila beyinlerindeki biyojenik aminlerin miktarının belirlenmesine yönelik bir protokol açıklamaktadır. Drosophila'nın genetik olarak işlenebilirliği ve HPLC-ECD'den yararlanan bu yaklaşım, araştırmacıların beyin bozukluklarındaki biyojenik aminlerdeki değişikliklerin altında yatan moleküler ve genetik mekanizmaları aydınlatmalarına yardımcı olabilir.
Yöntem makalesi
Beyin Bozukluklarının Drosophila Modellerinde Biyojenik Aminlerdeki Değişimleri İncelemek İçin Yüksek Performanslı Sıvı Kromatografisi Kullanımı
* These authors contributed equally
Bu makalede
Özet
Özet
Birçok nöropsikiyatrik ve nörodejeneratif bozukluk, biyojenik aminlerin (BA'lar) dopamin (DA) ve serotonin (5-hidroksitriptamin; 5-HT) seviyelerindeki değişimlerin yanı sıra, bunların salınımında veya geri alımındaki bozulmalar da dahil olmak üzere beyin nörotransmitterlerindeki aksaklıklar ile karakterizedir. Bu nörokimyasal değişiklikler, diğerlerinin yanı sıra lokomotor eksiklikler, uyku fragmantasyonu ve değişmiş stres yanıtları gibi belirgin temel davranışsal fenotiplerle ilişkilidir. Temel BA sistemleri birbirleriyle etkileşim içinde olduğu için, hastalık modelleri sıklıkla tek bir nörotransmitterde izole değişiklikler yerine, birden fazla aminde koordineli değişimler gösterir. Bu nedenle, davranışsal ve genetik bulguları yorumlamak için birkaç BA'nın doğru ve eş zamanlı olarak miktarsal tayini esastır. Drosophila melanogaster, bu tür bozuklukları ve nörotransmitter değişikliklerini modellemek için genetik olarak yönetilebilir bir sistem sunar; ancak BA'lar sinek beyin dokusunda nanomolar ila femtomolar düzeyindeki çok düşük konsantrasyonlarda bulunur ve Drosophila merkezi sinir sisteminin küçük boyutu, tespitlerini teknik olarak zorlaştırır. Bu çalışma, yüksek performanslı sıvı kromatografisinin elektrokimyasal deteksiyon (HPLC-ECD) ile birleştirilmesi kullanılarak sinek beyinlerindeki DA, 5-HT ve oktopaminin tespit edilmesi ve miktarının belirlenmesi için bir protokol tanımlamaktadır. HPLC-ECD, insan alfa-sinükleinin dopaminerjik aşırı ekspresyonuna dayalı bir Parkinson hastalığı sinek modelinde beyin DA ve 5-HT'deki değişiklikleri tespit etmek için uygulanmıştır. Bu protokolün alfa-sinüklein Parkinson hastalığı modeline uygulanması, kontrollere kıyasla, erken dönem kompanse edici dopaminerjik mekanizmalarla tutarlı olarak, serotonin değişmemişken dopaminin önemli ölçüde yükseldiğini ortaya koymaktadır. Bu yaklaşım, sınırlı Drosophila dokusundan çoklu BA tayini için hassas, düşük maliyetli ve kolayca erişilebilir bir yöntem sağlar. Ayrıca, insan beyin bozukluklarıyla ilgili monoaminerjik yolakları hedefleyen genetik modifikatörlerin ve aday terapötiklerin sistematik olarak taranmasına olanak tanır.
Giriş
Biyojenik aminler (BA'lar) olarak da bilinen monoamin nörotransmitterlerin; motivasyonel durumlar, uyku, öğrenme, bellek ve duygu durum düzenlemesi dahil ancak bunlarla sınırlı olmamak üzere, hayvan taksonları genelinde birçok temel nörolojik ve davranışsal özelliği düzenlediği bilinmektedir1,2,3,4. Dopamin (DA) ve serotonin (5-hidroksitriptamin; 5-HT) gibi BA'ların düzensizliği; Parkinson hastalığı gibi nörodejeneratif bozuklukların yanı sıra şizofreni gibi psikiyatrik bozuklukların kritik bir özelliğidir3,5. Ancak, hastalık ilerlemesi ile beyin bölgeleri ve nöronal alt tipler genelindeki spesifik nörokimyasal değişiklikler arasındaki ilişki henüz tam olarak haritalandırılmamıştır. Bu tür soruları yanıtlamak, yalnızca genetik olarak işlenebilir olan değil, aynı zamanda hastalıkla ilgili fizyolojik ve davranışsal fenotipleri yeniden oluşturabilen bir model sistem gerektirmektedir. Drosophila melanogaster, bu amaç için güçlü bir model sistem olarak ortaya çıkmıştır6,7. Meyve sineği, dopaminerjik ve serotonerjik nöronların belirgin, iyi karakterize edilmiş popülasyonlarına7,8 ve bu sistemleri yöneten, memeli karşılıklarıyla işlevsel olarak korunmuş biyosentetik yollara, taşıyıcılara ve reseptör ailelerine sahiptir9. Bu tür bir korunum, sinekteki nörokimyasal bulguların insan hastalıklarının daha geniş bağlamına aktarılması için mekanistik bir temel sağlamaktadır.
Sineklerin nörolojik ve psikiyatrik bozuklukları modellemedeki faydası, genetik homologluğun çok ötesine uzanır. Genetik olarak yönetilebilir bir sistem olarak, sineklerdeki araçlar, genlerin ve yolakların hücreye özgü taranmasına olanak tanıyarak hastalıkla ilgili semptomları kötüleştiren veya tersine çeviren faktörleri ortaya çıkarır ve böylece yeni terapötik hedeflerin keşfini kolaylaştırır10. Ayrıca, biner ekspresyon sistemleri yalnızca spesifik monoaminerjik nöronal alt tiplerini değil, aynı zamanda belirli gelişimsel pencereleri de hedefleyebilir11; böylece olağanüstü bir uzamsal ve zamansal hassasiyet sağlar. Meyve sineği model sistemi, hastalıkla ilgili semptomların yeniden oluşumunu değerlendirmek ve bunların iyileştirilmesine yönelik müdahale stratejilerini test etmek için kullanılabilecek bir dizi nicelendirilebilir davranış repertuvarı da sunar7. Örneğin, sineklerdeki iyi yapılandırılmış Parkinson hastalığı genetik modelleri arasında, Pink1 ve parkin fonksiyon kaybı mutasyonları taşıyan hayvanların yanı sıra, insan α-sinüklein (α-syn), SNCA wild-tip veya nokta mutasyonlu versiyonlarını aşırı eksprese eden sinekler yer alır12,13,14. Tüm bu sinek modelleri; lokomotor defisitler, dopaminerjik nöronların dejenerasyonu, mitokondriyal disfonksiyon ve insan sekansını taşıyan sineklerde α-syn agregasyonu dahil olmak üzere hastalığın en önemli belirteçlerinden bazılarını sergiler15,16,17,18,19. Öte yandan, nörogelişimsel bozulmalar ve aberrant dopamin sinyalleri de şizofreni gibi bozuklukların altında yatan nedenler arasında kabul edilir20. Bununla uyumlu olarak, Drosophila, yetişkin sineklerde hiperaktivite, değişmiş duyusal tepkisellik ve azalmış uyanıklık dahil olmak üzere şizofreni benzeri semptomları modellemek için kullanılmıştır21,22,23,24,25. Birlikte, bu modeller Drosophila'nın hem nörodejeneratif bozuklukların ilerlemesini hem de psikiyatrik bozuklukların gelişimsel kökenlerini yakalayabildiğini göstermektedir.
Genetik modellerdeki davranışsal değişikliklerin nörokimyasal değişikliklerle ilişkilendirilmesi, biyojenik aminlerin (BA) doğru ve tekrarlanabilir kantitatif ölçümlerini gerektirir. Ayrıca, birçok hastalıkta monoamin disregülasyonu tek bir nörotransmitter sistemle sınırlı değildir. Pink1B9 mutant sineklerde, motor disfonksiyon ortaya çıkmadan önce serotonin içeriği azalır ve serotonin taşıyıcı aktivitesi bozulur26. Serotonerjik sinyalizasyonun erken farmakolojik olarak kurtarılması, Pink1B9 mutant sineklerde etkilenen dopaminerjik nöronların sonraki kaybını önler. Dolayısıyla serotonerjik değişiklikler, dopaminerjik patolojiden önce gelebilir ve buna nedensel olarak katkıda bulunabilir; bu ilişki, davranışsal okumalar veya tekil analit ölçümleriyle görünmez kalacaktır. Benzer şekilde, şizofreni modellerinde de serotonerjik sistemde değişiklikler gözlemlenmektedir22,27,28. Dahası, Drosophila'daki temel biyojenik aminler kısmen redundant ve kısmen antagonist şekillerde etkileşime girer, öyle ki bir sistemin durumu diğerleri için yetersiz bir göstergedir29. Bu nedenle, bu modellerde bireysel BA'ların kantifikasyonu büyük önem taşımaktadır.
Biyojenik aminler, biyolojik dokularda düşük nanomolar ile femtomolar konsantrasyonlarda bulunan ve elektrokimyasal olarak aktif monoaminlerdir (örneğin katekolaminler, indolaminler); bu durum, bunların eş zamanlı tespitini teknik olarak zorlaştırmaktadır30,31. Dolayısıyla, hastalıklardaki biyojenik amin (BA) değişimlerinin genetik ve moleküler temellerine ilişkin soruların yanıtlanması, yapısal olarak benzer olan birden fazla amini ayırt edebilen analitik bir yöntem gerektirir. Bu yöntem ayrıca, Drosophila merkezi sinir sistemi preparatlarından elde edilen küçük doku hacimlerindeki biyolojik olarak ilgili konsantrasyonları da tespit edebilmelidir. Elektrokimyasal deteksiyon (ECD) ile eşleştirilmiş yüksek performanslı sıvı kromatografisi (HPLC) bu gereksinimleri karşılamaktadır. HPLC, bir örnekteki farklı moleküllerin fizikokimyasal özelliklerine göre ayrılmasına olanak tanıyan analitik bir tekniktir. Kromatografik sistemin bir elektrokimyasal detektörle eşleştirilmesi, biyojenik aminler gibi elektrokimyasal olarak aktif analitlerin hızlı ve yüksek hassasiyetle analiz edilmesini sağlar. Elektrokimyasal detektörler, analitler kolondan çıktığında oksidasyonu tetikleyerek elektrot yüzeyindeki etkileşimleri ölçülebilir bir elektrik sinyaline dönüştürerek çalışır. Kütle spektrometrisi gibi diğer teknikler benzer seçicilik ve hassasiyet sunabilir32,33. Ancak, HPLC-ECD'nin örnek başına düşük maliyeti ve güvenilirliği, biyoloji araştırma laboratuvarlarında biyojenik aminlerin rutin ve erişilebilir tespiti için onu ideal kılar. Bu tekniğin Drosophila genetiğinin gücüyle birleştirilmesi, aminerjik sistemlerdeki değişimlerin genetik ve moleküler temellerinin hızlı ve kolay analizine olanak tanır.
Bu çalışma, Drosophila beyin örneklerindeki BA içeriğindeki farklılıkları belirlemek için bir protokol sunmak amacıyla α-syn aşırı ifadesine dayalı genetik bir Parkinson modelini kullanmaktadır. Makale ayrıca, bu yaklaşımın beyin bozukluklarının moleküler temelini incelemek için nasıl kullanılabileceğini açıklamaktadır.
Protokol
Bu çalışmada sunulan ham veriler https://doi.org/10.6084/m9.figshare.33868519 adresinden erişilebilirdir.
Kullanılan reaktifler ve ekipmanlar Materyaller Tablosu'nda listelenmiştir.
1. Sinekleme ve toplama
- Toplama işleminden önce, ilgili sinekleri sabit 25 °C'de, 12 saat ışık ve 12 saat karanlıktan oluşan sabit döngüler altında 3 gün boyunca entrain edin. Genotip/koşul başına yeterli sayıda sinek hazırlandığından emin olmak için, her biri 5 sinekten oluşan 3–9 biyolojik replikatı entrain edin.
- Toplama gününde, 1,5 mL tüpleri kuru buz üzerine yerleştirin. Her sinek genotipi/koşulu için bir tüp kullanın. Sinekleri hızlıca dondurmak için bir huni yardımıyla doğrudan tüplerin içine boşaltın.
NOT: Doğrudan kuru buz üzerinde toplama işlemi, anesteziyle oluşabilecek zararlı etkiler olmadan günün farklı saatlerinde toplama yapılmasına olanak tanır. Bu noktada, örnekler -80 °C'de süresiz olarak saklanabilir veya hemen işleme alınabilir. Gün içindeki zaman değişimlerinin herhangi bir karıştırıcı etkisinden kaçınmak için deney ve kontrol gruplarını aynı anda toplayın. Mevcut temsilci sonuçlarda, sinekler ışıkların açılmasından 3 saat sonra toplanmıştır.
2. Beyin diseksiyonu ve numune hazırlama
- Doku diseksiyonuna hazırlanmak için, pipet ucu kutusu kapağı gibi alçak profilli bir kap kullanın ve içini buzla doldurun. Diseksiyon platformu olarak görev yapması için üzerine 30 mm'lik bir Petri kabı yerleştirin. Özellikle sıcak aydınlatmaya sahip bir stereoskop kullanılırken doku diseksiyonunun buz üzerinde gerçekleştirilmesi, doku dejenerasyonunu önler.
- Kaba 200 µL buz gibi soğuk 1x Fosfat Tamponlu Salin (PBS) damlatın ve bir stereoskop altında, her bir sineği ince, keskin pensler kullanarak dissekt edin.
- Beyni dissekt etmek için, bir çift pens ile bir sineği abdomeninden tutun ve PBS damlasına batırın. Sineği bırakmadan, baş ile gövde arasındaki bağlantıyı tutarak başı ayırın.
- Hem gövde hem de baş PBS üzerinde yüzecektir. Gövdeyi damladan çıkarıp atın. Bir çift pens kullanarak başı probosisinden tutun ve PBS damlasının içine doğru itin.
- Boştaki diğer pens ile başı sabit tutmak için gözün kenarından tutun ve probosisi çıkarın.
- Probosisin çıkarılmasıyla oluşan açıklığın etrafındaki dokuyu tutun ve çekin. Beyin açığa çıkmalıdır.
- Kalan dokular kantifikasyonu etkileyebileceğinden, beyindeki kafa kalıntılarını temizlemek için beyni nazikçe yıkayın. Ayrıca, örnek dejenerasyonunu önlemek için kuru buz üzerindeki tüpten her seferinde tek bir sinek alın.
- Bir pipet ucu kullanarak, dissekt edilen beyni içeren küçük bir hacmi doğrudan buz gibi soğuk 1x PBS içeren bir tüpe aktarın. Bu adımı, biyolojik replikat başına toplam beş beyne ulaşana kadar tekrarlayın. Beynin pipet ucuna yapışmasını önlemek için, ucu önce diseksiyon plakasındaki solüsyonla birkaç kez aşağı yukarı pipetleyerek koşullandırın.
- Diseksiyon tamamlandığında, beyinleri tüpün dibinde toplamak için 2.000 x g hızında 10 saniyelik kısa bir santrifüj işlemi gerçekleştirin.
- 1x PBS'yi dikkatlice buz üzerinde 50 µL 0.2 N Perklorik Asit (PCA) ile değiştirin.
UYARI: PCA oldukça koroziftir. Alikotları önceden bir çeker ocak altında hazırlayın ve işlem sırasında uygun Kişisel Koruyucu Ekipman kullanın. Buna kimyasallara dayanıklı gözlükler, ağır hizmet tipi neopren eldivenler ve kauçuk önlük dahildir.
NOT: Alternatif olarak, beyinler doğrudan 50 µL 0.2 N PCA içine de toplanabilir. Bu durumda, istenmeyen PBS transferini önlemek için beyinleri aktarmak için bir iğne kullanın. - Dokuyu homojenize etmek için ultrasonik bir homojenizatör kullanın. Isı oluşumunu önlemek için genliği kontrol edin. Burada 10 kHz ile 3 saniyelik kısa darbeler ve ardından 3 saniye buzda bekleme şeklinde döngüler uygulanır.
- Numuneyi 15.000 x g hızında ve 4 °C'de 15 dakika santrifüjleyin. Süpernatantın 40 µL'sini buzda saklanan yeni bir tüpe toplayın. Numunelerin PCA içinde tutulması BA oksidasyonunu önler. Bu aşamada doku toplamaktan kaçının, çünkü bu durum sistemi tıkayabilir. Eğer bir miktar doku toplanırsa şırınga filtreleri kullanılabilir ancak numune geri kazanımı olumsuz etkilenecektir.
- Numuneleri çalıştırmadan hemen önce 8 µL 1 M Sodyum Asetat ekleyin. Bu, numunenin pH değerini mobil fazın 3.5 olan pH değerine yaklaştırarak, numune dedektörden geçerken pik şeklinin korunmasını sağlar. Numuneler enjeksiyona hazırdır.
3. Hareketli fazın hazırlanması
- Bir cam şişeye 870 mL ultrapure su ekleyerek 1 L sitrat-asetat mobil faz hazırlayın.
- Cam malzemeye 5,61 g sodyum asetat trihidrat ve 8,79 g susuz sitrik asit ekleyin ve çözünene kadar karıştırın. pH değerinin 3,5 olduğundan emin olun; değilse, uygun şekilde ayarlayın.
- Çeker ocak altında, 130 mL HPLC düzeyinde metanol ekleyin.
- 130 mg sodyum 1-oktansülfonat hidrat ekleyin ve iyice karıştırın.
- Çözeltiyi 1 saat boyunca karıştırırken 0,2 µm filtre kullanarak vakumla filtreleyin. Karıştırma, hapsolmuş gazın çözeltiden çıkmasını sağlar; vakum ise hem bu işleme hem de filtrasyona yardımcı olur.
- Hava kabarcıklarını gidermek için çözeltiyi bir ultrasonik banyoda (42 kHz) 30 dakika boyunca sonikasyon işlemine tabi tutun.
- Kabı alüminyum folyo ile sarın ve uygun şekilde etiketleyin.
NOT: Reaktif kalitesi tutunma sürelerini büyük ölçüde etkiler. HPLC düzeyinde reaktiflerin kullanılması, analizler arası tutarlılığın korunmasına yardımcı olur. Mobil faz yeniden hazırlanırken aynı reaktiflerin kullanılması da sonuçlarda tutarlılığı sağlar.
4. Standartların hazırlanması
- Standartları hazırlamak için; OA, DA ve 5-HT'den 10 mg'lık miktarları ayrı ayrı tartım kağıtlarına tartın.
- Ayrı stok çözeltiler hazırlamak için tartılan miktarları ayrı 125 mL'lik cam şişelere yerleştirin. Şişelere aktarılan tam OA, DA veya 5-HT miktarını hesaplamak için boş tartım kağıdını yeniden tartın.
- Analitin 100 ng/µL konsantrasyonuna ulaşmak için eklenmesi gereken çözücü miktarını hesaplayın. Eğer 10 mg'ın tamamı eklendiyse, 100 mL çözücü kullanın. OA ve DA için çözücü olarak 0.1 M Hidroklorik asit kullanın. 5-HT için bunun yerine 0.1 M asetik asit kullanın.
- Standartları, final konsantrasyonu 1 mg/mL olacak şekilde 2Na-EDTA ile destekleyin. Tamamen çözünene kadar iyice karıştırın. Işıktan korumak için şişeyi alüminyum folyo ile sarın ve 4 °C'de saklayın.
NOT: Standartlar bu koşullar altında 3 aya kadar saklanabilir.
5. Kalibrasyon çözeltilerinin hazırlanması
NOT: Kalibrasyon eğrisi oluşturmak için, farklı konsantrasyonlarda karışık BA'lar içeren üç standart hazırlayın. Bu örnekte, 0.03 ng/µL, 0.01 ng/µL ve 0.001 ng/µL çalışma çözeltileri kullanılmıştır. 10 µL enjekte etmek, sırasıyla 0.3 ng, 0.1 ng ve 0.01 ng standart miktarlar sağlayacaktır.
- Her bir 100 ng/µL BA stokundan 1 µL'yi 97 µL 0.02 M Asetik Asit-1 mg/mL 2Na-EDTA'ya ekleyerek 1 ng/µL'lik bir stok karışımı hazırlayarak başlayın. İyice karıştırın.
- 1 ng/µL stoktan 2 µL alın ve 64.6 µL 0.02 M Asetik Asit-1 mg/mL 2Na-EDTA'ya ekleyin. İyice karıştırın. Bu, 0.03 ng/µL'lik çalışma çözeltisidir.
- 1 ng/µL stoktan 2 µL alın ve 18 µL 0.02 M Asetik Asit-1 mg/mL 2Na-EDTA'ya ekleyin. İyice karıştırın. Bu, 0.1 ng/µL'lik çalışma çözeltisidir. Bu çözelti bu protokolde enjekte edilmez. Bunun yerine sadece seri dilüsyonlar için kullanılır.
- 0.1 ng/µL stoktan 4 µL alın ve 36 µL 0.02 M Asetik Asit-1 mg/mL 2Na-EDTA'ya ekleyin. İyice karıştırın. Bu, 0.01 ng/µL'lik çalışma çözeltisidir.
- Son olarak, 0.01 ng/µL stoktan 4 µL alın ve 36 µL 0.02 M Asetik Asit-1 mg/mL 2Na-EDTA'ya ekleyin. İyice karıştırın. Bu, 0.001 ng/µL'lik çalışma çözeltisidir.
NOT: Bu standartları ışık korumalı bir kutuya yerleştirin. Tüm çalışma çözeltisi standartlarının taze olarak hazırlanması gerekir.
6. Enjeksiyon kurulumu ve çalıştırma
NOT: Tüm HPLC sistemleri aynı prensiplerle çalışır. Ancak, donanımdaki farklılıklar alıkonma süresi ve çalışma süresinde büyük farklar yaratabilir. Ayrıca, ECD'nin hassasiyeti farklı tespit sınırları ortaya çıkaracaktır. Bunların ampirik olarak tanımlanması gerekecektir. Bu çalışmada, ters faz C18 kolon ile donatılmış bir yüksek performanslı sıvı kromatografi (HPLC) sistemi kullanılmıştır.
- Pompa ve elektrokimyasal dedektör dahil olmak üzere HPLC cihazını açın. Akış hızını 100 µL/min olarak ayarlayın ve elektrokimyasal dedektörün stabil bir baz hattına ulaşmasını bekleyin. Bu işlem 10 dk ile 30 dk arasında sürer.
- Numuneler enjekte edilmeye hazır olduğunda, akış hızını 500 µL/min olarak ayarlayın. Sistemin 5 dk boyunca stabilize olmasına izin verin. Bu sırada, 20 µL'lik bir Hamilton şırıngasını üç kez ultra saf su ile durulayın.
- Şırıngaya 10–20 µL numune çekin. Hacim, numune döngü kapasitesine bağlı olacaktır. Daha fazla bilgi için numune döngüsü kılavuzuna bakınız.
- Enjeksiyon sırasında şırıngada hava kabarcığı olmadığından emin olun. Sıkışmış herhangi bir gaz, mobil faz pompalamasında veya ECD ölçümlerinde parazite neden olacaktır. Kabarcıklar varsa, numuneyi geri gönderin ve şırıngayı tekrar doldurmayı deneyin.
- İğneyi enjeksiyon portuna tamamen yerleştirin. Mandalı yükleme konumuna getirin ve tüm sıvı şırıngadan çıkana kadar şırınga pistonunu iterek numuneyi enjekte edin. Enjektörün mandalını “inject” konumuna indirin. Analiz başlamıştır ve bu koşullar altında 30–35 dk içinde tamamlanmalıdır.
- Analiz edilecek daha fazla numune varsa, bir sonrakini enjekte etmeden önce sistemin 500 µL/min hızında 10–15 dk boyunca çalışmasına izin verin.
NOT: ECD sinyalinde tutarlı dalgalanmalar varsa, sistem basıncındaki değişiklikleri kontrol edin. Sistemde sıkışan gaz, düzensiz akışa ve normalden daha yüksek bir arka plana neden olabilir. Bu sorunu çözmek için ECD'yi baypas ederek sistemi yüksek hızda taze bir çözeltiyle temizleyin.
7. Veri toplama ve analiz
NOT: Bu tür verileri toplamak ve analiz etmek için mevcut çeşitli analog-dijital dönüştürücüler ve yazılımlar bulunmaktadır. Verileri işleme biçimleri farklılık gösterebilir; ancak genel prensipleri ortaktır. Bu çalışmada sırasıyla veri dönüştürme yazılımı ile kromatografi veri toplama ve analiz yazılımı kullanılmıştır.
- ECD tarafından yakalanan ve BAs oksidasyonu sonucu ortaya çıkan akım/voltaj değişimleri, analog-dijital dönüştürücü tarafından dönüştürülecektir. BA konsantrasyonu, akım/voltajdaki değişimle orantılıdır.
- Kalibrasyon eğrisi oluşturmak için BAs standart çalışmalarından elde edilen akım-zaman grafiklerinin eğri altındaki alanını kullanın. Değerler, Akım/Voltaj (nA veya mV) ile Miktar (ng) grafiğinde doğrusal bir regresyon ile temsil edilecektir.
- Doğrusal denklemi kullanarak, örneğinizdeki BAs konsantrasyonunu hesaplayın.
Sonuçlar
Biyolojik bileşikler farklı voltajlarda oksitlenir. Beyin dokuları gibi karmaşık bir matriste, uygun ECD potansiyelinin seçilmesi daha temiz ve daha doğru bir nicelleştirme sağlayacaktır. Burada, Drosophila beyin örneklerinde OA, DA ve 5-HT'nin tanımlanması ve nicelleştirilmesi üzerindeki bu faktörün etkisini göstermek için iki farklı voltaj seçtik. 950 mV kullanarak, bir karışım içindeki bu 3 amini kolayca tespit edebiliyoruz (Şekil 1A), buna karşın 650 mV'da yalnızca dopamin ve serotonin gözlemlenmektedir (Şekil 1B). Bu durum, söz konusu bileşiklerin oksidasyon voltajlarıyla uyumludur: OA için 900–1000 mV, DA ve 5-HT için 600–700 mV. OA, DA ve 5-HT için alıkonma süreleri sırasıyla 6 dk, 11 dk ve 29 dk'dır. Üç farklı miktarın, 0.01 ng, 0.1 ng ve 0.3 ng, nicelleştirilmesi, 950 mV veya 650 mV için karşılaştırılabilir kalibrasyon eğrileri vermektedir (Şekil 1C,D, sırasıyla). Bu eğriler, her bir tespit potansiyelinde, test edilen konsantrasyon aralığında her bir analit için analizinin lineerliğini ve hassasiyetini kanıtlamaktadır.
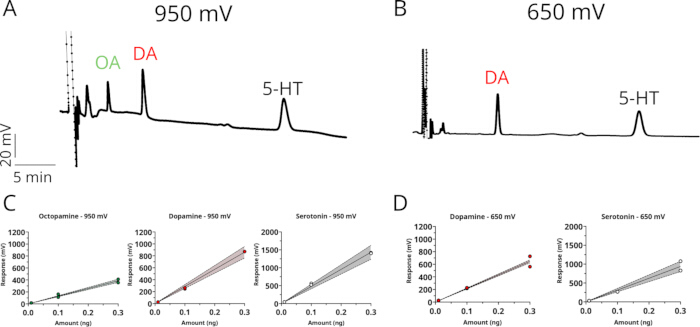
Şekil 1: İki oksidasyon potansiyelinde HPLC-ECD ile biyojenik aminlerin tespiti ve nicelendirilmesi. (A,B>) (A) 950 mV veya (B) 650 mV'luk uygulanan potansiyelde tespit edilen oktopamin (OA), dopamin (DA) ve serotonin (5-HT) standartlarının ayrımını gösteren temsili kromatogramlar. Dikey eksen: yanıt (mV); yatay eksen: alıkonma süresi (ölçek çubuğu ile belirtilen her birim için 5 min). (C,D>) (C) 950 mV ve (D) 650 mV'da her bir analit için, pik yanıtının (mV) standart miktarlarına (ng; 0.01–0.3 ng) karşı grafiği olan kalibrasyon eğrileri. Düz çizgiler lineer regresyon uyumlarını temsil eder, gölgeli bantlar %95 güven aralıklarını gösterir ve dolu/açık daireler konsantrasyon başına 2 bireysel standart enjeksiyonunu temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Beyin ekstraktları gibi karmaşık örnekler genellikle önemli bir biyolojik arka plandan sorumludur. Burada açıklanan protokolü takip ederek, elektrot voltajının beyin örneklerindeki BA'ların deteksiyonu ve kantifikasyonu üzerindeki etkisini belirlemeyi amaçladık. Yetişkin erkek sinekler, 2 tam günlük entrenmandan sonra ışıklar açıldığında toplandı ve beyinler buz gibi PBS içinde diseke edildi, ardından buz üzerinde 0,2 N PCA'ya yerleştirildi. Doku disosiasyonu ve santrifügasyonun ardından, süpernatant 1 M sodyum asetat ile dengelendi ve 10 µL enjekte edildi. Elektrot potansiyelinin 950 mV olarak ayarlanması; oktopamin, dopamin ve serotonin için ilgili tutunma zamanlarında pikler verir (Şekil 2A, siyah iz). Kimlikleri, her bir BA'nın bilinen miktarlarıyla (her biri 0,01 ng) desteklenmiş bir örneğin analiz edilmesiyle daha da doğrulanmıştır (Şekil 2A, kırmızı iz). Ancak, ilgilenilen analitlerin yakınında, kantifikasyonu zorlaştırabilen birkaç ek pik gözlemlenmektedir. Elektrot potansiyelinin 650 mV'ye ayarlanması, oktopamin deteksiyonu pahasına bu sorunu çözer (Şekil 2B). Şekil 1'de olduğu gibi, daha yüksek oksidasyon potansiyeliyle tutarlı olarak, OA 650 mV'de ayrıştırılamaz.
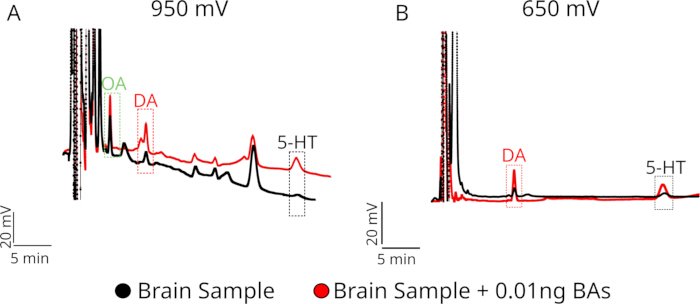
Şekil 2: İki farklı oksidasyon potansiyelinde pik artırımı (spike-in) ile beyin örneklerindeki endojen biyojenik aminlerin tanımlanması. (A,B>) Uygulanan potansiyeli (A) 950 mV veya (B) 650 mV olan HPLC-ECD ile analiz edilen bir beyin dokusu ekstraktının temsilci kromatogramları; bilinen miktarlarda (0.01 ng) oktopamin (OA), dopamin (DA) ve serotonin (5-HT) standartları eklenmeden önce (siyah iz, "Beyin Örneği") ve eklendikten sonra (kırmızı iz, "Beyin Örneği + 0.01 ng BAs") gösterilmiştir. Kesikli kutular, her bir analit için tutunma süresi pencerelerini belirtmektedir. Dikey eksen: yanıt (ölçekle belirtilen 20 mV); yatay eksen: tutunma süresi (ölçek çubuğuyla belirtilen 5 dk). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Aynı protokolü takip ederek, şu özelliklere sahip sineklerin beyinlerindeki biyojenik amin içeriğindeki farklılıkları tespit etmek için HPLC-ECD kullandık: αdopaminerjik nöronlarda $\alpha$-sinüklein (TH-T2A-GAL4 > UAS-SNCA.J34), Parkinson hastalığının bir sinek modelidir. Gen mutationsu üzerindeki mutasyonlara dayalı bir Parkinson hastalığı modeli kullanan önceki çalışmalar Pink1 0-3 günlük kadar genç sineklerde dopamin seviyelerinde farklılıklar olduğunu göstermiştir35Burada, dopamin ve serotonin seviyelerini karşılaştırmak için 3-6 günlük sinekler kullanılmıştır. Kontrol grubu sineklere kıyasla, PD sineklerinde dopamin seviyelerinin anlamlı derecede arttığı görülmüştür (Şekil 3A), serotonin seviyeleri ise değişmedi (Şekil 3B). Erken evrelerdeki yüksek dopamin seviyeleri, bu modelde PD semptomlarının başlangıcından önceki kompansatuar mekanizmaları yansıtıyor olabilir (Blesa J tarafından gözden geçirilmiştir ve ark.36).
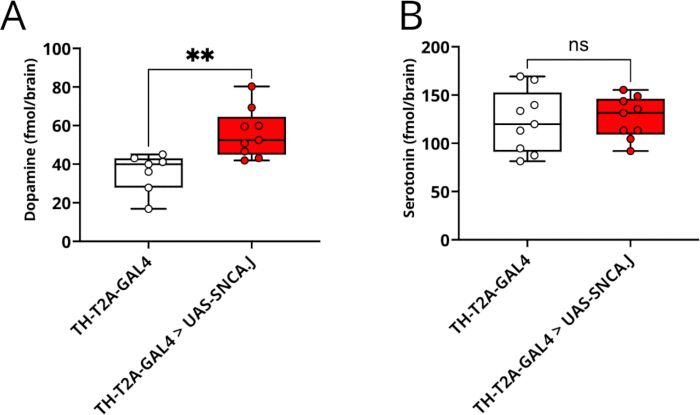
Şekil 3: HPLC-ECD ile bir Parkinson hastalığı Drosophila modelinde dopamin ve serotonin seviyelerinin kantifikasyonu. Kontrol (TH-T2A-GAL4, A'da n = 7 ve B'de n = 9) ve Parkinson hastalığı modeli (TH-T2A-GAL4 > UAS-SNCA.J, n = 9) sineklerde fmol/beyin olarak ifade edilen tüm beyin dokusu dopamin (A) ve serotonin (B) seviyeleri. Bu modelde, kodon optimize edilmiş insan α-synuclein dizisi (SNCA.J), TH-T2A-GAL4 sürücüsünün kontrolü altında dopaminerjik nöronlarda seçici olarak aşırı eksprese edilmiştir. Veriler, her biri 5 havuzlanmış beyni içeren bir biyolojik replikayı (n) temsil eden bireysel veri noktalarıyla örtüştürülmüş kutu ve çubuk grafikleri (medyan, çeyrekler arası aralık ve min–maks) olarak sunulmuştur. İstatistiksel anlamlılık, eşleştirilmemiş t-testi ile belirlenmiştir (**p < 0.01, ns, anlamlı değil). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tartışma
HPLC, oldukça özelleştirilebilir bir ayırma tekniğidir. Bu nedenle, bu protokolün birçok adımı modifiye edilebilir. Güvenilir sonuçlar, bu modifikasyonlara gösterilen dikkat ve tutarlılığa bağlıdır. Sabit ve hareketli fazların bağıl polaritesi ayırma modunu belirler: normal faz, polar bir sabit fazı polar olmayan bir hareketli fazla eşleştirirken; ters faz, polar olmayan bir sabit fazı polar bir hareketli fazla eşleştirir. Biyolojik dokularda biyojenik amin analizi tipik olarak ters faz koşulları altında gerçekleştirilir. Bu çalışmada, ana çözücü olarak metanol içeren bir sitrat-asetat hareketli faz kullanılmıştır; ancak, çözücü olarak asetonitril içeren bir fosfat tamponu ile de benzer ölçümler başarıyla gerçekleştirilmiştir22,26,35. Dolayısıyla, tampon bileşimi istenen pik çözünürlüğüne ve şekline bağlı olarak değiştirilebilir. Hareketli faz bileşiminin değiştirilmesi muhtemelen elüsyon sürelerini değiştirecektir37. Bu durum piklerin üst üste binmesine yol açarak nicelleştirmeyi zorlaştırabilir veya imkansız hale getirebilir. Sorun giderme için pH değişiklikleri en etkili çözümdür çünkü analitin kolonla etkileşimi büyük ölçüde pKa değerlerine bağlıdır38.
Aminler oksidatif bozunmaya uğrayabileceğinden, doku toplama ve işlem süreçleri protokoldeki önemli noktalardır. Numunelerin kuru buz üzerinde toplanması ve işlem aşamasına kadar -80 °C'de saklanması önemli bir adımdır. Diseksiyon sonrası numuneler, asidik koşullar altında hızlıca homojenize edilmelidir. Bu işlem, BA'ların bozunmasını önler30,39,40. Bu bağlamda, PCA'ya erişimin sınırlı olduğu durumlarda diğer asitler faydalı olabilir. Ekstraksiyon için PCA'ya alternatif, patlayıcı olmayan bir oksitleyici olan formik asit ve metanol kombinasyonu da kullanılabilir; ancak bunu Drosophila beyin numunelerinde test etmedik41.
Dedektör seçimi, nelerin ölçülebileceğini ve hangi hassasiyette ölçülebileceğini belirler; yaygın seçenekler arasında, her biri farklı analit özelliklerine ve hassasiyet gereksinimlerine uygun olan UV/görünür, floresans ve kütle spektrometrisi dedektörleri yer alır. Elektrokimyasal deteksiyon, özellikle çalışma elektrodunda doğrudan oksitlenerek konsantrasyonlarıyla orantılı bir akım oluşturan DA ve 5-HT gibi katekolaminler ve indolaminler için oldukça uygundur. ECD'nin, örnekler analiz edilmeden önce genellikle daha fazla adım gerektiren ve bu nedenle daha karmaşık veya zaman alıcı olan floresans deteksiyonu ve ultraviyole deteksiyonu gibi alternatif deteksiyon yöntemlerine kıyasla daha basit ve daha doğru bir teknik olduğu belirtilmiştir42,43. HPLC-ECD, biyolojik örneklerdeki analitleri femtomolar konsantrasyonlarda tespit edebildiği için olağanüstü bir hassasiyet sunar44. Tek bir Drosophila beyninin sadece çok küçük bir miktar doku sağladığı göz önüne alındığında, bu hassasiyet düzeyi esastır. Kritik olarak HPLC-ECD, aynı zamanda tek bir örnekten birden fazla biyojenik aminin eş zamanlı olarak miktar tayinine olanak tanır; bu da bir Drosophila merkezi sinir sistemi preparatının tüm monoamin profilinin tek bir analitik çalışmada elde edilebileceği anlamına gelir.
Yöntemin, kapsamını belirleyen doğal sınırlamaları vardır. Bu yöntem oldukça hassas olsa da, Drosophila örneklerinden BA'ların kantifikasyonu beyinlerin havuzlanmasını gerektirir. Bu nedenle, diğer yaklaşımlarda olduğu gibi, tek beyin tespiti rapor edilmemiştir45. Diğer bir dezavantaj ise elektrot kirlenmesidir. Oksidatif yan ürünlerin yüzeyde ince bir yalıtkan tabaka oluşturmasıyla zamanla elektrot kirlenmesi meydana gelebilir; bu durum hassasiyeti etkiler ve sinyal kaymasına neden olur46. Bu durum, özellikle daha yüksek bir oksidasyon voltajı kullanıldığında sonuçlarımızda belirgindir (Şekil 2). Bu tür değişiklikleri hesaba katmak için, birkaç çalışmadan sonra standart enjeksiyonların tekrarlanması faydalı olabilir. Gözlemlenen piklerdeki kaymaları belirlemek için, mobil fazda veya deteksiyon potansiyelinde bir değişiklik yapıldığında standart enjeksiyonların da tekrarlanması gerekecektir. Elektrodun periyodik olarak temizlenmesi bu soruna yardımcı olabilir. Bir başka dezavantaj ise, HPLC-ECD'nin, analiz için sunulan doku boyunca entegre edilmiş amamin içeriğinin toplu ve statik bir ölçümünü sağlamasıdır. Bu yöntem, bu aminlerin beynin neresinde yer aldığına veya belirli nöronal popülasyonların göreli katkılarına dair bilgi vermez. GABA ve glutamat gibi elektroaktif olmayan bileşikler standart ECD koşulları altında tespit edilemez ve ayrı analizler gerektirir. Belki de en önemlisi, HPLC-ECD hedefli bir yöntemdir. Tamamen tutulum sürelerinin bilinen ve iyi tanımlanmış standartlarla karşılaştırılmasına dayandığı için, davranışsal bir fenotip ile ilişkili olabilecek bilinmeyen molekülleri tanımlamak için kullanılamaz. Davranışın nörokimyasal korelasyonlarının hedefsiz keşfi için LC-MS/MS gibi teknikler daha uygun olacaktır, ancak bunlar daha yüksek maliyetlidir.
Bu sınırlar dahilinde HPLC-ECD, şunlardaki iyi tanımlanmış ve biyolojik açıdan anlamlı bir dizi soruyu ele almaktadır: Drosophila bozukluk modellerinde kullanılabilir. Bir genotipin veya tedavinin kararlı durum amin seviyelerini değiştirip değiştirmediğini ve bu tür değişikliklerin tek bir nörotransmitter sistemine özgü olup olmadığını yoksa daha geniş bir monoamin profilini etkileyip etkilemediğini belirleyebilir. Gelişimsel aşamalar veya hastalık seyri boyunca nörokimyasal değişiklikleri takip ederek, saptanabilir davranışsal fenotiplerden önce gelen semptom öncesi biyokimyasal durumlar için kanıt sağlayabilir.47Ayrıca, farmakolojik veya genetik bir müdahalenin, belirli bir modeldeki amin eksikliklerini normalize edip etmediğini, normal değerlerin üzerine çıkarıp çıkarmadığını veya düzeltmede başarısız olup olmadığını değerlendirmek için de oldukça uygundur.26Her bir aminin hangi aşamada değiştiği, bir sistemin düzeltilmesinin diğerini etkileyip etkilemediği ve gelişimsel bir pertürbasyonun kalıcı bir nörokimyasal iz bırakıp bırakmadığı gibi soruları yanıtlamak, toplu, hassas ve çoklu amin yönteminin geliştirilme amacının tam olarak karşılığıdır. Şunlarla birlikte kullanıldığında: davranışsal analizler ve genetik araçlar... DrosophilaHPLC-ECD, bu bozukluk modellerinin yorumlama kapsamını önemli ölçüde genişleten kantitatif bir biyokimyasal katman sağlar.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
Bu çalışma, National Institutes of Health'in R00NS133470 (S.H.) sayılı hibesi tarafından desteklenmiştir. İçerik tamamen yazarların sorumluluğundadır ve National Institutes of Health'in resmi görüşlerini yansıtmayabilir. R.V.Z, Subvención a la Instalación en la Academia (SIA) N°85250142 tarafından ve J.M.C., FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Şili tarafından desteklenmektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| (+-) Oktopamin Hidroklorür | Sigma Aldrich | 770-05-8 | |
| 500 mL Filtre Ünitesi | Thermo Scientific | FB12566504 | 0.2 um aPES Membran, 75 mm çap |
| Asetik Asit, Glasyal | Fisher Scientific | 64-19-7 | |
| Sitrik Asit Anhidroz | USB | 77-92-9 | |
| Clarity Kromatografi Yazılımı | Data Apex | Version 10.1 | |
| Colibrick Veri Dönüştürücü | Data Apex | A/D dönüştürücü | |
| Dopamin Hidroklorür | Sigma Aldrich | 62-31-7 | |
| Dumont #5 pens (Dumoxel Biology) | Fine Science Tools | 11252-30 | Diseksiyon pensi |
| EDTA, Disodyum Tuzu, Dihidrat, Kristal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Ters Faz Ayırma Kolonu |
| EMD Milipore Synergy UV-R Ultrapure (Tip 1) Su | Milipore | ||
| Hamilton Şırınga 25ul (22s/2" /3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | HPLC Cihazı | |
| Hidroklorik Asit | Sigma Aldrich | 7647-01-0 | |
| Hafif Hizmet Doku Mendilleri | VWR | 82003-820 | |
| Metanol HPLC Derecesi | Fisher Scientific | 67-56-1 | 0.2 mikron filtrelenmiş |
| Perklorik Asit, suda %70 | Fisher Scientific | AC424032500 | 0.2 N PCA için kullanılır |
| Serotonin Hidroklorür %98 | Fisher Scientific | 153-98-0 | |
| Sodyum 1-oktansülfonat hidrat, HPLC derecesi, %99+ | Thermo Scientific | 5324-84-5 | |
| Sodyum Asetat, Trihidrat, Kristal | J.T Baker | 6131-90-4 | |
| Sonicator 1510 Bransonic Ultrasonik Temizleyici | Branson | Model #: 1510R-MT | Sonikatör |
| Ultrasonik İşlemci Sonikatör | Fisherbrand | Model FB50 | CL18 probu ile |
Kaynaklar
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında