Bu protokol, Drosophila larva duyusal nöronlarında floresan mikrotübül belirteçleri kullanılarak mikrotübül dinamiklerinin canlı konfokal görüntülemesi için bir kılavuz sunmaktadır.
Yöntem makalesi
Drosophila Duyusal Dendritlerinde In Vivo Mikrotübül Dinamiklerinin Görüntülenmesi
* These authors contributed equally
Bu makalede
Özet
Özet
Drosophila larva sınıf IV duyusal nöronları kütikülün hemen altında yer alır ve larval gelişim boyunca iki boyutta izotropik olarak genişleyen, oldukça dallanmış dendritik ağaçlar ile karakterize edilir. Bu ağaçların büyümesi; dendritik terminal uçların büyümesi, kısalması ve duraklamasını içeren stokastik süreçlerle yönlendirilir. Uç dinamiklerinin mikrotübül dinamikleri tarafından yönlendirildiği hipotezini test etmek için, dendritler içindeki floresan işaretli mikrotübüllerin görüntülenmesine yönelik protokoller geliştirilmiştir. Bu yöntem, konfokal mikroskopi kullanarak sınıf IV duyusal nöronların ince terminal dendritlerindeki mikrotübül dinamiklerinin görselleştirilmesini sağlar. Yöntem, bir membran markörü ile birlikte mikrotübüllerin görselleştirilmesine izin verirken, görüntüleme sırasında dendritik ağaç morfolojisinin korunması için tasarlanmıştır. Bu makale, canlı görüntüleme için Drosophila larvalarının hazırlanmasında ve dendritlerdeki floresan işaretli mikrotübüllerin görselleştirilmesinde kullanılan prosedürleri açıklamaktadır. Bu nedenle protokol, membran ko-etiketleme ile uyumlu kalarak, ince terminal dendritlerdeki mikrotübül davranışını incelemek için bir yaklaşım sunmaktadır.
Giriş
Nöronlar, hücre iskeletlerinin mimarilerini belirlediği yüksek derecede polarize hücrelerdir. Nöronal hücre iskeletinin bir bileşeni olan mikrotübüller, yapısal destek sağlar ve uzun mesafeli kargo taşınımı için ray görevi görür1,2. Mikrotübül hücre iskeleti, dendrit gelişimi için kritik öneme sahiptir3. Dendritler; dallanma, uzama ve kısalma süreçleri aracılığıyla stokastik olarak büyürler4. Drosophila larval dendritik arborizasyon (da) nöronları, dendritik morfogenezi incelemek için güçlü bir in vivo model sistemdir. Bu duyusal nöronlar, artan dendritik karmaşıklığa göre dört sınıfa (I–IV) ayrılır3,5. Sınıf IV da nöronları karmaşık, yüksek derecede dallanmış dendritlere sahiptir ve multimodal nosiseptörler olarak işlev görürler6,7,8. Bu nöronların dendritleri, abdominal segmentler boyunca stereotipik reseptif alanlar oluşturur ve şeffaf kütikülün hemen altında yer alır9,10. Bu anatomi, Drosophila'nın genetik olarak işlenebilirliği ile birlikte, sınıf IV da nöronlarını dendrit gelişimini yüksek uzamsal ve zamansal çözünürlükle in vivo görselleştirmek için uygun bir sistem haline getirir. Gelişim sırasında dendritler büyürken, uçları büyüme, kısalma ve duraklama durumları arasında stokastik olarak geçiş yapar11. Uç büyümesi ve kısalması, mikrotübül büyümesi ve kısalması ile birçok kinetik benzerlik paylaşır12. Bu nedenle, bu hücrelerdeki mikrotübül dinamiklerinin görselleştirilmesi oldukça ilgi çekicidir.
Canlı hücrelerde, özellikle de ... hücrelerindekilerde mikrotübül dinamiklerini görüntülemek için kullanılan yaygın bir yaklaşım, Drosophila larvalarda, EB1 ve EB3 gibi floresan işaretli uç-bağlayıcı proteinlerin görüntülenmesidir13,14,15,16,17,18Ancak, EB-GFP sinyallerinin yorumlanması belirsiz olabilir. Örneğin, hücre gövdesinden uzaklaşarak distal yöne doğru hareket eden bir EB-GFP noktası (punktum), dışa doğru büyüyen bir mikrotübül artı ucunu veya distal yönde kayan bir mikrotübülün içe doğru büyüyen artı ucunu temsil edebilir. EB-GFP ağırlıklı olarak büyüyen mikrotübüllerin artı uçlarını işaretlese de, büyüyen eksi uçları da işaretleyebilir.19bu durum ek belirsizliklere yol açmaktadır. Mikrotübüllerin doğrudan görüntülenmesi bu belirsizlikleri azaltabilir.
EB-GFP'ye alternatif bir yaklaşım , GFP-tübülin kullanarak mikrotübüllerin doğrudan işaretlenmesidir20,21. Ancak, floresan tübülin proksimal dendritleri güçlü bir şekilde işaretlemesine rağmen22, distal dendritleri işaretlemede yetersiz kalır23. Floresan tübülin ile ilgili bir diğer zorluk ise, çözünür tübülinin yüksek konsantrasyonunun, terminal dendritler gibi dar uzantılarda tekil mikrotübüllerin ayırt edilmesini zorlaştırmasıdır. Bu nedenle, normal fizyolojik koşullar altındaki sağlam nöronlarda mikrotübül dinamiklerinin görüntülenmesi zorlayıcı olmaya devam etmektedir.
The Drosophila memeli Tau, MAP2 ve MAP4'ün yapısal homologu olan mikrotübülle ilişkili protein (MAP) Jupiter, mikrotübülleri işaretlemek için kullanılmıştır Drosophila yumurtalık ve embriyolar dahil olmak üzere dokular24Sınıf IV dendritlerde, proksimal dallardaki mikrotübülleri nicelleştirmek için mCherry-Jupiter ve sfGFP-Jupiter kullanılmıştır.22,25,26Bu protokol, [belirtilen hücre/organizma türü] distal dendritlerindeki nöronal mikrotübül davranışının yüksek çözünürlüklü, zaman ayarlı (time-lapse) gözlemini sağlayan bir canlı görüntüleme yöntemini tanımlamaktadır. Drosophila Jupiter'in floresanla işaretlenmiş tübülin bağlama domenini eksprese eden sinek hatları kullanılarak sınıf IV nöronlar.
Protokol
Bu çalışmada, kurumsal hayvan etiği onayı gerektirmeyen bir omurgasız model olan Drosophila melanogaster kullanılmıştır. Protokol için kullanılan araçlar Materyaller Tablosunda listelenmiştir.
1. Deneysel sinek hatlarının oluşturulması
- İstenen ebeveyn hattını elde etmek için bir çaprazlama kurun. ppk promotörü altında GAL4 eksprese eden sınıf IV dendritik arborizasyon (da) nöronlarında mNeonGreen (mNG)-Jupiter'i eksprese etmek için GAL4/UAS ikili sistemini kullanın.
- Homozigot bir UAS-mNG-Jupiter hattından bakire dişileri, homozigot bir ppk-GAL4; CD4tdTomato hattından erkeklerle çaprazlayın. Hem ppk-GAL4; CD4tdTomato hem de UAS-mNG-Jupiter taşıyan F1 dölünü elde edin.
NOT: Hem ppk-GAL4; CD4tdTomato hem de UAS-mNG-Jupiter taşıyan F1 dölü, sınıf IV da nöronlarında güçlü bir şekilde mNG ve CD4tdTomato eksprese eder. Görüntülemeyi, en az üç bağımsız genetik çaprazlamadan türetilen larvaları kullanarak ve çaprazlama başına en az altı larva görüntüleyerek gerçekleştirin. - Çaprazlamayı, duvarına bir miktar maya pastası sürülmüş bir bakım şişesinde çiftleşme için tutun. 25 °C'de 2–3 gün inkübe edin.
NOT: Maya ile besleme, yumurtlamayı ve ovipozisyonu artırır. - Bir kaşık mayayı küçük bir behere koyup birkaç damla su ekleyerek maya pastasını hazırlayın. Gerektiğinde damla damla su ekleyerek, pasta yarı katı bir kıvam alana kadar bir spatula ile iyice karıştırın.
- Sinekleri her gün taze maya pastası içeren yeni bir bakım şişesine aktarın.
NOT: Maya pastasının ne çok yumuşak ne de çok sulu olduğundan emin olun. Çok yumuşak olursa sinekler yapışabilir. Ek metodolojik detaylar için bkz. Hales et al.27 ve Roote and Prokop28.
2. Üzüm-agar plaklarına yumurta bırakma, yumurta toplama ve larva evreleme
- 1 L'lik mikrodalgaya uygun bir beherde 376 mL distile su, 126 mL üzüm suyu, 15 g agar ve 6 g sükroz karıştırarak yaklaşık 0.5 L üzüm-agar besiyeri hazırlayın.
- Agar tamamen çözünene kadar her 1 dk'da bir çalkalayarak 3–5 dk boyunca mikrodalgada ısıtın. Karışımın hafifçe soğumasını bekleyin ve ardından 10 mL etanol ile 5 mL asetik asit ekleyin.
- İyice karıştırın ve üzüm-agar plakalarını hazırlamak için besiyerini 60 mm'lik Petri kaplarına dökün. Plakaları önceden hazırlayın, ters şekilde üst üste dizip Petri kabı kılıflarına sararak 4 °C'de saklayın ve 2 hafta içinde kullanın. Kullanmadan önce plakaları oda sıcaklığında ön ısıtmaya tabi tutun.
- Bakım şişesinden, 50 erkek ve 100 dişiden oluşan yaklaşık 150 sineği yumurtlama kafesine aktarın.
- Yumurtlama kafesinin üzerini, bir miktar maya macunu içeren 60 mm'lik bir üzüm-agar plakasıyla kapatın.
- Sineklerin, maya macunu içeren üzüm-agar plakasına 25 °C'de 2 saat boyunca yumurta bırakmasına izin verin. Plakayı maya macunu içeren taze bir üzüm-agar plakasıyla değiştirin ve 2 saat daha yumurtlamaya izin verin.
- Maya macunu içeren üçüncü bir 60 mm'lik üzüm-agar plakası sağlayın ve sineklerin 2 saat boyunca yumurta bırakmasına izin verin.
- Embriyo yaşındaki heterojenliği en aza indirmek için üçüncü plakayı deney plakası olarak kullanın ve ilk iki plakayı atın.
NOT: Dişi Drosophila döllenmiş yumurtaları yumurtlamadan önce birkaç saat boyunca üreme kanalında tutabildiği için ilk yumurta toplama genellikle farklı gelişim aşamalarındaki embriyoları içerir. İlk plakaların atılması, daha senkronize yumurtalar elde edilmesine yardımcı olur. - Yumurtlama sonrası (AEL) aşamalı görüntüleme için, deney plakalarındaki embriyoların istenen aşamaya gelene kadar 25 °C'de yaşlanmasına izin verin: Aşama 1, 24 sa; Aşama 2, 48 sa; Aşama 3, 72 sa ve Aşama 4, 96–120 sa.
3. Larvaların temizlenmesi
- Yüzeydeki maya kalıntılarını temizlemek ve kurumayı önlemek için larvaları 5 mL %5'lik sukroz çözeltisi ve ardından 5 mL dH₂O ile yıkayın.
- Tipik olarak üç veya dört larvayı, 3/0 numaralı bir resim fırçası kullanarak 35 mm'lik bir hücre kültürü kabının kapağına aktarın. Fazla suyu uzaklaştırmak için larvaları laboratuvar peçetesi ile kurulayın.
4. Anestezileme
- Anesteziden önce larvaları temizleyin ve kurulayın.
- Anestezi düzeneğini önceden hazırlayın (Şekil 1). Kap üzerindeki hava hareketini azaltmak ve isofluran anestezisinin bozulmasını en aza indirmek için hücre kültürü kabını karton kutu muhafazanın içine yerleştirin.
DİKKAT: İsofluran uçucu bir anesteziktir. İsofluranı uygun laboratuvar havalandırmasıyla ve kurumsal kimyasal güvenlik prosedürlerine uygun olarak taşıyın ve kullanın. Buharlaşma rezervuarı olarak hizmet eden 35 mm'lik bir hücre kültürü kabının içine koli bandı ile sabitlenmiş anestezi çubuğuna, ölçülmüş hacimdeki isofluranı ekleyerek larvaları immobilize edin. - Temiz ve kuru larvaları içeren hücre kültürü kabı kapağını, hücre kültürü kabının üzerine yerleştirin.
- Larvaları 2–3 dk boyunca anestezi altında tutun.
NOT: İsofluran hacmi ve anestezi süresi, larva evresine ve larva sayısına bağlıdır. Miktarı ampirik olarak belirleyin. Örneğin, üç adet 72 h larvayı yaklaşık 30 dk boyunca anestezi altında tutmak için 2 dk boyunca 10–20 µL isofluran kullanın. Larva evresinden bağımsız olarak, immobilizasyon için başlangıç dozu olarak larva başına dakikada 5 µL isofluran kullanın.
5. Montaj
- Temiz bir cam mikroskop lamı üzerine Vazelin ile dikdörtgen veya dairesel bir çevreleme yapın ve bir köşede küçük bir boşluk bırakın (Şekil 1C). Çevremeyi lam üzerine çizmek için bir kına aplikatörü kullanın.
- Anestezize edilmiş larvaları bir resim fırçası yardımıyla çevremeye aktarın. Larvaları, bir damla Halocarbon Oil 700 içinde sırt üstü gelecek şekilde yerleştirin.
- Larvanın üzerine No. 1.5 kapatma camı yerleştirin. Vazelin, kapatma camı ile lam arasındaki boşluğu mühürleyene ve larva mikroskop lamına karşı hafifçe düzleşene kadar nazikçe bastırın.
- Numuneyi, adım 5.2'de açıklanan aktarma adımından itibaren en geç 30–45 dakika içinde görüntüleyin. Membran kanalında kabarcıklanma (blebbing) veya dendrit kırılması dahil olmak üzere nöronal hasar gözlemlenirse görüntülemeyi durdurun; daha düşük dozda anestezik kullanın.
NOT: Kapatma camını yerleştirdikten sonra Halocarbon Oil içinde hava kabarcığı kalmadığından emin olun. Yüksek kaliteli dinamik videolar elde etmek ve kaymayı (drift) en aza indirmek için kabarcıklardan kaçınmak gerekir. Hava kabarcığı oluşumunu en aza indirmek için, kapatma camı yerleştirilirken havanın çıkmasına izin verecek şekilde Vazelin çevremesinin bir köşesinde küçük bir boşluk bırakın. Gerekirse boşluğu ince bir resim fırçası kullanarak mühürleyin.
6. Mikroskopi ve görüntüleme
- 50 µm pinhole ve mükemmel odaklama (perfect-focus) sistemi ile donatılmış bir spinning-disk konfokal mikroskop kullanarak larva örneklerinin canlı görüntülemesini gerçekleştirin.
- mNG-Jupiter gibi mikrotübül işaretleyicisini ve membran işaretleyicisi CD4tdTomato'yu görselleştirmek için, 100 mW lazerler varsayımıyla, 488 nm ve 561 nm lazer hatlarını maksimum gücün %30'una ayarlayın.
- Pozlama süresini 200 ms olarak ayarlayın. Görüntüleri, 6.5 µm sensörlere sahip bir sCMOS kamera ve ilgili görüntüleme yazılımı kullanarak yakalayın.
- Tüm görüntüleri, 1.25 sayısal açıklığa ve 0.1614 µm piksel boyutuna sahip 40× su daldırmalı objektif kullanarak elde edin.
- Sınıf IV nöronların şeffaf kütikül aracılığıyla kolayca erişilebilir olduğu dorsal yüzeyin ikinci, üçüncü ve dördüncü abdominal hemisegmentlerini belirlemek için örneği manuel olarak odaklayın.
- Her kayıt için, 1 µm adım aralıklarıyla 10 µm derinliğe kadar uzanan bir z-stack seti elde edin. Stack'leri 10 veya 15 dakika boyunca 10 s aralıklarla yakalayın.
NOT: Aksi belirtilmedikçe, görüntüleme için 72 h AEL'deki larvaları kullanın.
7. Görüntü işleme ve analizi
- .ND2 formatındaki edinilmiş zaman atlamalı videoları Bio-Formats içe aktarıcı kullanarak FIJI'ye (Fiji Is Just ImageJ) aktarın. Videoları, sonraki analizler için TIFF formatına dönüştürün.
- Örnek kaymasını düzeltmek için FIJI'deki görüntü sabitleme eklentisini afin dönüşüm ayarlarıyla kullanarak videoları sabitleyin.
- Hareket aşırı olduğunda videoları analiz dışı bırakın. Dakikada 1 µm'den fazla olan hareketleri aşırı kabul edin ve bu videoları analizden çıkarın. Ayrıca, membran belirteç kanalında (CD4tdTomato) baloncuklanma (blebbing) gözlemlenirse videoları analiz dışı bırakın.
- FIJI'de z-ekseni boyunca maksimum yoğunluk projeksiyonları oluşturarak z-yığınlarını iki boyutlu zaman serilerine dönüştürün.
- Uçların ve mikrotübüllerin dinamik özelliklerini nicelendirmek için FIJI'de ilgi duyulan özellik boyunca doğrusal ilgi bölgeleri (ROI) çizin. Kimograflar oluşturmak için FIJI'deki Multi Kymograph eklentisini kullanın. Kimografı ROI boyunca 3 piksel genişliğinde bir çizgi taraması kullanarak oluşturun ve FIJI'deki Multi Kymograph eklentisiyle işleyin.
- 3 piksellik bir çizgi genişliği ile Plot Profile aracını kullanarak yoğunluk profillerini çıkarın. Her bir çizgi taraması boyunca konum ve yoğunluğun dönüşümlü sütunlarda kodlandığı çok sütunlu bir CSV dosyası oluşturun.
- Alan içindeki boş bir bölgedeki eşleşmiş bir ROI'den arka plan yoğunluğunu tahmin edin. Her kareden arka plan yoğunluğunu çıkarın.
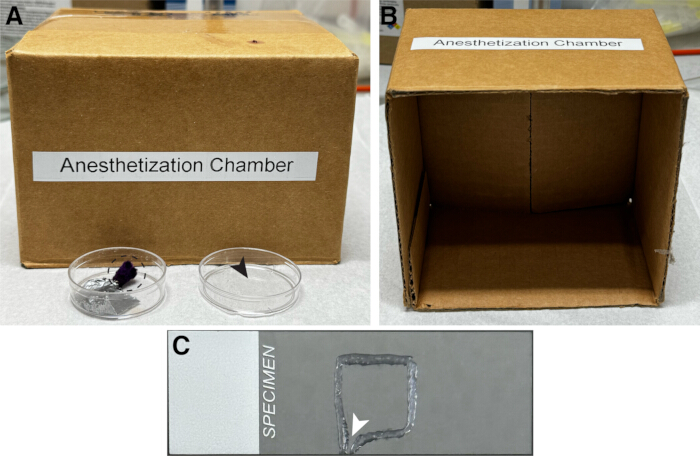
Şekil 1Anestezi düzeneğinin bileşenleri. (A) Koli bandı ile sabitlenmiş bir evaporasyon anestezik çubuğu içeren 35 mm'lik bir hücre kültürü kabını örten küçük bir karton kutu (siyah kesikli daire). Hücre kültürü kabının kapağı, anestezi öncesinde ve sırasında temiz, kuru larvaları tutmak için kullanılmıştır (siyah ok başı). (B) Kutunun iç görünümü. (C) Görüntüleme sırasında larva örneğini hapsetmek için kına dağıtıcı kullanılarak hazırlanan, kare vazelin çevrelemeli bir mikroskop lamı. Küçük bir boşluk (beyaz ok başı), lameli yerleştirirken havanın tahliye edilmesini kolaylaştırır. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
Sonuçlar
Yukarıda açıklanan protokol takip edilerek, mNG-Jupiter ve membran belirteci CD4tdTomato kombinasyonu kullanılarak sınıf IV dendritik arborizasyon (da) nöronlarında mikrotübüller başarıyla görselleştirilmiştir (Şekil 2A–C). Membran belirteci, dendritik arborun genel morfolojisini belirlemiş, mNG-Jupiter ise dendritler içindeki mikrotübül içeren bölgeleri etiketlemiştir. Terminal dendritlerin distal uçlarında, dendrit uçlarına yakın bölgelerde mNG-Jupiter floresansı zayıf veya yokken, karşılık gelen terminallerde CD4tdTomato floresansı güçlü kalmaya devam etmiştir (Şekil 2D–F).
Dendritik ağaçlar, önceki çalışmalarda11 yalnızca membran markörü ile görüntülenen larvalara kıyasla belirgin bir morfolojik fark göstermemiştir. mNG-Jupiter ekspresyonunun morfolojik anomalilere yol açıp açmadığını nicel olarak değerlendirmek için, 72 h AEL'de mNG-Jupiter eksprese eden ağaçlar ve kontrol ağaçlarındaki dendritik uç sayıları sayılmıştır. Sekiz mNG-Jupiter larvasından alınan sekiz hücrede, ağacın dörtte birindeki uç sayısı 153 ± 25 (ortalama ± SD) iken, kontrol larvalarında bu sayı 144 ± 27 (ortalama ± SD) olarak belirlenmiştir (Şekil 2G). Welch t-testi kullanılarak anlamlı bir fark saptanmamıştır (bkz. Şekil 2 açıklaması). Bu nedenle, mNG-Jupiter ekspresyonu dendritik dallanma sayısını saptanabilir düzeyde değiştirmemiştir.
Zaman serisi görüntüleme, terminal dendritler içindeki mNG-Jupiter sinyalinin dinamik davranışını ortaya koymuştur. Şekil 3A'da gösterilen temsili dizide, parlak mNG-Jupiter ile işaretlenmiş mikrotübül ucunun konumu zamanla değişmiştir. Mikrotübül konumundaki ve uzunluğundaki değişiklikleri görselleştirmek için mNG-Jupiter sinyalinin ardışık çizgi taramaları zamana göre düzenlenmiştir. Şekil 3B'deki sonuç kymografı, terminal dendritlerde işaretli mikrotübülün gözlemlenen büyüme ve kısalmasıyla tutarlı olarak, floresan sinyalin sırayla uzama ve geri çekilme evrelerini göstermektedir (Videolar 1 ve 2). Somaya daha yakın olan daha kalın dendritlerde, mikrotübül sayısının fazla olması, tekil mikrotübüllerin dinamiklerinin görselleştirilmesini engellemiştir.
Temsili görüntüler ve zaman atımlı kayıtlar birlikte, protokolün sağlam Drosophila larva duyusal nöronlarında hem dendritik morfolojinin hem de mikrotübül ilişkili floresansta meydana gelen dinamik değişikliklerin görselleştirilmesine olanak tanıdığını göstermektedir. Membran markörü dendritik yapı için bir referans sağlarken, mNG-Jupiter dendrit içindeki mikrotübül davranışının zaman içinde takip edilmesine imkan tanır (Şekil 2 ve 3).
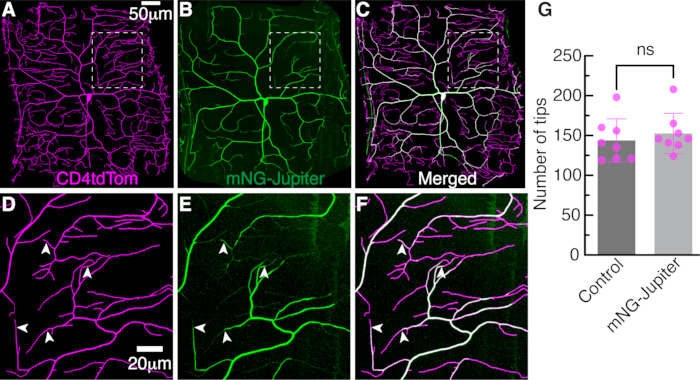
Şekil 2: Sınıf IV nöronlarda dendritler. Yumurta bırakımından (AEL) 72 saat sonra döner disk konfokal mikroskobu ile görüntülenen bir sınıf IV dendritik arborizasyon (da) nöronunun dendritik arbor yapısı. Mikrotübüller, GAL4/UAS ikili ekspresyon sistemi kullanılarak görselleştirilmiştir. Sınıf IV hücreye özgü sürücü ppk-GAL4 (pickpocket), mNG etiketli Jupiter (UAS-mNG-Jupiter) ekspresyonunu kolaylaştırır. Dendritik membranlar, CD4 membran markörüne füzyonlanmış tdTomato'nun doğrudan ppk promotör aracılı ekspresyonu ile işaretlenmiştir (ppk-CD4tdTomato). (A) Membran markörü, CD4tdTomato. (B) Mikrotübül markörü, mNG-Jupiter. (C) Birleştirilmiş görüntü. (D–F) Sırasıyla A–C'de beyaz kesikli kutularla çevrelenen bölgelerin büyütülmüş görünümleri, mikrotübül ve membran markörlerinin dağılımını göstermektedir. Beyaz ok uçları, terminal dendritlerdeki mNG-Jupiter dağılımını belirtmektedir. (G) 72 h AEL'de kontrol ve mNG-Jupiter eksprese eden nöronlardaki dendritik uç sayısının kantifikasyonu. Her nokta, farklı bir larvadan alınan tek bir nöronun dörtte birinde sayılan uç sayısını temsil eder. Grup başına sekiz bağımsız larvadan toplam sekiz nöron analiz edilmiştir. Hata çubukları ortalama ± SD'yi temsil eder. Gruplar, iki yönlü eşleştirilmemiş Welch t-testi kullanılarak karşılaştırılmıştır; ns, anlamlı değil (P > 0.05). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
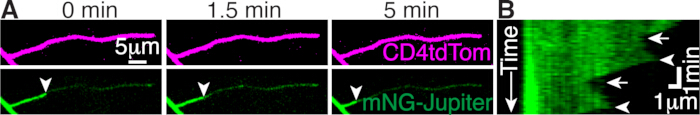
Şekil 3: Terminal bir dendritte mikrotübül dinamikleri. (A) Belirtilen zaman noktalarında CD4tdTomato (üst) ve mNG-Jupiter (alt) eksprese eden terminal bir dendritin üç görüntüsü. Ok uçları mikrotübül ucunu göstermektedir. Parlak mikrotübül sinyalinin ötesinde sönük bir mNG sinyali görülmektedir. (B) Mikrotübül büyümesini ve kısalmasını gösteren kimograf. Ok uçları büyüme fazlarını, oklar ise kısalma fazlarını göstermektedir. mNG sinyalinin ardışık 3 piksellik çizgi taramaları, zaman aşağı doğru artacak şekilde birbiri altına yerleştirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Video 1: Sınıf IV dendritik arborizasyon nöronlarında mNG-Jupiter'in zaman ayarlı görüntülemesi. Drosophila larval sınıf IV dendritlerinde mNG-Jupiter floresansını gösteren zaman ayarlı sekans. Sekans, dendritik arbor içindeki mikrotübülle ilişkili floresansta zamanla meydana gelen değişiklikleri örneklendirmektedir. Görüntüler, Protokol'de açıklanan canlı görüntüleme koşulları kullanılarak elde edilmiştir. Ölçek çubuğu, 20 µm. Lütfen bu dosyayı indirmek için buraya tıklayın.
Video 2: Sınıf IV dendritik arborizasyon nöronlarında CD4tdTomato membran markörünün zaman ayarlı görüntülemesi. İlgili Drosophila larval sınıf IV dendritik arborundaki CD4tdTomato floresansını gösteren zaman ayarlı sekans. Membran markörü, görüntüleme süresi boyunca dendritik morfoloji için bir referans sağlar. Görüntüler, Protokolde açıklanan canlı görüntüleme koşulları kullanılarak elde edilmiştir. Ölçek çubuğu, 20 µm. Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Bu protokol, konfokal mikroskopi kullanılarak Drosophila duyusal nöronlarındaki mikrotübül dinamiklerinin canlı görüntülemesi için transgenik Jupiter sinek hatlarının kullanımını göstermektedir. Bu yöntem, bir membran markörü kullanılarak değerlendirildiği üzere, dendritik morfolojiyi korurken bozulmamış larvalarda mikrotübülle ilişkili floresansın görselleştirilmesine olanak tanır11,29. Benzer bir yaklaşım, sınıf IV nöronlarda GFP-aktin ve LifeAct-GFP kullanılarak aktin dinamiklerini görüntülemek için de kullanılmıştır22,30,31,32. Prensipte, aynı genel yaklaşım sınıf IV hücrelerindeki ve diğer dendritik arborizasyon nöronu sınıflarındaki (Sınıf I, II ve III) diğer mikrotübül bağlayıcı proteinlerin görüntülenmesi için de uygulanabilir. Özellikle, floresan mikrotübül işaretlemesinin EB işaretlemesiyle birleştirilmesi, mikrotübül büyümesinin yorumlanmasındaki belirsizliği azaltabilir. Örneğin, bir EB kuyruğunun (comet) yokluğu, ya mikrotübüllerin yokluğunu ya da aktif olarak büyümeyen mikrotübüllerin varlığını gösterebilir; mikrotübüllerin doğrudan görselleştirilmesi bu olasılıkları ayırt etmeye yardımcı olabilir. Böylece, mNG-Jupiter'in floresan EB1 ile birlikte işaretlenmesi, mikrotübül büyüme dinamiklerinin; mikrotübül organizasyonu, bolluğu ve çıkarımlanan yöneliminin yerel bağlamı içinde yorumlanmasını sağlayabilir.
Uygun canlı görüntüleme verileri elde etmek için birkaç adım kritik öneme sahiptir. Protokol, tanımlanmış, kısa bir immobilizasyon rejimi için uçucu anestezik isofluran kullanır. İmmobilizasyon sırasında isofluran dozu dikkatle kontrol edilmelidir; çünkü yetersiz anestezi larval hareketlere izin verirken, aşırı anestezi nöronal dejenerasyona yol açabilir. Ayrıca, görüntü kalitesini bozabileceği ve örnek kaymasına neden olabileceği için montaj sırasında hava kabarcıklarından kaçınılmalıdır. Buna ek olarak, dendritik kabarcıklanmaya (blebbing) ve ardından nöronal hasara yol açabileceği için lamel camdan kaynaklanan aşırı basınçtan kaçınılmalıdır. Bu adımlar, görüntüleme boyunca örnek stabilitesinin ve dendritik morfolojinin korunması açısından önemlidir.
Bu protokolün önemli bir kısıtlaması, anestetik maruziyeti ve lamel ile fiziksel kısıtlamanın birleşimini içeren immobilizasyon ve görüntüleme yönteminin mikrotübül dinamiklerini etkileyebilmesidir. Bu koşullar altında mikrotübüllerin bozulup bozulmadığını belirlemek için, bu protokolle birlikte veya ayrı olarak alternatif immobilizasyon yöntemleri kullanılabilir. Bu yaklaşımlar arasında, embriyoların görüntülenmesi ve Shibirets 33 gibi sıcaklığa duyarlı mutantların kullanımı yer almakta olup, ardından büyüme hızları ve katastrof frekansı gibi kinetik parametrelerin karşılaştırılması yapılır.
Bu kısıtlamayla birlikte, mevcut protokol, larvaların montajdan sonra yaklaşık 30 dakika boyunca dendritik kabarcıklanma, morfoloji bozulması veya tespit edilebilir mikrotübül ve uç dinamiklerinin kaybı olmadan görüntülenmesine olanak tanır. Bu yöntem, sağlam larvalardan yüksek çözünürlüklü, zaman ayarlı verilerin elde edilmesini ve terminal dendritlerdeki dinamik mikrotübül davranışının görselleştirilmesini sağlar.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Yazarlar, mikrotübül etiketleme projesini başlatan eski laboratuvar üyesi Dr. Maijia Liao'ya ve Howard laboratuvarında Drosophila'daki dendritik dinamikleri görüntüleme protokolünü geliştiren Dr. Sonal Shree'ye ve Howard laboratuvarının tüm üyelerine teşekkür eder. Bu yayında rapor edilen araştırma, J.H.'ye verilen R35 GM161634 (Ulusal Genel Tıbbi Bilimler Enstitüsü) ve R01 NS118884 (Ulusal Nörolojik Bozukluklar ve İnme Enstitüsü) numaralı ödüller kapsamında Ulusal Sağlık Enstitüleri tarafından desteklenmiştir. İçerik tamamen yazarların sorumluluğundadır ve Ulusal Sağlık Enstitüleri'nin resmi görüşlerini mutlaka yansıtmaz. Bu çalışma ayrıca J.H.'ye verilen NSF PHY-2210464 hibesi ve PEW Charitable Trusts 38044 numaralı ödül tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Asetik asit (glasial, ACS reaktifi, ≥99.7%) | Sigma-Aldrich | 695092 | Üzüm-agar besiyerinin hazırlanmasında kullanılır; yaklaşık 0,5 L'lik hazırlama için 5 mL |
| Agar (baktoagar) | Becton Dickinson | 214010 | Üzüm-agar besiyerinin hazırlanmasında kullanılır; yaklaşık 0,5 L'lik hazırlık için 15 g |
| Anestezik kalem | Carolina Biological Supply Co. | 173010 | Larval anestezi sırasında izofloranı buharlaşma rezervuarı içinde tutmak için kullanılır |
| Beher, 1 L, mikrodalgaya uygun | Corning Inc. | 1000-1L | Yaklaşık 0,5 L üzüm-agar besiyeri hazırlamak için kullanılır |
| Beher, 100 mL | Corning Inc. | 1000-100 | Maya pastası hazırlamak için kullanılır |
| Bio-Formats içe aktarıcısı | Açık Mikroskopi Ortamı Projesi | Uygulanamaz | .ND2 zaman atlamalı dosyaları içe aktarmak için kullanılan FIJI eklentisi |
| Kamera (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm sensör; görüntüleme için kullanılır |
| Karton kutu (5 × 5 × 3 inç) | Uline | S-4579 | Anestezi düzeneğini örtmek ve hücre kültür kabı üzerindeki hava hareketini azaltmak için kullanılır |
| Hücre kültürü kabı | Corning Incorporated | 430165 | 35 × 10 mm; larva manipülasyonunda ve izofluran buharlaşma haznesi olarak kullanılır |
| Lamel | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, No. 1.5; monte edilmiş larvanın üzerine yerleştirilir |
| Darwin odası | Darwin Kamaraları | IN030-AA-LT-DA-MP | Sinek çaprazlamalarının sürdürülmesi, yumurtlama ve larval evreleme için kullanılır 25 °C |
| Distile su, laboratuvar reaktif sınıfı | Research Products International (RPI) | Uygulanamaz | Üzüm-agar hazırlama, maya-macunu hazırlama ve larvaların yıkanması için kullanılır |
| Koli bandı | Uline | S-6519 | Anestezik çubuğu hücre kültür kabı içinde sabitlemek için kullanılır |
| Yumurta bırakma kafesi/embriyo toplama kafesi | Genesee Scientific | 59-100 | Küçük boyut; 60'a uygundur × 15 mm'lik Petri kabı; kontrollü yumurta toplama için kullanılır |
| Etanol (susuz, 200 proof) | Decon Labs Inc. | V1001G | Üzüm-agar besiyerinin hazırlanmasında kullanılır; yaklaşık 0,5 L'lik hazırlık için 10 mL |
| FIJI (Fiji Is Just ImageJ) | NIH | Sürüm 2.16.0/1.54p | Görüntü içe aktarma, stabilizasyon, maksimum yoğunluk projeksiyonu, ROI analizi, kimograf oluşturma ve yoğunluk profili çıkarımı için kullanılır |
| Sinek hatları: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stok Merkezi(1); Howard Laboratuvarı (2) | BDSC# 32078, BDSC# 35845 | Sınıf IV dendritik arborizasyon nöronlarında CD4tdTomato ve mNG-Jupiter ekspresini sağlamak için kullanılır |
| Üzüm suyu, %100 Concord üzümü | Welch's | Uygulanamaz | Üzüm-agar besiyerinin hazırlanmasında kullanılır; yaklaşık 0,5 L'lik hazırlama için 126 mL |
| Halokarbon yağı 700 | Sigma-Aldrich | H8898 | Canlı görüntüleme için larvaların montajında kullanılır |
| Kına dağıtıcı | ZEYER | ZEYER-1005 | Mikroskop lamı üzerindeki vazelin çevresini oluşturmak için kullanılır |
| Görüntü Sabitleyici | Kang Li tarafından geliştirilmiştir | Uygulanamaz | Numune kaymasını düzeltmek için afin dönüşüm ayarlarıyla kullanılan FIJI eklentisi |
| İzofluran | Santa Cruz Biotechnology, Inc. | sc-470926 | Larvaların montajı ve görüntülenmesi öncesinde immobilize edilmesi için kullanılır |
| Laboratuvar mendili (Kimwipes) | Kimberly-Clark Professional | 34120 | Yıkanmış larvaların anestezi öncesinde fazla suyunu uzaklaştırmak için kullanılır |
| Atık şişesi | Lab Express Inc. | 7001-PBT | Kare tabanlı polipropilen şişe, 6 oz; Sinek Besini B (Bloomington Tarifi) içerir ve sinek stoklarının ve melezlemelerin sürdürülmesinde kullanılır |
| Mikrodalga | Panasonic | NN-SN686S | Üzüm-agar ortamının hazırlanması sırasında agarı çözmek için kullanılır |
| İnvert mikroskop | Nikon Instruments Inc. | 736228 | Canlı görüntüleme için perfect-focus sistemi ile donatılmış Ti Eclipse ters mikroskop |
| Mikroskop lamı | Fisherbrand | 12550143 | Superfrost lam; görüntüleme için larvaların monte edilmesinde kullanılır |
| Çoklu Kimograf | Jens Rietdorf, Arne Seitz ve Johannes Schindelin tarafından geliştirilmiştir | Uygulanamaz | Mikrotübül dinamiklerinin kimograflarını oluşturmak için kullanılan FIJI eklentisi |
| Nikon Elements yazılımı | Nikon Instruments Inc. | Sürüm 5.21.03 | Time-lapse mikroskopi görüntülerinin elde edilmesi ve .ND2 dosyalarının oluşturulması için kullanılır |
| Objektif, su daldırma | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; canlı görüntüleme için kullanılır |
| Boya fırçası | Hanedan | Bu kaynakta, fare modelinde *Sclerostin* (Sost) nakavt farelerin kemik kütlesi ve yapısı üzerindeki etkileri incelenmektedir. Bu prosedür, kemik yoğunluğu ve mikro mimarisinin değerlendirilmesi için mikrobilgisayarlı tomografi (mikro-BT) kullanımını ve ardından kemik histomorfometrik analizlerin gerçekleştirilmesini kapsamaktadır. | 0 ve 3/0 boyutları; larvaların transferinde ve vazelinli bölmenin sızdırmazlığının sağlanmasında kullanılır |
| Petri kabı | Falcon | 351007 | 60 × 15 mm; üzüm-agar plakaları için kullanılır |
| Spatul | VWR | 82027-532 | 22,9 cm (9 inç); maya macunu hazırlama sırasında maya ve suyu karıştırmak için kullanılır |
| Dönen diskli konfokal ünite | Yokogawa CSU-W1 | SBW001 | 50 µm iğne deliği; canlı konfokal görüntüleme için kullanılır |
| Sakkaroz | Sigma-Aldrich | 57-50-1 | Üzüm-agar besiyerinde ve larvaların yıkanması için %5'lik çözelti olarak kullanılır |
| Vazelin | Unilever | Uygulanamaz | Mikroskop lamı ile lamel arasında kapatma alanı oluşturmak için kullanılır |
| Maya (Red Star Aktif Kuru Maya) | Lesaffre Corporation | Uygulanamaz | Maya macunu hazırlamak ve yumurtlamayı desteklemek için kullanılır |
Kaynaklar
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında