Bu çalışmada, Corydalis yanhusuo'nun fibromiyalji sendromundaki öngörülen mekanizmalarını araştırmak için ağ farmakolojisi ve moleküler kenetleme kullanılmıştır.
Araştırma makalesi
Corydalis yanhusuo'nun Fibromiyalji Sendromuna Karşı Çok Hedefli Mekanizması: Bir Ağ Farmakolojisi ve Moleküler Kenetlenme Çalışması
Bu makalede
Özet
Özet
Fibromiyalji sendromu (FMS), sınırlı terapötik seçenekleri olan kronik bir ağrı bozukluğudur. Bu çalışma, ağ farmakolojisi ve moleküler kenetlenme kullanarak Corydalis yanhusuo'nun FMS'ye karşı çok hedefli mekanizmasını öngörmeyi amaçlamıştır. Aktif bileşenler, oral biyoyararlanımı (OB) ≥%30 ve ilaç benzerliği (DL) ≥0,18 olanlar arasından Geleneksel Çin Tıbbı Sistemler Farmakolojisi Veritabanı ve Analiz Platformu'ndan (TCMSP) alınmıştır. Hastalık hedefleri GeneCards'tan elde edilmiştir. Örtüşen hedefler; protein-protein etkileşimi (PPI), Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) analizleri için kullanılmıştır. Moleküler kenetlenme CB-Dock2 kullanılarak gerçekleştirilmiştir. Toplam 49 aktif bileşen ve 53 örtüşen hedef belirlenmiştir. Merkez hedefler arasında tümör nekroz faktörü (TNF), interlökin-6 (IL6), interlökin-1 beta (IL1B), östrojen reseptörü 1 (ESR1) ve prostaglandin-endoperoksit sentaz 2 (PTGS2) yer almıştır. KEGG analizi; interlökin-17 (IL-17), TNF, nükleer faktör kappa B (NF-κB) ve nöroaktif ligand-reseptör etkileşim yolaklarını ortaya çıkarmıştır. Öngörülen kenetlenme skorları −10,1 ile −6,5 kcal/mol arasında değişmiş olup, stigmasterol kolinerjik reseptör muskarinik 3 (CHRM3) ile en düşük öngörülen bağlanma enerjisini (−10,1 kcal/mol) göstermiştir. Bu bulgular, C. yanhusuo'nun özellikle nöroenflamasyonu ve nörotransmitter sinyalini modüle ederek çok bileşenli, çok hedefli ve çok yolaklı mekanizmalar aracılığıyla potansiyel anti-FMS etkileri gösterebileceğini düşündürmektedir. Deneysel doğrulama gereklidir.
Giriş
Fibromiyalji sendromu (FMS), küresel nüfusun yaklaşık %2–4'ünü etkileyen kronik bir ağrı bozukluğudur1,2,3. Ağırlıklı olarak kadınlarda görülür ve yaygın kas-iskelet sistemi ağrısı, yorgunluk, uyku bozuklukları ve bilişsel disfonksiyon ile kendini gösterir4,5,6. Öte yandan, fibromiyalji sendromu sıklıkla romatoid artrit ve sistemik lupus eritematozus dahil olmak üzere çeşitli hastalıkların bir komplikasyonu olarak ortaya çıkar7,8,9. On yıllardır süren araştırmalara rağmen, etiyolojisi tam olarak anlaşılamamıştır10,11. Mevcut kanıtlar, merkezi sinir sistemi içindeki ağrı sinyallerinin anormal amplifikasyonunu içeren merkezi sensitizasyonu temel bir mekanizma olarak göstermektedir12. Bu süreç, kronik nöroinflamasyon, oksidatif stres ve genetik yatkınlığın yanı sıra serotonin, dopamin ve norepinefrin gibi nörotransmitterlerdeki dengesizliklerle daha da modüle edilir13,14,15. Bu çok yönlü patofizyoloji, yalnızca klinik sunumlardaki belirgin heterojenliği açıklamakla kalmaz, aynı zamanda tipik olarak tek bir moleküler yolu hedefleyen geleneksel farmakoterapilerin sınırlı etkinliğini de açıklar. Antidepresanlar, antikonvülzanlar ve opioidler dahil olmak üzere ilaçlar genellikle sadece mütevazı bir rahatlama sağlar ve sıklıkla yan etkilerle ilişkilendirilir16,17,18,19. Bu nedenle, birden fazla patojenik hedefin eş zamanlı modülasyonunu sağlamak için yeni ilaç tedavilerinin daha fazla geliştirilmesi gerekmektedir.
Ağ farmakolojisi, çok bileşenli tedavilerin sinerjik mekanizmalarını sistematik olarak aydınlatmak için ilaç-hedef-hastalık ağ analiziyle entegre çalışan güçlü bir sistem biyolojisi yaklaşımıdır20,21. Geleneksel indirgemeci stratejilerin aksine bu yöntem; potansiyel aktif bileşenlerin, bunlara karşılık gelen protein hedeflerin ve toplu olarak modüle ettikleri biyolojik yolların öngörülmesini sağlayarak bitkisel ilaçların mekanizmalarını araştırmak için rasyonel bir çerçeve sunar22,23,24. Tamamlayıcı bir in silico araç olan moleküler kenetlenme, öngörülen ligand-hedef etkileşimlerini ve küçük moleküller ile hedefleri arasındaki potansiyel bağlanma modlarını daha detaylı değerlendirerek ağ tabanlı öngörülerin güvenilirliğini önemli ölçüde artırır25. C. yanhusuo, corydaline ve dehydrocorydaline gibi izokinolin alkaloidleri bakımından zengin, iyi bilinen bir analjezik bitkidir ve ağrı ile ilgili bozukluklar üzerinde gelecek vaat eden etkiler göstermiştir; ancak FMS'ye karşı spesifik mekanizması büyük ölçüde belirsizliğini korumaktadır26,27. Bu çalışmada, C. yanhusuo nun FMS tedavisindeki çok bileşenli, çok hedefli ve çok yollu mekanizmasını sistematik olarak incelemek için moleküler kenetlenme ile kombine edilmiş ağ farmakolojisi kullandık; amacımız, klinik uygulaması için teorik bir temel sağlamak ve karmaşık kronik ağrı sendromları için çok hedefli ilaç keşfine dair içgörüler sunmaktır.
Protokol
Aktif bileşenlerin ve hedeflerin edinimi
Geleneksel Çin Tıbbı Sistemler Farmakolojisi Veritabanı ve Analiz Platformu (TCMSP) (https://www.tcmsp-e.com, erişim tarihi 2 Ağustos 2026)28, mevcut tüm bileşenleri ve bunlara karşılık gelen ID'leri, isimleri, moleküler ağırlıkları, oral biyoyararlanımları (OB), ilaç benzerliklerini (DL) ve yapısal formülleri elde etmek amacıyla "yanhusuo" bitki ismi kullanılarak taranmıştır. OB ≥30% ve DL ≥0.18 değerine sahip bileşenler, daha sonraki düzenleyici ağ kurulumu için temel bileşenler olarak seçilmiştir29,30. Ardından, bu temel bileşenlerle ilişkili hedefler TCMSP veritabanından elde edilmiştir. Elde edilen hedef proteinler daha sonra UniProt veritabanı (versiyon 2025_01; https://www.uniprot.org; erişim tarihi 2 Ağustos 2026)31 kullanılarak resmi gen sembollerine göre standartlaştırılmıştır. Yinelenen kayıtlar çıkarıldıktan sonra, geri kalan hedefler ilaçla ilişkili olarak tanımlanmıştır.
Hastalıkla ilişkili hedeflerin belirlenmesi
GeneCards veri tabanında (https://www.genecards.org/, erişim tarihi 2 Ağustos 2026)32 “fibromyalgia” anahtar kelimesi kullanılarak arama yapılmıştır. Elde edilen tüm hedefler indirilmiş ve ek bir eşik filtrelemesi yapılmaksızın sonraki kesişim analizi için kullanılmıştır.
“İlaç-ana bileşenler-hedefler-hastalık” düzenleyici ağının oluşturulması
İlaçla ve hastalıkla ilişkili hedeflerin kesişimi alınmış ve örtüşen genler, C. yanhusuo 'nun fibromiyaljiye karşı terapötik hedefleri olarak tanımlanmıştır. Hesap tablolarında sırasıyla C. yanhusuo ile ana bileşenleri, ana bileşenler ile terapötik hedefler ve terapötik hedefler ile fibromiyalji arasındaki ilişkiler kurulmuştur. Bu ilişki verileri daha sonra metin (TXT) dosyalarına dönüştürülmüştür. Ardından, ilaçların, ana bileşenlerin, hedeflerin ve hastalıkların farklı renkler ve sembollerle ayırt edildiği ve aralarındaki bağlantıların grafiksel olarak görüntülendiği ağı görselleştirmek için Cytoscape yazılımı (versiyon 3.7.2, https://cytoscape.org/) kullanılmıştır33.
Protein-protein etkileşim (PPI) ağı analizi
STRING veritabanına (https://cn.string-db.org/, erişim tarihi 2 Ağustos 2026)34 erişilmiş ve C. yanhusuo'nun fibromiyaljiye karşı terapötik hedefleri, organizma olarak "Homo sapiens" seçilerek "Multiple Proteins" arama alanına yapıştırılmıştır. PPI ağı elde edildikten sonra, aktif etkileşim kaynakları Textmining, Experiments, Databases, Co-expression, Neighborhood, Gene Fusion ve Co-occurrence şeklinde ayarlanmış, gereken minimum etkileşim skoru ise orta güven eşiği (0.400) olarak belirlenmiştir. Ortaya çıkan PPI ağı ilişkileri bir TSV dosyası olarak dışa aktarılmış ve ardından Cytoscape yazılımına içe aktarılmıştır. Veriler yüklendikten sonra, Network Analyzer aracı kullanılarak kapsamlı bir topolojik analiz gerçekleştirilmiş ve tüm düğümler Degree değerlerine göre azalan sırada sıralanmıştır35. Son olarak, PPI ağında en yüksek bağlanabilirliğe sahip ilk 20 hedef, bir sütun grafiği kullanılarak görselleştirilmiştir.
GO ve KEGG zenginleştirme analizi
şunların terapötik hedefleri C. yanhusuo fibromiyaljiye karşı olanlar tekdüze olarak haritalandı ve National Center for Biotechnology Information (NCBI) veri tabanı kullanılarak karşılık gelen Entrez ID'lerine dönüştürüldü. Bu hedefler üzerinde, şu araç kullanılarak Gene Ontology (GO) zenginleştirme analizi gerçekleştirildi: clusterProfiler biyolojik süreç (BP), hücresel bileşen (CC) ve moleküler fonksiyon (MF) terimlerini kapsayan R yazılımı (versiyon 4.3.1, https://www.r-project.org/) paketi36,37Zenginleştirme sonuçları sütun grafikleri ve GO dairesel grafikleri kullanılarak görselleştirilmiştir. Kyoto Gen ve Genom Ansiklopedisi (KEGG) yolak zenginleştirme analizi için, enrichKEGG() içindeki işlev Aynı hedef setine clusterProfiler paketi uygulandı. Zenginleştirme anlamlılık düzeyi şu şekilde belirlendi: p < 0,05 olarak belirlenmiş ve görselleştirme için ham p-değerleri kullanılmıştır. Elde edilen KEGG yolak terimleri, bu bağlamda doğrudan biyolojik ilgisi olmayan "İnsan Hastalıkları" ve "Metabolizma" şeklindeki iki geniş kategoriyi dışlamak üzere filtrelenmiştir. Ardından, (anlamlılık sırasına göre) ilk 15 sinyal yolu seçilmiş ve kabarcık grafikleri kullanılarak görselleştirilmiştir. Ayrıca, hedefler ve yolaklar arasındaki ilişkiler çıkarılmış ve ağ görselleştirmesi için Cytoscape yazılımına aktarılmıştır.
Moleküler kenetlenme hedef seçimi
Kenetleme hedefleri, PPI ağından ziyade “ilaç–aktif bileşen–hedef–hastalık” düzenleyici ağından seçilmiştir. Spesifik olarak, düzenleyici ağdaki tüm hedef düğümleri dereceye göre sıralanmış ve en yüksek bağlantısallığa sahip ilk 10 düğüm moleküler kenetleme için seçilmiştir. Bu 10 hedef PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 ve ESR1 olarak belirlenmiştir.
Moleküler kenetlenme
Aktif bileşenlerin iki boyutlu (2D) yapıları, Ek Tablo 1'de listelenen PubChem CID'leri kullanılarak PubChem veri tabanından (https://pubchem.ncbi.nlm.nih.gov/, erişim tarihi 3 Ağustos 2026)38 alınmış ve docking ligandları olarak kullanılmak üzere Structure Data File (SDF) formatında kaydedilmiştir. Düzenleyici ağdaki ilk 10 temel hedefin üç boyutlu (3D) yapıları, docking reseptörleri olarak hizmet etmeleri için Protein Veri Bankası (PDB) formatında, Ek Tablo 2'de listelenen AlphaFold DB giriş ID'leri kullanılarak AlphaFold Protein Yapı Veri Tabanı'ndan (https://alphafold.ebi.ac.uk/, erişim tarihi 3 Ağustos 2026)39 alınmış ve indirilmiştir. Bu hedeflerin bazıları için deneysel kristal yapıları mevcut olsa da, birçok hedefin eksiksiz veya yüksek çözünürlüklü deneysel yapıları bulunmadığından ve karışık yapısal kaynaklar yanlılığa yol açabileceğinden, metodolojik tutarlılığı sağlamak amacıyla tüm 10 hedef için tek tip olarak AlphaFold modelleri kullanılmıştır. Docking öncesinde, ligandlar veya reseptörler üzerinde herhangi bir manuel yapısal modifikasyon yapılmamıştır. Her bir ligand her bir reseptörle eşleştirilmiş ve moleküler docking hesaplamaları için çevrimiçi kör docking platformu CB-Dock2'ye (https://cadd.labshare.cn/cb-dock2/, erişim tarihi 3 Ağustos 2026) gönderilmiştir. CB-Dock2; ko-kristalize su moleküllerinin uzaklaştırılması, hidrojen atomlarının eklenmesi, yüklerin atanması ve docking'e hazır formatlara dönüştürülmesi dahil olmak üzere gerekli hazırlık adımlarını otomatik olarak gerçekleştirmiştir. AutoDock Vina algoritmasına40 dayanan bu platform, küçük moleküller ve proteinler arasındaki docking konformasyonlarını tahmin etmek için protein yüzeyindeki potansiyel bağlanma ceplerini otomatik olarak tanımlar ve çevreler. Docking işleminden sonra, her çift için en düşük bağlanma enerjisi değerlerini içeren tüm ligand-reseptör kombinasyonlarının bir özet tablosu dışa aktarılmıştır. Her ligand-reseptör çifti için, tahmin edilen en düşük bağlanma enerjisine sahip poz, temsili bağlanma modu olarak seçilmiştir. Elde edilen docking verileri düzenlenmiş ve bir ısı haritası (heatmap) kullanılarak görselleştirilmiştir. 3D görselleştirme için, docking çıktı dosyası ve reseptör dosyası eş zamanlı olarak ChimeraX'e (versiyon 1.1) aktarılmıştır. Ligand küçük molekül seçilmiş ve etkileşen kalıntıların atomlarını ortaya çıkarmak ve etkileşimleri kaydetmek için "Structural Analysis" altındaki "Contact/H-bonds" aracı, "Limit by selection: with at least one end selected" seçeneği ile kullanılmıştır. Ardından, etkileşimler protein şeridine bağlı olduğunda kalıntı atomlarını görüntülemek için "cartoon suppress false" komutu girilmiştir. Son olarak, kalıntı isimlerini görüntülemek için "label @@display" komutu kullanılmıştır. Hidrojen bağları ve hidrofobik etkileşimler dahil olmak üzere moleküler etkileşimleri kapsamlı bir şekilde göstermek için LigPlus (versiyon 2.3.1) kullanılarak iki boyutlu etkileşim diyagramları oluşturulmuştur.
Sonuçlar
için örtüşen genlerin edinimi C. yanhusuo fibromiyalziye karşı
TCMSP veri tabanında yapılan bir araştırma, C. yanhusuo'dan 77 bileşen elde edilmesini sağlamıştır. OB ≥30% ve DL ≥0,18 kriterleri ile yapılan daha ileri taramalar sonucunda 49 aktif bileşen belirlenmiştir (Tablo 1). C. yanhusuo aktif bileşenleri için toplam 177 hedef ve fibromiyalji ile ilişkili 485 hedef, sırasıyla TCMSP ve GeneCards veri tabanlarından alınmıştır. İki hedef setinin kesişim analizi, C. yanhusuo'nun fibromiyalji için terapötik hedefleri olarak belirlenen 53 ortak hedef ortaya çıkarmıştır (Şekil 1).
“İlaç-aktif bileşenler-hedef-hastalık” düzenleyici ağının oluşturulması
Bir "ilaç-aktif bileşenler-hedef-hastalık" düzenleyici ağını daha detaylı oluşturmak için, bir geleneksel Çin tıbbı (C. yanhusuo), 49 aktif bileşen, 53 potansiyel hedef ve bir hastalık (fibromiyalji) ağa dahil edilmiştir (Şekil 2). Her bir aktif bileşenle ilişkili hedef sayısı tarama kriteri olarak kullanılarak; quercetin, isocorypalmine, hyndarin, (R)-canadine, leonticine, (S)-scoulerine, fumarine, clarkeanidine, stigmasterol ve cryptopin olmak üzere en önemli 10 çekirdek aktif bileşen belirlenmiştir.
PPI ağ analizi
şunların terapötik hedefleri: C. yanhusuo fibromiyalziye karşı olanlar bir PPI ağ analizine tabi tutulmuş ve 53 düğüm ile 480 etkileşim kenarından oluşan bir ağ elde edilmiştir (Şekil 3A). En yüksek sıralamaya sahip ilk 20 hedef; TNF, IL6, IL1B, ESR1, PTGS2, CXCL8, CCL2, IL1A, MMP9, ICAM1, IL10, IFNG, CRP, MYC, VCAM1, IL2, SERPINE1, CXCL10, ERBB2 ve MMP1 idi (Şekil 3B).
GO zenginleştirme analizi
Fibromiyalji tedavisi için C. yanhusuo 'nun potansiyel hedefleri üzerinde GO zenginleştirme analizi gerçekleştirilmiştir. Zenginleşen biyolojik süreçler (BP); ksenobiyotik stimülüse yanıt, etanole yanıt, monoamin transportu, lipopolisakkarite hücresel yanıt, fosfolipaz C-aktive eden G proteini kenetli reseptör sinyal yolu, bakteriyel kaynaklı moleküle hücresel yanıt, lipopolisakkarite yanıt, dopaminerjik sinaptik iletim, kan dolaşımı ve nitrik oksit metabolik sürecini kapsamaktadır. Hücresel bileşenler (CC); postsinaptik membran, sinaptik membran, presinaptik membran, nöronal hücre gövdesi, nöronal yoğun çekirdekli vezikül, yoğun çekirdekli granül, G proteini kenetli reseptör kompleksi, sinaptik vezikül membranı, eksositik vezikül membranı ve sinaptik vezikülde zenginleşmiştir. Moleküler fonksiyonlar (MF) için zenginleşen terimler arasında sitokin aktivitesi, sitokin reseptörü bağlanması, büyüme faktörü reseptörü bağlanması, monoamin transmembran taşıyıcı aktivitesi, katekolamin bağlanması, amin bağlanması, sodyum:klorür simporter aktivitesi, akseptör olarak oksijen içeren donörlerin CH‑NH₂ grubu üzerinde etkili oksidoredüktaz aktivitesi, kemokin aktivitesi ve monoatomik anyon:sodyum simporter aktivitesi yer almaktadır (Şekil 4A,B).
KEGG zenginleştirme analizi
C. yanhusuo ve fibromiyalji arasındaki örtüşen genlerin KEGG zenginleştirme analizi sonucunda 102 zenginleşmiş sinyal yolu belirlenmiştir. İnsan hastalıkları ve genel metabolizma ile ilgili yollar hariç tutulduktan sonra, net biyolojik düzenleyici öneme sahip 39 yol korunmuştur. İlk 15 yol şunlardır: IL-17 sinyal yolu, nöroaktif ligand sinyalleşmesi, TNF sinyal yolu, sitokin–sitokin reseptör etkileşimi, viral proteinlerin sitokin ve sitokin reseptörü ile etkileşimi, NF-κB sinyal yolu, serotonerjik sinaps, hormon sinyalleşmesi, C-tipi lektin reseptör sinyal yolu, nöroaktif ligand–reseptör etkileşimi, Toll-benzeri reseptör sinyal yolu, IgA üretimi için intestinal immün ağ, hücresel yaşlanma, JAK-STAT sinyal yolu ve HIF-1 sinyal yolu (Şekil 5A). Ardından, ilk 10 hedefin IL6, TNF, IL1B, CXCL8, PTGS2, IL10, IL2, CXCL10, CCL2 ve IFNG olduğu bir hedef–yol ağı oluşturulmuştur (Şekil 5B).
Moleküler kenetleme
“İlaç–aktif bileşen–hedef–hastalık” düzenleyici ağındaki en aktif 10 bileşen ile en önemli 10 çekirdek hedef arasında moleküler docking işlemi gerçekleştirilmiştir. Bu 10 hedef PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 ve ESR1 idi. Tüm docking kombinasyonları için öngörülen bağlanma enerjileri -5 kcal/mol değerini aşmamış ve genel skorların dağılımı bir ısı haritası olarak görselleştirilmiştir (Şekil 6A). Eşleştirilen tüm modeller arasında, stigmasterol ile CHRM3 arasındaki öngörülen bağlanma enerjisi küresel minimum değerdir (–10.1 kcal/mol). Bu nedenle, söz konusu kompleks daha ileri görselleştirme için seçilmiş; ana kalıntı etkileşimlerini gösteren üç boyutlu bir konformasyonel yapı ve iki boyutlu bir bağlanma modu diyagramı oluşturulmuştur (Şekil 6B). Bu değerler, deneysel olarak belirlenmiş bağlanma afinitelerinden ziyade öngörülen docking skorlarını/enerjilerini temsil etmektedir. Seçilen stigmasterol–CHRM3 kompleksi için öngörülen bağlanma modu, temel olarak Thr215, Ser227, Asp518, Pro217, Leu226, Glu220, Asn514, Phe222, Lys523, Trp526, Tyr128 ve Asn527 kalıntıları ile kurulan hidrofobik temaslar tarafından stabilize edilmiştir. Bu docking pozunda belirgin bir hidrojen bağı tespit edilmemiştir. Bu etkileşimler, stigmasterolün CHRM3 üzerinde belirgin bir öngörülen cep kapladığını göstermektedir; ancak, bunun yerleşik ortosterik veya allosterik bağlanma bölgeleri ile ilişkisi bağımsız olarak doğrulanmamıştır.
VERİ ERİŞİLEBİLİRLİĞİ:
Bu çalışmanın bulgularını destekleyen veriler, https://doi.org/10.57760/sciencedb.013nm adresindeki Science Data Bank'te açık erişime sunulmuştur. Daha fazla ayrıntı, makul bir talep üzerine sorumlu yazardan temin edilebilir.
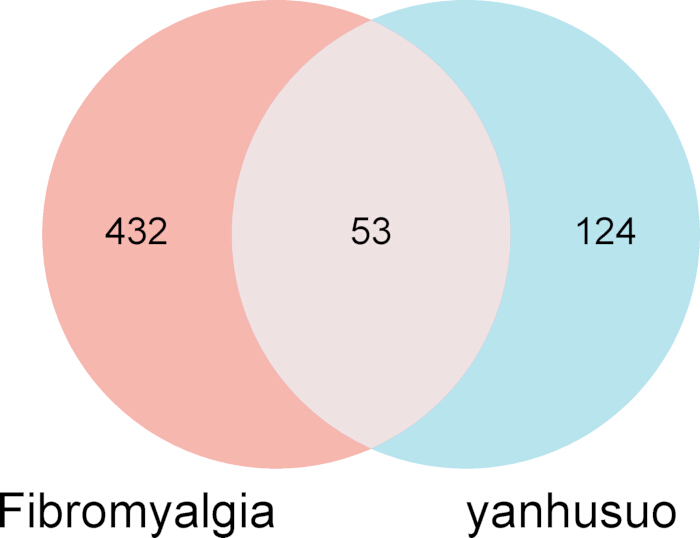
Şekil 1: C. yanhusuo aktif bileşen hedefleri ile fibromiyalji hastalığı hedefleri arasındaki kesişimin Venn diyagramı. Sol daire fibromiyalji ile ilişkili hedefleri; sağ daire ise C. yanhusuo aktif bileşenlerinin hedeflerini temsil etmektedir. Örtüşen bölge 53 ortak hedefi temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
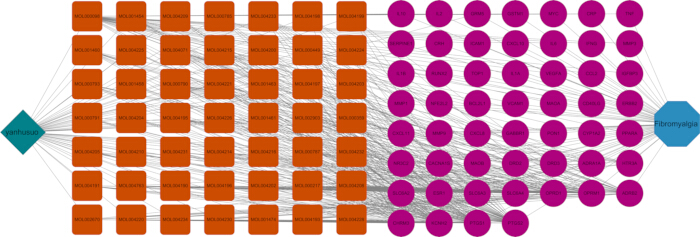
Şekil 2: ‘ilaç–aktif bileşen–hedef–hastalık’ düzenleyici ağı. Düğümler; her biri farklı bir renk ve şekille ayırt edilen ilaçları, aktif bileşenleri, hedefleri ve hastalıkları temsil eder. Kenarlar, düğümler arasındaki ilişkileri temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
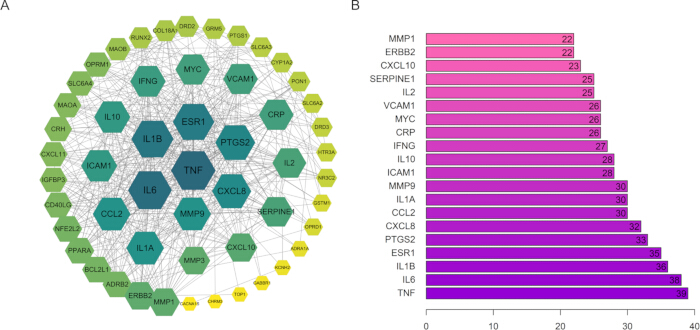
Şekil 3: Terapötik hedeflerin protein-protein etkileşim ağı analizi. (A) C. yanhusuo'nun fibromiyalziye karşı 53 ortak terapötik hedefinin, Cytoscape kullanılarak görselleştirilen PPI ağı. Tüm 53 hedef ağa eşlenmiş ve ağda tutulmuştur. Düğümler proteinleri, kenarlar ise protein-protein etkileşimlerini temsil eder. (B) Derece merkeziliğine göre sıralanan ilk 20 hedef. x-ekseni derece değerini, y-ekseni ise hedef gen sembollerini temsil eder. Kısaltmalar: PPI = protein-protein etkileşimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
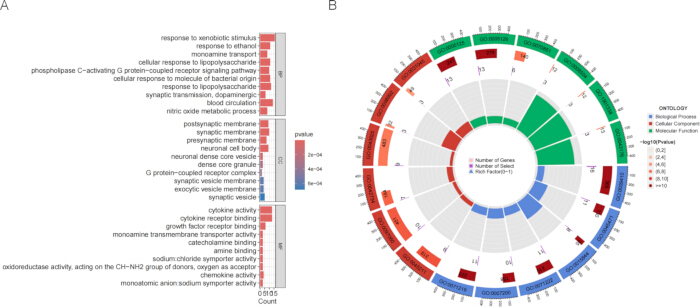
Şekil 4: C. yanhusuo aktif bileşenlerinin hedefleri ve fibromiyalji hedeflerinin GO zenginleştirme analizi. (A) En çok zenginleşen GO terimlerini gösteren sütun grafiği. x-ekseni gen sayısını; y-ekseni GO terimlerini temsil etmektedir. (B) GO zenginleştirme sonuçlarını görselleştiren dairesel grafikler. GO terimleri biyolojik süreç (BP), hücresel bileşen (CC) ve moleküler fonksiyon (MF) olarak gruplandırılmıştır. Renk ölçekleri ham p-değerlerini göstermektedir. Kısaltmalar: GO = Gene Ontology; BP = biyolojik süreç; CC = hücresel bileşen; MF = moleküler fonksiyon. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
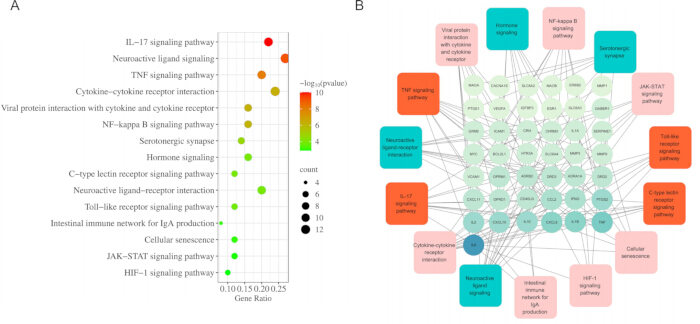
Şekil 5: C. yanhusuo'daki aktif bileşenlerin hedefleri ve fibromiyalji hedeflerinin KEGG zenginleştirme analizi. (A) En önemli 15 sinyal yolu. x-ekseni gen oranını; y-ekseni yol isimlerini temsil eder. Nokta boyutu gen sayısını; nokta rengi ham p-değerini belirtir. (B) En önemli 15 sinyal yolu ile hedefler arasındaki ilişkiler. (B)'de düğümler yol kategorisine göre renklendirilmiştir: kırmızı/turuncu düğümler inflamatuar/immün yolları, mavi düğümler ise nöral sinyal yollarını temsil eder. Bunlar arasında IL-17, TNF, Toll-benzeri reseptör ve C-tipi lektin reseptör sinyal yolları yukarı akış tetikleyicileri olarak; NF-κB, sitokin–sitokin reseptörü etkileşimi, Janus kinaz-sinyal iletici ve transkripsiyon aktivatörü (JAK-STAT), hipoksiyle indüklenen faktör 1 (HIF-1), hücresel yaşlanma ve IgA üretimi için intestinal immün ağ aşağı akış efektörleri olarak; nöroaktif ligand sinyalleşmesi, nöroaktif ligand–reseptör etkileşimi, serotonerjik sinaps ve hormon sinyalleşmesi ise merkezi sensitizasyonun amplifikatörleri olarak görev yapar. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
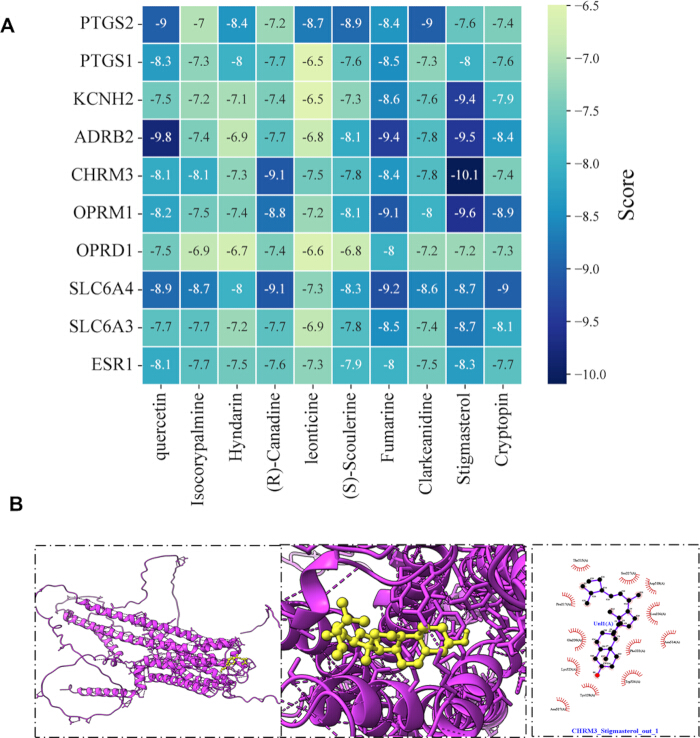
Şekil 6: Temel aktif bileşenlerin ve hedef proteinlerin moleküler kenetlenme analizi. (A) “İlaç-aktif bileşen-hedef-hastalık” düzenleyici ağındaki en önemli 10 aktif bileşen ile en önemli 10 temel hedef (PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 ve ESR1) arasındaki öngörülen moleküler kenetlenme bağlanma enerjilerinin ısı haritası. (B) Stigmasterolün CHRM3 ile üç boyutlu (3D) ve iki boyutlu (2D) bağlanma modu diyagramları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Mol ID | Molekül Adı | MW | OB(%) | DL |
| MOL004193 | Clarkeanidine | 327.41 | 86.65 | 0.5 |
| MOL001460 | Cryptopin | 369.45 | 78.74 | 0.7 |
| MOL004234 | 2,3,9,10-tetramethoxy-13-methyl-5,6-dihydroisoquinolino[2,1-b]isoquinolin-8-one | 381.46 | 76.77 | 0.7 |
| MOL004071 | Hyndarin | 355.47 | 73.94 | 0.6 |
| MOL000791 | bicuculline | 367.38 | 69.67 | 0.9 |
| MOL004195 | CORYDALINE | 369.5 | 65.84 | 0.7 |
| MOL000785 | palmatine | 352.44 | 64.6 | 0.7 |
| MOL004191 | Capaurine | 371.47 | 62.91 | 0.7 |
| MOL004200 | methyl-[2-(3,4,6,7-tetramethoxy-1-phenanthryl)ethyl]amine | 355.47 | 61.15 | 0.4 |
| MOL001463 | Dihydrosanguinarine | 333.36 | 59.31 | 0.9 |
| MOL000787 | Fumarine | 353.4 | 59.26 | 0.8 |
| MOL004232 | tetrahydroprotopapaverine | 329.43 | 57.28 | 0.3 |
| MOL002903 | (R)-Canadine | 339.42 | 55.37 | 0.8 |
| MOL004226 | 24240-05-9 | 353.4 | 53.75 | 0.8 |
| MOL004196 | Corydalmine | 340.45 | 52.5 | 0.6 |
| MOL004230 | stylopine | 323.37 | 48.25 | 0.9 |
| MOL000793 | C09367 | 325.39 | 47.54 | 0.7 |
| MOL004203 | Dehydrocorybulbine | 352.44 | 46.97 | 0.6 |
| MOL000098 | quercetin | 302.25 | 46.43 | 0.3 |
| MOL004198 | 18797-79-0 | 367.43 | 46.06 | 0.9 |
| MOL004215 | leonticine | 327.46 | 45.79 | 0.3 |
| MOL004190 | (-)-alpha-N-methylcanadine | 354.46 | 45.06 | 0.8 |
| MOL004210 | (1S,8'R)-6,7-dimethoxy-2-methylspiro[3,4-dihydroisoquinoline-1,7'-6,8-dihydrocyclopenta[g][1,3]benzodioxole]-8'-ol | 369.45 | 43.95 | 0.7 |
| MOL004205 | Dehydrocorydalmine | 338.41 | 43.9 | 0.6 |
| MOL000449 | Stigmasterol | 412.77 | 43.83 | 0.8 |
| MOL004228 | saulatine | 396.47 | 42.74 | 0.8 |
| MOL004204 | dehydrocorydaline | 366.47 | 41.98 | 0.7 |
| MOL004220 | N-methyllaurotetanine | 341.44 | 41.62 | 0.6 |
| MOL004216 | 13-methylpalmatrubine | 352.44 | 40.97 | 0.6 |
| MOL004214 | isocorybulbine | 368.51 | 40.18 | 0.7 |
| MOL004763 | Izoteolin | 327.41 | 39.53 | 0.5 |
| MOL004202 | dehydrocavidine | 351.43 | 38.99 | 0.8 |
| MOL004208 | demethylcorydalmatine | 327.41 | 38.99 | 0.5 |
| MOL004225 | pseudocoptisine | 320.34 | 38.97 | 0.9 |
| MOL004199 | Corynoloxine | 365.41 | 38.12 | 0.6 |
| MOL001474 | sanguinarine | 332.35 | 37.81 | 0.9 |
| MOL004197 | Corydine | 341.44 | 37.16 | 0.6 |
| MOL000359 | sitosterol | 414.79 | 36.91 | 0.8 |
| MOL001454 | berberine | 336.39 | 36.86 | 0.8 |
| MOL004209 | 13-methyldehydrocorydalmine | 352.44 | 35.94 | 0.6 |
| MOL000790 | Isocorypalmine | 341.44 | 35.77 | 0.6 |
| MOL002670 | Cavidine | 353.45 | 35.64 | 0.8 |
| MOL004231 | Tetrahydrocorysamine | 337.4 | 34.17 | 0.9 |
| MOL001461 | Dihydrochelerythrine | 349.41 | 32.73 | 0.8 |
| MOL000217 | (S)-Scoulerine | 327.41 | 32.28 | 0.5 |
| MOL004233 | ST057701 | 341.44 | 31.87 | 0.6 |
| MOL001458 | coptisine | 320.34 | 30.67 | 0.9 |
| MOL004221 | norglaucing | 341.44 | 30.35 | 0.6 |
| MOL004224 | pontevedrine | 381.41 | 30.28 | 0.7 |
Tablo 1: şunların aktif bileşenleri C. yanhusuo TCMSP'den tanımlananlar ve farmakokinetik parametreleri. MW, moleküler ağırlık; OB, oral biyoyararlanım; DL, ilaç benzerliği. OB ≥%30 ve DL ≥0,18 olan bileşenler, sonraki ağ oluşturma aşaması için ana bileşenler olarak tutulmuştur.
Ek Tablo 1: Moleküler kenetleme için kullanılan PubChem ligandları. Kenetleme ligandları olarak kullanılan 10 aktif bileşen; isimleri, PubChem CID'leri ve moleküler formülleriyle birlikte listelenmiştir. Tüm ligand yapıları, listelenen CID'ler kullanılarak PubChem'den SDF formatında alınmıştır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 2: Moleküler docking için kullanılan AlphaFold reseptör yapıları. Docking reseptörleri olarak kullanılan 10 hedef protein; gen sembolleri, UniProt erişim numaraları ve AlphaFold DB giriş kimlikleri ile birlikte listelenmiştir. Tüm reseptör yapıları AlphaFold Protein Yapı Veritabanı'ndan PDB formatında indirilmiştir.Lütfen bu dosyayı indirmek için buraya tıklayınız.
Tartışma
Bu çalışmada, FMS'nin potansiyel tedavisinde C. yanhusuo 'nun çok hedefli mekanizmalarını sistematik olarak öngörmek için moleküler kenetleme ile kombine edilmiş bir ağ farmakolojisi yaklaşımı kullandık. In silico bulgular, C. yanhusuo 'nun FMS'ye karşı potansiyel terapötik etkilerinin; 49 aktif bileşen, 53 ortak hedef ve birden fazla sinyal yolunu içeren karmaşık bir düzenleyici ağ aracılığıyla gerçekleşebileceğini öngörmektedir. Bu kapsamlı analiz, C. yanhusuo 'nun geleneksel olarak analjezik bir bitki olarak kullanımıyla tutarlı olmakla kalmayıp, aynı zamanda FMS'nin çok yönlü semptomatolojisinin yönetilmesine yönelik potansiyel mekanizmalarına dair öngörü tabanlı, moleküler düzeyde ön bilgiler sağlamaktadır.
"İlaç-aktif bileşenler-hedef-hastalık" düzenleyici ağının kurulması sonucunda, hedef bağlantı derecelerine dayanarak quercetin, isocorypalmine, hyndarin, (R)‑canadine, leonticine, (S)‑scoulerine, fumarine, clarkeanidine, stigmasterol ve cryptopin en önemli 10 temel aktif bileşen olarak belirlenmiştir. Quercetin; antioksidan, anti-enflamatuar ve immünomodülatör etkiler dahil olmak üzere önemli biyolojik aktivitelere sahip yaygın bir flavonoid bileşiğidir41. Deneysel farmakolojik çalışmalarda, quercetin müdahalesinin reserpinle indüklenen fibromiyalji model sıçanlarda kas hiperaljezisini, taktil allodiniyi ve soğuk allodiniyi belirgin şekilde iyileştirdiği rapor edilmiştir42. Bir hayvan modelinde stigmasterolün, reserpinle indüklenen fibromiyalji fare modelinde mekanik ve soğuk allodiniyi, ısı kaynaklı termal hiperaljeziyi, periorbital mekanik allodiniyi, kas gücü kaybını ve affektif-motivasyonel ağrı davranışlarını doz bağımlı olarak azalttığı bildirilmiştir43. Bu in vivo bulgular, söz konusu bileşiklerin fibromiyalji modellerindeki potansiyel ilişkisine dair dolaylı farmakolojik destek sağlamakta ancak mevcut çalışmada öngörülen spesifik moleküler hedefleri doğrulamamaktadır. Isocorypalmine, hyndarin, (R)‑canadine, leonticine, (S)‑scoulerine, fumarine, clarkeanidine ve cryptopin, C. yanhusuo içerisinde bulunan alkaloidlerdir ve bu alkaloidlerin iyon kanalı blokajı, nörotransmitter regülasyonu ve siklooksijenaz-2 (COX-2) inhibisyonu yoluyla ağrı kesici etkiler ürettiği rapor edilmiştir.
PPI ağ analizi; TNF, IL6, IL1B, ESR1 ve PTGS2'yi en üst sıralardaki merkez hedefler olarak öngörmüş olup, bu durum nöroenflamasyon ve immün modülasyonun FMS patofizyolojisinde potansiyel olarak önemli bir rolü olduğunu düşündürmektedir. Sadece sıralamanın ötesine geçmek amacıyla, merkez hedefleri bilinen biyolojik fonksiyonlarına ve ağ bağlantılarına göre üç fonksiyonel modüle ayırdık: bir enflamatuar/sitokin modülü (TNF, IL6, IL1B, CXCL8), bir nörotransmitter reseptör modülü (CHRM3, ADRB2, ESR1) ve bir sinyal iletim modülü (PTGS2, MMP9). Bu modüller, tek başına hareket etmek yerine, FMS'deki “periferik immün aktivasyon → merkezi sensitizasyon” kısır döngüsünü kooperatif bir şekilde tetikliyor olabilir. Kronik düşük dereceli enflamasyon, FMS'nin temelinde yatan bir mekanizma olan merkezi sensitizasyona katkıda bulunan bir faktör olarak giderek daha fazla kabul görmektedir. TNF ve IL‑1β, glial hücreleri aktive ederek ve ağrı işlemede yer alan omurilik ile beyin bölgelerindeki sinaptik eksitabiliteyi artırarak ağrı sinyallemesini güçlendiren temel pro-enflamatuar sitokinlerdir44,45,46. Öngörülen ağ, kuersetin ve stigmasterol gibi C. yanhusuo'nun birden fazla aktif bileşeninin bu enflamatuar mediyatörleri eş zamanlı olarak hedefleyebileceğini göstermekte ve bu da potansiyel bir geniş spektrumlu anti-nöroenflamatuar etkiye işaret etmektedir47,48,49. Pregabalin ve duloksetin gibi konvansiyonel farmakoterapilerin öncelikle nörotransmitter seviyelerini modüle etmek için tasarlandığı ve FMS'nin enflamatuar bileşenini doğrudan hedeflemeyebileceği göz önüne alındığında, bu durum özellikle önem taşımaktadır.
GO zenginleştirme analizi, C. yanhusuo'nun modüle edebileceği biyolojik süreçleri daha ileri düzeyde öngörmüş olup, öne çıkan terimler arasında ksenobiyotik stimülusa yanıt, monoamin transportu, dopaminerjik sinaptik iletim ve lipopolisakkaritlere hücresel yanıt yer almaktadır. Bu öngörülen bulgular, her ikisi de FMS hastalarında sıklıkla bozulan ağrı modülasyonu ve ruh hali regülasyonundaki dopamin ve serotonin rolleriyle tutarlıdır. KEGG yolak zenginleştirme analizi, C. yanhusuo'nun potansiyel hedeflerinin öncelikle IL-17 sinyal yolağı, nöroaktif ligand-reseptör etkileşimi, TNF sinyal yolağı, sitokin-sitokin reseptör etkileşimi ve NF-κB sinyal yolağında yer alabileceğini öngörmüştür.
IL‑17 sinyal yolu, nötrofil katılımına aracılık ederek ve TNF ile IL‑6 gibi pro‑inflamatuar sitokinlerin salınımını teşvik ederek, inflamatuar ve otoimmün durumlarda kronik ağrının kritik bir tetikleyicisi olarak ortaya çıkmıştır50,51,52. C. yanhusuo'nun bu yolu hedeflemesi, bitkinin, FMS semptom alevlenmelerine katkıda bulunduğu giderek daha fazla kabul edilen periferik immün aktivasyonu ve ardından gelen merkezi nöroinflamasyonu hafifletebileceğini göstermektedir. Dahası, nöroaktif ligand‑reseptör etkileşim yolu; tamamı FMS'deki ağrı işleme ve bilişsel disfonksiyon ile ilişkili olan glutamaterjik, GABAerjik ve kolinerjik sinyalizasyon dahil olmak üzere birden fazla nörotransmitter sistemi için bir yakınsama noktası görevi görür50,51,52,53,54,55. Bu yolun C. yanhusuo tarafından regülasyonu, bitkinin yalnızca ağrıyı değil, aynı zamanda FMS ile ilişkili yorgunluk, uyku bozuklukları ve duygu durum bozukluklarını da modüle etme potansiyelini kısmen açıklayabilir.
Moleküler kenetlenme sonuçları, "ilaç–aktif bileşen–hedef–hastalık" düzenleyici ağındaki en aktif 10 bileşen ile en temel 10 hedef (PTGS2, PTGS1, KCNH2, ADRB2, CHRM3, OPRM1, OPRD1, SLC6A4, SLC6A3 ve ESR1) arasındaki potansiyel bağlanma etkileşimlerine dair in silico bir öngörü sağlamıştır. Özellikle, tüm ligand–reseptör çiftleri için öngörülen bağlanma enerjileri -5 kcal/mol'in altında çıkmış olup, bu durum orta ile güçlü düzeyde öngörülen bir bağlanmaya işaret etmektedir. En düşük öngörülen kenetlenme skoru stigmasterol–CHRM3 (−10.1 kcal/mol) için gözlemlenmiş, bunu quercetin–ADRB2 (−9.8 kcal/mol) ve stigmasterol–OPRM1 (−9.6 kcal/mol) izlemiştir. Daha önce C. yanhusuo içerisinde tanımlanan bitki kaynaklı bir fitosterol olan stigmasterol, çeşitli hastalık modellerinde antiinflamatuar ve antioksidan aktiviteler göstermiştir56,57,58. CHRM3 ve ADRB2'ye öngörülen güçlü bağlanması, alkaloidlerin yanı sıra, non-alkaloid bileşenlerin de kolinerjik ve adrenerjik sinyallemeyi modüle ederek C. yanhusuo'nun terapötik etkinliğine katkıda bulunabileceğini göstermektedir; bu sinyallemeler otonom sinir sistemi düzenlemesi ve ağrı modülasyonu için kritiktir. Stigmasterolün CHRM3 ve ADRB2'ye öngörülen güçlü bağlanması, C. yanhusuo'nun geleneksel "Qi'yi düzenleme ve ağrıyı giderme" özelliği ile ilişkili olabilir. Steroid olmayan antiinflamatuar ilaçların (NSAİİ) aksine, C. yanhusuo hem inflamatuar mediyatörler hem de otonom nörotransmitter reseptörleri üzerinden etki ederek potansiyel bir ikili mekanizma sunabilir. Kolinerjik antiinflamatuar yolak ile klasik TNF/IL-6 yolağının göreceli katkıları henüz deneysel olarak doğrulanmamıştır. Temel bileşenler arasında quercetin geniş spektrumlu bir antiinflamatuar bileşen olarak görev yapabilirken, stigmasterol CHRM3 ve ADRB2 gibi seçili hedeflerle nispeten güçlü öngörülen kenetlenme etkileşimleri gösterebilir. Bu "geniş kapsam + yüksek hassasiyet" örüntüsü, FMS'nin heterojen ağrı özellikleriyle örtüşebilir.
öngörülerin kısıtlamalara dönüştürülmesi
Ağ farmakolojisi öngörüye dayalı olsa da, bulgular ihtiyatla yorumlanmalıdır. Öngörülere dayanarak, C. yanhusuo'nun klinik açıdan en gelecek vaat eden fraksiyonunun, tüm karışımdan ziyade quercetin ve stigmasterol açısından zenginleştirilmiş spesifik bir ekstrakt olabileceğini hipotez ediyoruz. Bu hipotez deneysel doğrulama gerektirmektedir. Gelecekteki çalışmalar, öngörülen hedef ve yolakları doğrulamak amacıyla bu tür zenginleştirilmiş fraksiyonların in vitro ve in vivo olarak izole edilmesine ve test edilmesine odaklanmalıdır.
Sonuç
Bu çalışma, C. yanhusuo'nun birden fazla bileşen, hedef ve yolak ile ilişkili sinerjik bir mekanizma aracılığıyla fibromiyalji sendromuna karşı terapötik etkiler göstereceğini ve temel etkilerin potansiyel olarak nöroinflamasyonun baskılanması ve nöromodülasyon etrafında odaklandığını öngörmektedir. Entegre ağ farmakolojisi ve moleküler kenetleme analizleri; quercetin ve stigmasterol gibi temel aktif bileşenlerin, kritik inflamatuar mediyatörleri ve nöroaktif sinyal yollarını toplu olarak düzenleyeceğini, böylece hem periferik immün aktivasyonu hem de merkezi sensitizasyonu potansiyel olarak modüle edebileceğini ortaya koymaktadır. Bu bulgular, C. yanhusuo'nun FMS'de gelecekteki deneysel araştırmaları ve potansiyel klinik uygulamaları için öncül, öngörüye dayalı bir temel sağlamakta ve kompleks kronik ağrı bozuklukları için hipotez güdümlü, çok hedefli ilaç keşfine ışık tutabilmektedir. Bu öngörülerin doğrulanması için deneysel validasyon gereklidir.
Kısıtlamalar:
Bu çalışma, deneysel ve klinik doğrulamadan yoksun olan, yalnızca in silico ağ farmakolojisi ve moleküler kenetleme öngörülerine dayanmaktadır. OB ≥30% ve DL ≥0.18 eşikleri ağ farmakolojisinde standarttır; ancak bu eşikler, bazı analjezik alkaloidler gibi potansiyel olarak aktif düşük OB değerli bileşikleri dışlayabilir. Moleküler kenetleme için deneysel kristal yapılar yerine AlphaFold tarafından öngörülen yapıların kullanılması bir kısıtlamadır. Gelecekteki kenetleme çalışmaları, mümkün olan yerlerde mevcut PDB yapılarını kullanarak bu öngörüleri doğrulamalıdır. Gelecekteki araştırmalar, belirlenen hedefleri ve yolakları doğrulamak için in vitro ve in vivo deneyleri ve ardından fibromiyalji hastalarında C. yanhusuo ekstraktının terapötik etkinliğini ve güvenliğini değerlendirmek için klinik çalışmaları içerecektir. Nihayetinde, fibromiyalji sendromunda klinik uygulama için standartlaştırılmış bir C. yanhusuo preparatı geliştirmeyi amaçlamaktayız.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Yapay Zeka Kullanım Beyanı: Bu çalışmanın hazırlanması sırasında yazarlar, dilin iyileştirilmesi ve dil bilgisi kontrolü için Deepseek kullanmışlardır. Yapay zeka destekli tüm içerikler, yayının tüm sorumluluğunu üstlenen yazarlar tarafından incelenmiş ve gözden geçirilmiştir.
Teşekkürler
Yazarlar, bu çalışma ve/veya yayını için herhangi bir finansal destek alınmadığını beyan etmişlerdir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| AlphaFold Protein Structure Database | DeepMind & EMBL-EBI | https://alphafold.ebi.ac.uk/ | Kenetlenme reseptörleri olarak temel hedef proteinlerin 3D yapıları (PDB) indirildi. |
| CB-Dock2 | Çevrimiçi kör kenetlenme platformu | https://cadd.labshare.cn/cb-dock2/ | AutoDock Vina tabanlı kör kenetlenme; bağlanma cepleri belirlendi, konformasyonlar tahmin edildi ve en düşük bağlanma enerjileri dışa aktarıldı. |
| ChimeraX | UCSF Resource for Biocomputing, Visualization, and Informatics | https://www.cgl.ucsf.edu/chimerax/ | Protein–ligand komplekslerinin 3D bağlanma konformasyonları görselleştirildi. Versiyon 1.1 |
| Cytoscape | Cytoscape Consortium | https://cytoscape.org/ | İlaç–bileşen–hedef–hastalık ve PPI ağları oluşturuldu ve görselleştirildi; Network Analyzer aracılığıyla topolojik analiz (Derece sıralaması) yapıldı. Versiyon 3.7.2 |
| GeneCards | Weizmann Institute of Science, İsrail | https://www.genecards.org/ | “fibromyalgia” anahtar kelimesi kullanılarak fibromiyalji ile ilişkili hedefler getirildi; getirilen tüm hedefler ek bir eşik filtrelemesi yapılmadan tutuldu. |
| LigPlus | Uygulanamaz | http://www.ebi.ac.uk/thornton-srv/software/LigPlus/ | Hidrojen bağlarını ve hidrofobik etkileşimleri gösteren 2D etkileşim diyagramları oluşturuldu. Versiyon 2.3.1 |
| PubChem | National Library of Medicine (NCBI), ABD | https://pubchem.ncbi.nlm.nih.gov/ | Kenetlenme ligandları olarak en aktif 10 bileşenin 2D yapıları (SDF) getirildi. |
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | clusterProfiler kullanılarak GO ve KEGG zenginleştirmesi yapıldı; "İnsan Hastalıkları" ve "Metabolizma" yolakları hariç tutuldu. Versiyon 4.3.1 |
| STRING | STRING Consortium (EMBL, SIB, vb.) | https://string-db.org/ | PPI ağı oluşturuldu (Homo sapiens, güven düzeyi ≥0.400); Cytoscape için TSV dışa aktarıldı. |
| TCMSP | Northwest A&F University, Çin | https://www.tcmsp-e.com/ | C. yanhusuo'nun tüm bileşenleri getirildi; aktif bileşenler tarandı (OB≥30%, DL≥0.18); ilgili hedef proteinler elde edildi. |
| UniProt | UniProt Consortium (EBI, SIB, PIR | https://www.uniprot.org/ | Hedef proteinler resmi gen sembollerine (Homo sapiens) dönüştürüldü. Versiyon 2025_01 |
Kaynaklar
- Winslow BT, Vandal C, Dang L. Fibromyalgia: diagnosis and management. Am Fam Physician. 2023;107(2):137-144.
- Kocyigit BF, Akyol A. Fibromyalgia syndrome: epidemiology, diagnosis and treatment. Reumatologia. 2022;60(6):413-421.
- Berwick R, Barker C, Goebel A; Guideline Development Group. The diagnosis of fibromyalgia syndrome. Clin Med (Lond). 2022;22(6):570-574.
- Carrasco-Querol N, et al. Nutrition and chronobiology as key components of multidisciplinary therapeutic interventions for fibromyalgia and associated chronic fatigue syndrome: a narrative and critical review. Nutrients. 2024;16(2):182.
- Ughreja RA, Venkatesan P, Balebail Gopalakrishna D, Singh YP. Effectiveness of myofascial release on pain, sleep, and quality of life in patients with fibromyalgia syndrome: a systematic review. Complement Ther Clin Pract. 2021;45:101477.
- Favretti M, Iannuccelli C, Di Franco M. Pain biomarkers in fibromyalgia syndrome: current understanding and future directions. Int J Mol Sci. 2023;24(13):10443.
- Minhas D, Murphy A, Clauw DJ. Fibromyalgia and centralized pain in the rheumatoid arthritis patient. Curr Opin Rheumatol. 2023;35(3):170-174.
- Monteiro JAM, et al. Fibromyalgia comorbidity in systemic lupus erythematosus patients: assessing impact on quality of life. Adv Rheumatol. 2024;64(1):90.
- Chen G, Yan Z, Wang Y, Tao Q. Rheumatoid arthritis and fibromyalgia syndrome: a bibliometric and bioinformatics perspective on comorbidity research. J Multidiscip Healthc. 2025;18:6811-6827.
- Jurado-Priego LN, Cueto-Ureña C, Ramírez-Expósito MJ, Martínez-Martos JM. Fibromyalgia: a review of the pathophysiological mechanisms and multidisciplinary treatment strategies. Biomedicines. 2024;12(7):1543.
- Paroli M, Gioia C, Accapezzato D, Caccavale R. Inflammation, autoimmunity, and infection in fibromyalgia: a narrative review. Int J Mol Sci. 2024;25(11):5922.
- Marino Y, et al. Role of mitochondrial dysfunction and biogenesis in fibromyalgia syndrome: molecular mechanism in central nervous system. Biochim Biophys Acta Mol Basis Dis. 2024;1870(7):167301.
- Malik A, et al. Serotonin and norepinephrine reuptake inhibitors (SNRIs) for treatment of fibromyalgia: a comprehensive clinical review. Psychopharmacol Bull. 2025;55(2):24-40.
- García-Domínguez M. Fibromyalgia and inflammation: unrevealing the connection. Cells. 2025;14(4):271.
- Assavarittirong C, Samborski W, Grygiel-Górniak B. Oxidative stress in fibromyalgia: from pathology to treatment. Oxid Med Cell Longev. 2022;2022:1582432.
- Giorgi V, et al. Pharmacological treatment of fibromyalgia syndrome: a practice-based review. Curr Pain Headache Rep. 2024;28(12):1349-1363.
- Migliorini F, et al. Duloxetine for fibromyalgia syndrome: a systematic review and meta-analysis. J Orthop Surg Res. 2023;18(1):504.
- Moore A, et al. Effectiveness of pharmacological therapies for fibromyalgia syndrome in adults: an overview of Cochrane Reviews. Rheumatology (Oxford). 2025;64(5):2385-2394.
- Lum G, et al. Current pharmacological management, treatment challenges, and potential future treatment options for fibromyalgia syndrome. Expert Opin Pharmacother. 2025;26(18):2013-2025.
- Zhang P, et al. Network pharmacology: towards the artificial intelligence-based precision traditional Chinese medicine. Brief Bioinform. 2024;25(1):bbad518.
- Wang Y, El-Kott AF, El-Kenawy AE, Xue L. Decorated CuO nanoparticles over chitosan-functionalized magnetic nanoparticles: investigation of its anti-colon carcinoma and anti-gastric cancer effects. Arabian J Chem. 2021;14(7):103201.
- Zeng Y, et al. Fisetin micelles precisely exhibit a radiosensitization effect by inhibiting PDGFRβ/STAT1/STAT3/Bcl-2 signaling pathway in tumor. Chin Chem Lett. 2025;36(2):109734.
- Chen GY, et al. Mechanisms of total glucosides of paeony in alleviating methotrexate-induced liver injury. Drug Des Devel Ther. 2025;19:3407-3423.
- Chen GY, et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021;2021:5233462.
- Aguiar C, Camps I. Molecular docking in drug discovery: techniques, applications, and advancements. Curr Med Chem. 2025;32(28):5924-5938.
- Wu L, et al. Processing and compatibility of Corydalis yanhusuo: phytochemistry, pharmacology, pharmacokinetics, and safety. Evid Based Complement Alternat Med. 2021;2021:1271953.
- Alhassen L, et al. The analgesic properties of Corydalis yanhusuo. Molecules. 2021;26(24):7498.
- Ru J, et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Chen GY, et al. Integrating network pharmacology and experimental validation to explore the key mechanism of Gubitong recipe in the treatment of osteoarthritis. Comput Math Methods Med. 2022;2022:7858925.
- Jin Q, et al. Network and experimental pharmacology to decode the action of Wendan decoction against generalized anxiety disorder. Drug Des Devel Ther. 2022;16:3297-3314.
- UniProt Consortium. UniProt: the Universal Protein Knowledgebase in 2025. Nucleic Acids Res. 2025;53(D1):D609-D617.
- Stelzer G, et al. The GeneCards Suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 2016;54:1.30.1-1.30.33.
- Otasek D, et al. Cytoscape Automation: empowering workflow-based network analysis. Genome Biol. 2019;20(1):185.
- Szklarczyk D, et al. The STRING database in 2025: protein networks with directionality of regulation. Nucleic Acids Res. 2025;53(D1):D730-D737.
- Majeed A, Mukhtar S. Protein-protein interaction network exploration using Cytoscape. Methods Mol Biol. 2023;2690:419-427.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284-287.
- Feng S, et al. Harnessing gene editing technology for tumor microenvironment modulation: an emerging anticancer strategy. Chemistry. 2024;30(62):e202402485.
- Kim S, et al. PubChem in 2021: new data content and improved web interfaces. Nucleic Acids Res. 2021;49(D1):D1388-D1395.
- Varadi M, et al. AlphaFold Protein Structure Database: massively expanding the structural coverage of protein-sequence space with high-accuracy models. Nucleic Acids Res. 2022;50(D1):D439-D444.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891-3898.
- He L, et al. Shape-based virtual screen for the discovery of novel CDK8 inhibitor chemotypes. Bioorg Med Chem Lett. 2019;29(4):549-555.
- Quinto-Ortiz YE, et al. Pharmacological interaction of quercetin derivatives of Tilia americana and clinical drugs in experimental fibromyalgia. Metabolites. 2022;12(10):916.
- Perazzio AC, et al. Stigmasterol attenuates nociplastic pain and fatigue-like symptoms in a reserpine-induced fibromyalgia model in mice. Inflammopharmacology. 2026;34(1):509-523.
- Ji RR, et al. Neuroinflammation and central sensitization in chronic and widespread pain. Anesthesiology. 2018;129(2):343-366.
- Biltz RG, Sawicki CM, Sheridan JF, Godbout JP. The neuroimmunology of social-stress-induced sensitization. Nat Immunol. 2022;23(11):1527-1535.
- Ahmed I, et al. Oral and gut health, (neuro)inflammation, and central sensitization in chronic pain: a narrative review of mechanisms, treatment opportunities, and research agenda. Int J Mol Sci. 2026;27(1):114.
- Wu J, et al. The role of quercetin in NLRP3-associated inflammation. Inflammopharmacology. 2024;32(6):3585-3610.
- Xiong QQ, et al. Hypericum aqueous extract promotes skin wound healing by modulating the PI3K/Akt signaling pathway. Food & Medicine Homology. 2026;3(4):9420125.
- Sun M, et al. Stigmasterol from Prunella vulgaris L. alleviates LPS-induced mammary gland injury by inhibiting inflammation and ferroptosis. Phytomedicine. 2025;137:156362.
- McNamee KE, et al. IL-17 induces hyperalgesia via TNF-dependent neutrophil infiltration. Pain. 2011;152(8):1838-1845.
- Jiang X, et al. Interleukin-17 as a potential therapeutic target for chronic pain. Front Immunol. 2022;13:999407.
- Gao SJ, et al. Interleukin-17: a putative novel pharmacological target for pathological pain. Curr Neuropharmacol. 2024;22(2):204-216.
- Yang Y, et al. Inhibition of neuroactive ligand-receptor interaction pathway can enhance immunotherapy response in colon cancer: an in silico study. Expert Rev Anticancer Ther. 2023;23(11):1205-1215.
- Li QR, et al. Unveiling the mechanism of Cibotium barometz in the treatment of rheumatoid arthritis: a study based on network pharmacology and experimental validation. Curr Med Chem. In press. https://www.eurekaselect.com/article/158465
- Chan RJ, et al. Perturbations in the neuroactive ligand-receptor interaction and renin angiotensin system pathways are associated with cancer-related cognitive impairment. Support Care Cancer. 2025;33(4):254.
- Cao W, et al. Structural elucidation of an active polysaccharide from Radix Puerariae lobatae and its protection against acute alcoholic liver disease. Carbohydr Polym. 2024;325:121565.
- Tong Y, et al. Stigmasterol exerts antioxidant effects through activation of the Keap1/Nrf2 signaling pathway in Parkinson's disease model. J Transl Med. 2026;24:9.
- Ohara Y, Osada K. Effect of dietary oxidized stigmasterol on the antioxidant system in mice. J Oleo Sci. 2024;73(12):1493-1503