Bu protokol, genç veya yaşlı öncül hücrelerden elde edilen Saccharomyces cerevisiae gametlerinin zaman atlamalı mikroskobi ile mikroakışkan tabanlı yaşam süresi analizini tanımlamaktadır.
Yöntem makalesi
Saccharomyces cerevisiae'de Gametojenik Gençleşme Faktörlerinin Keşfi İçin Mikroakışkan Tabanlı Bir Analiz Yöntemi
Bu makalede
Özet
Özet
Saccharomyces cerevisiae, yaşla ilişkili hasarları ana hücrede tutarken genç kız hücreler üreterek asimetrik hücre bölünmeleri yoluyla kademeli olarak yaşlanır. Gametogenez, yaşlanmış hücrelerin replikatif yaşam süresini tamamen sıfırlayarak gelecek nesil için yaşlanma saatini geri sarar. Mayalarda gametojenik gençleşme daha önce tanımlanmış olsa da, replikatif yaşam süresinin sıfırlanmasını yüksek verimlilikle nicelleştirecek teknikler eksikti. Gametogenez sonrası gençleşmeyi nicelleştirmek için kullanılan önceki yöntemler, bireysel hücrelerin tekrarlanan manuel mikromanipülasyonuna dayanan, düşük verimli ve emek yoğun yaklaşımlarla sınırlıydı. Burada, S. cerevisiae'de gametojenik gençleşme için gerekli faktörlerin sistematik karakterizasyonuna olanak tanıyan, yüksek verimli, mikroakışkan tabanlı bir mikroskopi analizini ayrıntılı olarak açıklıyoruz. Bu yöntem, gamet replikatif yaşam süresinin mikroakışkan tabanlı değerlendirmesini mümkün kılan iki inert genetik modifikasyondan yararlanmaktadır. Yaşa göre ayıklama ve tetrad ayrışmasının ardından, koşullu steril gametler mikroakışkan tabanlı görüntüleme cihazlarına yüklenir ve gamete özgü bir belirteç kullanılarak tanımlanır. Uzun süreli time-lapse görüntüleme, genç ve yaşlı öncül hücrelerden türetilen gametlerin replikatif yaşam sürelerinin sağlam bir şekilde izlenmesini ve karşılaştırılmasını sağlar. Burada, gamet yaşam süresinin sistematik nicelleştirilmesine ve S. cerevisiae'de gametojenik hücresel gençleşmeyi yöneten moleküler faktörlerin yüksek verimlilikle tanımlanmasına olanak tanıyan adım adım bir protokol sunuyoruz.
Giriş
Saccharomyces cerevisiae hücreleri, asimetrik olarak bölünerek, yaşa bağlı hasarları ana hücrede tutarken genç yavru hücreler üreterek mitoz sırasında replikatif olarak yaşlanırlar1,2,3,4. Bu nedenle mayanın replikatif yaşam süresi sınırlıdır; bu süre, belirli bir ana hücrenin terminal bölünmesinden, ardından gelen yaşlılık ve nihayetinde ölümden önce ürettiği yavru hücre sayısı olarak tanımlanır. Çarpıcı bir şekilde, yaşlı bir S. cerevisiae hücresi gametogenezi tamamladığında, ortaya çıkan tüm gametlerin replikatif yaşam süresi tamamen sıfırlanır ve böylece genç öncül hücrelerden türetilen gametlerden ayırt edilemez hale gelirler5,6,7,8,9 (Şekil 1A). Mayada gametojenik gençleşmenin ilk keşfinden bu yana, gametogenez sırasında yaşa bağlı hasarları temizleyen birçok önemli faktör tanımlanmıştır, ancak yüksek kapasiteli (high-throughput) tekniklerin eksikliği, bu yolların gametlerin yaşam süresi üzerindeki etkisini araştırmayı zorlaştırmıştır6. Gametlerin replikatif yaşam süresinin nicelendirilmesi, tarihsel olarak hücre bölünmelerinin floresan mikrodissection mikroskobu kullanılarak manuel olarak puanlanmasına dayanmıştır; bu yöntemde gametlerin replikatif yaşam süresi, üretilen yavru hücrelerin sürekli sayılması ve manuel olarak uzaklaştırılmasıyla birkaç gün boyunca puanlanır7. Gametlerin replikatif yaşam süresi bu teknikle analiz edilebilse de, zahmetli ve zaman alıcı doğası son on yılda alanda sınırlı uygulama bulmasına neden olmuştur10,11. İlk keşfinden beri hiçbir spesifik moleküler yolun gametojenik gençleşmeye doğrudan katkı sağladığının gösterilememiş olması7, mevcut tekniğin sınırlamalarını ve otomatikleştirilmiş, yüksek kapasiteli bir analiz yöntemine duyulan ihtiyacı vurgulamaktadır.
Son yıllarda, yeni mikroakışkan tabanlı yaklaşımlar, kız hücrelerin manuel olarak ayrılması gereksinimini ortadan kaldıran mikromanipülasyonla yapılan replikatif yaşam süresi miktar belirleme yöntemlerinin yerini almıştır12. Görüntüleme odacıklarında ana hücreleri yakalamak ve tutmak için, yeni oluşan kız hücreleri yıkayarak uzaklaştıran ve tüm replikatif yaşam süreleri boyunca üzerlerinden sürekli taze besiyeri akışı sağlayan farklı tuzaklar geliştirilmiştir. Birkaç görüntüleme odacığının paralelleştirilmesi, tek bir deneyde birkaç gün boyunca farklı genetik arka planlara sahip yüzlerce hücreden replikatif yaşam süresi verisi elde edilmesine olanak tanır13,14,15,16,17,18,19. Bu mikroakışkan tabanlı yaklaşımlar şu an için vegetatif olarak büyüyen haploid maya hücreleri için tercih edilse de, bu tekniğin maya gametlerinin replikatif yaşam süresini ölçmek için uygulanması bugüne kadar bildirilmemiştir.
Mikroakışkan cihazlar kullanılarak S. cerevisiae gamet replikatif ömürleminin değerlendirilmesini üç ana teknik ve biyolojik engel kısıtlamaktadır. Birincisi, gametogenez sırasında, diploid bir maya hücresi iki mayotik bölünme geçirir ve iki çiftleşme tipinin, MATa ve MATα'nın 2:2 ayrımıyla dört haploid gamet içeren sıkı paketlenmiş bir tetrad oluşturur (Şekil 1A). Bu nedenle, MATa ve MATα gametleri mikroakışkan cihazlara yüklendiğinde, salgılanan çiftleşme feromonları yakın hücrelerde çiftleşme yanıtını tetikleyerek büyüme durmasına, anormal hücre morfolojilerine ve mikroakışkan cihazların tıkanmasına yol açar. İkincisi, bir tetrad askusu içindeki dört gamet çimlenme sırasında doğal olarak ayrılmaz. Dolayısıyla, manuel ayırma işlemi yapılmadan mikroakışkan odacıklara yalnızca bütün tetradlar yakalanabilir. Ayrılmamış tetradların düşük tutulma oranı ve hala birbirine bağlı olan dört gametin bireysel bölünmelerinin takip edilememesi, her bir bireysel gametin replikatif ömürleminin değerlendirilmesini imkansız kılar. Üçüncüsü, tetradlar mikroakışkan cihazlara yüklenmeden önce bireysel gametlere ayrılırsa, vejetatif olarak büyüyen hücrelerden önemli ölçüde daha küçük olurlar ve standart tuzaklarla yakalanamazlar (Şekil 2A–C).
Bu sınırlamaların üstesinden gelmek için Spiri ve ark. 20269, S. cerevisiae türünde gamet replikatif yaşam süresinin mikroakışkan tabanlı yüksek verimli kantifikasyonunu ve gametojenik gençleştirme için gerekli faktörlerin karakterizasyonunu sağlamak amacıyla inert genetik modifikasyonları, tetrad ayrımını ve gamet büyümesini ve gamete özgü bir belirteci birleştirmiştir (Şekil 1B–F). İlk olarak, standart genetik çaprazlamalara müdahale etmeden çimlenme sonrası eşleşmeyi önlemek için koşullu steril bir alel geliştirilmiştir (Şekil 3A). İkinci olarak, tetradları tekil gametlere ayırmak için, dış spor duvarını zayıflatan Zymolyase işlemi mekanik manipülasyonla birleştirilmiştir. Üçüncü olarak, ayrım sonrası ve standart mikroakışkan tuzakların kullanımı için gerekli olan kısa süreli büyümeden sonra bile gametlerin verimli bir şekilde tanımlanabilmesi için uzun ömürlü, tutunmuş gamete özgü bir floresan raporlayıcı eklenmiştir. Bu yaklaşım kullanılarak, daha önce ayrıştırılmış genç ve yaşlı öncül hücrelerden türetilen tekil gametler izole edilebilir ve 72 sa boyunca sürekli zaman ayarlı görüntüleme yapmak üzere mikroakışkan cihazlara yüklenebilir; bu da genç ve yaşlı öncül hücrelerden gelen gametlerin replikatif yaşam süresinin kantitatif analizine ve karşılaştırılmasına olanak tanır9. Burada açıklanan ayrıntılı protokol, hem yaşlı hem de genç öncül hücrelerde gamet yaşam süresi analizinin uygulanabilirliğini ve verimliliğini önemli ölçüde artırarak, gametogenez sırasında hücresel gençleştirmeyi yöneten moleküler yolların doğrudan tanımlanmasını sağlar.
Protokol
Bu protokolde kullanılan reaktiflerin ve ekipmanların ayrıntılı listesi Materyaller Tablosunda yer almaktadır.
1. Kurucu hücrelerin replikatif yaşlanması
NOT: Aşağıdaki protokolü kullanan tüm deneyler, şu minimal genetik arka plana sahip SK1 suşu arka planlı diploid S. cerevisiae hücrelerinde gerçekleştirilir: pPMA2-PMA2-eGFP, ste5::NATR-pTet07.1-STE5, pRNR2-TetR-TUP1, pTetO7.1-TetR, flo8Δ, amn1D368V. Cam erlenlerde inkübe edilen tüm kültürler için, uygun havalandırmayı sağlamak amacıyla kültür hacmi, erlen hacminin 1/5'ini geçmemelidir.
- Diploid hücreleri maya özütü pepton (YP) gliserol plaklarında çözün, 30 °C'de gece boyunca inkübe edin. Diploid hücreleri YP dekstroz (YPD) plaklarına aktarın ve 30 °C'de inkübe edin (>8 sa).
- Yeni çözünmüş diploidleri 5 mL sıvı YPD (%2 dekstroz) içine inoküle edin. Kültürleri oda sıcaklığında gece boyunca (>12 sa) çalkalayın (300 rpm).
- Başlangıç kültürünü 30 mL YPD (%2 dekstroz) içinde 600 nm'deki optik yoğunluğu (OD600) = 0,2 olacak şekilde yeniden seyreltin. Kültürler OD600 = 0,6–1 yoğunluğuna ulaşana kadar 30 °C'de 3–4 sa boyunca çalkalayın (300 rpm).
- Genotip başına etiketlenecek 16 OD600 birim hücreye sahip olmak için yeterli kültürle başladığınızdan emin olun. Her genotip için 2 x 8 OD600 birim hücreyi 50 mL'lik konik bir tüpe aktarın.
- Önerilen: Her genotip için iki bağımsız kurucu hücre kültürü oluşturmak amacıyla 16 OD600 birimi iki örneğe (her biri 8 OD600 birim) ayırın. Yaş sıralamasından sonra (adım 2.16), yaşlanmış hücrelerin toplam verimini artırmak için iki kurucu hücre kültüründen gelen yaşlanmış hücreleri birleştirin.
- 50 mL'lik konik tüpü 1.900 x g'de 2 dk boyunca santrifüjleyin ve süpernatanı dökün. Peleti 20 mL fosfat tamponlu salin (PBS) (pH 8) ile resüspande edin.
- PBS (pH 8) ile toplam üç yıkama yapmak için 1.6 adımını iki kez daha tekrarlayın. Bir biotin çözeltisi (8 OD600 birim hücre başına 500 μL gereklidir) hazırlayın (8 mg/mL).
- Biotin tartın (örnek başına 4 mg) ve nihai konsantrasyon 8 mg/mL olacak şekilde tozu PBS (pH 8) içinde tamamen çözün (örnek başına 500 μL gereklidir). Üçüncü yıkamadan sonra hücreleri 1 mL PBS (pH 8) içinde resüspande edin.
- Hücre süspansiyonunun 500 μL'sini, başlangıçtaki 2 x 8 OD600 birimini ayırarak iki düşük yapışmalı santrifüj tüpüne dağıtın. Her santrifüj tüpüne, toplam hacim 1 mL olacak şekilde 500 μL biotin çözeltisi (8 mg/mL) ekleyin (Şekil 1B).
- Kapağı parafilm ile kapatın ve 1 dakika boyunca vorteksleyin. Yaşlanmış hücreler mekanik strese karşı hassastır; hücrelerin vortekslendiği son an budur. Bundan sonra hücre peletlerini nazikçe pipetleyerek resüspande edin.
- Santrifüj tüplerini döner bir rafa aktarın ve 4 °C'de 30 dk inkübe edin. 1.900 x g'de 2 dk santrifüjleyin, ardından süpernatanı pipetle çekerek alın. Fazla biotini kimyasal olarak söndürmek için peleti 1 mL PBS (pH 8 + 100 mM glisin) içinde resüspande edin.
- PBS (pH 8 + 100 mM glisin) ile toplam 3 yıkama yapmak için 1.11 adımını üç kez daha tekrarlayın. Hücreleri 1 mL YPD (%2 dekstroz) içinde resüspande edin.
- 1.900 x g'de 2 dk santrifüjleyin ve süpernatanı pipetle çekerek alın. Her biotin etiketli örnek için 500 mL'lik erlenlerde 50 mL YPD (%2 dekstroz) + ampisilin (100 µg/mL) kültürleri hazırlayın.
- Biotin etiketli hücreleri 1 mL YPD (%2 dekstroz) içinde resüspande edin ve 500 mL'lik erlene ekleyin. Ertesi günkü nesil sayısını tahmin etmek için kurucu kültürün optik yoğunluğunu (OD600) ölçün.
- Replikatif yaşlanmayı sağlamak için kurucu kültürleri 30 °C'de gece boyunca (16–18 sa) çalkalayın (300 rpm) (Şekil 1B). Bu işlem, her bir biotin etiketli kurucu hücrenin yaklaşık 6–7 kez bölünmesiyle sonuçlanacaktır.
2. Yaşlanmış kurucu hücrelerin izolasyonu
NOT: PBS (pH 7.4) + BSA (5 g/L) çözeltisini 4 °C'de saklayın ve deney sırasında buz üzerinde tutun.
Hücre peletlerini yeniden seyreltirken, kolon tıkanmasını önlemek ve ayıklama verimliliğini en üst düzeye çıkarmak için tamamen süspanse edildiklerinden ve karıştırıldıklarından emin olun. Yaşlanmış hücre popülasyonunun saflığını artırmak için, ilk ayıklama kolonundan elde edilen elüatı taze bir ikinci ayıklama kolonuna yeniden uygulayarak art arda iki ayıklama işlemi gerçekleştirilir. Bu prosedür, genç hücrelerden kaynaklanan kontaminasyonun minimum olduğu yaşlanmış hücre popülasyonları ( %90–98 saflık) sağlar. Yaşlanmış hücreler mekanik strese karşı hassastır; hücre peletlerini serolojik bir pipet kullanarak nazikçe yukarı-aşağı pipetleme yoluyla süspanse edin.
- 16–18 saatlik inkübasyonun ardından, her bir kurucu kültürün optik yoğunluğunu (OD600) kaydedin. Tahmini nesil sayısını hesaplayın (ortalama yaş = log2(OD600Son / OD600Başlangıç)).
- Her bir kültürü 50 mL konik tüplerde 1.900 x g hızda 2 dk santrifüjleyin ve süpernatantı dökün. Peleti, serolojik 25 mL pipet kullanarak aşağı yukarı pipetleyerek 20 mL PBS (pH 7,4 + BSA (5 g/L)) ile yeniden süspanse edin.
- 2.2 adımını bir kez tekrarlayın. Anti-Biotin MicroBeads süspansiyonu flakonunu ters çevirerek karıştırın. Kesilmiş bir pipet ucu kullanarak, hücre süspansiyonuna 100 μL Anti-Biotin MicroBeads ekleyin.
- Ters çevirerek karıştırın. 4 °C'de 15 dk inkübe edin. Dönen bir raf üzerinde inkübe edin veya tüpü her 5 dakikada bir en az 3–4 kez ters çevirin (Şekil 1C).
- QuadroMACS manyetik standı, kolonları ve ön ayırma filtrelerini (30 µm) kurun. Kolonun altına, içinden akan tüm atıkları toplamak için bir kap yerleştirin.
- Her bir filtreyi/kolonu 3 mL PBS (pH 7,4 + BSA (5 g/L)) ile hazırlayın. Her kolon ve koşul için iki adet 15 mL konik tüp etiketleyin (biri "yaşlı hücre elüatı" ve diğeri "genç hücre akış süpernatantı" için).
- Hücre süspansiyonlarını 1.900 x g hızda 2 dk santrifüjleyin ve süpernatantı dökün. Peleti 20 mL PBS (pH 7,4 + BSA (5 g/L)) ile yeniden süspanse edin ve tekrar santrifüjleyin.
NOT: Bu adım, aksi takdirde kolonu doyuracak olan fazla serbest Anti-Biotin MicroBeads'leri uzaklaştırmak için önemlidir. - Hücre peletini 5 mL PBS (pH 7,4 + BSA (5 g/L)) içinde tamamen yeniden süspanse edin ve ilk ayırma kolonuna uygulayın (Şekil 1C). Takibi kolaylaştırmak için kolonları uygulanan genotiple etiketleyin.
- İlk akış süpernatantını "genç hücre akış süpernatantı" olarak etiketlenen 15 mL konik tüplere toplayın. Hücre süspansiyonu kolondan tamamen geçtikten sonra 15 mL konik tüpleri bir atık akış kabı ile değiştirin.
- Aynı genotipten gelen iki genç hücre akış süspansiyonunu tek bir 15 mL konik tüpte birleştirin. Birleştirilmiş genç hücre akış süpernatantının 250 μL'sini, yeni bir 15 mL konik tüpte 9,75 mL PBS (pH 7,4 + BSA (5 g/L)) ile seyreltin. Sonraki adımlar için "seyreltilmiş genç hücreler" olarak etiketleyip kenara ayırın.
- Her bir kolonu 3 mL PBS (pH 7,4 + BSA (5 g/L)) ile 4 kez yıkayın. İlk yıkama için, 3 mL PBS (pH 7,4 + BSA (5 g/L)) miktarını hücre süspansiyonunu içeren 50 mL konik tüpe geri ekleyin. Kalan tüm hücrelerin kolona uygulanması için ilgili kolona aktarın. Kolonu taze 3 mL PBS (pH 7,4) + BSA (5 g/L) ile 3 kez yıkayın.
- İkinci ayırma için taze kolonlar ve ön ayırma filtrelerini (30 µm) hazırlayın. Her bir filtreyi/kolonu 3 mL PBS (pH 7,4 + BSA (5 g/L)) ile hazırlayın.
- İlk kolonu mıknatıstan çıkarın ve ikinci ayırma için ikinci kolonun üzerinde tutun. İlk kolona 5 mL PBS (pH 7,4 + BSA (5 g/L)) ekleyin ve yaşlı hücreleri elüe etmek için sağlanan pistonla sabit bir şekilde (nazikçe ama sıkıca) itin.
- Elüe edilen yaşlı hücreleri ikinci kolona uygulayın. Takibi kolaylaştırmak için kolonları uygulanan genotiple etiketleyin.
- Her bir kolonu 3 mL PBS (pH 7,4) + BSA (5 g/L) ile 3 kez yıkayın. Kolonu mıknatıstan çıkarın ve "yaşlı hücre elüatı" olarak etiketlenmiş 15 mL konik tüpe yerleştirin. Kolonlara 5 mL PBS (pH 7,4) + BSA (5 g/L) ekleyin ve yaşlı hücreleri elüe etmek için sağlanan pistonla sabit bir şekilde (nazikçe ama sıkıca) itin.
- Yaşlı hücrelerin toplam verimini artırmak için aynı genotipe ait iki bağımsız kurucu kültürden elde edilen iki elüatı birleştirin (bkz. adım 1.5).
3. Tomurcuk izlerinin ve biyotinin floresan işaretlemesi
NOT: Floresan boyalarla işaretlendiğinde, hücreler inkübasyon sırasında ışıktan korunmalıdır. Koşullandırılmış gametogenez indükleyici ortam, gametogenezin indüklenmesinden 5 s sonra standart gametogenez indükleyici ortamda bulunan bir gametogenez indükleyici kültürün filtre sterilizasyonu ile elde edilir. Koşullandırılmış gametogenez indükleyici ortamı parafilm ile kapatılmış olarak 4 °C'de saklayın.
- Yaşlandırılmış ve seyreltilmiş genç hücre süspansiyonu karışımını 1.900 x g hızda 2 dk santrifüjleyin ve süpernatantı dökün. Hücreleri 12 mL PBS (pH 7) içerisinde yeniden süspande edin.
- 3.1 adımını iki kez tekrarlayın ve ikinci seferde hücreleri 4 mL PBS (pH 7) içerisinde yeniden süspande edin. Her tüpe 4 μL floresan işaretli buğday germ aglutinin (1 µg/mL) ve 4 μL floresan işaretli streptavidin (1 µg/mL) ekleyin (Şekil 1C).
- Oda sıcaklığında, karanlıkta 15 dk inkübe edin. Her 5 dk'da bir 3–4 kez ters çevirin. Hücreleri 1.900 x g hızda 2 dk santrifüjleyin, ardından süpernatantı dökün.
- 12 mL gametogenez indükleyici ortamda yeniden süspande edin. Santrifüjleme ve yeniden süspande etme yıkamasını üç kez tekrarlayın; son yıkamadan sonra, hücreleri ampisilin (100 µg/mL) içeren 2 mL kondisyonlu gametogenez indükleyici ortamda yeniden süspande edin.
4. Gametogenezin indüklenmesi ve yaş ayrıştırmasının analizi
DİKKAT: Formaldehit toksik ve tahriş edicidir; uygun kişisel koruyucu ekipman (KKE) giyerek kimyasal çeker ocak altında çalışın.
- Yeniden süspanse edilmiş hücre süspansiyonunun (adım 3.4'ten) yoğunluğunu (OD600) ölçün. Kültürleri, ampisilin (100 µg/mL) içeren kondisyonlu gametogenez indükleyici ortam ile 0,8 OD600 değerine seyreltin ve ardından cam bir erlene aktarın.
NOT: Hacim, yaşlandırılmış hücrelerin toplam verimine bağlıdır; sonraki uygulamalar için 10 mL'lik bir final kültür hacmi yeterlidir. - Seyreltilmiş pre-gametojenik kültürden 135 μl'lik alikotları, 15 μl formaldehit (%37) içeren 1,5 mL'lik santrifüj tüplerine alın. Oda sıcaklığında 15 dk boyunca döndürün ve inkübe edin. 4 °C'de saklayın.
- Gametogenezi tamamlamak için kültürleri 30 °C'de 24 sa boyunca çalkalayın (300 rpm) (Şekil 1C).
DURAKLAMA NOKTASI: Formaldehit ile fikse edilmiş hücrelerin görüntülemesi, en uygun olan herhangi bir zamanda yapılabilir. Ancak, protokolün geri kalanına geçmeden önce yaşlandırılmış hücrelerin ayıklama verimliliğinin doğrulanması önerilir. Hücreler, formaldehit fiksasyon ortamında 4 °C'de 48 saate kadar saklanabilir. Uzun süreli saklama için, formaldehit içeren çözeltiyi sorbitol (1,2 M) ile değiştirin ve -20 °C'de saklayın. - Görüntülemeden önce, formaldehit ile fikse edilmiş hücreleri 1.900 x g'de 2 dk boyunca santrifüjleyin. Süpernatantı pipetle çekerek özel bir formaldehit atık konteynerine aktarın.
- 20 μL sorbitol (1,2 M) içinde yeniden süspanse edin. Standart bir lama 3,3 μL hücre süspansiyonu ekleyin ve 22 x 22 mm'lik bir lamel kapatın.
- Tomurcuk izi sayısını, biyotin etiketini ve Pma2-GFP'yi değerlendirmek için (sırasıyla magenta, sarı ve cam göbeği renklilerinde gösterilmiştir; Şekil 1C ve Şekil 4A), DAPI, mCherry, FITC ve diferansiyel girişim kontrastı (DIC) kanallarında hücrelerin tüm hacmini kapsayan bir z-yığını (z-stack) elde edin.
- Koşul başına en az 50 hücre alımına devam edin.
5. Biotin etiketleme verimliliğini ve tomurcuk izi sayısını değerlendirmek için görüntü analizi
DURAKLAMA NOKTASI: Yaş ayrımını doğrulamak için görüntü analizi, en uygun olan herhangi bir noktada yapılabilir. Bununla birlikte, protokolün geri kalanına geçmeden önce ayıklama verimliliğinin doğrulanması önerilir.
NOT: Görüntüler, özel yarı otomatik Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 makroları kullanılarak nicelleştirilmiştir. Makro girişlerine ilişkin spesifik notlar her makronun üst bilgisinde belirtilmiştir ve bireysel giriş verilerine göre uyarlanmaları gerekir.
- Fiji/ImageJ'i açın. Açmak için Manual ROI Selection and TIFF Export (Ek Dosya 1) makrosunu Fiji/ImageJ'e sürükleyip bırakın.
- Makro penceresinde Run seçeneğine tıklayın. İstendiğinde giriş ve çıkış klasörlerini seçin ve OK düğmesine tıklayın.
- İlgilenilen hücrelerin etrafına bir dikdörtgen çizin ve her bir dikdörtgeni manuel olarak veya t kısayolunu kullanarak ilgi alanı (ROI) yöneticisine ekleyin. Hücrenin tamamını dikdörtgenin içine alın ve her iki yanda yaklaşık bir hücre çapı kadar boşluk bırakın.
- İlk görüntüden tüm ROI'ler ROI yöneticisine eklendiğinde, şu uyarı penceresindeki OK düğmesine tıklayın: Action Required (all ROI selected and saved to ROI manager (t)?) (Ek Şekil 1). Seçilen tüm ROI'ler otomatik olarak kırpılacak ve kaydedilecektir. Giriş klasöründeki bir sonraki görüntü otomatik olarak açılacaktır.
- Giriş klasöründeki tüm görüntüler için 5.3–5.4 arasındaki adımları tekrarlayın. Makro, giriş klasöründeki tüm görüntüler tamamlandığında duracaktır. Açmak için Single-Cell 3D and Z Projection (Ek Dosya 2) makrosunu Fiji/ImageJ'e sürükleyip bırakın.
- Gerekirse 3D Project… komutundaki kesit aralığını düzenleyin. Makro penceresinde Run seçeneğine tıklayın. İstendiğinde giriş ve çıkış klasörlerini seçin ve OK düğmesine tıklayın.
NOT: Makro otomatik olarak çalışacaktır, kullanıcı girişi gerekmez. Makro, klasördeki tüm görüntüler tamamlandığında durur. - Y_projection… olarak adlandırılan tüm görüntüleri sayım için yeni bir giriş klasörüne taşıyın. Açmak için Manual Budscar and Biotin Annotation (Ek Dosya 3) makrosunu Fiji/ImageJ'e sürükleyip bırakın.
- Makro penceresinde Run seçeneğine tıklayın. İstendiğinde giriş ve çıkış klasörlerini seçin ve OK düğmesine tıklayın. Hücreyi 3D olarak döndürerek tomurcuk izlerini sayın.
NOT: Her bir DAPI ve mCherry pozitif halka benzeri yapı, örtüşmedikleri ve aynı tomurcuk izi olayını temsil etmedikleri sürece bir tomurcuk izi olarak sayılır. Her hücrenin oluşumundan itibaren sahip olduğu büyük, dolu, dairesel biotin-pozitif (mCherry) işaret, toplam tomurcuk izi sayısına dahil edilmez (Şekil 4A). - Şu uyarı penceresindeki OK düğmesine tıklayın: Action Required (Number of bud scars?). Uyarı penceresinde sayılan tomurcuk izi sayısını seçin, ardından OK düğmesine tıklayın (Ek Şekil 2).
- mCherry sinyalini inceleyerek hücrenin biotin ile işaretlenip işaretlenmediğini belirleyin. Eğer bir hücre biotin işaretlemesi sırasında mevcutsa, hücrenin tamamı mCherry-pozitiftir (Şekil 4A).
- Şu uyarı penceresindeki OK düğmesine tıklayın: Action Required (Biotin label: No = 0/ Yes = 1?). Hücrede biotin etiketi yoksa 0, biotin etiketi varsa 1 seçin. Diğer uyarı penceresinde OK düğmesine tıklayın (Ek Şekil 3).
- Sonuçlar otomatik olarak Log penceresine kaydedilecek ve çıkış klasörüne .txt dosyası olarak kaydedilecektir. Sayım sırasında Log penceresini kapatmayın.
- Bir sonraki görüntü otomatik olarak açılacaktır. Giriş klasöründeki tüm görüntüler için 5.9–5.13 arasındaki adımları tekrarlayın. Makro, giriş klasöründeki tüm görüntüler tamamlandığında duracaktır.
6. Gametogenez verimliliğini değerlendirin ve tetradların yaşını analiz edin
NOT: Yaşlı hücrelerin gametogeneze özgü azalmasını dışlamak için tetrad yaş ayrımının yeniden doğrulanması önemlidir. Adım 5'te (Biotin işaretleme verimliliğini ve tomurcuk izi sayısını değerlendirmek için görüntü analizi) açıklanan pre-gametojenik hücreler için kullanılan analiz hattının aynısını kullanın; ancak post-gametojenik koşullar için sadece tetratlar kırpılmalı ve analiz için kullanılmalıdır, çünkü sadece tetratlar içindeki gametler Zymolyase işleminden sağ çıkacak ve böylece gamet popülasyonuna katkıda bulunacaktır. Görüntüler, özel yarı otomatik Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 makroları kullanılarak nicelleştirilir. Makro girişleri hakkındaki özel notlar her makronun üst bilgisinde belirtilmiştir ve bireysel giriş verilerine göre uyarlanması gerekir.
DURAKLAMA NOKTASI: Sporülasyon verimliliğinin sayımı, sayım için başlangıç kültüründen bir alikot (100 μl) bir santrifüj tüpüne ayrılarak, spor ayrıştırma işlemi kurulduktan sonra yapılabilir.
- Bir ışık mikroskobu kullanarak, her kültürden 300 hücre için monad, dyad ve tetrad sayılarını belirleyerek sporülasyon verimliliğini sayın.
- Gametogenez indükleyici ortamda 24 saat bekledikten sonra, seyreltilmiş post-gametogenez kültüründen (adım 4.3'ten) 135 μL'yi, 15 μL formaldehit (%37) içeren tüplere paylaştırın.
- Oda sıcaklığında 15 dakika boyunca döndürerek inkübe edin. 4 °C'de saklayın.
DURAKLAMA NOKTASI: Pre-gametojenik hücreler için yaş sıralaması değerlendirildiyse, formaldehit ile fikse edilmiş tetradların görüntülemesi en uygun zamanda yapılabilir. Hücreler, 4 °C'de formaldehit fiksasyon ortamında 48 saate kadar saklanabilir. Uzun süreli saklama için formaldehit içeren çözeltiyi sorbitol (1.2 M) ile değiştirin ve -20 °C'de saklayın. - Görüntüleme öncesinde, formaldehit ile fikse edilmiş hücreleri 1.900 x g'de 2 dakika boyunca santrifüjleyin. Süpernatantı uygun bir formaldehit atık kabına pipetleyerek alın.
- 20 μL sorbitol (1.2 M) içinde yeniden süspanse edin. Standart bir lama 3.3 μL hücre süspansiyonu ekleyin ve üzerine 22 x 22 mm'lik bir kapatma camı yerleştirin.
- Tomurcuk izi sayısını, biyotin işaretini ve PMA2-GFP'yi değerlendirmek için hücrelerin tüm hacmini kapsayan DAPI, mCherry, FITC ve DIC kanallarında z-stack görüntüleme yapın (Şekil 1D ve Şekil 4A; sırasıyla macenta, sarı ve camgöbeği renginde gösterilmiştir).
- Her koşul için en az 50 tetrad olacak şekilde görüntüleme yapmaya devam edin.
DURAKLAMA NOKTASI: Pre-gametojenik hücreler için yaş sıralaması değerlendirildiyse, tetradlar üzerindeki biyotin işaretleme verimliliği ve tomurcuk izi sayısının analizi en uygun zamanda yapılabilir. - Post-gametojenik tetradların biyotin işaretleme verimliliğini ve tomurcuk izi sayısını adım 5'te açıklandığı şekilde analiz edin.
7. Tetradların tekil gametlere ayrılması
NOT: Zymolyase uygulamasından sonra hücreler çok yapışkan hale gelir; hücre peletlerini yeniden süspande ederken aspirasyonla çekmemeye veya kaybetmemeye dikkat edin. İstenmeyen kalıntıları veya çökmeleri önlemek için YPD (%2 dekstroz) + ampicillin (100 µg/mL) karışımını deney günü taze olarak hazırlayın ve filtre ile sterilize edin.
DİKKAT: β-mercaptoethanol toksiktir ve uçucudur; uygun KKD kullanarak bir çeker ocak içerisinde işlem yapın.
- Gametogenez indükleyen besiyerinde 24 saat bekledikten sonra, kültürleri (adım 4.3'ten) 15 mL'lik konik tüplere aktarın. 1.900 x g hızında 2 dakika boyunca santrifüjleyin ve süpernatantı boşaltın.
- 900 μl steril deiyonize H2O içinde yeniden süspande edin ve 1,5 mL'lik düşük yapışma özellikli tüplere aktarın. 100 μL Zymolyase (1 mg/mL) ekleyin.
- Çeker ocak altında 2 μL β-merkaptoetanol ekleyin. Tüpleri parafilm ile kapatın, döner rafa aktarın ve 30 °C'de 3 saat inkübe edin (Şekil 1D).
- 3 saatlik inkübasyonun ardından süspansiyonu 15 mL'lik konik bir tüpe aktarın. Hücreler çok yapışkan olduğu için pipetleme işlemini dikkatle yapın. Örnekleri 1.900 x g hızında 2 dakika boyunca santrifüjleyin. Yapışkan pelete değdirmemeye dikkat ederek süpernatantı tamamen ve dikkatlice pipetle alın, ardından 1 mL steril deiyonize H2O içinde yeniden süspande edin.
- 7.4 adımını bir kez tekrarlayın. Örnekleri el tipi bir sonikatör ile sonikasyona tabi tutun (Şekil 1D). Örnekleri 1 puls/saniye ve %50 görev döngüsünde 20 saniye boyunca sonikasyon işlemine tabi tutun. Her sonikasyon döngüsü arasında örnekleri 1 dakika boyunca buz üzerinde bekletin.
- Örnekler arasında sonikatörü %70 etanol ile yıkayın. Toplam altı sonikasyon döngüsü olacak şekilde, adım 7.5'te açıklanan sonikasyon prosedürünü beş kez daha tekrarlayın.
- Tetrat ayrımını bir ışık mikroskobu kullanarak doğrulayın (Şekil 3B). Her örneğe 1 mL YPD (%2 dekstroz) + ampicillin (100 µg/mL) (deney günü filtre sterilizasyonu yapılmış) ekleyin.
- YPD (%2 dekstroz) + ampicillin (100 µg/mL) ile OD600 = 0,8 olacak şekilde yeniden seyreltin. Hacim, ayrılan hücrelerin toplam verimine bağlıdır.
NOT: 15 mL'lik konik tüpler kullanılırsa maksimum hacim 12 mL'dir. - Kültürleri bir ön ayırma filtresinden geçirerek taze bir 15 mL'lik konik tüpe süzün. Mikroakışkan cihazlara yüklemeden önce döner rafa aktarın ve 30 °C'de 3 saat inkübe edin (Şekil 1D).
8. Mikroakışkan cihaz hazırlama
NOT: Bu bölüm, çevresel kontrol odasına sahip ters floresan mikroskobu kullanılarak, üretici tavsiyelerine göre mikroakışkan cihazların kurulumunu açıklamaktadır (Şekil 2A–C). Kontaminasyon riskini azaltmak için kurulum boyunca çalışma alanını, makasları, tüpleri ve eldivenleri sterilize etmek amacıyla %70 Ethanol kullanın. Deney sırasında hücre kümelenmesi ve tıkanma riskini azaltmak için büyüme ortamına Pluronic F-127 eklenir. Deneyden bir gün önce 5 g Pluronic F-127 tozunu (10 g/L) 500 mL YPD (%2 dekstroz) ortamında çözün, ampicillin (100 µg/mL) ekleyin ve kullanımdan 1–2 saat önce filtre ile sterilize edin. Mikroakışkan cihaz kurulumu sırasında ortam şırıngalarında ve tüplerde hava kabarcığı kalmadığından emin olun.
- 5 g Pluronic F-127 tozunu (%2 dekstroz içeren) 500 mL YPD içerisinde çözün (10 g/L). Deneyden bir gün önce hazırlayın ve gece boyunca çözünmeye bırakın. Deney günü, ampicillin ekleyin (100 µg/mL) YPD (%2 dekstroz), Pluronic F-127 (10 g/L) ortamına.
- YPD (%2 dekstroz) + ampicillin (çözeltisini) filtre ile sterilize edin (100 µg/mL) + Pluronic F-127 (10 g/L). Filtrasyon sırasında oluşan hava kabarcıklarını gidermek için, medya pompalarını doldurmadan önce 1-2 saat bekletin.
- Mikroakışkan cihazı, çatlamış kapak camı gibi herhangi bir hasar açısından inceleyin. Hücre yükleme giriş portlarını katı paslanmaz çelik pinlerle tıkayın (Şekil 2A,D,E).
NOT: Katı paslanmaz çelik pinlerin hücre yükleme portlarına çok derin yerleştirilmemesine dikkat edilmelidir; aksi takdirde hücre yükleme sırasında çıkarılmaları zorlaşabilir. - Görüntüleme sırasında sahne hareketine pay bırakacak şekilde, medya çıkış portunu atık toplama kabına bağlamak için gereken uzunlukta medya çıkış borusunu kesin (Şekil 2A,G).
- İçi boş paslanmaz çelik pinleri medya çıkış borularına bağlayın. İçi boş paslanmaz çelik pinleri ve boruları medya çıkış portlarına takın (Şekil 2D–F). Mikroskop objektifine ve mikroakışkan cihazın üzerindeki lamelle kapatma camına yağ ekleyin.
- Mikroakışkan cihazı mikroskoba yerleştirin (Şekil 2G). Görüntüleme birimlerinin odak düzlemini bulun ve polidimetilsiloksan (PDMS) U-tuzak yapılarının bütünlüğünü inceleyin (Şekil 2C).
- Besiyeri çıkış portundan gelen boruyu doğrudan bir atık kabına yönlendirin (Şekil 2G). Besiyeri çıkış borusunu mikroskop tablasına bantlayın (Şekil 2G, yeşil bant).
- Deney sırasında birikecek olan atık besiyerinin hortumu suya batırarak geri basınç oluşturmasını önlemek için, besiyeri çıkış hortumunun atık konteynerinin tabanının oldukça üzerinde olduğundan emin olun.
- Gerekirse besiyeri çıkış borusunu kısaltın. Besiyeri giriş portunu mikro pompalara yerleştirilen besiyeri şırıngalarına bağlamak için besiyeri giriş borusunu gerekli uzunlukta kesin. Görüntüleme sırasında sahne hareketine izin verecek miktarda boşluk bırakın.
- İçi boş paslanmaz çelik pinleri medya giriş tüplerine bağlayın. 20 mL'lik şırınga paketini açın ve havayı tamamen boşaltın.
- 20 mL YPD (%2 dekstroz) + ampicillin (100 µg/mL) + Pluronic F-127 (10 g/L) karışımını 20 mL'lik şırıngalara aktarın. Besiyeri şırıngasının ucuna bir şırınga adaptörü bağlayın.
- Şırınga adaptörünün sıkıca vidalandığından emin olun. Besiyeri giriş borusunu, besiyeri şırınga adaptörüne bağlayın. Besiyeri giriş borusunun diğer ucunu, içi boş paslanmaz çelik pim konteynere bakacak şekilde bir atık toplama kabına bantlayın.
- Besiyeri şırıngasında kalan hava kabarcıklarını dikkatlice tahliye edin. Hava kabarcıklarının şırınga başlığına doğru yükselmesini sağlayarak besiyeri şırıngasını dikey tutun. Hava kabarcıklarını ve besiyerini tüpler aracılığıyla atık konteynerine boşaltmak için basınç uygulayın.
- Şırıngayı dik tutarak yan tarafını hafifçe masaya vurun; böylece kalan hava kabarcıklarını serbest bırakın, ardından tüm hava kabarcıkları dışarı atılana kadar tekrar basınç uygulayın. Boru hattını ve şırıngayı, kalan hava kabarcığı olup olmadığını kontrol etmek için dikkatlice inceleyin.
- Besiyeri şırıngasını mikropompaya monte edin. Çok yuvalı bir mikropompa kullanılıyorsa, her bir ek şırınga için 8.10–8.14 adımlarında açıklanan şırınga hazırlama işlemini tekrarlayın ve istenen tüm yuvalar dolana kadar hazırlanan her bir şırıngayı mikropompaya monte edin. Mikropompa pistonunu, şırınga pistonlarıyla etkileşime girene ve tüm şırıngaların tüplerinden besiyeri çıkmaya başlayana kadar ileri hareket ettirin.
- Tüplere ve bir medya şırıngasına bağlı olan içi boş paslanmaz çelik pinleri, monte edilmiş mikroakışkan cihazın medya giriş portuna yerleştirin (Şekil 2A,H,I).
- Pompayı şu akış hızıyla çalıştırın: 2.4 µL/min mikropompaya takılı tüm şırıngalar mikroakışkan cihaza bağlandıktan sonra, besiyeri giriş portuna bağlı olan tüpler mikroskop tablasına bantla sabitlenir (Şekil 2I, arka planda yeşil bant).
- Görüntüleme sırasında sahne hareketine izin vermek için boru hatlarında bolluk olduğundan emin olun. Çevresel hazneyi açın ve şu değere ayarlayın: 30 °CGörüntüleme birimlerini besiyeri ile doldurmak için, hücreleri yüklemeden önce besiyeri pompalarını en az 2 saat boyunca çalıştırın.
- Tek bir görüntüleme ünitesindeki odak düzlemi farklarını test etmek için yaklaşık 1 saatlik medya akışının ardından ROI'nin test görüntülerini alın.
- Mikroskop ve büyütme oranına bağlı olarak, her bir oda için her konumda 2 x 27 görüntü ve üç z-kesiti 3–8 µm tek bir görüntüleme ünitesindeki odak düzlemi farklarını telafi etmek için boşluklandırma.
- Basıncı azaltmak ve yüklemeyi kolaylaştırmak için hücre yüklemesinden 1 saat önce pompaları durdurun.
9. Gametlerin mikroakışkan cihazlara yüklenmesi
NOT: Gametlerin vaktinden önce bölünmesini önlemek için tüm koşullarda hücre yüklemesi 1 s'den kısa sürede tamamlanmalıdır. Bunun yapılmaması, yeni oluşan yavru hücreler tarafından gametlerin seyrelmesine ve toplam replikatif yaşam süresinin hatalı değerlendirilmesine yol açacaktır. Her bir koşul ve genotip için, analiz amacıyla iki teknik replika elde etmek üzere iki görüntüleme ünitesi yüklenir.
- Hücre yükleme girişini şırıngaya bağlamak için hücre yükleme borularını gerekli uzunlukta kesin. İçi boş paslanmaz çelik pinleri hücre yükleme borularına bağlayın. 5 mL'lik bir şırınganın başına bir şırınga adaptörü takın.
- Hücre yükleme borusunu 5 mL'lik şırınga üzerindeki şırınga adaptörüne bağlayın. 3 saatlik yeniden büyüme sürecinden sonra (adım 7.9), gametlerin çoğunun büyümeye başlayıp başlamadığını kontrol edin. Işık mikroskobu kullanarak büyümüş gametleri ve gelişmekte olan tomurcukları kontrol edin.
- Yüklenecek ilk kondisyondan 2 mL'yi bir 2 mL'lik santrifüj tüpüne alıkotlayın. Her kondisyon için 9.3–9.15 arasındaki adımları sırasıyla uygulayın. Basıncı tahliye etmek için, belirli bir kondisyondan hücrelerle doldurulacak iki görüntüleme ünitesindeki dolu paslanmaz çelik pini çıkarın.
- Alıkotlanan hücreleri, şırıngaya çekmeden hemen önce bir el sonikatörü ile sonikasyona tabi tutun (1 saniyede 1 puls ve %50 görev döngüsü ile beş puls). Sonikasyona uğramış hücre süspansiyonunu bir ön ayırma filtresinden (30 µm) geçirerek yeni bir 2 mL'lik santrifüj tüpüne aktarın.
- Hücre süspansiyonunu, içi boş paslanmaz çelik pin ve bağlı boru aracılığıyla hazırlanan 5 mL'lik şırıngaya doldurun. Hücre süspansiyonunu içeren şırıngadaki havayı tahliye ederek şırıngada ve borularda hiç hava kalmadığından emin olun.
- İçi boş paslanmaz çelik pinde küçük bir sıvı damlası görünene kadar şırınga pistonunu itin. İçi boş paslanmaz çelik pini mikroakışkan cihazın hücre yükleme girişine yerleştirin.
- Paslanmaz çelik pindeki bir sıvı damlasını doğrudan hücre yükleme girişine bağlayarak içeri hava girmediğinden emin olun. Mikroakışkan cihaz üzerindeki fazla sıvıyı temizlemek için rulo yapılmış tüy bırakmayan bir laboratuvar mendili kullanın.
- Mikroskopta canlı görüntüleme ile görüntüleme ünitesini doğrudan gözlemlerken, şırınga pistonuna dikkatlice basınç uygulayarak hücreleri manuel olarak yükleyin. PDMS U-tuzak yapıları hafifçe bükülmeye başlayana kadar pistona basınç uygulayın.
- Basıncı sürekli olarak koruyun ve hücreler görüntüleme alanına akmaya başlayana kadar bekleyin. Aşırı basınç uygulamayın; bu durum aşırı yüklemeye ve/veya PDMS yapılarının lamel camdan ayrılmasına yol açarak görüntüleme ünitesini kullanılamaz hale getirebilir.
- Hücreler tuzaklara dolmaya başladığında basıncı bırakın ve görüntüleme ünitesi boyunca yükleme verimliliğini izleyin. Yeterli hücre tuzaklanana kadar yükleme döngüsünü tekrarlamak için basıncı yeniden uygulayın.
- 200'den az tuzak doluysa yükleme döngüsünü tekrarlayın. Optimal olarak yüklenmiş ünitelerde, tuzakların 2/3'ü hücrelerle dolu olacaktır; bu durum yeterli yükleme ile, deney sırasında tıkanma riskini artıran aşırı yükleme riski arasında bir denge sağlar.
- Farklı görüntüleme üniteleri için ortak pompalar kullanılıyorsa ve bir görüntüleme ünitesi aşırı yüklenirse, tıkanma nedeniyle pompanın durmasını önlemek ve ek deneysel kondisyonların kaybını engellemek için etkilenen ünitenin borusu medya pompasından ayrılır (Şekil 2J).
- Yeterli hücre yüklendiğinde, içi boş paslanmaz çelik pinleri hücre yükleme girişinden çıkarın. Dolu paslanmaz çelik pini dikkatlice ve yavaşça hücre yükleme giriş portuna yeniden takın.
- Dolu paslanmaz çelik pini yükleme portuna çok derin veya çok hızlı yerleştirmekten kaçının; bu, görüntüleme ünitesinde ani bir basınç artışına neden olarak tuzaklanmış hücrelerin kaybına yol açabilir. Aynı kondisyon için ikinci kanalı, 9.6. adımdan başlayarak yükleyin.
- Sıradaki yükleme yapılacak görüntüleme ünitelerindeki dolu paslanmaz çelik pinleri çıkarın, ardından bir sonraki kondisyonu yüklemek için 9.3. adımdan başlayın. Tüm kondisyonlar yüklenene kadar tekrarlayın.
- Mikroskopta canlı görüntüleme kullanarak, tüm yüklü görüntüleme ünitelerini inceleyin; yeterli ve stabil yükleme sağlandığından ve ünitenin aşırı yüklenmediğinden emin olun. Mikropompaya bağlı tüm görüntüleme üniteleri yüklendiğinde ve uygun hücre yüklemesi onaylandığında, mikropompayı 2.4 µL/min sabit akış hızında çalıştırın.
- Medya akışı yeniden başladığında, yeniden kapatılan yükleme portlarından herhangi bir sızıntı olup olmadığını kontrol etmek için mikroakışkan cihazı dikkatlice inceleyin. Sızıntı gözlemlenirse: dolu paslanmaz çelik pini çıkarın ve dikkatlice yeniden takın.
- Sızıntı durdurulamazsa, boruyu 20 mL medya şırınga adaptöründen çıkararak etkilenen görüntüleme ünitesini medya pompasından ayırın (Şekil 2J). Görüntüleme ünitesi aşırı yüklendiyse, boruyu 20 mL medya şırıngası başındaki şırınga adaptöründen çıkararak görüntüleme ünitesini medya pompasından ayırın.
10. Görüntüleme
NOT: Pompalar çalışmaya başladığında ve kalite kontrol tamamlandığında, gametler t0 zaman noktasında (Şekil 1E ve Şekil 3D,E), FITC ve brightfield kanallarında her bölme için tüm görüş alanı (hapsedilmiş hücreleri içeren alanlar) görüntülenerek tanımlanır. Görüntüleme koşulları, kullanılan spesifik sisteme ve deneysel ihtiyaca bağlıdır ve buna göre uyarlanabilir. Örneğin, tek bir birim üzerindeki değişken odak düzlemi farklarını telafi etmek için 40x objektif kullanılarak, FITC ve brightfield kanallarında her pozisyon için 3–8 µm aralıklarla üç z-kesit ve 2 x 27 görüntü elde edilir. t0 görüntülerinin alınmasının ardından, gametlerin tüm replikatif yaşam süresini kapsayacak şekilde, aynı görüş alanının 72 saat boyunca 15–20 dk aralıklarla time-lapse görüntülemesi yapılır (Şekil 3D,E). FITC kanalındaki tekrarlanan görüntülemelerin neden olacağı kümülatif fototoksisiteden kaçınmak için time-lapse görüntüleme yalnızca DIC kanalında gerçekleştirilir.
- Mikropompalar çalışmaya başladıktan sonra, yüklü tüm görüntüleme birimleri için tüm ROI'leri ve odak düzlemlerini yeniden doğrulayın. Gametleri (GFP-pozitif) tanımlamak için tüm ROI'lerde FITC ve DIC kanallarında ilk zaman noktasını (t0) edinin (Şekil 1D ve Şekil 3C).
- t0 ediniminden sonra, toplam 72 saat boyunca 15–20 dakikalık aralıklarla, yalnızca DIC kanalında görüntüleme yaparak zaman ayarlı (time-lapse) görüntülemeye başlayın (Şekil 1E ve Şekil 3D,E). Deney sırasında herhangi bir kendiliğinden sızıntı olup olmadığını kontrol etmek için cihazı ara ara izleyin. Sızıntı gözlemlenirse, geniş çaplı pompa arızalarını veya mikroskoba besiyeri dökülmesini önlemek için ilgili şırınganın bağlantısını kesin.
- Zaman ayarlı görüntüleme tamamlandığında, verileri aktarın ve temizleme işlemine geçin.
11. Temizlik
- Time-lapse görüntüleme tamamlandıktan sonra, temizlik işleminden 30 dk önce pompaları durdurun. Medya şırıngalarını mikropompalardan çıkarın ve pompaları kapatın. Borulara ve medya şırıngasına bağlı içi boş paslanmaz çelik pinleri sökün.
- Mikroakışkan cihazı mikroskoptan çıkarın ve tüm paslanmaz çelik pinleri sökün. Mikroskop objektifindeki yağı temizleyin.
- Mikroakışkan cihazı ve paslanmaz çelik pinleri uygun atık konteynerlerine atın. Verileri aktarın ve mikroskobu kapatın.
12. Gametlerin replikatif yaşam süresi analizi
NOT: Zaman atlamalı (time-lapse) deney tamamlandığında gamet replikatif yaşam süresini nicelleştirmek için görüntüler işlenir ve gamet replikatif yaşam süresi sayılır (Şekil 1F). İşleme süreci, mikroskop kurulumuna ve gereksinimlere bağlıdır. Kısaca, her koşuldan (aynı görüntüleme ünitesi) alınan parlak alan zaman atlamalı görüntüler, bir hiper-yığın (hyper-stack) oluşturmak için birbirine eklenir. Gerekirse, parlak alan zaman atlamalı hiper yığını ve t0 FITC görüntüleri, belirli bir noktanın X-Y koordinatları görüntüler arasında aynı olacak şekilde kırpılır ve yeniden boyutlandırılır. Görüntüler, özel yarı otomatik Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 makroları kullanılarak nicelleştirilir. Makro girişlerine ilişkin özel notlar her makronun üst bilgisinde belirtilmiştir ve bireysel giriş verilerine göre uyarlanması gerekir. Replikatif yaşam süresi, her genotip ve koşul için teknik tekrarda hücre başına 200 hücre için ölçülür. Güçlü replikatif yaşam süresi ölçümleri elde etmek için iki teknik tekrardan gelen sayımlar birleştirilir. Bireysel bir biyolojik tekrar elde etmek için deney tekrarlanır.
DURAKLAMA NOKTASI: Gametlerin replikatif ömrünü değerlendirmek için yapılacak görüntü analizi, protokolün deneysel kısmı tamamlandıktan sonra uygun olan herhangi bir zamanda gerçekleştirilebilir.
- Belirli bir mikroakışkan ünite için t0 FITC görüntüsünü açın. İstendiğinde giriş ve çıkış klasörlerini seçin ve OK seçeneğine tıklayın.
- Mikroakışkan tuzağa yüklenmiş FITC-pozitif gametin etrafına bir dikdörtgen çizin ve dikdörtgeni ROI yöneticisine ekleyin (kısayol t). Hücreyi çok sıkı kırpmayın; her iki yanda yaklaşık bir tuzak genişliği kadar boşluk bırakın. (Şekil 1D, Şekil 3C, ve Ek Şekil 4).
- Tüm FITC-pozitif gametler ROI yöneticisine eklenene kadar devam edin (Ek Şekil 5). ROI yöneticisine gidin ve tüm noktaları seçin. More ve Save seçeneklerine tıklayın.
- ROI listesini çıkış klasörüne kaydedin. Manual ROI Crop and TIFF Export - Open Images makrosunu (Ek Dosya 4) açmak için FIJI/ImageJ'ye sürükleyip bırakın.
- Listedeki son ROI'yi seçin ve makro penceresinde Run seçeneğine tıklayın: Manual ROI Crop and TIFF Export - Open Images (Ek Dosya 4). Makroyu başlatmak için istemleri takip ederek çıkış klasörünü seçin.
- Makro, seçilen tüm ROI'leri çoğaltıp belirtilen çıkış klasörüne kaydetmeye başlar. Makro, tüm ROI'leri çoğaltıp kaydettiğinde durur.
- t0 FITC görüntüsünü kapatın. Aynı mikroakışkan ünite için parlak alan zaman atlamalı hiper yığınını (hyper stack) açın. Eğer henüz açık değilse, Manual ROI Crop and TIFF Export - Open Images makrosunu (Ek Dosya 4) açmak için FIJI/ImageJ'ye sürükleyip bırakın.
- Eğer henüz açık değilse, t0 FITC görüntüsünden kaydedilen ROI listesini açmak için FIJI/ImageJ'ye sürükleyip bırakın. Listedeki son ROI'yi seçin ve makroda Run seçeneğine tıklayın: Manual ROI Crop and TIFF Export - Open Images (Ek Dosya 4).
- Makroyu başlatmak için istemleri takip ederek çıkış klasörünü seçin ve OK seçeneğine tıklayın. Makro, seçilen tüm ROI'leri çoğaltıp belirtilen çıkış klasörüne kaydetmeye başlar.
- Makro, seçilen tüm ROI'leri çoğaltıp kaydettiğinde durur. Parlak alan zaman atlamalı hiper yığınını kapatın.
- Manual GFP, RLS, and Terminal Phenotype Annotation makrosunu (Ek Dosya 5) açmak için FIJI/ImageJ'ye sürükleyip bırakın. Makro penceresinde Run seçeneğine tıklayın.
- İstendiğinde giriş ve çıkış klasörlerini seçin, ardından OK seçeneğine tıklayın. Bir gametin (GFP-pozitif hücre) yüklendiğinden emin olmak için t0 FITC'yi inceleyin. t0 parlak alan zaman atlamalı görüntüsünde aynı hücrenin hâlâ yüklü olduğundan emin olmak için t0 FITC görüntüsü ile t0 parlak alan zaman atlamalı görüntüsünü karşılaştırın (Şekil 3C).
- İstem penceresindeki OK seçeneğine tıklayın: Action Required (GFP cell trapped Y/N?) (Ek Şekil 6). Eğer t0 FITC hücresi GFP pozitif değilse, istem penceresinde 0 seçeneğini belirleyin.
- t0 parlak alan zaman atlamalı görüntüsünde yüklü olan hücre, t0 FITC görüntüsünde yüklü olan hücre ile aynı değilse, istem penceresinde 0 seçeneğini belirleyin. t0 FITC hücresi GFP pozitifse ve t0 parlak alan zaman atlamalı görüntüsünde yüklü olan hücre, t0 FITC görüntüsünde yüklü olan hücre ile aynıysa, istem penceresinde 1 seçeneğini belirleyin (Ek Şekil 7). GFP hücresi kararı verildiğinde istem penceresindeki OK seçeneğine tıklayın.
- Yüklenen gametten, terminal bir fenotipe ulaşana kadar (bölünmeyi durdurana kadar) veya tuzaktan atılana kadar (ROI'den kaybolana kadar) kaç tane yavru hücre çıktığını değerlendirerek replikatif yaşam süresini (RLS) sayın.
- Replikatif yaşam süresi sayıldıktan sonra, istem penceresindeki OK seçeneğine tıklayın: Action Required (RLS of cell?) (Ek Şekil 8). İstem penceresinde, kaç bölünme gözlemlendiğini (RLS) seçin (Şekil 3D,E; Ek Şekil 9).
- RLS bildirildikten sonra, istem penceresindeki OK seçeneğine tıklayın. Hücrenin terminal fenotipe ulaşıp ulaşmadığını veya bölünmeyi durdurmadan önce tuzaktan atılıp atılmadığını belirleyin.
- İstem penceresindeki OK seçeneğine tıklayın: Action Required (Terminal?) (Ek Şekil 10). Terminal fenotip gözlemlenmeden önce, hücre hâlâ bölünürken atılırsa istem penceresinde 0 seçeneğini belirleyin.
- Terminal bir fenotip gözlemlendiyse istem penceresinde 1 seçeneğini belirleyin (Ek Şekil 11). Belirsizse istem penceresinde “?” seçeneğini belirleyin.
- Terminal kader kararı verildiğinde istem penceresinde OK'ye tıklayın. İstem penceresindeki OK seçeneğine tıklayın: Action Required (Reason?) (Ek Şekil 12).
- Hücre terminal fenotipe ulaşmadan önce atılırsa, atılma hücre kaderini seçin: “ejected” = hücre hâlâ bölünürken atıldı; hücre terminal fenotipe ulaştıysa terminal hücre kaderlerini seçin: (a) ejected/done = hücre terminal morfoloji kazandı ancak son bölünmeden sonraki 3 saat içinde atıldı; (b) enlarged = hücre büyüdü ve bölünmeyi durdurdu; (c) failed division and enlarged = hücre son bölünme sırasında ayrılmayı başaramadı ve bölünmeyi durdurdu; (d) shriveled up = hücre artık bölünmüyor ve büzülmüş, buruşmuş bir morfoloji sergiliyor (Ek Şekil 13); (e) other = yukarıdaki açıklamalara uymayan diğer tüm sınıflar.
- Terminal hücre kader kararı verildiğinde istem penceresindeki OK seçeneğine tıklayın. Tüm istemlerin sonuçları otomatik olarak Log penceresine kaydedilecek ve çıkış klasörüne bir .txt dosyası olarak kaydedilecektir.
- Sayım sırasında Log penceresini kapatmayın. Giriş klasöründeki bir sonraki görüntü otomatik olarak açılacaktır. Betik giriş klasörlerindeki tüm görüntüler arasında döngü tamamlayana kadar 12.12–12.22 arasındaki adımları tekrarlayın.
Sonuçlar
Replikatif yaş ayrımının ve gametogenez verimliliğinin değerlendirilmesi
Farklı yaşlardaki öncül hücrelerden elde edilen gametlerin replikatif yaşam sürelerini karşılaştırmak için, hücre popülasyonlarının yeterli yaş ayrımı ve saflığı sağlanmalıdır. Elde edilen yaşlanmış hücre popülasyonlarının saflığını %90–100'e çıkarmak için, standart yaş ayırma protokolünde kritik bir adaptasyon yapılarak, ilk ayırma işleminden elde edilen yaşlanmış hücre eluatı ikinci bir ayırma işlemi için yeni bir kolona tekrar uygulanmıştır9. Çift ayırma işlemine tabi tutulmuş yaşlanmış ve genç hücre popülasyonlarının saflığını ve yaşını değerlendirmek için tomurcuk izlerine ve biyotine karşı boyama yapılır ve her durum için yaklaşık 50 hücre görüntülenir. Buğday germ aglutinin, maya hücre duvarında bulunan ve her tomurcuklanma olayından sonra bir tanesi kalan kitin açısından zengin halka benzeri yapılar olan tomurcuk izlerine spesifik olarak bağlanarak bir hücrenin kesin replikatif yaşını ortaya çıkarır (Şekil 1C ve Şekil 4A)22. Pre-gametojenik hücrelerin görüntüleri, protokolün 5. adımında açıklanan görüntü analiz hattı izlenerek analiz edilir.
Burada açıklanan ardışık sıralama protokolü, tutarlı bir şekilde sadece yaklaşık %3,63 biotinillenmiş hücre içeren ve ortalama replikatif yaşı 1,16 olan genç hücre popülasyonları ile yaklaşık %96,74 biotinillenmiş hücre içeren ve ortalama replikatif yaşı 8,55 olan yaşlı hücre popülasyonları ile sonuçlanmaktadır (Şekil 4B,C)9. Biotin boyaması ile değerlendirilen yaşlı veya genç hücre popülasyonunun saflığı %80'in altındaysa, deney sonlandırılır. Optimal bir deneyde, genç ve yaşlı hücre popülasyonları arasındaki ortalama yaş farkı en az 6 bölünmedir; ayrım 4 bölünmeden düşükse, deney sonlandırılır.
Gametogenez verimliliği, gametogenez indükleyen besiyerinde 24 saatin ardından analiz edilir. Tanımlanan koşullar altında, kontrol genotipinde genç hücrelerin %79,8'i ve yaşlanmış hücrelerin %78,89'u görünür şekilde belirgin tetratları başarıyla oluşturur (Şekil 4D)9. Düşük gametogenez verimliliği bu protokol için kesin bir darboğaz teşkil etmez, ancak gamet verimini düşürerek sonraki basamakları daha zorlu ve daha az tekrarlanabilir hale getirir. Bu nedenle, gametogenez verimliliği %30'un altındaysa, yaşlanmış öncül hücrelerden yeterince yüksek gamet verimi sağlamak için ayıklama için kullanılan hücre girişi iki katına çıkarılır (4 x 8 OD600).
Genç öncül hücrelerden elde edilen gametogenez sonrası tetrat popülasyonları tekrarlanabilir şekilde %13,38 biotinillenmiş hücre saflığına ve 1,31 ortalama replikatif yaşa sahipken, yaşlı hücrelerden elde edilenler %97,34 biotinillenmiş hücre saflığına ve 8,17 ortalama replikatif yaşa sahiptir (Şekil 4E,F)9. Belirli bir genotipte, ayrıştırılmış tetrat popülasyonlarının saflığı %20'den fazla değişirse veya yaşlı tetratların ortalama yaşı, gametogenez öncesi yaşlı hücre popülasyonlarına kıyasla 3 bölünmeden daha fazla azalırsa daha fazla değerlendirme yapılmalıdır (Şekil 4E,F).
Özetle, ardışık manyetik boncuk ayıklama, pre-meiyotik hücrelerin etkili bir şekilde yaşa göre ayrılmasını sağlar; genç (%79,8) ve yaşlı (%78,89) hücrelerde gametogenez verimlilikleri birbirine benzerdir. Replikatif yaş ve hücre popülasyonlarının saflığı iki kez analiz edilir: gametogenez öncesi ve sonrası. Tetradların yaş ayrımının yeniden doğrulanması, belirli bir mutasyonun gametogenezi yaşa bağımlı bir şekilde etkileyerek yaşlı hücrelerin gametogeneze özgü olarak azalması olasılığını dışlamak için önemlidir.
Gametojenik gençleşmenin değerlendirilmesi
Gametogenez öncesi vahşi tip hücreler, genç ve yaşlı hücre popülasyonları şeklinde ayrıştırıldı ve gametogenez burada anlatıldığı gibi indüklendi. Gamet ayrılmasından ve gamet replikatif yaşam süresi kazanımından önceki popülasyonların replikatif yaşını belirlemek için tetrat başına düşen tomurcuk izleri nicelleştirildi (Şekil 5A)9. Time-lapse görüntülemenin ardından, genç ve yaşlı öncül hücrelerden türeyen gametlerin replikatif yaşam sürelerinin nicelleştirilmesi ve karşılaştırılması, genç ve yaşlı öncül hücrelerden türeyen gametler için benzer medyan replikatif yaşam süreleri gösterdi (sırasıyla 21 ve 22 bölünme; p = 0,982; Şekil 5B); bu durum, burada açıklanan protokolün gametojenik gençleşmeyi yakaladığını doğrulamaktadır.
Bu yaklaşımı kullanarak, hasarlı hücresel bileşenlerin seçici otofaji yoluyla yıkımının gametojenik gençleşme için gerekli olduğunu belirledik9. Hasarlı bileşenlerin vakuol aracılığıyla yıkımını yöneten otofaji yolları yaşla birlikte azalır ve bu durum hasarlı hücresel bileşenlerin artmasına yol açar23,24. Temel otofaji mekanizmasının, belirli kargoları işaretleyen seçici otofaji reseptörlerine yönlendirilmesi için gerekli olan ana seçici otofaji iskele proteini olan Atg11, gametogenez sırasında dinamik olarak yukarı regüle edilir9. Seçici otofaji yoluyla hasarın temizlenmesinin gametojenik gençleşme için önemli olup olmadığını test etmek amacıyla, pre-gametojenik atg11Δ hücreleri genç ve yaşlı hücre popülasyonlarına ayrıldı ve burada açıklanan protokol izlenerek gametogenez indüklendi. Tetrad popülasyonunun replikatif yaşı, tetrad başına tomurcuk izleri sayılarak doğrulandıktan sonra (Şekil 5C)9, tetradlar ayrıldı ve gamet replikatif yaşam süresi elde edildi. Genç ve yaşlı öncüllerden gelen atg11Δ gametlerinin medyan replikatif yaşam süresinin hesaplanması, yaşlı öncül hücrelerden gelen gametlerin, genç atg11Δ öncül hücrelerden gelen gametlere kıyasla anlamlı ve tekrarlanabilir şekilde daha kısa bir replikatif yaşam süresine sahip olduğunu ortaya koydu (Şekil 5D, Rep.1, p = 2 x 10⁻⁶, Rep.2, p = 3 x 10⁻⁶; Şekil 5B ile karşılaştırıldığında)9. Bu sonuç, Atg11 aracılı seçici otofajinin, yaşlı öncül hücrelerden türetilen gametlerin tam gençleşmesinde kritik bir rol oynadığını göstermekte ve burada açıklanan iş akışının, tamamen gençleşmiş gametler üretmek için gerekli bileşenleri ortaya çıkarabileceğini kanıtlamaktadır.
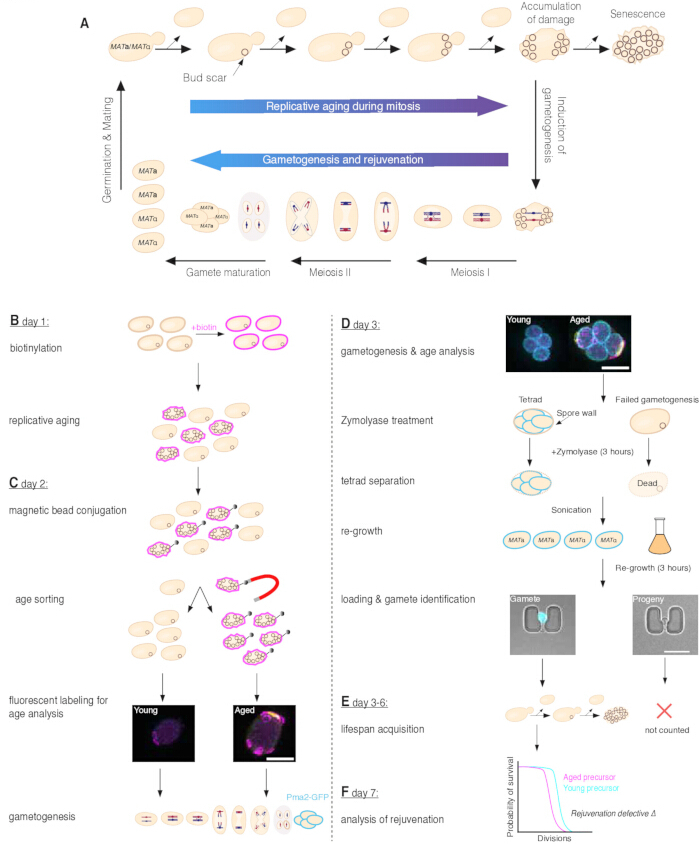
Şekil 1. Gametojenik gençleştirme ve gametlerin replikatif ömrünü değerlendirme hattı. (A) Vejetatif büyüme sırasında, tomurcuklanan maya asimetrik olarak bölünür. Yeni oluşan yavru hücreler genç olarak doğarken, ana hücreler yaşa bağlı hasarları kademeli olarak biriktirir ve sonunda senesent hale gelir. Tek bir maya hücresinin replikatif yaşı, her bölünmeden sonra oluşan ve ana hücre duvarında kalan tomurcuk izlerinin sayısı ile belirtilir (üst panel). Gametogenez, besin tükenmesi ile indüklenir (aşağı yönlü ok, sağ). Bu süreçte, diploid maya simetrik olarak bölünerek, iki çiftleşme tipinden dört eşit derecede genç haploid gamet içeren tetradlar üretir. Gamet replikatif ömrü, replikatif olarak yaşlanmış öncül hücrelerden türetilen gametlerde bile tamamen sıfırlanır (alt panel). Besinlerin eklenmesiyle gametlerle çimlenir, mitotik büyümeye geri döner ve iki çiftleşme tipinin eşleşmesi üzerine diploid hücreler oluşturur (yukarı yönlü ok, sol). (B) Kurucu hücreler 1. günde biotin ile işaretlenir ve replikatif olarak yaşlanmış kurucu hücreler ile genç yavru hücreler üretmek için optimal büyüme sıcaklığında, zengin besiyerinde gece boyunca kültüre edilir. (C) 2. günde, biotinle işaretlenmiş kurucu hücreler manyetik boncuklara konjuge edilir ve ardından yaşlanmış kurucu hücreleri genç yavru hücrelerden ayırmak için manyetik yaş sıralaması yapılır. Sıralama verimliliğini belirlemek ve ayrılan popülasyonların replikatif yaşlarını doğrulamak için biotin ve tomurcuk izi floresansı değerlendirilir. Hücreler daha sonra Pma2-GFP eksprese eden tetradlar oluşturmak için gametogenezi indükleyen besiyerinde gece boyunca inkübe edilir. (D) 3. günde, gametogenezi ve popülasyonların yaş dağılımlarını doğrulamak için gametogenez verimliliği, biotin işaretlemesi ve tomurcuk izleri değerlendirilir. Spor duvarını sindirmek ve gametogenez sürecini tamamlayamayan hücreleri lizlemek için tetradlar 3 h boyunca Zymolyase ile muamele edilir ve ardından sonikasyon ile mekanik ayırma işlemi uygulanır. Ayrılan gametlerin, mikroakışkan U-tuzaklarında tutulmalarını kolaylaştırmak için yeniden büyümelerine izin verilir ve ardından mikroakışkan cihaza yüklenirler. Temsili görüntüler, U-tuzaklarına yakalanmış ve parlak alan ve Pma2-GFP floresansı (Siyan) ile görselleştirilmiş Pma2-GFP-pozitif bir gameti (sol) ve Pma2-GFP-negatif gamet soyunu (sağ) göstermektedir. (E) Gamet replikatif ömrü, protokolün 3–6. günleri boyunca mikroakışkan tabanlı uzun süreli zaman ayarlı görüntüleme kullanılarak ölçülür. (F) Protokolün 7. gününde, gençleştirme kusurlu bir arka planda gamet replikatif ömrü analizinden sonraki hipotetik sonuç. Ölçek çubukları = 5 µm. Bu şekil Spiri ve ark. 9 çalışmasından uyarlanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
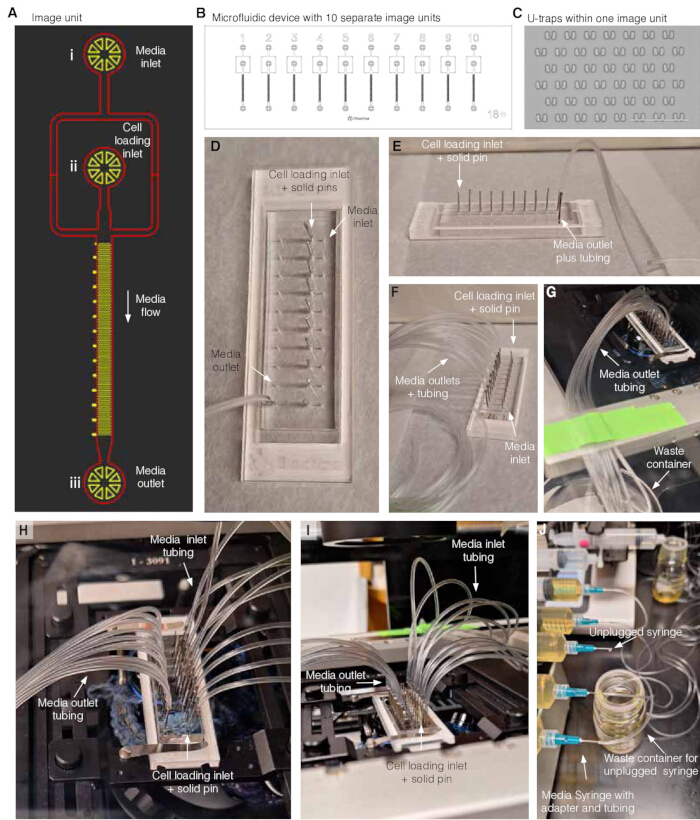
Şekil 2. Mikroakışkan cihaz hazırlığı. (A) Bir görüntüleme biriminin şematik genel görünümü. (i) Besiyeri girişi; (ii) hücre yükleme girişi ve (iii) besiyeri çıkışı. Deney sırasında, hücre yükleme girişi (ii) katı bir paslanmaz çelik pim ile kapatılmışken, taze besiyeri besiyeri girişinden (i) besiyeri çıkışına (iii) doğru akar. (B) 10 ayrı görüntüleme birimi içeren bir mikroakışkan cihazın şematik genel görünümü. (C) Bir görüntüleme birimindeki PDMS U-tuzaklarının ve boşlukların görüntüsü, ölçek çubuğu 100 µm'dir. (D) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış ve besiyeri akış toplama işlemi için bir besiyeri çıkışına içi boş paslanmaz çelik pim ve tüp takılmış mikroakışkan cihazın üstten görünümü. (E) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış ve besiyeri akış toplama işlemi için bir besiyeri çıkışına içi boş paslanmaz çelik pim ve tüp takılmış mikroakışkan cihazın yandan görünümü. (F) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış ve besiyeri akış toplama işlemi için tüm besiyeri çıkışlarına içi boş paslanmaz çelik pimler ve tüpler takılmış mikroakışkan cihaz. (G) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış, tüm besiyeri çıkışlarına içi boş paslanmaz çelik pimler ve tüpler takılmış ve mikroskoba monte edilmiş mikroakışkan cihaz. Besiyeri akış toplama tüpleri mikroskop tablasına bantlanmış (yeşil bant) ve atık toplama kabına yönlendirilmiştir. (H) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış, tüm besiyeri çıkışlarına içi boş paslanmaz çelik pimler ve tüpler takılmış ve tüm besiyeri girişlerine takılı besiyeri şırıngalarına içi boş paslanmaz çelik pimler ve tüpler bağlanmış, mikroskoba monte edilmiş mikroakışkan cihaz. (I) Tüm hücre yükleme girişleri katı paslanmaz çelik pimlerle kapatılmış, tüm besiyeri çıkışlarına içi boş paslanmaz çelik pim ve tüpler takılmış ve tüm besiyeri girişlerine takılı besiyeri şırıngalarına içi boş paslanmaz çelik pim ve tüpler bağlanmış, mikroskoba monte edilmiş mikroakışkan cihaz. Besiyeri şırıngalarından gelen tüpler mikroskop tablasına bantlanmıştır (arka plandaki yeşil bant). (J) Sızıntı veya aşırı yüklü bir görüntüleme birimi durumunda besiyeri şırıngasının mikroakışkan cihazdan nasıl çıkarılacağına dair örnek. Şekil 2A–C, Jo ve ark.15'tan uyarlanmıştır. Şekil D–J, Spiri ve ark.9'dan uyarlanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
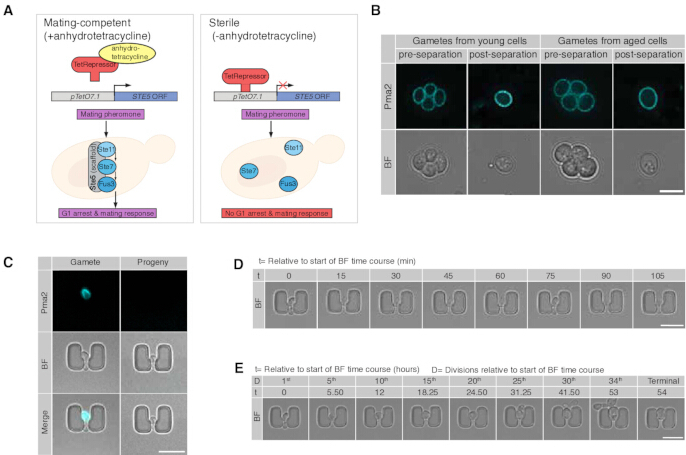
Şekil 3Gametlerin replikatif ömürlerinin mikroakışkan tabanlı kazanımı için gamet hazırlığı. (A) Kondisyonel sterilite sağlamak için kullanılan genetik sistemin şematik gösterimi. ...'nın endojen promotörü STE5çiftleşme feromonu algılaması üzerine sinyal iletimi için gerekli olan bir iskele protein olan , şununla değiştirilmiştir pTetO7.1 promotör fragmanı. Bazal durumda, konstitütif bir promotör altında eksprese edilen Tet Represör proteini (TetR), bağlanır pTetO7.1 ve bu promotörden transkripsiyonu baskılar. Anhidrotetrasiklin ilavesi ve bağlanması, Tet Represöründe konformasyonel bir değişikliğe yol açarak onun şuna olan afinitesini azaltır pTet07.1 ve böylece, ... transkripsiyonunun baskılanmasını kaldırarak STE5. (B) Sırasıyla, ayrılma öncesi ve sonrası genç (sol panel) ve yaşlı (sağ panel) tetratların ve gametlerin, brightfield ve Pma2-GFP (cam göbeği) görüntülerinin görselleştirildiği temsili tekil z-kesitleri. (C) Mikroakışkan tabanlı cihazlarda yakalanmış, parlak alan ve Pma2-GFP (siyan) görüntülerinin görselleştirildiği, temsili Pma2-GFP pozitif gamet (sol panel) ve Pma2-GFP negatif gamet progenisi (sağ panel).D) Tuzaklanmış temsilci gamet 2 saatlik bir süre boyunca iki kez bölünür.E) Bir mikroakışkan görüntüleme ünitesinde yakalanmış temsilci gamet; her 5 saniyede bir görselleştirmeth terminal 34'e kadar bölünmeth 54 saatlik zaman dilimi boyunca bölünme. Ölçek çubukları = 5 µmBu şekil, Spiri ve ark. çalışmasından uyarlanmıştır.9. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
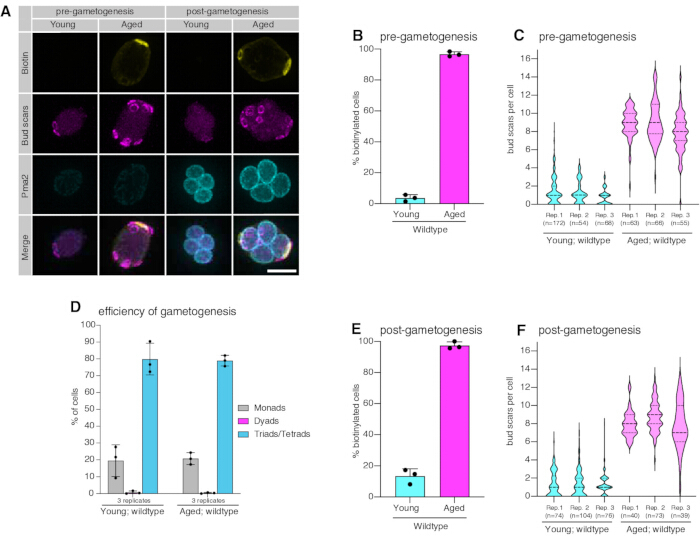
Şekil 4. Replikatif yaşın ve gametogenez verimliliğinin nicelendirilmesi. (A) Floresan işaretli streptavidin (sarı) kullanılarakle biotinin, floresan işaretli buğday germ aglutinine (macenta) ile kitin bakımından zengin tomurcuk izlerinin ve Pma2-GFP (siyan) ile görselleştirilmiş, temsilci yaşa göre ayrılmış pre-gametojenik maksimum yoğunluk projeksiyonlu hücreler (sol panel) ve post-gametojenik tetratlar (sağ panel). (B) Genç (%3,63 ± 2,12, ortalama ± standart sapma (SD), 3 replika, sırasıyla n = 172, 54 ve 68) ve yaşlı (%96,74 ± 1,58, ortalama ± SD, 3 replika, sırasıyla n = 63, 66 ve 55) yabani tip hücre popülasyonlarındaki biyotinlenmiş hücre fraksiyonunun nicelendirilmesi, hata çubukları SD'yi temsil eder. (C) Genç (1,16 ± 0,41, ortalama ± SD, n = 3 replika, sırasıyla n = 172, 54 ve 68) ve yaşlı (8,55 ± 0,66, ortalama ± SD, 3 replika, sırasıyla n = 63, 66 ve 55) yabani tip hücre popülasyonlarında tomurcuk izi sayısı değerlendirilerek replikatif yaşın nicelendirilmesi. (D) Genç (%79,8 ± 9,43; ortalama ± SD, 3 replika, Rep.1 ve 3 n = 300, Rep. 2 n = 281) ve yaşlı (%78,89 ± 3,17, ortalama ± SD, 3 replika, her biri n = 300) post-gametojenik yabani tip hücre popülasyonlarındaki tetrat fraksiyonunun nicelendirilmesi, hata çubukları SD'yi temsil eder. (E) Gametogenezin tamamlanmasının ardından genç (%13,38 ± 4,74, ortalama ± SD, n = 3 replika, sırasıyla n = 74, 104 ve 76) ve yaşlı (%97,34 ± 2,33, ortalama ± SD, 3 replika, sırasıyla n = 40, 73 ve 39) yabani tip popülasyonlarındaki biyotinlenmiş tetrat fraksiyonunun nicelendirilmesi, hata çubukları SD'yi temsil eder. (F) Genç (1,31 ± 0,04, ortalama ± SD, 3 replika, sırasıyla n = 74, 104 ve 76) ve yaşlı (8,17 ± 0,54, ortalama ± SD, 3 replika, sırasıyla n = 40, 73 ve 39) yabani tip tetrat popülasyonlarında tomurcuk izi sayısı değerlendirilerek replikatif yaşın nicelendirilmesi. Ölçek çubukları = 5 µm. Güven aralıkları Wilson skor yöntemi kullanılarak hesaplanmıştır. Keman grafikleri medyanı (düz çizgiler), 25inci ve 75inci persentilleri (noktalı çizgiler) göstermektedir. Bu şekil Spiri ve ark.9 çalışmasından uyarlanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
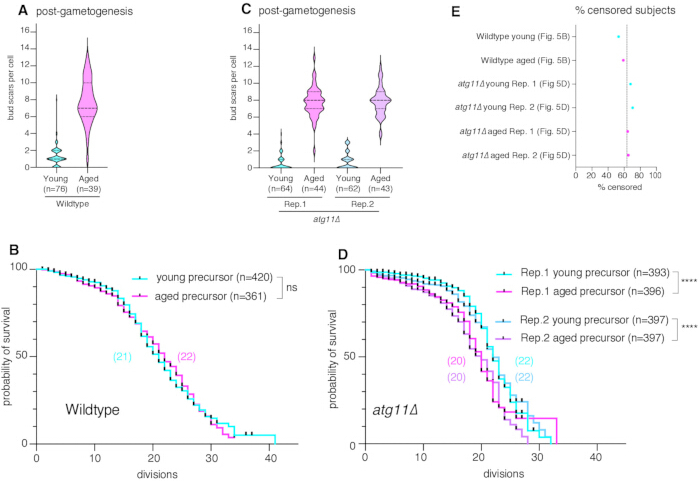
Şekil 5. Replikatif yaşam süresinin nicelleştirilmesi. (A) Genç (1.3 ± 1.2, ortalama ± SD, n =76) ve yaşlı (7.8 ± 2.6, ortalama ± SD, n = 39) yabani tip gamet popülasyonlarında tomurcuk izi sayısı değerlendirilerek replikatif yaşın nicelleştirilmesi; Rep. 3 için Şekil 4F'de gösterilenle aynı veriler. (B) Genç (medyan yaşam süresi = 21, n = 420, 223 sansürlenmiş denek) ve yaşlı (medyan yaşam süresi = 22, n = 361, 213 sansürlenmiş denek, gençlerle karşılaştırıldığında p = 0.982) yabani tip gametlerin replikatif yaşam süresinin nicelleştirilmesi. İki teknik tekrardan elde edilen sayımlar birleştirilmiştir. (C) atg11Δ tetrad popülasyonlarında tomurcuk izi sayısı değerlendirilerek replikatif yaşın nicelleştirilmesi: Rep. 1 genç (0.53 ± 0.91, ortalama ± SD, n = 64) ve yaşlı (7.8 ± 1.8, ortalama ± SD, n = 44); Rep. 2 genç (0.82 ± 1, ortalama ± SD, n = 62) ve yaşlı (7.9 ± 1.7, ortalama ± SD, n = 43). (D) İki bağımsız biyolojik tekrar için atg11Δ gametlerin replikatif yaşam süresinin nicelleştirilmesi: Rep.1 genç (medyan yaşam süresi = 22, n = 393, 267 sansürlenmiş denek) ve yaşlı (medyan yaşam süresi = 20, n = 396, 255 sansürlenmiş denek, p = 2 x 10⁻⁶); Rep. 2 genç (medyan yaşam süresi = 22, n = 397, 280 sansürlenmiş denek) ve yaşlı (medyan yaşam süresi = 20, n = 397, 259 sansürlenmiş denek, gençlerle karşılaştırıldığında p = 3 x 10⁻⁶). Her bağımsız biyolojik tekrar için, iki teknik tekrardan elde edilen sayımlar birleştirilmiştir. (E) Tüm yaşam süresi deneyleri üzerinden sansürlenen olayların yüzdesi. Kesikli çizgi, n = 6 deneyden gelen sansürlenmiş deneklerin ortalamasını (63.4% ± 6.2 ortalama ± SD) göstermektedir. Replikatif yaşam sürelerindeki farkların istatistiksel anlamlılığı Log-rank (Mantel-Cox) testi kullanılarak değerlendirilmiştir; sağkalım eğrileri üzerindeki işaretler sansürlenen olayları temsil eder. Keman grafikleri medyanı (düz çizgiler), 25inci ve 75inci persentilleri (noktalı çizgiler) göstermektedir. p değerleri belirtilmiştir (ns = p > 0.05, * = p ≤ 0.05, ** = p ≤ 0.01, *** = p ≤ 0.001, **** = p ≤ 0.0001). Bu şekil Spiri et al.9'dan uyarlanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: Tomurcuk izi analizi için ilgi bölgelerinin seçimi. Dikdörtgen ilgi bölgeleri (ROI'ler) kullanılarak seçilen ve sonraki analizler için ROI Yöneticisine eklenen bireysel hücreleri gösteren temsili ImageJ ekran görüntüsü. Seçilen ROI'ler sarı kutular olarak görüntülenmektedir. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 2: Tomurcuk iz sayısının manuel girişi. Seçilen her hücre için tanımlanan tomurcuk iz sayısını manuel olarak girmek için kullanılan diyalog kutusunu gösteren ImageJ ekran görüntüsü. Tomurcuk izleri, Y-projeksiyonu döndürülerek ve buğday germ aglutinin sinyali incelenerek sayılır. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 3: Biyotin işaretlemesinin manuel sınıflandırılması. Seçilen bir hücrenin biyotin işaretlemesi açısından pozitif mi yoksa negatif mi olduğunu kaydetmek için kullanılan iletişim kutusunu gösteren temsili ImageJ ekran görüntüsü. 1 değeri biyotin-pozitif bir hücreyi, 0 değeri ise biyotin-negatif bir hücreyi ifade eder. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 4: Bir mikroakışkan cihazda ilgilenilen bölgelerin seçimi. Dikdörtgen ROI'ler kullanılarak seçilen ve ROI Yöneticisine eklenen bireysel mikroakışkan U-tuzaklarını gösteren temsili ImageJ ekran görüntüsü. Her ROI, sonraki analizler için tek bir U-tuzak kapsar. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 5: Seçilen mikroakışkan U-tuzak ROI'lerinin görselleştirilmesi.Bireysel U-tuzakların seçiminden sonra mikroakışkan cihaz üzerinde bindirilmiş çoklu dikdörtgen ROI'leri gösteren temsili ImageJ ekran görüntüsü. ROI'ler, ROI Yöneticisindeki “Show All” (Tümünü Göster) fonksiyonu kullanılarak eş zamanlı olarak görüntülenmektedir. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 6: Mikroakışkan U-tuzaklarda GFP-pozitif hücrelerin tanımlanması. Seçilen U-tuzak içinde GFP-pozitif bir hücrenin hapsolup hapsolmadığını belirlemek için kullanılan istemi gösteren temsili ImageJ ekran görüntüsü. Tanımlamayı kolaylaştırmak için parlak alan görüntüsünün yanında bir floresan görüntü görüntülenmektedir. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 7: GFP-pozitif hücrelerin manuel sınıflandırılması. Seçilen bir U-tuzağı içindeki bir hücre için GFP durumunu kaydetmek amacıyla kullanılan iletişim kutusunu gösteren temsili ImageJ ekran görüntüsü. 1 değeri GFP-pozitif bir hücreyi, 0 değeri ise GFP-negatif bir hücreyi belirtir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 8: Replikatif ömrün manuel girişi. Zaman atlamalı görüntü yığınını inceledikten sonra tek bir hücrenin replikatif ömrünün (RLS) girilmesinde kullanılan diyalog kutusunu gösteren temsili ImageJ ekran görüntüsü. RLS, gözlemlenen toplam hücre bölünmesi sayısı olarak belirlenir. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 9: Replikatif yaşam süresinin manuel girişi. Parlak alan zaman atlamalı görüntü yığınını inceledikten sonra tek bir hücrenin replikatif yaşam süresini (RLS) girmek için kullanılan diyalog kutusunu gösteren temsili Fiji/ImageJ ekran görüntüsü. RLS, gözlemlenen toplam hücre bölünme sayısı olarak kaydedilir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 10: Replikatif yaşam süresi analizi sırasında terminal durum değerlendirmesi. Analiz edilen hücrenin terminal bir fenotipe ulaşıp ulaşmadığını veya terminal duraksama öncesinde tuzaktan atılıp atılmadığını belirlemek için kullanılan “Terminal?” istemini gösteren temsili Fiji/ImageJ ekran görüntüsü. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 11: Replikatif yaşam süresi analizi sırasında terminal durumun kaydedilmesi. Terminal bir fenotipin gözlemlenip gözlemlenmediği belirlendikten sonra terminal durum değerinin seçimini gösteren temsili Fiji ekran görüntüsü. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 12: Terminal hücre kaderinin seçimi. Analiz edilen bir hücrenin sansürlenme nedenini veya terminal kaderini atamak için kullanılan istemi gösteren temsili Fiji ekran görüntüsü. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 13: Terminal hücre morfolojisinin sınıflandırılması. Bölünmeyi durdurmuş ve büzülmüş bir morfoloji sergileyen bir hücre için “büzülmüş” (shriveled up) sınıflandırması da dahil olmak üzere terminal fenotip seçimini gösteren temsili Fiji ekran görüntüsü. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Dosya 1. Manuel ROI Seçimi ve TIFF Dışa Aktarma Fiji makrosu. Bireysel hücreleri ilgi bölgeleri (ROI'ler) olarak manuel olarak seçmek, seçilen ROI'leri kırpmak ve kırpılan görüntüleri sonraki analizler için TIFF dosyaları olarak dışa aktarmak amacıyla kullanılan özel Fiji/ImageJ makrosu. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Dosya 2. Tek Hücre 3B ve Z Projeksiyon Fiji makrosu. Sonraki tomurcuk izi ve biyotin işaretleme analizleri için, tekil olarak kırpılmış hücrelerin üç boyutlu projeksiyonlarını ve Z-projeksiyon görüntülerini oluşturmak amacıyla kullanılan özel Fiji/ImageJ makrosu. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 3. Manuel Budscar ve Biotin Anotasyonu Fiji makrosu. Bud izi sayısını manuel olarak kaydetmek ve bireysel hücreleri biotin etiketleme durumuna göre sınıflandırmak için kullanılan özel Fiji/ImageJ makrosu. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 4. Manuel ROI Kırpma ve TIFF Dışa Aktarma – Open Images Fiji makrosu. t0 FITC görüntüleri ve brightfield time-lapse hyper-stack'lerinden, sonraki gamet replikatif yaşam süresi analizi için ilgili ilgi bölgelerini (ROI) kırpmak ve dışa aktarmak amacıyla kullanılan özel Fiji/ImageJ makrosu. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 5. Manuel GFP, RLS ve Terminal Fenotip Açıklama Fiji makrosu. Gamet replikatif yaşam süresi analizi sırasında GFP-pozitif gametleri tanımlamak, replikatif yaşam süresini (RLS) manuel olarak kaydetmek, terminal durumunu belirlemek ve terminal veya atılma fenotiplerini sınıflandırmak için kullanılan özel Fiji/ImageJ makrosu. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Burada, Spiri ve ark. tarafından tanıtılan9 yüksek verimli mikroakışkan tabanlı bir iş akışı kullanarak, farklı yaşlardaki öncül hücrelerden türetilen maya gametlerinin replikatif ömürlerini ölçmek için ayrıntılı bir protokol sunuyoruz. Bu teknik, çeşitli genetik arka planlarda gametojenik gençleşmenin verimliliğine yönelik araştırmaları hızlandırır ve gametojenik gençleşmenin korunmuş sürecine dair mekanistik içgörüler elde etmek için kullanılabilir. Gametogenezin mayalarda replikatif ömrü sıfırladığına dair keşif, başlangıçta mikrodissection analizleri okunarak W303 ve A364 suş arka planlarında yapılmıştır7. Gametogenez sonrası replikatif ömrün sıfırlanması, gametojenik çalışmalar için yaygın olarak kullanılmasına rağmen, ilk birkaç yavru hücrenin gametten ayrılmasındaki zorluklar nedeniyle SK1 suşu için değerlendirilememiştir7. Bu protokolün geliştirilmesi sırasında, hücre ayrılmasını modüle etmek için AMN1 lokusuna D368V nokta mutasyonu getirerek ve flokülasyonu ortadan kaldırmak için FLO8 genini silerek SK1 suş arka planını mühendislikle değiştirip bu sınırlamayı aştık25,26. Ayrıca, çiftleşme yanıtını tetiklemek için gerekli olan bir sinyal iskele proteini olan STE5'in ekspresyonu, endojen lokusta anhidrotetrasiklin indüklenebilir bir Tet-OFF sisteminin uygulanmasıyla koşullu olarak kısıtlanmıştır (Şekil 3A)27,28,29. Bu durum, MATa ve MATα hücreleri arasında tam bir koşullu çiftleşme eksikliğiyle sonuçlanmakta, böylece deneyler sırasında MATa ve MATα gametleri arasında çiftleşme yanıtlarının tetiklenmesini önleyerek genetik çaprazlamaları mümkün kılmaktadır. Son olarak, kısa bir büyüme sonrası gametleri tanımlamak ve onları vejetatif hücrelerden ayırt etmek için, endojen promotörü altında Pma2-GFP füzyon proteini taşıyan transgenik bir raporer eklenmiştir. Pma2-GFP, gametogenezin geç evrelerinde spesifik olarak eksprese edilir, gamet plazma membranına lokalize olur ve çimlenme sonrası birkaç hücre bölünmesi boyunca korunur (Şekil 1D, Şekil 3B,C, ve Şekil 4A)9. Burada açıklanan mikroakışkan tabanlı analiz, gametojenik gençleşmeyi nicelleştirmek için önceden mevcut olan tek yöntem olan zahmetli ve çok günlük mikrodissection analizlerine kıyasla, gametojenik gençleşme programına yönelik araştırmaların verimliliğini ve uygulanabilirliğini önemli ölçüde artırmaktadır. Mikrodissection ile W303 ve A364'te elde edilen sonuçlarla uyumlu olarak7, replikatif ömrün SK1 suş arka planında gametogenezden sonra tamamen sıfırlandığını kanıtlıyoruz. Ek olarak, bu yöntemi uygulayarak, Atg11 bağımlı selektif otofajinin gametlerin tam gençleşmesi için gerekli olduğunu ortaya çıkardık (Şekil 5B,D) (veriler Spiri ve ark.'dan türetilmiştir)9.
Mikroakışkan cihazlar (Şekil 2A–D), açıklanan protokole (adım 8) göre kurulur ve monte edilir. Mikroakışkan cihaz mikroskopa monte edilmeden önce, lamelde çatlak olup olmadığı dikkatlice incelenir. Mikroakışkan cihaz taşınırken lamelin zarar görmemesi için dikkatli olunmalıdır. Çatlaklar tespit edilirse, medyanın mikroskoba sızmasını ve deney sırasında basınç tutarsızlıklarını önlemek için etkilenen görüntüleme ünitesi kullanılmaz. Aynı mikroakışkan cihazın etkilenmemiş görüntüleme üniteleri teorik olarak hala kullanılabilse de, yapısal olarak bozulmuş lamelin deney sırasında daha fazla çatlak yayılmasına yol açma riskinin yüksek olması nedeniyle yeni bir mikroakışkan cihaza geçilmesi önerilir. Ardından, PDMS yapıların bütünlüğünü ve lamel ile doğru şekilde bağlandıklarını doğrulamak için her bir görüntüleme ünitesi mikroskop altında incelenmelidir. Deney sırasında hücre kümelenmesi ve tıkanma riskini azaltmak için büyüme ortamına Pluronic F-127 eklenir ve deneyden önce kalıntıları gidermek amacıyla ortam filtre sterilizasyonundan geçirilir. Görüntüleme ünitelerinin medya ile yeterince doldurulduğundan (priming) emin olmak için, hücreler yüklenmeden önce en az 2 h boyunca mikroakışkan görüntüleme ünitelerinden medya akıtılır. Belirli bir görüntüleme ünitesindeki U-tuzağı bölgesinin üst kısmında, hücre yüklemesini ve medya akışını engelleyecek miktarda kalıntı birikirse, bu ünitenin medya pompasından ayrılarak (Şekil 2J) deneyden çıkarılması önerilir. Medya görüntüleme ünitelerine tamamen dağıtıldıktan sonra, tek bir görüntüleme ünitesi içindeki ve tüm mikroakışkan cihaz genelindeki odak düzlemi farklılıklarını kontrol etmek için ROI'lerin bir test görüntüsü alınır. Mikroakışkan cihazda dahili bir eğim varsa, sahne eğiminin mikro ayarlamaları bu sorunu giderebilir. Alternatif olarak, tek bir görüntüleme ünitesi genelindeki odak düzlemi farklılıklarını kompanse etmek için her konum ve zaman noktası için 3–8 µm z-aralığı ile üç z-kesit görüntüsü alınabilir.
Tetradları tekil gametlere ayırmak için, gametogenez sonrası yaşa göre sıralanmış kültürler 3 saat boyunca Zymolyase ile inkübe edilir (Şekil 1D). Bu enzim, maya hücre duvarını spesifik olarak sindirerek gametleri koruyan tetrad askusunu zayıflatır ve gamet olmayan hücreleri liz eder (Şekil 1D). Ayrılan gametler, sindirime karşı daha dirençli olan ve böylece lizleri önleyen kendi hücre duvarları tarafından korunur. Tetrad ayrımından sonra, yeterli tetrad disosiyasyonunu ve gamet bütünlüğünün korunduğunu doğrulamak için ayrılan gametler incelenir. Hücrelerin %30'undan fazlası bozulmamış tetradlar şeklinde kalırsa, bunları daha fazla parçalamak için ek sonikasyon döngüleri yardımcı olabilir (Şekil 3B). Tetradların %30'undan fazlası bozulmamış halde kalırsa, mikroakışkan sistemin yüklenmesi ve çalıştırılması sırasında sorunlara yol açabilecek hücre kümeleri oluşturabilecekleri için deneyi durdurup taze bir Zymolyase partisiyle baştan başlamanız önerilir. Ayrım sonrası gamet kültürleri, zengin besiyerinde 30 °C'de 3 saat boyunca büyütülür; bu süre gametlerin mikroakışkan cihazlarda kolayca yakalanabilmeleri için boyutlarının artmasına izin verecek kadar uzun, ancak hücrelerin çoğunun ilk bölünmesini tamamlamayacağı kadar kısadır (Şekil 1D). Büyütme işleminden sonra, boyut artışını ve ilk tomurcuğun oluşumunu doğrulamak için hücreler ışık mikroskobu altında incelenir. Eğer belirli bir genotipte gametlerin boyutlarının artması ve bölünmeye başlaması önemli ölçüde daha uzun sürüyorsa, gametlerin verimli bir şekilde yakalanmasını sağlamak için zamanlama buna göre ayarlanmalıdır.
Ardından, mikroskobun canlı görünümü üzerinden ünite izlenirken şırıngaya dikkatlice basınç uygulanarak, aşırı büyümüş hücreler mikroakışkan görüntüleme ünitelerine manuel olarak yüklenir. PDMS yapıların kapak camından ayrılmasına ve böylece görüntüleme ünitesinin zarar görmesine neden olabileceği için aşırı basınç uygulamamaya dikkat edilmelidir. PDMS yapılar hafifçe bükülmeye başlayana ve hücreler görüntüleme alanına akmaya başlayana kadar basınç sürekli olarak uygulanır. Hücreler görüntüleme cihazına akmaya başladığında, ünite içinden geçerken ve bireysel tuzakları doldururken basınç azaltılır. İlk turda 200'den az hücre yakalandıysa, yükleme döngüsünü tekrarlamak için basınç yeniden uygulanır. Optimal olarak yüklenmiş ünitelerde, hücreler tuzakların en az %66'sını doldurarak, yeterli yükleme ile deney sırasında tıkanma riskini artıran aşırı yükleme arasında bir denge kurar. Aşırı yüklü görüntüleme üniteleri, U-tuzak alanının üzerinde ve içinde aşırı miktarda hücre ve debris içerir; bu durum görüntüleme ünitesi boyunca medya akışını engelleyebilir. Farklı görüntüleme üniteleri için ortak pompalar kullanılıyorsa ve bir görüntüleme ünitesi yanlışlıkla aşırı yüklenirse, pompanın tıkanma nedeniyle durmasını önlemek ve böylece ek deneysel grupların aksamasını engellemek için etkilenen ünite medya pompasından ayrılır (Şekil 2J). Gametlerin erken bölünerek üretilen yavru hücrelerle seyrelmesini ve replikatif ömrün hatalı değerlendirilmesini önlemek için tüm koşulların yüklemesi 1 saat içinde tamamlanır. Tüm koşullar için yükleme tamamlandığında ve medya akışı yeniden başladığında, mikroakışkan cihaz, yeniden takılan yükleme portlarından herhangi bir medya sızıntısı olup olmadığına dair dikkatlice incelenir. Sızıntı gözlemlenirse, sorunu çözmek için katı paslanmaz çelik pini dikkatlice çıkarın ve yükleme portlarına yeniden takın. Alternatif olarak, sızıntı durdurulamıyorsa, deney sırasında mikroskoba sıvı sızmasını önlemek için görüntüleme ünitesi medya pompasından ayrılır (Şekil 2J). İlk birkaç tuzak çevresindeki hücre sayıları ve debris ile belirtildiği üzere görüntüleme ünitesi aşırı yüklüyse, azalmış medya akışından kaynaklanan artan geri basınç nedeniyle pompanın deney sırasında durmasını önlemek için bu ünite de medya pompasından ayrılır (Şekil 2J).
Burada kullanılan ve SK1 ile kullanıma uygun şekilde tasarlanan özelleştirilmiş açık U-tuzaklı mikroakışkan cihazlar, diğer tuzak tasarımlarına kıyasla hücrelerin alandaki kısıtlanmasını azaltarak geniş bir replikatif yaşam süresi dinamik aralığını yakalayabilir ve böylece uzun ömürlülük üzerinde daha önce rapor edilen etkilerin olasılığını minimize eder30. Ancak, bu açık tasarımın dezavantajı, hücrelerin özellikle replikatif yaşamın son birkaç bölünmesi sırasında hücre boyutundaki belirgin artış (SK1 için spesifik olarak gözlemlenmiş ve kaçınılmazdır) veya zamanla akışkan sistemindeki küçük basınç sapmaları nedeniyle, senesans gözlemlenmeden önce erken olarak dışarı atılabilmesidir. Bu nedenle, cihaz hazırlığı ve hücre yüklemesi sırasında mikroakışkan sisteme hava girmemesi için özel dikkat gösterilmelidir. Gametlerin replikatif yaşam süreleri değerlendirilirken yanlılığı önlemek için, zaman geçimli (time-lapse) çekimin başlangıcında yüklenen her gamet, toplam 200 gamet analiz edilene kadar sayılır. Senesans öncesinde dışarı atılan hücreler, analiz amaçlı olarak kesin bir şekilde sansürlenmiş denekler olarak sınıflandırılır. Sansürleme oranlarının genotipler arasında karşılaştırılabilir olduğunu (Şekil 5E, sansürlenmiş denekler = %63,4 ± 6,2, ortalama ± SD) ve atılma sıklığı ile gözlemlenen yaşam süresi fenotipleri arasında sistematik bir ilişki bulunmadığını tespit ettik. Şimdiye kadar gözlemlenmemiş olsa da, analiz edilen hücreler arasında atılma oranlarının %80'i aşması durumunda deneyin tekrarlanmasını öneririz. Dolayısıyla, hücre atılması, özellikle ilk birkaç bölünme içinde atılsalar bile yüklenen her gameti saydığımız için analizle ilgili doğal bir sansürleme kaynağı oluştursa da, genotipler arasındaki farklı atılma oranlarının rapor edilen yaşam süresi farklarına yol açtığına dair bir kanıt görmüyoruz. Bu yaklaşım takip edildiğinde, replikatif yaşam süresi tutarlı ve sağlam bir şekilde ölçülebilir. Gelecekteki deneylerde atılma olaylarını azaltmak için, yeni tuzak tasarımlarına sahip cihazlar şu anda geliştirilmekte ve test edilmektedir.
Yaşam süresinin gametojenik sıfırlanmasını nicelendirmek için sağlanan verim, önceden mevcut olan yöntemden önemli ölçüde daha yüksek olsa da, her gametteki hücre bölünmelerinin eğitimli bir bilim insanı tarafından manuel olarak sayılması gerekmektedir; bu durum, veri analizini sunulan yöntemin mevcut bir sınırlaması haline getirmektedir. Maya replikatif yaşam süresi analizini otomatikleştirmeye yönelik makine öğrenimi yaklaşımlarındaki son gelişmeler, söz konusu sınırlamayı aşmak için gelecek vaat eden bir strateji sunmaktadır31. Özellikle, büyük ölçekli maya görüntüleme verileri üzerinde öz-denetimli bir şekilde ön eğitilmiş bir Maskelenmiş Otokodlayıcı kullanan ve ardından bunu hücre bölünme olaylarını doğrudan tespit etmek için bir transformer modelini geliştirmek amacıyla kullanan, yakın zamanda yayınlanmış BudFinder adlı yaklaşım oldukça gelecek vaat etmektedir32. Bu yaklaşım, önceki yöntemlerle karşılaştırıldığında model geliştirmeleri için gereken manuel olarak açıklanmış bölünme olaylarının sayısını önemli ölçüde azaltmaktadır. Heyecan verici olan ise, burada açıklanan protokol kullanılarak halihazırda üretilmiş ve açıklanmış olan geniş miktardaki verinin, gelecekte gametlerin replikatif yaşam süresi analizini otomatikleştirebilecek ve mevcut sınırlamayı aşabilecek benzer bir yaklaşım için oldukça uygun olmasıdır. Ayrıca, gelecek uygulamalar için bu protokol, S. cerevisiae'de gametogenez sırasında hücresel gençleşmeyi yöneten moleküler mekanizmaları ve faktörleri belirlemek amacıyla yerleşik biyobelirteçler ve gelişmiş ekspresyon sistemleri ile kolayca birleştirilebilir ve böylece bu korunmuş sürece dair yeni içgörüler sağlanabilir.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Eleştirel tartışmaları ve taslak metne yönelik yorumları için Brar ve Ünal laboratuvarının mevcut ve eski üyelerine teşekkür ederiz. Bu çalışma, S.S.'ye verilen İsviçre Ulusal Bilim Vakfı mobilite bursu P500PB_214421 tarafından desteklenmiştir; G.A.B., Ulusal Sağlık Enstitüleri (R01AG071869) tarafından desteklenmektedir; T.L.S., Norn Group, Hevolution Foundation ve Rosenkranz Foundation'dan alınan Longevity Impetus Grant ile desteklenmiştir. E.Ü., Ulusal Sağlık Enstitüleri (R01AG071801) ve Astera Institute tarafından desteklenmektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1000 mL Vakum filtreleme/Saklama şişesi sistemi | Corning | 431098 | 0.22 µm gözenek 54,5 cm2 PES Membran, steril. Oda sıcaklığında saklayınız. |
| 20 mL'lik şırınga | Becton, Dickinson and Company (BD) | 302830 | 20 mL Luer-Lok Şırınga. Oda sıcaklığında saklayınız. |
| 5 mL şırınga | Becton, Dickinson and Company (BD) | 14-829-45 | 5 mL Luer-Lok Şırınga, oda sıcaklığında saklayın. |
| Ampisilin | Alpha Teknova | A9510 | -da saklayın20 °C rekonstitüsyon sonrası su içerisinde. |
| Anti-biotin manyetik boncuklar | Miltenyi Biotechnology | 130-097-046 | Saklama koşulları: 4 °C. |
| β-merkaptoetanol | MilliPORE SIGMA | M625-250mL | Saklama koşulu: 4 °C. |
| Sığır Serumu Albümini | MilliPORE SIGMA | A4503-100G | Şurada saklayın 4 °C. |
| Clay Adams Intramedic Luer-Stub Adaptör | Becton, Dickinson and Company (BD) | 427565 | 23 Gauge, oda sıcaklığında saklayın. |
| Küvetler | Bio Rad | 2239955 | Tek kullanımlık semimikrohacimli polistiren küvetler. Oda sıcaklığında saklayın. |
| Etanol | Belirtilmedi | çeşitli | |
| EZ-Link Sulfo-NHS-LC-biotin | ThermoFisher Scientific | 21335 | Replikatif yaşlanma için kurucu hücrelerin biotin ile işaretlenmesi |
| Fiji yazılımı | https://fiji.sc/ | YOK | versiyon: Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) |
| Floresan işaretli Streptavidin | ThermoFisher Scientific | S11225 | Alexa Fluor 546 konjüğatı, -'de saklayın20 °C alikuotlar halinde. |
| Floresan işaretli buğday germ aglutinin | ThermoFisher Scientific | W11263 | Alexa Fluor 350 konjugatı, -'de saklayın20 °C alikotlar halinde. |
| Formaldehit | ThermoFisher Scientific | F79-1 | %37, şurada saklayın 4 °C. |
| Gametogenez indükleyen ortamlar | Çevrilecek metin sağlanmamıştır. Lütfen çevirmemi istediğiniz İngilizce kaynak metni giriniz. | Standart reçete takip edilerek kurum bünyesinde hazırlanmıştır | %2 potasyum asetat, amino asit takviyeleri ve ampisilin (40 mg/L adenin, 40 mg/L urasil, 10 mg/L histidin, 10 mg/L lözin ve 10 mg/L triptofan, 100 μg/mL ampisilin) |
| Glisin | ThermoFisher Scientific | BP381-1 | %100, 200 proof. Oda sıcaklığında saklayın. |
| İçi boş paslanmaz çelik pim | iBiyoçipler | HSP-100 | P/N: 0,28”, OD, 0,016”, ID, 0,500” Uzun süre, oda sıcaklığında saklayın. |
| Ters floresan mikroskop | NA | Yalnızca kaynak metin sağlandığında çeviri işlemi gerçekleştirilebilir. Lütfen çevrilmesini istediğiniz metni iletiniz. | |
| Legato 200 şırınga pompaları | kdBilimsel | 788200 | Oda sıcaklığında saklayınız. |
| Legato 200/210 plastik veya cam 6/10 çoklu raf | kdBilimsel | 788300 | Oda sıcaklığında saklayınız. |
| Işık mikroskobu | NA | YOK | |
| Düşük yapışmalı tüpler | USA Scientific | 1415-2600 | Oda sıcaklığında saklayın. |
| LS Kolonları | Miltenyi Biotechnology | 130-042-401 | Oda sıcaklığında saklayın. |
| Mikroakışkan cihazlar | iBiyoçipler | ADU-10, (#18++'nin AD-Çipleri) | Oda sıcaklığında saklayın. |
| DEHP içermeyen tıbbi sınıf hortum | iBiyochipler | MTB-100 | ID = 0,202”, OD = 0,060”, duvar = 0,20”oda sıcaklığında saklayın. |
| PBS | YOK | Standart reçete takip edilerek kurum içinde hazırlanmıştır | Şunların 1L'sini hazırlayın: PBS pH 7; PBS pH 8, PBS pH 8 + 100 mM glisin, PBS pH 7,4 + %0,5 BSA |
| Pluronic F-127 | MilliPORE SIGMA | P2443 | Oda sıcaklığında saklayın. |
| Ayırma öncesi filtre | Miltenyi Biotechnology | 130-041-407 | Gözenek boyutu 30 µm |
| QuadroMACS ayırıcı ve başlangıç kitleri | Miltenyi Biotechnology | 130-091-051 | Oda sıcaklığında saklayınız. |
| Masif paslanmaz çelik pim | iBiyoçipler | SSP-200 | OD, 0,027”, Kimlik, 0,500”oda sıcaklığında saklayın. |
| Sonikatör | Branson | 100-132-1623R & 101-135-066R | |
| Spektrofotometre | NA | YOK | |
| Tüp rotatörü | Girdi sağlanmadı. Lütfen çevrilmesini istediğiniz metni giriniz. | NA | |
| Y+A8+2:29+2:31+A8+2+2:33 | Brar-Ünal maya suşu veri tabanı | pÜB42275 | trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| Maya suşu 2 | Brar-Ünasal maya suşu veritabanı | pÜB48561 | atg11Δ::KanMX, trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| YPD (%2 glikoz içeren YEP, Trp ve Ura ile takviye edilmiştir) | Metin bulunmamaktadır. Lütfen çevrilmesini istediğiniz kaynağı sağlayınız. | Standart reçeteye uygun olarak kurum bünyesinde hazırlanmıştır | YPD (%1 maya özütü, %2 pepton, %2 glikoz, 22,4 mg/L urasil ve 80 mg/L triptofan). |
| Zymolyase 100T | MP Biomedicals | 8320932 | - derecede saklayın20 °C su ile yeniden çözündükten sonra alikotlar halinde. |
Kaynaklar
- Denoth Lippuner A, Julou T, Barral Y. Budding yeast as a model organism to study the effects of age. FEMS Microbiol Rev. 2014;38(2):300-25.
- Higuchi-Sanabria R et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Res. 2014;14(8):1133-46.
- Hughes AL, Gottschling DE. An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature. 2012;492(7428):261-5.
- Nyström T, Liu B. Protein quality control in time and space—links to cellular aging. FEMS Yeast Res. 2014;14(1):40-8.
- Neiman AM. Sporulation in the budding yeast Saccharomyces cerevisiae. Genetics. 2011;189(3):737-65.
- Sing TL, Brar GA, Ünal E. Gametogenesis: exploring an endogenous rejuvenation program to understand cellular aging and quality control. Annu Rev Genet. 2022;56(1):89-112.
- Ünal E, Kinde B, Amon A. Gametogenesis eliminates age-induced cellular damage and resets life span in yeast. Science. 2011;332(6037):1554-7.
- Ünal E, Amon A. Gamete formation resets the aging clock in yeast. Cold Spring Harb Symp Quant Biol. 2011;76:73-80.
- Spiri S et al. A role for selective ER autophagy in gametogenic rejuvenation revealed by high-throughput lifespan profiling. Nat Commun. 2026. doi:10.1038/s41467-026-77993-0.
- Koch BA, Staley E, Jin H, Yu HG. The ESCRT-III complex is required for nuclear pore complex sequestration and regulates gamete replicative lifespan in budding yeast meiosis. Nucleus. 2020;11(1):219-36.
- Lee MB et al. Defining the impact of mutation accumulation on replicative lifespan in yeast using cancer-associated mutator phenotypes. Proc Natl Acad Sci U S A. 2019;116(8):3062-71.
- Mortimer RK, Johnston JR. Life span of individual yeast cells. Nature. 1959;183(4677):1751-2.
- Chen KL, Crane MM, Kaeberlein M. Microfluidic technologies for yeast replicative lifespan studies. Mech Ageing Dev. 2017;161(Pt B):262-9.
- Jin M et al. Divergent aging of isogenic yeast cells revealed through single-cell phenotypic dynamics. Cell Syst. 2019;8(3):242-53.e3.
- Jo MC et al. High-throughput analysis of yeast replicative aging using a microfluidic system. Proc Natl Acad Sci U S A. 2015;112(30):9364-9.
- Li Y et al. A programmable fate decision landscape underlies single-cell aging in yeast. Science. 2020;369(6501):325-9.
- Li Y et al. Multigenerational silencing dynamics control cell aging. Proc Natl Acad Sci U S A. 2017;114(42):11253-8.
- Liu P, Young TZ, Acar M. Yeast Replicator: a high-throughput multiplexed microfluidics platform for automated measurements of single-cell aging. Cell Rep. 2015;13(3):634-44.
- Thayer NH et al. The Yeast Lifespan Machine: a microfluidic platform for automated replicative lifespan measurements. bioRxiv. 2022;2022.02.14.480146.
- Schindelin J et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Spiri S. Fiji macros for microscopy analysis of gametogenic rejuvenation [Internet]. Zenodo; 2026. Available from: [https://doi.org/10.5281/zenodo.22004193](https://doi.org/10.5281/zenodo.22004193)
- Cabib E, Bowers B. Chitin and yeast budding: localization of chitin in yeast bud scars. J Biol Chem. 1971;246(1):152-9.
- Mizushima N, Levine B, Cuervo AM, Klionsky DJ. Autophagy fights disease through cellular self-digestion. Nature. 2008;451(7182):1069-75.
- Rubinsztein DC, Mariño G, Kroemer G. Autophagy and aging. Cell. 2011;146(5):682-95.
- Kobayashi O, Suda H, Ohtani T, Sone H. Molecular cloning and analysis of the dominant flocculation gene FLO8 from Saccharomyces cerevisiae. Mol Gen Genet. 1996;251(6):707-15.
- Fang O et al. Amn1 governs post-mitotic cell separation in Saccharomyces cerevisiae. PLoS Genet. 2018;14(10):e1007691.
- Azizoglu A, Brent R, Rudolf F. A precisely adjustable, variation-suppressed eukaryotic transcriptional controller to enable genetic discovery. eLife. 2021;10:e69549.
- Choi KY, Satterberg B, Lyons DM, Elion EA. Ste5 tethers multiple protein kinases in the MAP kinase cascade required for mating in S. cerevisiae. Cell. 1994;78(3):499-512.
- Bellí G et al. An activator/repressor dual system allows tight tetracycline-regulated gene expression in budding yeast. Nucleic Acids Res. 1998;26(4):942-7.
- Gao Z et al. Comparative analysis of yeast replicative lifespan in different trapping structures using an integrated microfluidic system. Adv Mater Technol. 2020;5(12):2000655.
- Aspert T, Hentsch D, Charvin G. DetecDiv, a generalist deep-learning platform for automated cell division tracking and survival analysis. eLife. 2022;11:e79519.
- Nguyen P et al. BudFinder: a masked auto-encoder vision transformer framework for yeast budding detection and lifespan quantification. PLoS Comput Biol. 2026;22(5):e1013700.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında