Bu protokol, kısa ömürlü yıllık killifish balığı Nothobranchius furzeri'den farklı yaş grupları boyunca canlı ventriküler kardiyomiyositlerin güvenilir bir şekilde izole edilmesini sağlayarak yaşa bağlı kardiyak yeniden şekillenmenin tüm hücre yama kenetleme (whole-cell patch-clamp) çalışmaları için uygun hücreler elde edilmesine olanak tanır.
Yöntem makalesi
Yıllık Killifish Nothobranchius furzeri'den Tüm Hücre Yama Kenetleme Kayıtları İçin Ventriküler Kardiyomiyositlerin İzolasyonu
Bu makalede
Özet
Özet
İzole edilmiş çalışan kardiyomiyositler, kardiyak elektrofizyolojiyi incelemek için standart yaklaşım olmaya devam etmektedir. Tek hücreli preparatlar, sağlam kalp dokusunun yapısal karmaşıklığı olmadan iyonik akımların ve aksiyon potansiyellerinin doğrudan incelenmesine ve hassas bir şekilde ölçülmesine olanak tanır. Nothobranchius furzeri (Afrika turkuaz killifish balığı), olağanüstü kısa yaşam süresi ve insanlar dahil memelilerle yaşlanma mekanizmaları açısından benzerlikleri nedeniyle gerontolojik araştırmalar için öne çıkan bir model organizma haline gelmiştir. Bu tür; küçük boyut, düşük maliyetli bakım ve hızlı yaşam döngüsü gibi pratik avantajları translasyonel uygunlukla birleştirir. N. furzeri, lokomotor aktivitede, bilişsel yetilerde ve organ fonksiyonlarında yaşa bağlı azalmalar, yaşlanmanın moleküler belirteçlerinin birikimi ve yaşam süresi ile sağlık süresini modüle eden farmakolojik tedavilere karşı duyarlılık sergiler. Ancak, yaşlanan kalbin fonksiyonel gerilemesini incelemek, zorlayıcı tek hücre teknikleri için uygun, yüksek kaliteli ve canlı hücreler elde etmek için güvenilir bir yöntem gerektirmektedir. Bu çalışma, hem genç hem de yaşlı N. furzeri'den sağlıklı çalışan miyositlerin tutarlı bir şekilde geri kazanılmasını sağlamak amacıyla, Danio rerio kardiyomiyositlerinin izolasyonu için daha önce tanımlanmış bir protokolü optimize etmiştir. Bu protokol, özellikle tüm hücre yama kenetleme (whole-cell patch clamp) tekniği için optimize edilmiş, N. furzeri'den ventriküler kardiyomiyositlerin izolasyonunu açıklamaktadır. Makale; kalbin nasıl verimli bir şekilde çıkarılacağını, retrograd perfüzyon yoluyla miyokardın enzimatik disosyasyonunun nasıl gerçekleştirileceğini ve izole edilen kardiyomiyositlerin nasıl saklanacağını göstermektedir. İyon kanalı yapısını bozmadan ekstraselüler matris ve hücreler arası bağlantıları sindirmek için gerekli enzimlerin seçimini tartışıyoruz. Taze izole edilmiş kardiyomiyositler, farklı yaş grupları genelinde aksiyon potansiyeli kayıtları ve temel içe ve dışa doğru iyonik akımların ölçümleri dahil olmak üzere yüksek çözünürlüklü elektrofizyolojik analizler için uygundur. Makale ayrıca, balıklarda kardiyomiyosit izolasyonunun standart memeli izolasyon prosedürlerinden farklı olan özelliklerini de ele almaktadır.
Giriş
Kalbin yaşa bağlı fonksiyonel gerilemesi; kardiyak rezervi toplu olarak bozan ve aritmojeniteye olan yatkınlığı artıran yapısal, moleküler ve elektrofizyolojik yeniden şekillenme tarafından tetiklenir1. Kardiyak yaşlanmayı hücresel düzeyde yönlendiren mekanizmaları anlamak için, tüm hücre yama kenetleme (whole-cell patch clamp) tekniği vazgeçilmez bir deneysel araç görevi görür. Bu teknik, bireysel transmembran iyon akımlarının ve kinetiklerinin yanı sıra aksiyon potansiyellerinin (AP) doğrudan, kantitatif değerlendirilmesine olanak tanıyarak yaşla ilişkili miyokardiyal disfonksiyonun temelinde yatan spesifik iyon akımı değişimlerine dair içgörü sağlar. Bu mekanizmaların araştırılması, kardiyak senesans için güvenilir omurgalı modeller gerektirir. Son yıllarda, Afrika turkuaz killifish balığı (Nothobranchius furzeri), doğal olarak kısa yaşam süresi nedeniyle kardiyak yaşlanmayı incelemek için gelecek vaat eden bir model olarak ortaya çıkmıştır2,3. Ön moleküler ve histolojik çalışmalar, Nothobranchius ile memeliler arasındaki yaşlanma süreçlerinde benzerlikler olduğunu ortaya koymuştur. Diğer gruplar tarafından yürütülen araştırmalar, N. furzeri'nin telomer kısalması, azalmış mitokondriyal DNA içeriği ve antioksidan enzim ekspresyonu, yapısal ve elektrofizyolojik miyokardiyal değişimler ile lipofuscin birikimi ve artmış β-galaktosidaz aktivitesi gibi yaşlanma belirteçleri dahil olmak üzere memeli kardiyak yaşlanmasının temel özelliklerine sahip olduğunu saptamıştır4,5,6.
Buna rağmen, N. furzeri'nin kardiyovasküler araştırmalardaki artan önemine karşın, tek hücre seviyesindeki ayrıntılı elektrofizyolojik karakterizasyon, devam eden teknik zorluklar nedeniyle sınırlıdır. Yüksek kaliteli patch clamp kayıtları elde etmek, yapısal bütünlüğünü, sağlam iyon kanallarını ve hiperkontraksiyona uğramamış bir morfolojiyi koruyan işlevsel kardiyomiyositlerin izole edilmesine kesin olarak bağlıdır. Memeli kardiyomiyositleri için enzimatik disosiyasyon protokolleri iyi tanımlanmış olsa da, memeli olmayan doku mimarisi, nispeten düşük hücresel verim ve küçük kalp boyutu nedeniyle balık kalplerinden canlı kardiyomiyositlerin izole edilmesi zor olmaya devam etmektedir7,8. Bu prosedürün temel sınırlamaları, kalbin doğru şekilde kanülasyonunun teknik zorluğu ve preparasyonun enzimatik işlemedeki küçük varyasyonlara karşı hassasiyetidir. Perfüzyon akışındaki herhangi bir aksama, hem hücre kalitesinde hem de verimde belirgin bir kötüleşmeye yol açar. Ayrıca, enzim konsantrasyonundaki veya sindirim süresindeki hafif sapmalar bile hücre canlılığını ve sonraki elektrofizyolojik kayıtların kalitesini önemli ölçüde etkileyebilir. Hayvanın yaşı da dikkate alınmalıdır. Yaşlı balıklardan alınan kalpler, artan kollajen lif ve fibroblast içeriği nedeniyle biraz daha yüksek enzim konsantrasyonları ve uzatılmış sindirim süreleri gerektirse de2, izolasyonun genel ilkeleri sabit kalmakta; optimal sonuçlar elde etmek için enzim konsantrasyonları ve maruziyet süreleri %10 dahilinde değişmektedir.
Sonuç olarak, balık modellerinde kardiyak yaşlanma üzerine yapılan elektrofizyolojik araştırmaları ilerletmek için ayrıntılı ve yüksek düzeyde tekrarlanabilir bir enzimatik izolasyon protokolü ön koşuldur. Lineer boyutlardaki belirli morfolojik benzerliklere rağmen, N. furzeri'den kardiyomiyosit izolasyonu, Danio rerio protokolüne kıyasla birkaç önemli modifikasyon gerektirmektedir. Zebrafish kalbinden hücre izole etmek için kullanılan klasik prosedür, sağlam kalbin nispeten uzun bir süre boyunca enzimatik bir çözeltiye daldırılmasını içerir7,8,9. Bu yaklaşım canlı hücreler sağlasa da, Nothobranchius kalbi için aşırı agresif olabilir ve aşırı enzimatik sindirime yol açabilir. Bu yöntem, çözeltilerin doğrudan kalp odacıklarına istikrarlı bir şekilde akışını sağlayarak kalpten kanın daha verimli şekilde yıkanmasını sağlar ve daha hassas ve nazik bir enzimatik tedaviye imkan tanır. Bu makale, yüksek kaliteli elektrofizyolojik kayıtlar sağlamak için gereken temel düzenlemelere odaklanarak, N. furzeri'den canlı ve patch clamp uygulamasına uygun kardiyomiyositlerin izole edilmesi için geliştirilmiş bir metodolojiyi özetlemektedir.
Protokol
Çalışma, GRZ suşuna ait N. furzeri üzerinde gerçekleştirilmiştir. İzole ventriküler kardiyomiyositlerde aksiyon potansiyellerini ve iyonik akımları kaydetmek için her iki cinsiyetten, 1,5–2 aylık yaşta genç cinsel olgunluğa erişmiş balıklar (N = 19, vücut kütlesi = 0,71 g ± 0,36 g) kullanılmıştır. Balıklar, Rusya Bilimler Akademisi A.N. Severtsov Ekoloji ve Evrim Enstitüsü tarafından yetiştirilmiş ve sağlanmıştır. Hayvanlar, 60–100 L su tanklarında, 12 saatlik ışık/karanlık döngüsü altında 24 °C ± 1 °C sıcaklıktaki akvaryumlarda tutulmuştur. Hayvan yoğunluğu, daha önce yayınlanmış öneriler doğrultusunda tank başına 10–20 hayvan şeklinde ayarlanmıştır10.
N. furzeri türünden kardiyomiyosit izolasyonunun prensibi, daha önce tanımlanan ve küçük balıklara uyarlanan klasik balık izolasyon yöntemine dayanmaktadır11,12. Tüm deneyler, Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu (ABD Ulusal Sağlık Enstitüleri) ve 2010/63/EU sayılı AB Direktifi ile uyumlu olarak gerçekleştirilmiştir. Deneysel protokol, Lomonosov Moskova Devlet Üniversitesi Biyoetik Komitesi tarafından onaylanmıştır (Başvuru №202-a, 27.02.2025 tarihinde yapılan №169-d sayılı Biyoetik Komisyon toplantısında onaylanmıştır). Kullanılan reaktifler ve ekipmanlar Materyaller Tablosu'nda listelenmiştir.
1. Çözeltilerin hazırlanması
- (mmol L-1 cinsinden): 100 NaCl, 10 KCl, 1.2 KH2PO4, 4 MgSO4, 50 taurin, 20 glukoz ve 10 HEPES içeren Ca2+-free izolasyon çözeltisini hazırlayın. Oda sıcaklığında (24 °C) NaOH ile pH'ı 6.9'a ayarlayın. İzolasyonu oda sıcaklığındaki bir salin çözeltisi kullanarak gerçekleştirin. İzolasyon için çözeltinin oksijenasyonu gerekmemektedir.
NOT: İzolasyon çözeltisi, cam bir şişede 4 °C'de 3–4 gün boyunca saklanabilir. - Ca2+-free çözeltisi bazlı; 0.8 mg mL-1 kollajenaz tip 1A, 0.5 mg mL-1 tripsin ve 0.8 mg mL-1 sığır serum albümini (BSA) içeren 3 mL enzimatik çözelti hazırlayın. Enzimatik aktiviteyi korumak için enzimleri izolasyon prosedüründen hemen önce ekleyin.
NOT: Enzim aktivitesi partiler arasında farklılık gösterdiğinden, enzim konsantrasyonlarının ayarlanması gerekebilir. - 50–100 mL musluk suyunu buzdolabında +4 °C'ye kadar ön soğutun. Soğutulmuş su, balık analjezisi için gereklidir.
2. İzolasyon sisteminin hazırlanması
- İki adet 10 mL şırınga gövdesini yaklaşık 35 cm yüksekliğinde bir standa sabitleyin.
- Silikon tüpleri (d = 8 mm) gövdelere bağlayın ve boş uçlarını 3 yollu bir infüzyon musluğu kullanarak birleştirin.
- Tüplerden birini Ca2+-free izolasyon çözeltisiyle, diğerini ise enzimatik çözeltiyle doldurun. Akışı engelledikleri ve izolasyon kalitesini düşürdükleri için tüplerde hava kabarcığı kalmadığından emin olun. Akışı kapatın.
- İğne ucunda hava kabarcıklarını önlemek için 1 mL'lik bir insülin şırıngası kullanarak 32 G'lik bir dağıtım iğnesini Ca2+-free çözelti ile doldurun.
- Doldurulan iğneyi 3 yollu musluğun boş ucuna takın.
- Montaj macunu kullanarak iğneyi, alt düzleme paralel olacak şekilde 100 mm'lik bir Petri kabına sabitleyin.
- Perfüzyon sistemine bağlı Petri kabını stereo mikroskop altına yerleştirin; sahne klipsleri ve montaj macunu ile sabitleyin (Şekil 1A).
3. Diseksiyon ve kalp izolasyonu
- Cerrahi aletleri hazırlayın: iki çift mikrocerrahi oftalmik makas ve pens ile dört adet tıbbi iğne içeren bir diseksiyon tepsisi.
- Önceden soğutulmuş musluk suyunu buzdolabından çıkarın ve balığı hızla içine daldırın. Solungaç kapaklarının hareketi durana kadar bekleyin.
DİKKAT: İşleme devam etmeden önce, yeterli analjeziyi sağlamak için operkulum hareketinin durduğunu onaylayın. - Balığı sudan çıkarın, sırtı yukarı bakacak şekilde diseksiyon tepsisine yerleştirin ve spinal kordu oftalmik makasla kesin.
- Balığı sırtüstü çevirin ve iğnelerle tepsiye sabitleyin. Daha fazla alan sağlamak için operkulumları tamamen açık pozisyonda geriye doğru iğneleyerek başı, kuyruğu ve operkulumları sabitleyin.
- Peritonun transvers bir insizyonunu yapın. İnsizyonu ana vücut aksına kadar boyuna olarak genişletin, pens yardımıyla deriyi viseral organlardan nazikçe kaldırın. Alt çene kenarına kadar devam edin ve deri kenarlarını sola ve sağa sabitleyin (Şekil 1B).
- Ventrikülü ve bulbus arteriosus'u konumlandırın. Bulbus arteriosus'u ventrikülden mümkün olduğunca uzak bir noktadan pensle kavrayın ve nazikçe vücuttan dışarı kaldırın. Pensleri bırakmadan, ventrikülü bütün tutmak için ventrikülün kaudalinden kesin.
- İzole edilen kalbi stereo mikroskop altında Petri kabına aktarın. Kanül ucunu, önce bulbus arteriosus'a yerleştirip ardından çevredeki dokulara zarar vermeden aort kapağından dikkatlice geçirerek ventriküle sabitleyin. Kalplerin > 90%'inde başarılı kanülasyon gerçekleştirilebilir.
- Bulbus arteriosus'u bir ligatürle kanüle sabitleyin (Şekil 1C).
NOT: Standart sütür iplikleri küçük kalp için çok kalın olduğundan, bir insan saçının (d = 50–70 µm) ligatür olarak kullanılması uygundur.
4. Kardiyomiyosit izolasyonu
- Ca2+-içermeyen çözeltiyi içeren hazneden akışı sağlamak için 3 yollu musluğu açın. Doğru yapıldığında, ventrikül çözelti ile dolar ve genişler. Akış hızı 43 µL min-1 olarak ayarlanmıştır.
- Ventrikül duvarlarına zarar vermeden, atrium ve sinus venosus kalıntılarını mikrocerrahi makasla kesin.
- Düzenli akışı izleyerek kalbi 10–12 dk boyunca perfüze edin. Ventriküler trabekülaları genişletmek ve kalan kanı dışarı atmak için silikon tüpü nazikçe sıkıştırarak geçici bir çözelti darbesi gönderin. Yıkamanın başarılı olduğu, stereo mikroskop altında kalp durması ve eritrosit akışının kesilmesi ile anlaşılır.
- Enzimatik çözeltiyi ventriküle yönlendirmek için musluğu çevirin. 4–6 dk boyunca perfüze edin. Enzimatik işlemi, ventrikül duvar bütünlüğünün bozulması ve küçük miyokard fragmanlarının dökülmesiyle görsel olarak doğrulayın.
DİKKAT: Perfüzatın örneklenmesinden veya inceleme için ters mikroskoba aktarılmasından kaçının; çünkü bu durum hücresel materyalin kaybına veya mekanik hasara yol açabilir ve perfüzyon kalitesinin sürekli izlenmesini kesebilir. Binoküler mikroskop altında net bir şekilde görülebilen, yukarıda açıklanan başarılı izolasyon belirtilerine güvenmek daha uygundur. - 35 mm'lik bir doku kültürü kabına küçük bir miktar (300–400 µL) Ca2+-içermeyen çözelti ekleyin. Ventrikülü bulbus arteriosus'tan kesin ve kaba aktarın.
- Ventrikülü ince makasla küçük parçalara ayırın, ardından ucu kesilmiş bir 100 µL mikropipet ile tekrar tekrar pipetleyerek dokuyu nazikçe trite edin.
- Hücre süspansiyonunu 1500 µL'lik bir tüpe aktarın. Düşük büyütmede (10×) ters mikroskop altında bir alikotu kontrol edin. Görüş alanındaki çubuk şekilli, çizgili kardiyomiyositlerin yoğunluğunu görsel olarak tahmin edin. Eğer alan, çok sayıda üst üste binen çubuk şekilli hücreyle (10× alanda >50) doluysa, hücre yoğunluğunu azaltmak ve kayıt odasında aşırı sıkışmayı önlemek için Ca2⁺‑içermeyen çözelti ekleyin. Kayıttan önce hücrelerin 4 °C'de 40–50 dk boyunca çökmesini bekleyin.
NOT: Hücreler çöktürme süreci boyunca 4 °C'de tutulabilir; izolasyondan sonraki 8 saat içinde kayıtlar için kullanın.
5. Tüm hücre patch clamp kayıtları
- Tablo 1'de listelenen farklı iyonik akımlar ve aksiyon potansiyeli kayıtları için hücre dışı ve hücre içi çözeltileri hazırlayın.
- Dikey bir çekici kullanarak ince duvarlı borosilikat cam kapilerlerden (filamentsiz) patch pipetler çekin ve bunları hücre içi çözelti ile doldurun. Doldurulmuş pipet direnci, tüm kayıt konfigürasyonları için 2.0–3.0 MΩ olmalıdır.
- Perfüzyon rezervuarını hücre dışı banyo çözeltisi ile doldurun ve hücreleri kayıt odasına yerleştirmeden önce tüm hava kabarcıklarını gidermek için hatları hazırlayın.
- İzole edilmiş kardiyomiyosit süspansiyonunun küçük bir hacmini (30–40 µL) cam tabanlı kayıt odasına ekleyin ve hücrelerin 5–10 dk boyunca çökelmesini bekleyin.
- Pipeti amplifikatör kafa aşamasına (head-stage) takın. Mikroskobik yönlendirme altında, pipet ucu membranla temas edene kadar mikromanipülatör ile pipeti hedef kardiyomiyosite doğru indirin; bu temas, küçük bir çöküntü ve pipet direncinde bir artış olarak görülür.
- Genellikle birkaç saniye içinde oluşan yüksek dirençli GΩ sızdırmazlığını (seal) oluşturmak için hafif negatif vakum uygulayın.
- Tutma potansiyelini -80 mV olarak ayarlayın. Bir dizi kısa vakum darbesi ile membranı yırtın. Tüm hücre (whole-cell) konfigürasyonu kurulduktan sonra, kapasitans geçişlerini minimize edin ve amplifikatörün kompanzasyon devrelerini kullanarak hücre kapasitansını ve seri (erişim) direncini kompanze edin.
- Bu kapasitif akımları, amplifikatör üzerindeki Hücre kapasitansı ve Seri direnç kontrollerini kullanarak kompanze edin. Ana kapasitif geçişi minimize etmek için Hücre kapasitansı kontrolünü ayarlayın, ardından kalan aşımı (overshoot) büyük ölçüde iptal edilene ve bazal akım düzleşene kadar Seri direnç kontrolünü ayarlayın.
- Aksiyon potansiyelleri ve iyonik akımların kaydı için yalnızca kompanzasyon sonrası tahmini erişim direnci ≤10–12 MΩ olan hücreleri kabul edin. Gerektiğinde kayıt öncesinde Tablo 2'de listelenen spesifik blokerleri ekleyerek aksiyon potansiyellerini veya iyonik akımları kaydetmeye geçin.
- Her bir hedef akım için özel stimülasyon protokollerinin konfigürasyonuna izin veren patch clamp veri toplama yazılımı ile kayıt yapın. Bu çalışmada kullanılan voltaj-clamp protokolleri Şekil 2'de gösterilmiştir.
Sonuçlar
Bu protokol, yüksek çözünürlüklü tüm hücre yama kenetleme (whole-cell patch clamp) kaydı için uygun olan, N. furzeri'den tekil, çubuk şeklinde ventriküler kardiyomyositler sağlar. Başarılı bir izolasyon öncelikle hücre morfolojisi ve sızdırmazlık kalitesine göre değerlendirilir ve ardından stabil aksiyon potansiyelleri ile temel iyonik akımların her birinin beklenen voltaj bağımlılığı ve genlikte kaydedilebilme yeteneği ile fonksiyonel olarak doğrulanır. Aşağıdaki temsili kayıtlar genç N. furzeri'den elde edilmiştir ve sağlıklı, iyi kenetlenmiş bir hücreyi belirten referans değerleri tanımlar. Bu kriterlerden sapmalar genellikle suboptimal bir izolasyona işaret eder ve her bir kriterin yanında açıklanmıştır.
Hücre morfolojisi ve sızdırmazlık oluşumu
Canlı N. furzeri ventriküler kardiyomiyositleri, pürüzsüz ve morfolojik olarak sağlam bir sarkolema ile birlikte uzamış ve çubuk şeklinde görünür (Şekil 3). Bazı hücrelerde, ışık mikroskobu altında hafif enine çizgilenmeler seçilebilse de, bu durum her hücrede tutarlı bir şekilde çözümlenememiştir; bu nedenle, kayıt için hücre seçerken temel kriterler olarak pürüzsüz, sağlam membran ve uzamış, çubuk şeklindeki morfoloji kullanılmıştır. Bu tür hücreler kolayca yüksek dirençli bir sızdırmazlık (>1 GΩ) oluşturur ve membran yırtılmalarına karşı tolerans gösterir. Buna karşılık; yuvarlak, büzüşmüş, granüler veya şişmiş hücreler, aşırı sindirim veya mekanik hasarın belirtileridir: bu hücreler kötü sızdırmazlık sağlar, hızla potansiyel kaybeder ve elenmelidir. Sağlıklı bir hücre, stabil bir dinlenme membran potansiyelini korur ve -80 mV tutma potansiyelinde minimum sızıntı gösterir.
Yama kenetleme kayıt özellikleri
Tüm hücre patch-clamp kayıtları, bir patch-clamp amplifikatörü kullanılarak 22–24 °C'de gerçekleştirildi. Sinyaller 10 kHz hızında örneklendi ve 1–2 kHz'lik alçak geçiren filtre uygulandı. Dijitalleştiricide sinyal çözünürlüğünü optimize etmek için çıkış kazancı (α) ×0.5 olarak ayarlandı. Seri direnç %70–80 oranında kompanse edildi; gecikme 10 µs olarak belirlendi. Tahmini erişim direnci 10–12 MΩ'u aşarsa veya kayıt sırasında ~%10'dan fazla değişirse kayıtlar reddedildi. Aksiyon potansiyeli ve iyon akımı kayıtları için doğrusal sızıntı çıkarma işlemi uygulanmadı.
Aşağıdaki kriterlerden herhangi birini karşılayan hücreler analiz dışı bırakılmıştır: akım-kenetleme (current-clamp) modunda dinlenme membran potansiyelinin −70 mV'den daha az negatif olması; stabil bir gigaseal (>1 GΩ) oluşturulamaması; kompanzasyon sonrası erişim direncinin >10–12 MΩ olması; kayıt sırasında iyonik akımların hızla azalması (run-down); morfolojik hasar (yuvarlak, granüler veya hiperkontrakte görünüm).
Aksiyon potansiyelleri (canlılığın pozitif kontrolü)
Akım-kenetleme (current-clamp) modunda kaydedilen aksiyon potansiyelleri, izole edilmiş bir kardiyomiyositin elektriksel canlılığının en doğrudan değerlendirmesini sağlar. 1 ms'lik depolarizasyon akım darbeleriyle (eşik değerin yaklaşık %30 üzerinde, 0.4–1 nA) AP'leri uyarın. Stimülasyon frekansını 0.3 Hz olarak ayarlayın. Dalga formu kararlı, durağan bir duruma ulaştıktan sonra, yaklaşık 5 dk sonra AP'leri kaydedin. Genç N. furzeri'den elde edilen iyi izole edilmiş bir kardiyomiyositte, dinlenme membran potansiyeli (RMP) kararlıdır ve -85 mV civarındadır (Şekil 4B). AP, yaklaşık +30 mV değerine kadar aşar ve net bir ya hep ya hiç yükselme fazı sergiler (Şekil 4A). Temsili AP özellikleri arasında ~530 ms'lik bir APD90, ~460 ms'lik bir APD50 ve ~50 V s-1 civarında bir maksimum yükselme hızı (dV/dtmax) yer alır. Depolarize olmuş bir RMP (yaklaşık -70 mV'den daha az negatif), azalmış veya yok olan aşım, yavaşlamış yükselme hızı veya vakaların çoğunluğunda kararlı genlik ve sürede tekrarlayan ateşlemeyi sürdürememe durumu; AP özelliklerini değerlendirmek için kullanılamayacak, hasarlı veya kötü kenetlenmiş bir hücreye işaret eder.
Hızlı sodyum akımı (INa)
Hızlı sodyum akımı, AP yükselişinin temelini oluşturur ve membran bütünlüğü ile klembin kalitesi için hassas bir belirteçtir. Tablo 1'deki Cs+ bazlı solüsyonlar kullanıldığında, INa büyük, hızla aktive olan ve inaktive olan bir içe doğru akım olarak kaydedilir (Şekil 5A). Sağlıklı genç miyositlerde, INa -60 mV civarında tespit edilebilir hale gelir, yaklaşık -30 mV'da yaklaşık -13 pA pF−1 değerinde bir tepe yoğunluğuna ulaşır ve +20 mV civarında tersine döner (Şekil 5B). İnaktivasyon zaman sabiti, -50 mV'daki ~8 ms değerinden -10 mV'daki ~2 ms değerine düşer ve yarı-inaktivasyon voltajı -70 mV civarındadır13 (Şekil 5C,D). Tepe akım genliğinin önemli ölçüde azalmış olması, kaymış veya belirsiz bir geri dönüş potansiyeli ya da yavaşlamış ve bozulmuş aktivasyon/inaktivasyon kinetiği, izolasyonun kendisinden ziyade yetersiz voltaj kontrolüne (seri direnç hatası) veya bozulmuş membran bütünlüğüne işaret eder.
Kalsiyum akımları (ICaL ve ICaT)
Kalsiyum akım solüsyonları (Tablo 1) ile kaydedildiğinde, N. furzeri kardiyomiyositleri iki bileşenli net bir içe doğru kalsiyum akımı sergiler. Akım, baskın L-tipi akıma (ICaL) ek olarak T-tipi bir bileşenin (ICaT) varlığına işaret edecek şekilde yaklaşık -60 mV'de aktive olmaya başlar ve -10 mV ile 0 mV arasında yaklaşık -7 pA pF−1 pik yoğunluğa ulaşır (Şekil 6B). Bileşen kimliği farmakolojik olarak doğrulanmıştır: 10 µM nifedipin akımı kısmen bloke ederken, 100 µM neredeyse tam bir inhibisyon sağlar (Şekil 6A). 100 µM nifedipin konsantrasyonunun yalnızca, 10 µM nifedipin sonrası kalan akımın daha yüksek konsantrasyonlara tamamen duyarlı olduğunu ve dolayısıyla ICaT olarak tanımlanabileceğini doğrulamak için belirli kontrol deneylerinde kullanıldığını belirtmek önemlidir. Standart rutin kayıtlar için, net ICa akımını tamamen bloke etmek için 50 µM yeterlidir. ICaL bileşeni, -50 mV'lik bir tutma potansiyelinden uyarılmış akım olarak tanımlanır ve ICaT, -90 mV'den kaydedilen akım ile izole ICaL arasındaki fark olarak elde edilir (Şekil 6C,D). Tanımlanan aktivasyon ve pik akım voltajlarına sahip, net bir şekilde çözümlenmiş, nifedipin-duyarlı içe doğru akım, kalsiyum kanallarının iyi korunduğunu gösterir.
Gecikmiş doğrultucu potasyum akımları (IKr ve IKs)
Dışa yönlü potasyum akımlarının varlığı, izolasyon sonrası repolarizasyon mekanizmasının fonksiyonel olarak sağlam kaldığını doğrular. Farmakolojik koşullar altında (Tablo 2), -40 mV ve üzerindeki depolarizasyon tüm sağlıklı hücrelerde dışa yönlü bir akım tetikler. Selektif blokerlerle iki bileşen ayırt edilir: chromanol 293B (20 µM) ile duyarlı olan yavaş gecikmiş doğrultucu (IKs) ve E4031 (1 µM) ile duyarlı olan hızlı gecikmiş doğrultucu (IKr) (Şekil 7A,B). Genç balıklardan alınan miyositlerde, IKs ve IKr akımları, güçlü depolarize potansiyellerde yaklaşık 1 pA pF−1 yoğunluğa ulaşır (Şekil 7C,D). İnsan ventriküler repolarizasyonunda önemli rol oynayan ancak standart kemirgen modellerinde daha az katkı sağlayan14 her iki gecikmiş doğrultucu bileşeninin varlığı, kaydedilen hücrenin repolarizasyon akımları sağlam bir N. furzeri ventriküler miyositi olduğunu doğrulayan temel bir kanıt niteliğindedir.
Bazal içe doğru doğrultucu akımı (IK1)
Arka plan içe doğrultucu akımı, dinlenme membran potansiyelini belirler ve +60 ile -120 mV arasındaki bir voltaj rampası protokolü ile kolayca değerlendirilir (Şekil 7E). Sağlıklı bir hücrede, IK1 akımı, akım kenetleme modunda ölçülen RMP ile tutarlı olarak -80 mV civarında tersine döner. Tersine dönme potansiyelinden daha pozitif potansiyellerde IK1, birkaç pA pF−1 seviyesinde zirve yapan karakteristik bir dışa doğru tümsek sergiler (Şekil 7F). -80 mV'dan çok uzak bir tersine dönme potansiyeli veya büyük bir sızıntı akımı, kötü bir sızdırmazlığa veya hasarlı bir membrana işaret eder.
Bütünsel olarak, bir hazırlık süreci; gigaohm sızdırmazlıkları oluşturan, pürüzsüz ve sağlam membranlara sahip, uzamış, çubuk şeklinde hücreler elde edildiğinde ve yukarıda açıklanan referans aksiyon potansiyeli dalga formunu ve akım imzalarını sergilediğinde başarılı kabul edilir. Tek bir kalpten bu tür birkaç hücrenin elde edilmesi, enzimatik disosiasyonun hem membran bütünlüğünü hem de sonraki elektrofizyolojik çalışmalar için gerekli olan kardiyak iyon kanallarının tamamını koruduğunu doğrular.
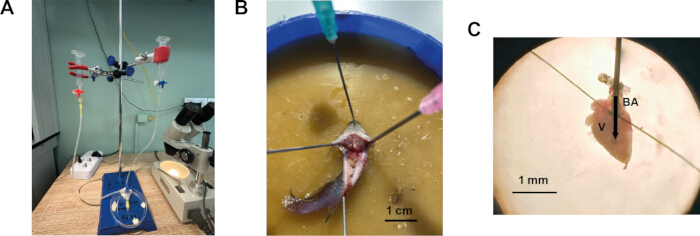
Şekil 1: N. furzeri kalbinden ventriküler kardiyomiyosit izolasyon prosedürü. (A) Küçük balıklar için modifiye edilmiş kardiyomiyosit izolasyon sistemi. (B) Peritonu transvers ve longitudinal olarak insize edilmiş, ventral tarafı yukarı bakacak şekilde bir diseksiyon tepsisine sabitlenmiş balık. (C) Perfüzyon için kanüle edilmiş ve sabitlenmiş N. furzeri kalbi. BA – bulbus arteriosus, V – ventrikül. Ok, solüsyonun ventriküle akış yönünü göstermektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
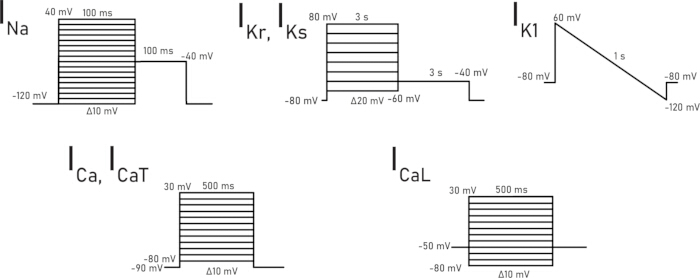
Şekil 2: Her bir spesifik iyonik akımı kaydetmek için kullanılan voltaj-clamp protokolleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
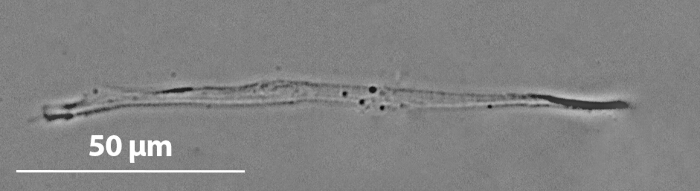
Şekil 3: Genç N. furzeri'den alınan bir ventriküler kardiyomiyositin temsilci mikrofotoğrafı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
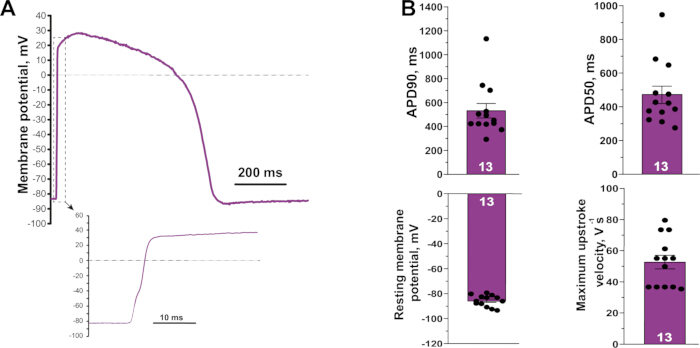
Şekil 4: Genç bir N. furzeri ventriküler kardiyomiyositinden kaydedilen temsili aksiyon potansiyeli. (A) Aksiyon potansiyeli dalga formu. İç ek, genişletilmiş bir zaman ölçeğindeki hızlı yükselmeyi göstermektedir. (B) İzole genç miyositlerden ölçülen aksiyon potansiyeli özellikleri (dinlenim membran potansiyeli, APD50, APD90 ve maksimum yükselme hızı). (N = 7, n = 13). Değerler ortalama ± S.E.M. olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
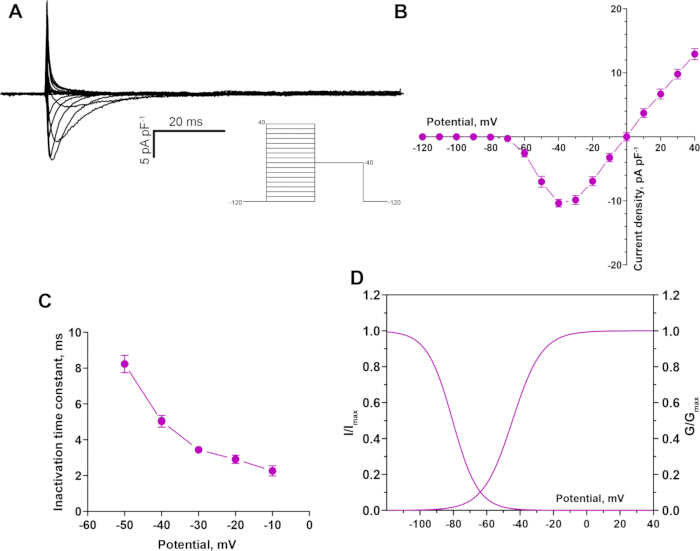
Şekil 5: Genç bir N. furzeri ventriküler kardiyomiyositinden kaydedilen hızlı sodyum akımı (INa). (A) INa akımının temsili kaydı. (B) INa için akım-gerilim ilişkisi; -60 mV civarında aktive olan ve -30 mV civarında pik yapan akım. (C) İnaktivasyon zaman sabitinin gerilime bağımlılığı. (D) Kararlı durum aktivasyon ve inaktivasyon eğrileri. (N = 5, n = 11). Değerler ortalama ± S.E.M. olarak gösterilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
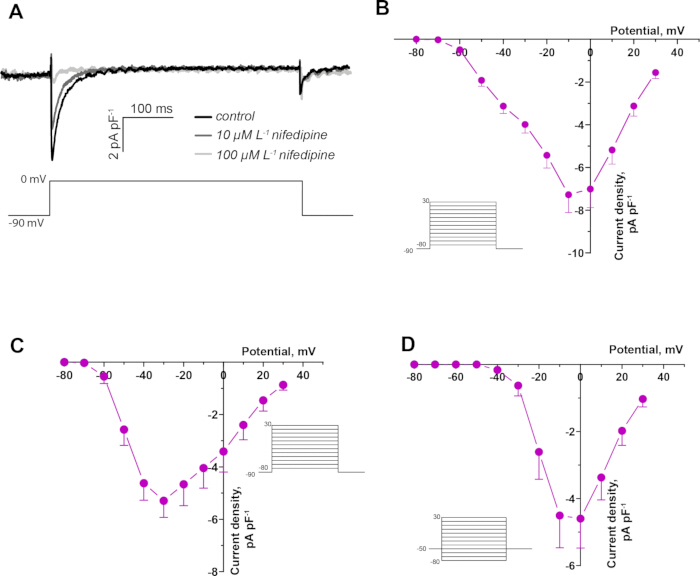
Şekil 6: Genç bir N. furzeri ventriküler kardiyomiyositinde kalsiyum akımları. (A) Genç bir N. furzeri ventriküler kardiyomiyositinde, kontrol grubunda ve 10 µM ile 100 µM nifedipin varlığındaki net kalsiyum akımının temsili kaydı. (B) Net kalsiyum akımı için akım-voltaj ilişkisi; -60 mV civarında aktive olup -10 mV civarında pik yapmaktadır (N = 5, n = 11). (C) T-tipi bileşen (ICaT) için akım-voltaj ilişkisi (N = 3, n = 6). (D) L-tipi bileşen (ICaL) için akım-voltaj ilişkisi (N = 5, n = 7). Değerler ortalama ± S.E.M. olarak belirtilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
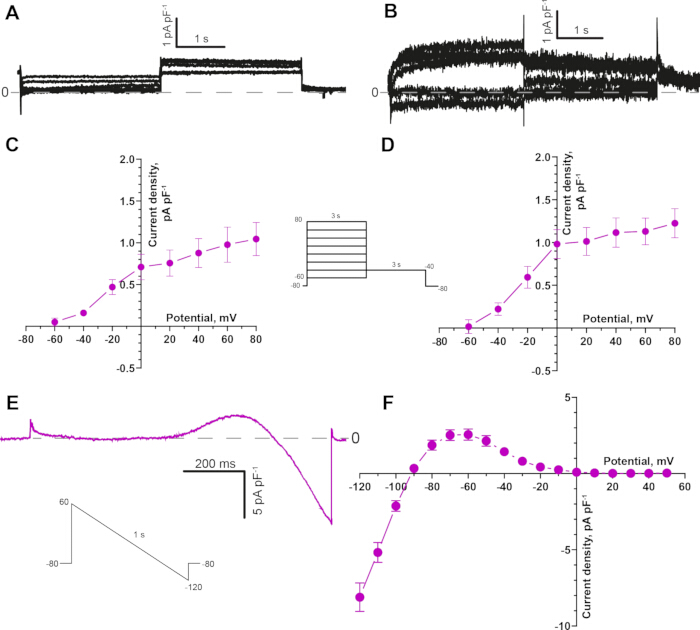
Şekil 7: Genç N. furzeri ventriküler kardiyomiyositlerinde potasyum akımları. (A) IKr'yi bloklamak için E4031 (1 µM) varlığında izole edilen yavaş gecikmiş doğrultucu akımının (IKs) temsili kaydı. (B) IKs'yi bloklamak için chromanol 293B (20 µM) varlığında izole edilen hızlı gecikmiş doğrultucu akımının (IKr) temsili kaydı. (C) IKs akımı için akım-voltaj ilişkisi (N = 5, n = 9). (D) IKr akımı için akım-voltaj ilişkisi (N = 5, n = 10). (E) +60 mV'den -120 mV'ye inen bir voltaj rampası protokolü ile kaydedilen temsili IK1. (F) -80 mV civarında tersine dönen IK1 için akım-voltaj ilişkisi (N = 5, n = 18). Değerler ortalama ± S.E.M. olarak gösterilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Çözelti Adı | Reaktif ve konsantrasyon (mM) |
| Aksiyon potansiyeli ve potasyum akımları hücre dışı çözeltisi | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl2, 10 glucose, 10 HEPES; NaOH ile ayarlanan pH 7.4 |
| Aksiyon potansiyeli ve potasyum akımları hücre içi çözeltisi | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP ve 10 HEPES; KOH ile ayarlanan pH 7.2 |
| Sodyum akımı hücre dışı çözeltisi | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose ve 10 HEPES; CsOH ile ayarlanan pH 7.2 |
| Sodyum akımı hücre içi çözeltisi | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP ve 15 TEA; CsOH kullanılarak ayarlanan pH 7.2 |
| Kalsiyum akımı hücre dışı çözeltisi | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose ve 10 HEPES; NaOH ile 7.2'ye ayarlanan pH |
| Kalsiyum akımı hücre içi çözeltisi | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP ve 15 TEA; CsOH ile ayarlanan pH 7.2. |
Tablo 1: Aksiyon potansiyellerinin ve iyonik akımların patch-clamp kaydı için hücre dışı ve hücre içi solüsyonların bileşimi.
| Kayıt yapılan akım | Blokör konsantrasyonu (μM) | |
| 1. | Aksiyon potansiyeli | Blokör gerekmemektedir |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
Tablo 2: Belirli bir iyonik akımın seçici kaydının yapılması için hücre dışı çözeltilere eklenen farmakolojik blokerler.
Tartışma
N. furzeri'den canlı ventriküler kardiyomiyositlerin başarılı bir şekilde izole edilmesi, yaşa bağlı kardiyak yeniden şekillenmenin hücresel düzeyde doğrudan elektrofizyolojik karakterizasyonuna olanak tanıyan metodolojik bir ilerlemeyi temsil eder. Bu çözünürlük, yalnızca organ veya tüm kalp preparatları ile ayırt edilemeyen yaşa bağlı kardiyak disfonksiyonun temelindeki spesifik iyonik mekanizmaların belirlenmesi için gereklidir. Natif kardiyomiyositlerin incelenmesi, yaşlanmanın iyonik akımlar ve aksiyon potansiyeli özellikleri dahil olmak üzere temel elektrofizyolojik özellikleri nasıl değiştirdiğine dair doğrudan bilgi sağlar.
Bu protokoldeki çeşitli adımlar, N. furzeri'den yüksek kaliteli ve yama kenetleme (patch-clamp) yöntemine uygun kardiyomiyositler elde etmek için kritiktir. Öncelikle, enzim aktivitesi partiler arasında farklılık gösterdiğinden, kollajenaz ve tripsin konsantrasyonları her hazırlık için ayarlanmalıdır. Aşırı sindirim, membran hasarına ve iyon kanalı fonksiyon kaybına neden olurken, yetersiz sindirim az sayıda hücre elde edilmesine yol açar ve pipet-membran arasında stabil bir temas kurulmasını engeller. İzole edilen hücreler, izolasyon sırasında hücresel bütünlüğün korunduğunu gösteren, pürüzsüz ve sağlam bir sarkolem ile birlikte uzamış, çubuk şeklinde bir morfoloji sergiler; bazı hücrelerde, ışık mikroskobu altında hafif sarkomerik çizgilenmeler de seçilebilir. Hasarlı hücreler sıklıkla değişmiş iyon kanalı fonksiyonları ve bozulmuş membran özellikleri sergilediğinden, bu koruma güvenilir elektrofizyolojik veriler için kritiktir. İkinci olarak, N. furzeri kalbinin küçük boyutu, enzimatik izolasyonun dikkatle optimize edilmesini ve hassas manuel diseksiyonu gerektiren teknik bir zorluktur ve kalp başına düşen hücresel verim memeli hazırlıklarından daha düşüktür. Ayrıca, kanülize edilmiş kalpten yetersiz perfüzyon veya sızıntı, prosedür sırasında karşılaşılabilecek en yaygın zorluklardan biridir. Tutarlı bir yaklaşım açısı ve derinliği geliştirmek için birkaç kalp üzerinde kanülasyon pratiği yapın. İğne ucunun hava kabarcıklarından arınmış olduğundan ve bulbusun dokuyu kesmeden güvenli bir şekilde bağlandığından emin olun. Ayrıca, kayda geçmeden önce hücrelerin çubuk şeklinde, pürüzsüz ve sağlam bir membrana sahip olduğunu onaylayın (bazı hücrelerde hafif çizgilenmeler görülebilir). Yuvarlak veya granüler hücreler elenmelidir. Tüm çözeltilerin taze hazırlandığını ve pH değerlerinin doğru şekilde ayarlandığını kontrol edin. Pipet direncinin önerilen aralıkta (2.0–3.0 MΩ) olduğundan emin olun. Kayıt sırasında, yukarıda açıklanan amplifikatör parametrelerini kontrol edin; kompanzasyon sonrası erişim direnci 10–12 MΩ değerini aşmamalıdır; akım kenetleme (current-clamp) modunda dinlenim membran potansiyeli −70 mV'den daha az negatif olmalı ve hücre stabil bir gigaseal oluşturmalıdır.
Buna rağmen, protokol, patch clamp kayıtları ve potansiyel olarak diğer uygulamalar için uygun olan yüksek kaliteli hücreleri güvenilir bir şekilde sağlamakta ve N. furzeri'yi hücresel kardiyak yaşlanmanın pratik bir modeli olarak konumlandırmaktadır. N. furzeri, kardiyak yaşlanma çalışmaları için gelensel memeli modellere göre belirgin avantajlar sunmaktadır. Esaret altında üretilebilen en kısa ömürlü omurgalı olarak, benzer biyolojik yaşlara ulaşması için 18–24 ay gerektiren fare modelleriyle karşılaştırıldığında, kardiyak yaşlanmanın pratik zaman dilimleri içinde boylamsal çalışmalarına olanak tanır15. Kısa yaşam süresine rağmen; elektrofizyolojik yeniden yapılanma, azalmış yükselme hızıyla birlikte korunan aksiyon potansiyeli süresi ve önemli iyonik akımların aşağı regülasyonu dahil olmak üzere, omurgalı kardiyak yaşlanmasının temel özelliklerini göstermektedir6.
Mevcut kardiyomiyosit izolasyon yaklaşımlarıyla karşılaştırma.
Canlı ventriküler kardiyomiyositlerin enzimatik izolasyonu, çok çeşitli türlerde tek hücreli elektrofizyoloji çalışmaları için kabul görmüş bir ön koşuldur. Memelilerde altın standart yaklaşım, bütün haldeki kalbin kontrollü basınç ve sıcaklık altında, önce kalsiyum içermeyen tamponla ardından genellikle kollajenaz ve proteazlar içeren enzim çözeltisiyle retrograd aortik perfüzyonuna dayanır. Bu strateji, enzimlerin koroner vaskülatür aracılığıyla tekdüze iletimini, kanın etkili bir şekilde yıkanmasını ve miyokardın nispeten nazik bir şekilde ayrıştırılmasını sağlayarak, yüksek çözünürlüklü patch-clamp kayıtları için uygun olan çok sayıda çubuk şeklinde miyosit elde edilmesini sağlar16,17.
Ancak teleost balıklarda, kalbin anatomik organizasyonu ve memelilerinkine benzer bir koroner arter sisteminin yokluğu, önemli modifikasyonları gerekli kılar. Kardiyovasküler araştırmalarda en yaygın kullanılan küçük balık modellerinden biri olan zebra balığında, ventriküler kardiyomiyositlerin başarılı bir şekilde izole edilmesi, sağlam kalbin nispeten uzun bir süre boyunca enzimatik bir solüsyonda sindirilmesine dayanmaktadır8,9. Bu protokollerde, çıkarılan kalp doğrudan bir damla veya küçük hacimli enzim solüsyonuna aktarılır, burada oda sıcaklığında veya türe uygun bir sıcaklıkta inkübe edilir ve ardından tekil hücreleri serbest bırakmak için mekanik tritürasyon uygulanır. Bu yaklaşımın, ana iyonik akımların kayıtlarını destekleyen canlı, çizgili kardiyomiyositler elde ettiğini göstermiştir11.
Kullanışlılığına rağmen, toplu sindirim (batch-digestion) stratejisi, çok küçük veya özellikle hassas kalplere uygulandığında çeşitli sınırlamalara sahiptir. İlk olarak, enzimatik maruziyet daha az kontrollüdür: ventrikülün dış katmanları, iç katmanlara göre daha uzun süre daha yüksek bir etkili enzim konsantrasyonuna maruz kalır; bu durum heterojen sindirime ve az veya çok sindirilmiş hücrelerin karışımına yol açabilir. İkinci olarak, enzim solüsyonunda uzun süreli bekletme, özellikle enzim partilerinin aktivitesi değişken olduğunda veya kalp olağanüstü küçük olduğunda, aşırı sindirim riskini artırır. Üçüncü olarak, kan yıkama işlemi temel olarak pasif difüzyona ve hafif manuel durulamaya dayanır; bu işlem, küçük bir teleost ventrikülünün dar lüminal boşluklarını tamamen temizlemek için yetersiz kalabilir.
Kalsiyumsuz işlem, enzimatik sindirim ve nazik tritürasyonun genel prensiplerini koruduk. Ancak çalışma, bulbus arteriosus'a kanül yerleştirerek ve ventriküler lümeni doğrudan perfüze ederek solüsyonların iletim yöntemini değiştirmiştir. Bu yaklaşım, araştırmacının sindirim öncesinde ventriküler boşluklardaki kanı yıkamasına, kalbi transfer etmeden solüsyonlar arasında geçiş yapmasına ve ventriküler duvar gevşemeye başladığında enzimatik işlemi sonlandırmasına olanak tanır. Bu modifikasyonlar, özellikle enzimatik solüsyonda uzun süreli bekletilmenin aşırı sindirime ve hücre kalitesinde düşüşe yol açabileceği, küçük ve hassas N. furzeri kalbi için oldukça önemlidir.
Gelecekteki uygulamalar
Mevcut izolasyon yöntemi, gelecekteki araştırmalar için birçok yol açmaktadır. İlk olarak, bu türdeki kalp yaşlanmasına ilişkin güncel moleküler ve histolojik tanımlamaları tamamlayarak2,3,4,5, N. furzeri kardiyomiyositlerinde aksiyon potansiyeli morfolojisindeki yaşa bağlı değişimlerin ve iyonik akım yoğunluğunun, kinetiğinin ve voltaja bağımlılığının sistematik olarak karakterize edilmesine olanak tanır. İkinci olarak, protokol; yaşam süresini veya sağlık süresini modüle eden müdahalelerin, tek hücre düzeyinde kardiyak elektrofizyolojiyi nasıl etkilediğini test etmek için farmakolojik araçlarla birleştirilebilir. Üçüncü olarak, izole edilen N. furzeri kardiyomiyositleri, patch‑clamp kayıtlarının ötesindeki uygulamalar için kullanılabilir; buna iyon kanalı ekspresyonundaki ve post-translasyonel modifikasyonlardaki yaşa bağlı değişikliklerin moleküler analizleri (qPCR, RNA‑seq, proteomik), immünositokimya ve sarkomerik organizasyonun yüksek çözünürlüklü görüntülemesi dahildir. Son olarak, burada açıklanan metodolojik çerçeve, benzer kalp boyutuna ve anatomisine sahip diğer küçük teleost modellere uyarlanabilir ve böylece N. furzeri'nin kardiyak yaşlanma araştırmaları için translasyonel bir model olarak kullanımı genişletilebilir.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Rusya Bilim Vakfı (Hibe No. 22-14-00075) tarafından desteklenmiştir. Yazarlar, bu çalışmada kullanılan Nothobranchius furzeri popülasyonunun yetiştirilmesi ve sürdürülmesindeki yardımlarından dolayı Andrei Nikiforov'a minnettardır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1 mL'lik insülin şırıngası | Tıbbi Amaç | 939863 | |
| 10 mL'lik şırıngalar | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| 100 mm'lik Petri kabı | SARSTEDT | 83.3902 | |
| 100 μL mikropipet | Thermo Scientific | 4640040 | |
| 35 mm doku kültürü kabı | SPL LIFE SCIENCES | 11035 | |
| 3 yollu infüzyon stop kok | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL tüp | Eppendorf | EP0030124537-500EA | |
| 5-200 μL uç | Deltalab | 200009 | |
| Amplifikatör | Moleküler cihazlar | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Borosilikat cam kapilerler | Sutter Instrument | B150-110-10 | |
| Sığır serum albümini | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H2O | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Kollagenaz 1A Tipi | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Dağıtım iğnesi (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glikoz | helikon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Ters mikroskop | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helikon | SRL-90654-500G | |
| KOH | helikon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helikon | Solarbio M8161 | |
| MgSO4*7H2O | helikon | SRL-74440-500G | |
| Mikromanipülatör | RWD | MM-500 | |
| Mikrocerrahi oftalmik pensler | CILITA | F-111T | |
| Mikrocerrahi oftalmik makaslar | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helikon | SRL-13913-500G | |
| Nifedipin | Sigma-Aldrich | N7634 | |
| Perfüzyon sistemi | Biyoteknolojiler | Bio_4_p | |
| Pipet Çekici | Narishige Group | PC-10 | |
| Silikon tüpler (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Stand | NV-lab | 00000034085 | |
| Stereo mikroskop | Labkompleks LCC | 10557 | |
| Taurin | Acros Organics | 166545000 | |
| Tetraetilamonyum klorür (TEA) | Merck | 822148 | |
| Tetrodotoksin | Tocris Bioscience | 1078 | |
| Tripsin | Sigma-Aldrich | T0303 | |
| WinWCP yazılımı | University of Strathclyde | - | V5.7.5 |
Kaynaklar
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında