يعد اختبار المراسل الجيني أداة راسخة وقوية لتشريح العلاقة بين تسلسل الحمض النووي وأنشطتها التنظيمية الجينية. يتيح اقتران العناصر التنظيمية المرشحة بجينات المراسل التي تحمل علامات تسلسل تحديد التوازي الهائل لهذه المقايسات.
مقالة منهجية
فحوصات مراسل المتوازية نطاق واسع في خلايا الثدييات مثقف
في هذه المقالة
إشعار تصحيح
Important: There has been an erratum issued for this article. View Erratum Notice
ملخص
الملخص
يعد اختبار المراسل الجيني أداة راسخة وقوية لتشريح العلاقة بين تسلسل الحمض النووي وأنشطتها التنظيمية الجينية. ومع ذلك ، فإن الإنتاجية المحتملة لهذا الاختبار كانت محدودة بسبب الحاجة إلى استنساخ وفحص نشاط كل تسلسل بشكل فردي بناء على الاهتمام باستخدام مضان البروتين أو النشاط الأنزيمي كبديل للنشاط التنظيمي. أتاحت التطورات في تقنيات تخليق الحمض النووي عالية الإنتاجية وتسلسلها مؤخرا التغلب على هذه القيود من خلال مضاعفة بناء واستجواب مكتبات كبيرة من تركيبات المراسلين. يصف هذا البروتوكول تنفيذ مقايسة المراسل المتوازي على نطاق واسع (MPRA) التي تسمح بمقارنة مباشرة لمئات الآلاف من التسلسلات التنظيمية المفترضة في طبق ثقافة خلية واحدة.
المقدمة
فحوصات مراسل المتوازية (MPRA) تتيح قياس المضاعفة من الأنشطة التنظيمية النسخي الآلاف إلى مئات الآلاف من تسلسل الحمض النووي 1- 7. تنفيذا الأكثر شيوعا، ويتم تحقيق مضاعفة من قبل اقتران كل تسلسل تهم جين مراسل الاصطناعية التي تحتوي على علامة تحديد تسلسل المصب من إطار القراءة المفتوح (ORF، الشكل 1). ترنسفكأيشن التالية، والعزلة RNA وتسلسل عميق الغايات 3 'من النصوص الجين المراسل، أنشطة النسبية للتسلسل جانب يمكن أن يستدل من الوفرة النسبية للعلامات تحديد بهم.

نظرة عامة على الشكل 1. MPRA. مكتبة مراسل MPRA يبني هي التي شيدت من قبل اقتران متواليات التنظيمية المفترضة لالاصطناعيةمراسل الجينات التي تتكون من "خامل" ORF (مثل GFP أو وسيفيراز)، يليه علامة تحديد التسلسل. وtransfected المكتبة بشكل جماعي إلى السكان من الخلايا المستزرعة ويتم استرداد كتب مراسل مرنا في وقت لاحق. يستخدم التسلسل العميق لحساب عدد تكرارات كل علامة بين من mRNAs مراسل وtransfected البلازميدات. نسبة مرنا تعول على التهم البلازميد يمكن استخدامها للاستدلال على نشاط التسلسل التنظيمي المقابلة. مقتبس بإذن من ميلينكوف، وآخرون 2.
MPRA يمكن تكييفها لمجموعة واسعة من التصاميم التجريبية، بما في ذلك 1) الطفرات شاملة من العناصر التنظيمية الجينات الفردية، 2) المسح الضوئي لعناصر تنظيمية جديدة عبر موضع الاهتمام، 3) اختبار تأثير التباين الوراثي الطبيعي في مجموعة من المفترضة المروجين، والقدرة أو كواتم الصوت، و4) الهندسة شبه عقلانية من العناصر التنظيمية الاصطناعية. لىيمكن أن تتولد braries من المتغيرات تسلسل باستخدام مجموعة متنوعة من الأساليب، بما في ذلك تركيب مكتبة قليل النوكليوتيد (OLS) على ميكروأرس برمجة 2،3،6،7، والتجمع من أليغنوكليوتيد] المنحطة 1،4، ربط اندماجي 8 و تفتيت الحمض النووي الجيني 5.
يصف هذا البروتوكول بناء مكتبة من المروج المتغيرات باستخدام OLS وpMPRA1 وpMPRAdonor1 ناقلات (Addgene معرفات و49349 49352 على التوالي؛ http://www.addgene.org)، ترنسفكأيشن عابرة من هذه المكتبة في خلايا الثدييات مثقف والكميات اللاحقة الأنشطة التي كتبها مروج تسلسل عميق من الأكواد المرتبطة بها (TAG-يليها). تم استخدام الإصدارات السابقة من هذا البروتوكول في البحث عنها في ميلينكوف آخرون طبيعة التكنولوجيا الحيوية 30، 271-277 (2012) وفي Kheradpour آخرون بحوث الجينوم 23، 800-811 (2013).
البروتوكول
1. تسلسل تصميم وتجميع
- تبدأ MPRA مع تصميم وتركيب تسلسل إلى أن يعاير للنشاط التنظيمي. من أجل التوافق مع سلسلة ناقلات pMPRA، وتصميم كل تسلسل باستخدام القالب التالي: 5'-ACTGGCCGCTTCACTG- فار -GGTACCTCTAGA- علامة -AGATCGGAAGAGCGTCG-3 "حيث يدل فار تسلسل إلى أن يعاير وعلامة تدل واحدة أو أكثر وتحديد العلامات.
- يتم فصل المناطق المتغيرة اثنين (فار وعلامة) بواسطة زوج من KpnI (GGTACC) وXbaI (TCTAGA) مواقع تقييد لتسهيل ربط الاتجاه من جزء مراسل الجينات فيما بينها. وبالإضافة إلى ذلك، سيتم إضافة متميزتين SfiI (GGCCNNNNNGGCC) مواقع بواسطة PCR للسماح ربط الاتجاه إلى العمود الفقري pMPRA. يجب أن لا يحتوي على مناطق متغيرة نسخ إضافية من أي من هذه المواقع قيود. إذا لزم الأمر، يمكن استبدال واحد أو أكثر من هذه الانزيمات التقييد، طالما بدائل 1) السماح قطع كفاءة بالقرب من نهايات جزيئات الحمض النووي، و2) لا قطع في أماكن أخرى في تسلسل النواقل. انظر المناقشة للحصول على تفاصيل إضافية.
- الحصول على الاشعال المطلوبة المذكورة في الجدول 1 من بائع التجاري.
| MPRA_SfiI_F | GCTAAGGGCCTAACTGGCCGCTTCACTG |
| MPRA_SfiI_R | GTTTAAGGCCTCCGTGGCCGACGCTCTTC |
| TAGseq_P1 | AATGATACGGCGACCACCGAGATCTACACT CTTTCCCTACACGACGCTCTTCCGATCT |
| TAGseq_P2 | CAAGCAGAAGACGGCATACGAGAT [مؤشر] GT GACTGGAGTTCAGACGTGTGCTCTTCCGATCTCGAGG |
الجدول 1. متواليات التمهيدي. [مؤشر] مؤشر يدل على تسلسل 6 إلى 8 الإقليم الشمالي المستخدمة في التسلسل المضاعفة. الحصول على الأقل 8 الاشعال TagSeq-P2 مع مؤشرات مختلفة. جميعمن الاشعال يجب تنقيته بواسطة HPLC أو PAGE.
- ويمكن الحصول على مكتبات قليل النوكليوتيد من بائع أو الأساسية منشأة تجارية، أو إنشاء باستخدام القائم على برمجة ميكروأري قليل النوكليوتيد المزج كما هو موضح من قبل الشركة المصنعة. Resuspend ومنتجات عملية شريان الحياة في 100 ميكرولتر TE 0.1 العازلة.
- تشغيل المكتبات قليل النوكليوتيد على 10٪ TBE-اليوريا تغيير طبيعة هلام بولي أكريلاميد. تحميل ما يقرب من 1 بمول في حارة وصمة عار وصمة عار مع الفلورسنت ssDNA حساسة لتقييم جودتها (الشكل 2A).
- إذا فرقة منفصلة المقابلة لأليغنوكليوتيد] كامل طول يمكن تصور (الشكل 2A، الممرات 1 و 2)، استئصال المقابلة شريحة هلام الأكريلاميد وأزل أليغنوكليوتيد] في 100 ميكرولتر TE 0.1 بين عشية وضحاها في درجة حرارة الغرفة مع اهتزاز. خلاف ذلك، والمضي قدما باستخدام OLS تعليق الخام.
- تضخيم وإضافة ذيول SfiI إلى المكتبة قليل النوكليوتيد باستخدام مستحلب PCR 9 سوب>.
- انشاء 50 ميكرولتر مخاليط تفاعل PCR كما هو موضح في الجدول رقم 2. ثم تتحد مع 300 ميكرولتر النفط والسطحي خليط من Micellula DNA مستحلب وطقم تنقية ودوامة لمدة 5 دقائق في 4 درجات مئوية.
| كاشف | 1X وحدة التخزين (ميكرولتر) |
| Herculase الثاني فيوجن البلمرة DNA | 0.5 |
| 5X Herculase II الاحتياطي الرد | 10 |
| dNTP (10 ملم لكل منهما) | 1.25 |
| BSA (20 ملغ / مل) | 1.25 |
| MPRA_SfiI_F التمهيدي (25 ميكرومتر) | 0.25 |
| MPRA_SfiI_R التمهيدي (25 ميكرومتر) | 0.25 |
| قالب عملية شريان الحياة (1-10 attomol) | يختلف |
| nuclease خالية من المياه | 50 |
- استخدام التركيز الذي يعطي الغلة القصوى من منتجات التضخيم دون ظهور التحف (انظر القسم 1.12).
- الاستغناء المستحلب الناتج في أنابيب PCR وتنفيذ 20 دورات PCR (2 دقيقة عند 95 درجة مئوية، 20 × [20 ثانية في 95 درجة مئوية، و 20 ثانية في 55 ° C، 30 ثانية في 72 ° C]، 3 دقائق في 95 ° C).
- تجمع وكسر كل 350 ميكرولتر مستحلب PCR رد فعل بإضافة 1 مل إيزوبوتانول وvortexing لفترة وجيزة، ثم تنقية المنتج التضخيم باستخدام عمود تنقية الحمض النووي.
- تشغيل قسامة على 2٪ أو 4٪ هلام الاغاروز للتحقق خالية من القطع الأثرية التضخيم (الشكل 2B).

الرقم 2. إعداد مكتبات التوليف قليل النوكليوتيد. A) ثلاثة مكتبات التوليف قليل النوكليوتيد الخام المختلفة (شريان الحياة) تعمل على تغيير طبيعة 10٪ TBE-اليوريا المواد الهلامية بولي أكريلاميد. العصابات الموافق أليغنوكليوتيد] طول كامل (*) يمكن تصور ورفعه من المكتبات 1 و 3 2. مكتبة تحتوي على ملوثات التي تتداخل مع تنقية PAGE. إذا كان هذا هو الحال، انتقل مباشرة إلى التضخيم PCR. B) منتجات مفتوحة ومستحلب التضخيم PCR من نفس المدى مكتبة قليل النوكليوتيد على agarose هلام. PCR التضخيم من المكتبات قليل النوكليوتيد معقدة في كثير من الأحيان يخلق منتجات خيالية وغيرها من الأعمال الفنية التي قد تظهر كما العصابات العليا والسفلى. مستحلب PCR يمكن تقليل هذه التحف.
2. البناء المكتبة
- إعداد العمود الفقري البلازميد خطي من قبل هضم pMPRA1 ناقلات مع SfiI عند 50 درجة مئوية لمدة 2 ساعة، تشغيل على 1٪ هلام الاغاروز، استئصال الفرقة العمود الفقري (في هذه الحالة، 2.5 كيلوبايت) وتنقيتها باستخدام عمود الدوران هلام تنقية.
- دايجستالمنتجات مستحلب PCR من الخطوة 1.4 مع SfiI عند 50 درجة مئوية لمدة 2 ساعة وتنقية باستخدام أعمدة تنقية الحمض النووي.
- لligate المكتبة المروج العلامة في العمود الفقري ناقلات خطي، إعداد ردود الفعل التي تحتوي على 100 نانوغرام من المنتج PCR هضمها، 50 نانوغرام من خطي العمود الفقري النواقل وT4 DNA يغاز. احتضان بين عشية وضحاها في 16 ° C ثم الحرارة عند 65 درجة مئوية لمدة 20 دقيقة لإبطال نشاط يغاز.
- تحويل E. القولونية مع رد فعل ربط. للحفاظ على تعقيد المكتبة، وتهدف إلى الحصول على ما لا يقل عن 10X وت م من هناك مجموعات متميزة المروج العلامة في مكتبة مصممة.
- عندما يكون العدد الكلي للعلامات ما يقرب من 100،000، ويمكن عادة أن يتحقق الهدف عن طريق تنفيذ وت 6-8 تحولات موازية في المكتبة.
- لكل تحول، والجمع بين 50 ميكرولتر electrocompetent E. خلايا القولونية مع 2 ميكرولتر من مزيج ربط على الجليد. تحويل من Electroporation لل، واستعادة الخلايا في 800 ميكرولتر SOCالمتوسطة التي تهز عند 37 درجة مئوية لمدة 1 ساعة، ثم الجمع بين الخلايا من التحولات متوازية.
- لتقييم كفاءة التحول، لوحة التخفيفات المسلسل من alinquot الخلايا تعافى على لوحات أجار LB مع 50-100 ميكروغرام / مل كربنيسيلين واحتضان ليلا 37 درجة مئوية. وت م تقدير إجمالي و(وت لاحظ) × (عامل تمييع) × (V - V) / الخامس، حيث V هو الحجم الكلي للخلايا تعافى والخامس هو حجم قسامة المتخذة لالتخفيفات التسلسلية.
- في الوقت نفسه، استخدم ما تبقى من الخلايا تعافى لتطعيم 200 مل LB تستكمل مع 100 ميكروغرام / مل كربنيسيلين. زراعة خلايا في 37 درجة مئوية خلال الليل في حاضنة شاكر ثم عزل DNA البلازميد فقا للإجراءات العادية.
- هضم قسامة من مكتبة البلازميد معزولة مع SfiI عند 50 درجة مئوية لمدة 2 ساعة وتشغيلها على 1٪ هلام الاغاروز لتأكيد وجود تدرج.
- خطي المكتبة البلازميد بواسطة جutting بين المتغيرات المروج والعلامات باستخدام KpnI وXbaI. لتعظيم كفاءة الهضم، نفذ الهضم التسلسلية:
- أولا، مع هضم KpnI عند 37 درجة مئوية لمدة 1 ساعة وتنقية باستخدام الخرز المغناطيسي. ثانيا، مع هضم XbaI مع اضافة 1 U الروبيان الفوسفاتيز القلوية عند 37 درجة مئوية لمدة 2 ساعة والحرارة تعطيل عند 65 درجة مئوية لمدة 5 دقائق، ثم تنقية باستخدام الخرز المغناطيسي.
- تشغيل قسامة على 1٪ هلام الاغاروز للتحقق من الخطية كاملة. إذا بلازميد تقطيعه مرئيا، جزء خطي يجب تنقيته هلام.
- لإنشاء مكتبة MPRA مناسبة لترنسفكأيشن في خلايا الثدييات، ligate على ORF مع KpnI / XbaI المتوافقة مع نهايات في المكتبة المتوسطة الخطي.
- لإعداد luc2 متوافق ORF جزء من pMPRAdonor1، هذا هضم البلازميد مع KpnI وXbaI عند 37 درجة مئوية لمدة 1 ساعة وتشغيلها على agarose هلام 1٪. استئصال جزء ORF (1.7 كب في هذه الحالة) وتنقية باستخدام عمود هلام تنقية زيادة ونقصان.
- استنساخ جزء ORF إلى المكتبة المتوسطة الخطي كما هو موضح في الخطوات 2،3-2،8.
- هضم قسامة (الموافق 1-2 ميكروغرام) من مكتبة MPRA مع KpnI عند 37 درجة مئوية لمدة 1 ساعة وتشغيلها على agarose هلام 1٪. إذا كان يتم تشغيل المكتبة هضمها بمثابة فرقة واحدة، انتقل إلى القسم 3. إذا لوحظ فرق إضافية (عادة الموافق المرحل من بنيات وسيطة)، ومكتبة يمكن أن يكون أبعد النقي على النحو التالي:
- هضم 3-5 ميكروغرام من المكتبة ملوثة KpnI عند 37 درجة مئوية لمدة 1 ساعة وتشغيلها على 0.8٪ agarose هلام بين عشية وضحاها في 4 درجات مئوية.
- استئصال الفرقة مكتبة الصحيحة، وتنقية الحمض النووي باستخدام عمود الدوران تنقية جل وتنفيذ الربط الذاتي باستخدام عالية تركيز الحمض النووي T4 يغاز عند 37 درجة مئوية لمدة 1 ساعة. ثم كرر التحول ومكتبة النهائية عزل الحمض النووي كما هو موضح في الخطوة 2.8.
3. Transfection، التشويش، وعزل الحمض النووي الريبي
- لكل ترنسفكأيشن مستقل والثقافة العدد المطلوب من الخلايا (على النحو الذي يحدده تعقيد مكتبة MPRA، انظر مناقشة) في المتوسطة المناسب. على سبيل المثال، الثقافة HEK293T / 17 الخلايا في DMEM تستكمل مع 10٪ FBS وL-الجلوتامين / البنسلين / الستربتومايسين. خلايا ثقافة لمدة سنتين على الأقل transfections مستقل لكل مكتبة وحالة تجريبية.
- بالنقل الخلايا المستنبتة مع البلازميدات MPRA. يجب أن يكون الأمثل طريقة ترنسفكأيشن وشروط كل نوع من الخلايا. لكل عينة transfected والاحتفاظ بها قسامة (50-100 نانوغرام) من DNA البلازميد كعنصر تحكم مطابقة.
- على سبيل المثال، بالنقل 0.5 × 10 7 HEK293T / 17 الخلايا المزروعة إلى ~ 50٪ التقاء في صحن الثقافة 10 سم مع 10 ميكروغرام DNA البلازميد في 1 مل غروب MEM أنا انخفاض المصل المتوسطة باستخدام 30 ميكرولتر Lipofectamine LTX و 10 ميكرولتر زائد الكاشف. إزالة الخليط ترنسفكأيشن بعد 5 ساعات والسماح للخلايا لاسترداد لمدة 24-48 ساعة.
- اختياريا، نفذ أي اضطراب المطلوبة لتنشيط تسلسل التنظيمية context- أو التي تعتمد على إشارة في مكتبة مصممة.
- حصاد الخلايا وعزل بولي (A) + مرنا باستخدام بنسبة ضئيلة (DT) أعمدة السليلوز القياسية أو الخرز باستخدام تعليمات الشركة الخاصة بهم.
- ضمان قدرة ملزمة القصوى من الأعمدة أو الخرز يتجاوز المبلغ الإجمالي من المتوقع مرنا من خلايا المقطوع. على سبيل المثال، فإن العائد المتوقع من القسم ما يقرب من 3.3 0.5-2.5 ميكروغرام مرنا.
4. تاج تسلسل
- للقضاء على المرحل من الحمض النووي من ناقلات لست] خلية transfected، علاج كل عينة مرنا 20 ميكرولتر مع 1 ميكرولتر الدناز توربو (2 U) و 2.3 ميكرولتر 10X توربو الدناز العازلة عند 37 درجة مئوية لمدة 1 ساعة، إضافة 2.4 ميكرولتر توربو الدناز الكاشف في التعطيل RT لمدة 5 دقائق مع الخلط، الطرد المركزي في 10،000 ز لمدة 90 ثانية، ثم نقل الحل لأنبوب جديد.
- تحقق النقاء من خلال إجراء PCR كما هو موضح في القسم 4.6 على 60-100 نانوغرام من كل عينة مرنا، ثم تشغيل المنتجات على agarose هلام. إذا amplicons محددة واضحة (0.25 كيلوبايت في حالة استخدام pMPRA1 مع luc2)، العمود تنقية مرنا المعالجة وثم تكرار العلاج الدناز.
- لتوليد المكتبات التسلسل الوسم وما يليها، وتحويل مراسل مرنا ل[كدنا] وإضافة محولات التسلسل بواسطة PCR.
- انشاء مرنا / RT مخاليط التمهيدي كما هو موضح في الجدول رقم 3. احتضان عند 65 درجة مئوية لمدة 5 دقائق، ثم ضع على الجليد. في موازاة ذلك، بإعداد ردود فعل التوليف [كدنا] كما هو موضح في الجدول رقم 4.
| كاشف | 1X وحدة التخزين (ميكرولتر) |
| عينة مرنا (400-700 نانوغرام الكل) | 8 |
| بنسبة ضئيلة من 0DT (50 ميكرومتر) | 1 |
| dNTP (10 ملم لكل منهما) | 1 |
| كاشف | 1X وحدة التخزين (ميكرولتر) |
| 10X مرتفع الثالث RT العازلة | 2 |
| MgCl 2 (25 ملم) | 4 |
| DTT (0.1 M) | 2 |
| RNaseOut (40 U / ميكرولتر) | 1 |
| مرتفع الثالث (200 U / ميكرولتر) | 1 |
الجدول 4. [كدنا] مزيج رد فعل التوليف.
- الجمع بلطف مرنا / RT التمهيدي ستختلط مع يمزج التوليف [كدنا]. احتضان عند 50 درجة مئوية لمدة 50 دقيقة، و 85 درجة مئوية لمدة 5 دقائق ثم ضع على الجليد. أخيرا، احتضان مع 2 U من ريبونوكلياز H عند 37 درجة مئوية لمدة 20 دقيقة.
- إنشاء تفاعلات PCR كما هو موضح في الجدول 5 مع 4-6 ميكرولتر[كدنا] خليط التفاعل أو 50 نانوغرام البلازميد مراسل كقوالب. ثم نفذ PCR التضخيم (95 درجة مئوية لمدة 2 دقيقة، 26 × [95 درجة مئوية لمدة 30 ثانية و 55 درجة مئوية لمدة 30 ثانية، 72 درجة مئوية لمدة 30 ثانية]، 72 درجة مئوية لمدة 3 دقائق).
| كاشف | 1X وحدة التخزين (ميكرولتر) |
| 2X PfuUltra الثاني HotStart PCR ميكس ماجستير | 25 |
| TagSeq_P1 التمهيدي (25 ميكرومتر) | 0.5 |
| TagSeq_P2 التمهيدي (25 ميكرومتر) | 0.5 |
| قالب (مرنا، أو مزيج [كدنا DNA البلازميد) | يختلف |
| nuclease خالية من المياه | 50 |
الجدول 5. تاج تسلسل PCR مزيج التفاعل.
- تشغيل منتجات PCR من خلال agarose هلام 2٪، والعصابات المكوس المقابلة لamplicons مكتبة الوسم تسلسل (0.25 كيلوبايت في حالة استخدامpMPRA1 مع luc2) وتنقية هذه باستخدام الأعمدة تدور تنقية هلام.
- تجمع، وتفسد تسلسل تنقية الوسم amplicons يليها مباشرة بصك التسلسل البورشيد.
- تصفية منخفضة الجودة يقرأ عن طريق إزالة كل ما أ) يحتوي على موقف واحد أو أكثر مع نوعية PHRED يسجل أقل من 30 في العلامة متسلسلة أو ب) لا تتطابق تماما علامة مصممة. حساب عدد المرات التي تظهر كل علامة المتبقية في كل مكتبة. تطبيع التهم كلمة دلالية لTPM (علامات علامات التسلسل لكل مليون) ومن ثم حساب نسبة مرنا المستمدة من التهم علامة على المشتقة بلازميد التهم علامة لكل زوج من المكتبات التسلسل. إذا ارتبطت علامات مختلفة متعددة إلى كل متغير تسلسل، استخدم نسبها وسيطة لتحليل المصب.
النتائج
MPRA يسهل عالية الدقة، تشريح الكمي للعلاقات تسلسل النشاط من العناصر التنظيمية النسخي. وهناك تجربة ناجحة MPRA تسفر عادة قياسات متكررة للغاية بالنسبة لغالبية متواليات في المكتبة transfected (الشكل 3A). إذا لوحظ ضعف استنساخ (الشكل 3B)، وهذا يدل على تركيز منخفض جدا من mRNAs من مراسل في عينات الحمض النووي الريبي استردادها، إما بسبب 1) النشاط المطلق المنخفض بين متواليات يعاير، أو 2) انخفاض كفاءة ترنسفكأيشن.
ويبين الشكل 4 ممثل "البصمة المعلومات" 1،2 الناتجة عن يعاير ~ 37،000 متغيرات عشوائية من تسلسل 145 BP المنبع من الجين البشري IFNB في الخلايا HEK293 مع أو بدون التعرض لفيروس سينداي. المروج تاتا مربع والداني يعرف محسن 10 يمكن التعرف بوضوح على ريجي غنية بالمعلوماتإضافات بطريقة تعتمد على الفيروس.
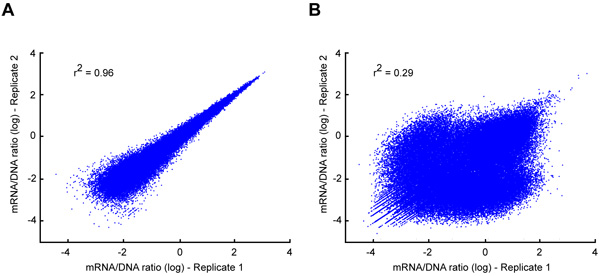
الرقم 3. الوسم يليها التكاثر. المؤامرات مبعثر تظهر أمثلة من البيانات الوسم وما يليها من اثنين transfections تكرار مستقل مع ارتفاع (A) ومنخفضة (B) التكاثر. المؤامرة الأخيرة تظهر العديد من العلامات النموذجية مع التهم مرنا عالية في واحدة فقط من مكررات اثنين. تشير هذه التحف عادة أن تركيزات من mRNAs مراسل كانت منخفضة للغاية بالنسبة الكمي PCR التضخيم، إما بسبب الأنشطة المطلقة منخفضة بين بنيات المراسل، أو الكفاءة ترنسفكأيشن منخفضة.
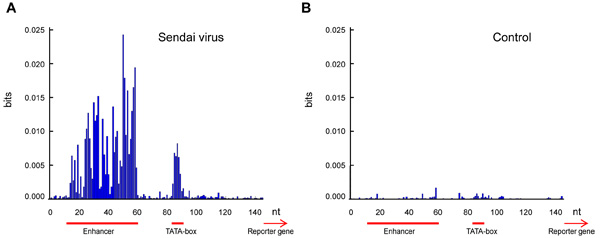
الرقم 4. footprinting معلومات من IFNB النسخ موقع بداية البشري ومحسن القريبة. ويعاير ما يقرب من 37،000 متغيرات عشوائية من 145 النوكليوتيدات (الإقليم الشمالي) منطقة المنبع من الجين البشري باستخدام IFNB MPRA في الخلايا HEK293 مع (A) وبدون (B) التعرض لفيروس سينداي. تظهر أشرطة زرقاء المعلومات المتبادلة بين مخرجات مراسل والنوكليوتيدات في كل موقف. محسن الداني وTATA مربع تبرز بوصفها مناطق محتوى المعلومات عالية على العدوى الفيروسية.
المناقشة
MPRA هي أداة مرنة وقوية لتشريح علاقات التسلسل والنشاط في العناصر التنظيمية للجينات. يعتمد نجاح تجارب MPRA على ثلاثة عوامل على الأقل: 1) التصميم الدقيق لمكتبة التسلسل ، 2) تقليل القطع الأثرية أثناء التضخيم والاستنساخ ، و 3) كفاءة تعداء عالية.
يتم تحديد الأطوال المحتملة للمناطق المتغيرة في تركيبات المراسل إلى حد كبير من خلال تقنية التوليف أو الاستنساخ المستخدمة. يقتصر OLS القياسي بشكل عام على حوالي 200 nt ، ولكن هذا البروتوكول متوافق مع إدخالات تصل إلى 1,000 nt على الأقل. لاحظ أن المناطق المتغيرة المتكررة للغاية أو التي تحتوي على هياكل ثانوية قوية قد ينتهي بها الأمر إلى تمثيل ناقصي بسبب تحيزات تفاعل البوليميراز المتسلسل والاستنساخ. يجب أن يكون طول العلامات التي تحدد كل منطقة من المناطق المتغيرة 10-20 nt ويجب تصميم مجموعة العلامات بشكل مثالي بحيث يكون هناك اختلافان على الأقل في النيوكليوتيدات بين أي زوج. يجب أيضا تجنب العلامات التي تحتوي على تسلسل البذور للحمض النووي الريبي الصغير المعروف أو العوامل الأخرى التي قد تؤثر على استقرار الرنا المرسال عندما يكون ذلك ممكنا.
تتمثل إحدى المعلمات الرئيسية في تصميم تجارب MPRA في العدد الإجمالي لتركيبات المراسل المتميزة التي سيتم تضمينها في المكتبة (تعقيد التصميم ، يشار إليه ب CD). من الناحية العملية ، يقتصر C D على عدد الخلايا المستزرعة التي يمكن نقلها. كقاعدة عامة ، يجب أن يكون العدد الإجمالي للخلايا المنقولة أكبر ب 50-100 مرة على الأقل من CD. على سبيل المثال ، إذا كان من الممكن نقل 20 مليون خلية بكفاءة تعداء تبلغ 50٪ ، فيجب ألا يزيد CD عن ~ 200,000. لاحظ أن CD يساوي عدد متغيرات التسلسل التنظيمي المميزة مضروبا في عدد العلامات المميزة لكل تسلسل. كلما تم ربط العلامات الأكثر تميزا بكل تسلسل تنظيمي ، كلما كان من الممكن إجراء تقدير لنشاط هذا التسلسل بشكل أكثر دقة (لأنه يمكن حساب متوسط القياسات من العلامات المميزة) ، ولكن يمكن فحص عدد المتغيرات المميزة الأقل في تجربة واحدة. يعتمد الاختيار الأمثل على التصميم التجريبي. في تجربة بسيطة "تقريع المروج" ، حيث سيتم تركيب نموذج رياضي على القياسات المجمعة ، عادة ما تكون علامة واحدة لكل متغير كافية. في شاشة تعدد أشكال النوكليوتيدات أحادية النوكليوتيدات التي تسبب تغييرات في الأنشطة التنظيمية ، قد يكون من الضروري استخدام 20 علامة أو أكثر لكل أليل للحصول على نتائج قوية إحصائيا ، لأن مقارنة كل زوج من الأليلات تتطلب اختبار فرضية منفصل.
إذا لم يكن من المتوقع أن تحتوي التسلسلات المراد فحصها على مواقع بدء النسخ ، فيمكن أيضا إضافة مروج ثابت في نفس الجزء. على سبيل المثال ، يشتمل pMPRAdonor2 (Addgene ID 49353) على الحد الأدنى من محفز صندوق TATA المفيد عندما يتوقع أن يكون للمنطقة المتغيرة في المنبع نشاط محسن كبير ، بينما يشتمل pMPRAdonor3 (Addgene ID 49354) على محفز فيروسي SV40 معدل وقوي يكون مفيدا عندما يتوقع أن تحتوي المنطقة المتغيرة على نشاط كاتم الصوت أو عناصر تنظيمية سلبية أخرى.
غالبا ما تحتوي منتجات OLS الخام على جزء كبير من قليل النوكليوتيدات المقطوعة. وقد تتداخل هذه مع تضخيم تفاعل البوليميراز المتسلسل الدقيق للتسلسلات المصممة ، خاصة عندما يكون هناك تماثل كبير بينهما. يعد استخدام تنقية PAGE لإزالة منتجات التوليف المقطوعة والمستحلب PCR لتقليل القطع الأثرية للتضخيم تقنيات فعالة لضمان جودة عالية للمكتبة. إذا كانت أي من الخطوتين غير عملية ، فمن الضروري تقليل عدد دورات تفاعل البوليميراز المتسلسل المستخدمة في كل خطوة تضخيم. يعد اختيار وتوسيع المكتبة المستنسخة في الثقافة السائلة كافيا بشكل عام للحفاظ على تعقيد التصميم ، ولكن إذا تم استخدام ناقلات معرضة لإعادة التركيب أو لوحظ تحيز تمثيلي كبير ، فيمكن بدلا من ذلك طلاء الخلايا المستردة مباشرة على ألواح أجار LB كبيرة ، وتوسيعها كمستعمرات فردية ثم كشطها لعزل الحمض النووي. من المهم أيضا مراعاة التأثير المحتمل لأخطاء التوليف ، والتي توجد عادة بمعدل 1: 100-500 في OLS. يوصى بالتسلسل الكامل لتركيبات المراسل قبل النحوي لتحديد هذه الأخطاء وتصحيحها.
ليس من الضروري إدخال تركيبات المراسل في كل خلية في المزرعة المنقولة ، ولكن كفاءات التعداء أقل من ~ 50٪ قد تؤدي إلى ضعف نسب الإشارة إلى الضوضاء. ينصح بتحسين ظروف تعداء التعداء قبل إجراء تجارب MPRA في نوع خلية جديد. عند العمل مع أنواع الخلايا التي يصعب نقلها ، يمكن تعزيز إشارات MPRA عن طريق الاختيار المسبق للخلايا المنقولة. تتضمن سلسلة ناقلات pMPRA متغيرات تعبر بشكل أساسي عن علامة سطح الخلية المقطوعة التي يمكن استخدامها للإثراء المادي للخلايا المنقولة قبل عزل الحمض النووي الريبي (على سبيل المثال ، معرفات Addgene 49350 و 49351).
الإفصاحات
تعلن الكتاب أنه ليس لديهم المصالح المالية المتنافسة.
شكر وتقدير
وأيد هذا العمل من قبل معهد أبحاث الجينوم البشري الوطني من المعاهد الوطنية للصحة في إطار جائزة عدد R01HG006785.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| توليف مكتبة قليل النوكليوتيدات | Agilent أو CustomArray أو بائعي OLS الآخرين | المخصصين | إذا كنت تستخدم طريقة بناء OLS |
| pMPRA1 | Addgene | 49349 | MPRA العمود الفقري للبلازميد |
| pMPRAdonor1 | Addgene | 49352 | luc2 ORF بلازميد متبرع |
| TE 0.1 Buffer (10 ملي مولار Tris-HCl ، 0.1 ملي EDTA ، درجة الحموضة 8.0) | عام | غير | OLS المخزن |
| Novex TBE-Urea Gels ، 10٪ | Life Technologies | EC6875BOX | PAGE تنقية منتجات |
| OLS Novex TBA-Urea Sample | Buffer Life Technologies | LC6876 | PAGE تنقية منتجات OLS |
| SYBR Gold Nucleic Gel Stain | Life Technologies | S-11494 | PAGE تنقية منتجات OLS |
| مستحلب Micellula DNA & مجموعة تنقية | EURx / CHIMERx | 3600-01 | تضخيم المكتبة عن طريق مستحلب PCR |
| Herculase II Fusion DNA Polymerase | Agilent | 600675 Polymerase للمستحلب PCR | |
| SfiI | New England Biolabs | R0123S | استنساخ المكتبة باستخدام ناقلات pMPRA |
| KpnI-HF | نيو إنجلاند Biolabs | R3142S | استنساخ المكتبة مع ناقلات pMPRA |
| XbaI | جديد | Biolabs R0145S | باستخدام ناقلات pMPRA |
| T4 DNA Ligase (2،000،000 وحدة / مل) | نيو إنجلاند بيولوجيا | M0202T | مع ناقلات pMPRA طلقة |
| واحدة TOP10 Electrocomp E. coli< / em> | Life Technologies | C4040-50 | استنساخ المكتبة باستخدام ناقلات pMPRA |
| LB أجار والوسائط السائلة مع carbenicllin | Generic | n / a | وسائط النمو ل استنساخ |
| E-Gel EX Gels 1٪ | Life Technologies | G4010-01 | التحقق من المكتبة وتنقيتها |
| E-Gel EX Gels ، 2٪ | Life Technologies | G4010-02 | التحقق من المكتبة وتنقيتها |
| MinElute Gel Extraction Kit | Qiagen | 28604 | تنقية المكتبة والعمود الفقري |
| EndoFree Plasmid Maxi Kit | Qiagen | 12362 | عزل الحمض النووي للمكتبة |
| وسائط زراعة الخلية | n / a | n / a | |
| كواشف تعداء | ن / أ | ن / أ | MicroPoly |
| (A) Purist Kit | تقنيات الحياة | AM1919 | عزل mRNA |
| TURBO مجموعة خالية من الحمض النووي TURBO | تقنيات الحياة | AM1907 | إزالة الحمض النووي البلازميد |
| SuperScript III حياة نظام توليف الخيط الأول | تقنيات | 18080-051 | تخليق (كدنا |
| PfuUltra II Hotstart PCR Master Mix | Agilent | 600850 | Polymerase لبادئات Tag-Seq PCR |
| (انظر النص) | IDT | مخصص | PAGE تنقية بادئات Tag-Seq |
المراجع
- Kinney, J., Murugan, A., Callan, C. G., Cox, E. C. Using deep sequencing to characterize the biophysical mechanism of a transcriptional regulatory sequence. Proceedings of the National Academy of Sciences USA. 107 (20), 9158-9163 (2010).
- Melnikov, A., et al. Systematic dissection and optimization of inducible enhancers in human cells using a massively parallel reporter assay. Nature Biotechnology. 30 (3), 271-277 (2012).
- Patwardhan, R. P., Lee, C., Litvin, O., Young, D. L., Pe’er, D., Shendure, J. High-resolution analysis of DNA regulatory elements by synthetic saturation mutagenesis. Nature Biotechnology. 27 (12), 1173-1175 (2009).
- Patwardhan, R. P., et al. Massively parallel functional dissection of mammalian enhancers in vivo. Nature Biotechnology. 30 (3), 265-270 (2012).
- Arnold, C. D., Gerlach, D., Stelzer, C., Boryń, ŁM., Rath, M., Stark, A. Genome-wide quantitative enhancer activity maps identified by STARR-seq. Science (New York, N. Y.). 339 (6123), 1074-1077 (2013).
- Kheradpour, P., et al. Systematic dissection of regulatory motifs in 2000 predicted human enhancers using a massively parallel reporter assay. Genome Research. 23 (5), 800-811 (2013).
- White, M. A., Myers, C. A., Corbo, J. C., Cohen, B. A. Massively parallel in vivo enhancer assay reveals that highly local features determine the cis -regulatory function of ChIP-seq peaks. Proceedings of the National Academy of Sciences USA. 110 (29), 11952-11957 (2013).
- Mogno, I., Kwasnieski, J. C., Cohen, B. A. Massively parallel synthetic promoter assays reveal the in vivo effects of binding site variants. Genome Research. 23 (11), 1908-1915 (2013).
- Schütze, T., et al. A streamlined protocol for emulsion polymerase chain reaction and subsequent purification. Analytical Biochemistry. 410 (1), 155-157 (2011).
- Panne, D., Maniatis, T., Harrison, S. C. An atomic model of the interferon-beta enhanceosome. Cell. 129 (6), 1111-1123 (2007).
إعادة الطباعة والأذونات
تصحيح
Formal Correction: Erratum: Massively Parallel Reporter Assays in Cultured Mammalian Cells
Posted by JoVE Editors on 3/01/2015. Citeable Link.
null
