غالبا ما تحتوي على البروتينات المجالات المتعددة التي يمكن أن تمارس الوظائف الخلوية المختلفة. الجينات ضرب الرافضة (KO) لا يعتبرون هذا التنوع الوظيفي. هنا، نحن الإبلاغ عن النهج المستندة إلى هيكل الوظائف بوساطة إعادة التركيب الصرف كاسيت (RMCE) في KO الخلايا الجذعية الجنينية التي تسمح للتشريح الجزيئي للمجالات أو أنواع من البروتين وظيفية مختلفة.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
الدراسات هيكل الوظائف في الخلايا الجذعية الجنينية الماوس عن طريق بوساطة Recombinase-كاسيت تبادل
في هذه المقالة
ملخص
الملخص
الهندسة الوراثية في الأجنة الماوس أو الخلايا الجذعية الجنينية (mESCs) تسمح لدراسة وظيفة بروتين معين. البروتينات هي حقوله المنتجة من الخلية وتتكون غالبا من المجالات الوظيفية متعددة، والتي يمكن أن تتأثر التعديلات posttranslational. استنزاف البروتين بأكمله في مشروط أو التأسيسي الضربة القاضية من أصل (KO) الفئران لا يأخذ بعين الاعتبار هذا التنوع الوظيفي والتنظيم. وقد ذكرت سابقا خط مسك ونموذج الفأر المشتقة، التي تم إدراج موقع رسو السفن لFLPe الصرف كاسيت بوساطة إعادة التركيب (RMCE) في موضع ROSA26 (R26). هنا، ونحن التقرير على نهج هيكل الوظائف التي تسمح للتشريح الجزيئي للوظائف مختلفة من البروتين متعددة المجالات. وتحقيقا لهذه الغاية، يجب أن عبرت الفئران RMCE متوافق مع الفئران KO، ويجب أن تكون معزولة mESCs KO ثم RMCE متوافق. بعد ذلك، يمكن إدخال لجنة من ثوابت الإنقاذ المفترضة في موضع R26 عبر RMCE targetiنانوغرام. وcDNAs الإنقاذ مرشح يمكن إدراجها بسهولة بين المواقع RMCE للناقلات التي تستهدف باستخدام إعادة التركيب الاستنساخ. بعد ذلك، و transfected mESCs KO مع ناقلات تستهدف في تركيبة مع FLPe التعبير recombinase البلازميد. RMCE إعادة تنشيط الجين النيوميسين-مقاومة المروج أقل في مواقع رسو السفن ROSA26 ويسمح لاختيار الحدث الاستهداف الصحيح. وبهذه الطريقة، يتم الحصول على الكفاءات استهداف عالية قريبة من 100٪، والسماح لإدخال عدة ثوابت الإنقاذ المفترضة بطريقة الإنتاجية شبه عالية. وأخيرا، العديد من بنيات الإنقاذ مدفوعة R26-يمكن اختبار لقدرتها على إنقاذ النمط الظاهري الذي لوحظ في mESCs KO الوالدين. نقدم دراسة بنية وظيفة إثبات صحة المبدأ في كاتينين P120 (p120ctn) mESCs KO باستخدام الأديم الباطن التمايز في الهيئات مضغي (EBS)، وقراءات المظهرية. هذا النهج يمكن تحديد المجالات الهامة، مسارات المصب المفترضة، ونقطة من الأمراض ذات الصلةالطفرات التي تكمن وراء الظواهر KO لبروتين معين.
المقدمة
ويقدر أن جينومات الثدييات تحتوي على حوالي 20000 جينات تشفير البروتين. الربط البديل والتعديلات posttranslational يزيد من ذخيرة البروتين. البروتينات لديها بنية وحدات (1) وغالبا ما تحتوي على مجالات التفاعل متعددة، والتي تسمح تجنيدهم في المجمعات بروتين مختلفة، ومشاركتهم في العمليات الخلوية متعددة 2. ومن الأمثلة على ذلك البروتين متعدد الوظائف وتسمى p120ctn. يتم ترميز p120ctn بواسطة الجينات Ctnnd1 ويتكون من مجال أرماديلو تكرار مركزي كبير محاط من قبل N-المحطة ومنطقة C-المحطة. المجال أرماديلو من p120ctn بربط مجال juxtamembrane الحفظ جدا من cadherins الكلاسيكية، التي تشارك في التصاق خلية خلية، ولكنه يربط أيضا إلى قامع النسخي كايسو. المجال-N من محطة p120ctn يتفاعل مع تحركات مختلفة، فوسفاتاز، RhoGTPases صغيرة، والمرتبطة أنيبيب صroteins 3. ومن المثير للاهتمام، نتيجة الربط البديلة، الإسوية p120ctn يمكن أن تتولد من أربعة الكودونات بداية بديلة 4. p120ctn شكل الإسوي 1A هو أطول، كما ترجم من أكثر 5 "تبدأ كودون ويحتوي على شريحة-N محطة بالطول. في p120ctn الإسوية 3 و 4، يتم حذف هذه الشريحة N-المحطة جزئيا وكليا، على التوالي. فهم الدور الدقيق من البروتينات (أو الأشكال الإسوية البروتين)، والمجالات الخاصة بهم في الوظائف الخلوية المختلفة لا يزال يشكل تحديا.
الجينات التي تستهدف في mESCs يمكن دراسة وظيفة البروتين من خلال حذف الوراثي للجينات المقابلة وساهم على نطاق واسع لتحديد الجينات والممرات الهامة والأمراض ذات الصلة تنمويا. كان هذا الاختراق في علم الوراثة العكسية نتيجة التقدم في مجالات العزلة مسك والجينات التي تستهدف بسبب إعادة التركيب مثلي 5 . إعادة التركيب مثلي هو العملية التي يتم تبادلها شظايا الحمض النووي بين اثنين من الأنصاف النووية متشابهة أو متطابقة بعد المزدوج تقطعت بهم السبل (س) فواصل DNA. عادة، HR غير فعالة بسبب فواصل dsDNA نادرة. في الآونة الأخيرة، وكفاءة الجينات الموجهة تناظر تستهدف يمكن زيادة استخدام nucleases الخاصة بالموقع 6، 7، ولكن للأسف، هذه هي عرضة لتأثيرات بعيدا عن الهدف 8. وهناك تقنية أكثر موثوقية لتمكين الجينات الاستهداف RMCE، والتي تقوم على أنظمة إعادة التركيب في مواقع محددة مثل لجنة المساواة العرقية / loxP أو FLPe / FRT. تم العثور على LoxP وتسلسل FRT في P1 عاثية وخميرة الخباز، على التوالي، وتتكون من 34 شركة بريتيش بتروليوم، بما في ذلك شركة بريتيش بتروليوم تسلسل غير المتماثلة 8 التي تحدد التوجه للموقع. من ناحية أخرى، توجه، على سبيل المثال، موقعين loxP ضمن تمتد DNA ستحدد ما إذا كان DNA floxed يصبح رفعه أو طnversed على إعادة التركيب بوساطة لجنة المساواة العرقية-9. وعلاوة على ذلك، يمكن للجنة المساواة العرقية أيضا لحث على النبات إذا كانت موجودة موقعين على الكروموسومات المختلفة. RMCE يستفيد من مواقع إعادة التركيب مغاير نوعي التي لا عبر التفاعل والمضمنة في موضع الجيني. في ظل وجود البلازميد المانحة التي تحتوي على جزء DNA يحيط بها مواقع مغاير نوعي نفسها، فإن recombinase إدراج هذا جزء الحمض النووي في موضع-RMCE متوافق الجيني بسبب النبات المزدوج في وقت واحد (الشكل 1). هنا، يمكن استنساخ فقط بشكل صحيح RMCE المستهدفة تجعل بفضل المقاومة للأدوية إلى المروج على ناقلات الوارد أن يعيد "المحاصرين"، المروج أقل مقاومة نيومايسين الجين (النيو R) موجودة في الجينوم R26 من الخلايا لرسو السفن (الشكل 1) 10، 11. وهذا يؤدي إلى كفاءة استهداف عالية جدا، وغالبا ما يقرب من 100٪ 11 </ سوب> 12. وفي الختام، واستهداف القائم على RMCE ذو كفاءة عالية ويمكن استخدامها للدراسات وظائف الهيكل. ومع ذلك، فإنه يتطلب موضع الجيني سابقة الهندسة.
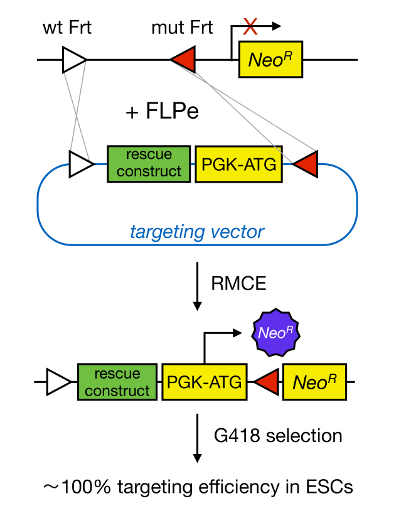
الشكل 1. التمثيل التخطيطي لاستهداف بوساطة RMCE. RMCE يسمح لتبادل شرائح DNA من ناقلات تستهدف الواردة إلى مكان الجيني يعرف إذا كان كل من الميناء موقعين FRT مغاير نوعي (يصور مثلثات بيضاء وحمراء). وبالإضافة إلى ذلك، موضع الجيني المهندسة يحتوي على promoterless والجينات اقتطاع النيوميسين المقاومة (النيو R). من خلال توفير مروج والبدء في كودون في جزء DNA واردة، أحداث إعادة التركيب فقط الصحيحة استعادة المقاومة النيوميسين، مما أدى إلى الكفاءة استهداف عالية. الرجاء انقر هنا لعرض نسخة أكبر من رشخصية له.
هندسة الجينوم في mESCs تسمح للجيل من الفئران RMCE متوافق. وفي عام 1981، نجحت مجموعتين في التقاط الخلايا المحفزة من الكتلة الخلوية الداخلية (ICM) من الكيسات الأريمية والحفاظ عليها في الثقافة 13، 14. mESCs قادرة على تجديد الذات والتمايز إلى جميع أنواع الخلايا الجنينية والكبار، بما في ذلك النسب الجرثومية الخلية. ولذلك، الجينات التي تستهدف في mESCs تمكن الدراسات عكس الوراثية من خلال تطوير الفئران KO التأسيسية أو المشروط (باستخدام نظام / LoxP لجنة المساواة العرقية). ومع ذلك، فإن الطريقة الكلاسيكية لعزل خلايا فأر ES غير فعالة للغاية. وزادت العديد من التحسينات الرئيسية إلى حد كبير نسبة النجاح لاشتقاق خطوط مسك، بما في ذلك استخدام تعريف مصل استبدال (SR) المتوسطة 15، بالتناوب بين مسك المتوسط تحتوي ريال والجنين مصل بقري (FBS) 16، واستخدام الصيدلانيةمركبات منطقية مثل pluripotin أو 2I 17. Pluripotin، وهو جزيء اصطناعي صغير، يسمح لنشر mESCs في حالة غير متمايزة في غياب عامل اللوكيميا المثبطة (LIF) والخلايا الليفية الماوس الجنينية (MEFS) 18. وأخيرا، فقد تبين أن mESCs يمكن عزل بكفاءة عالية جدا (قريبة من 100٪) عندما يتم الجمع بين و/ FBS بروتوكول التناوب المتوسط ريال مع LIF وpluripotin 19 و 20. وتمكن هذه البروتوكولات العزلة كفاءة mESCs KO-RMCE متوافق التي يمكن بعد ذلك أن تستخدم للدراسات هيكل الوظائف.
توضح هذه الورقة الطريقة التي تمكن واحد لتحديد المجالات الرئيسية أو المخلفات داخل البروتين المسؤولة عن العمليات الخلوية محددة. تحقيقا لهذه الغاية، وكان خط أنابيب من التقنيات المتطورة التي تمكن كفاءة العزل مسك، وتستهدف الجمعية ناقلات، واستهداف مسك خلقد. على هذا النحو، لوحات كبيرة مع الإسوية البروتين، والمسوخ نطاق والمؤثرات المصب يمكن إدخالها في mESCs KO ويمكن تقييمها لقدرتها على إنقاذ في المختبر KO النمط الظاهري.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
أجريت جميع التجارب على الفئران وفقا للوائح الحيوان المؤسسية والوطنية والأوروبية.
1. عزل mESCs KO RMCE متوافق
- تتكاثر الفئران KO متخالف مع الفئران RMCE متوافق، مثل الفئران ROSALUC 10 أو ROSA26-IPSC الفئران 21. وقد حافظت كل من الفئران RMCE متوافق على مختلطة 129 / C57BL6 / الخلفية السويسرية.
ملاحظة: عبور مع الفئران KO متخالف ينصح للتغلب على الفتك الجنينية في الفئران KO متماثل. - استخدام PCR لتحديد الفئران KO متخالف التي تحتوي على كاسيت RMCE في موضع R26 12.
- تولد-RMCE متوافق، الفئران KO متخالف مع الفئران KO متخالف وعزل-RMCE متوافق، الكيسات الأريمية KO متماثل.
- إعداد التزاوج مرة في المساء والتحقق من الجماع المقابس في صباح اليوم التالي.
مصنوعة المقابس من إفرازات متخثر من التخثر وحويصلي الغدد من الذكور: ملاحظة.هذه المقابس ملء المهبل الأنثى وتستمر ل8-24 ساعة بعد التكاثر. وتعتبر الإناث توصيله إلى أنها تحمل 0.5 DPC (أيام تال للجماع) الأجنة.- للتحقق من المقابس، ورفع الأنثى من قاعدة الذيل لها ودراسة التي صدرت لها فتحة المهبل لكتلة بيضاء. نشر شفاه الفرج قليلا مع التحقيق الزاوية عندما قابس من الصعب أن نرى. الإناث توصيل منفصلة من الذكور بهم.
- جمع الكيسات الأريمية بنسبة 3.5 DPC.
- الموت ببطء الإناث الحوامل من طريقة وافق (على سبيل المثال، خلع عنق الرحم). جعل شق وسط السطح البطناني وتشريح الرحم وقناة البيض (لا تزال تعلق على بعضها البعض) باستخدام مقص غرامة وملقط.
- ثني إبرة عيار 26 إلى زاوية 45 درجة. نعلق حقنة 1 مل مليئة M2 المتوسطة لهذه الإبرة عازمة واستخدامها لمسح الكيسات الأريمية من الرحم إلى غطاء طبق 10 سم.
- ادخال الإبرة في نهاية الرحم الأقرب إلىقناة البيض. عقد الإبرة في مكان مع ملقط غرامة في حين دفع المكبس. تورم في الرحم يشير إلى وجود احمرار ناجحة.
- استخدام ماصة الفم (التي يبلغ قطرها 100-200 ميكرون) لجمع كل الأجنة وغسلها مرتين في قطرة من متوسطة M2 الطازجة. فورا بعد غسلها، ونقل الكيسات الأريمية إلى لوحات ثقافة (انظر أدناه).
ملاحظة: تشريح والتعامل مع الكيسات الأريمية من ينبغي أن يتم في تدفق الهواء الصفحي.
- إعداد التزاوج مرة في المساء والتحقق من الجماع المقابس في صباح اليوم التالي.
- عزل mESCs RMCE متوافق مع KO
- إعداد لوحة 12-جيدا مع MEFS DR4 تعامل ميتوميسين-C (انظر جدول المواد) قبل يوم واحد من العزلة الكيسة.
ملاحظة: تم عزل هذه MEFS من الفئران تيراغرام (DR4) 1Jae / J التي تحتوي على أربع جينات اختيار المخدرات وتمنح مقاومة النيوميسين، بوروميسين، هيغروميسين، و 6 ثيوغوانين 22.- معطف جميع لوحات الثقافة بنسبة 0.1٪ الجيلاتين. إضافة الجيلاتين 0.1٪لوحات والثقافة، واحتضان لمدة 5 دقائق عند 37 درجة مئوية في 5٪ CO 2، ونضح حل الجيلاتين. البذور ربع قنينة من P2 MEFS في لوحة 12-جيدا وزراعتها في 2 مل من المتوسط MEF (انظر الجدول رقم 1، جدول المواد) إلى أحادي الطبقة متموجة 19.
- تعطيل لهم ميتوميسين-C (10 ميكروغرام / مل) لمدة 3 ساعات وغسلها مرتين مع الفوسفات مخزنة المالحة (PBS) 19.
- باستخدام ماصة الفم، لوحة من الكيسات الأريمية على مهيلم لوحات 12-جيدا (1 جيدا / جنين)، مع MEFS تعامل ميتوميسين-C-في SR-ES المتوسطة الخلية (2 مل / جيد) تستكمل مع إما 2 ميكرومتر pluripotin أو مع 2I (1 ميكرومتر PD0325901 إرك المانع و 3 ميكرومتر Gsk3 المانع CHIR99021). احتضان عند 37 درجة مئوية في 5٪ CO 2.
- تحديث المتوسطة خلية SR-ES (تستكمل مع pluripotin أو 2I) كل 2-3 أيام.
- دراسة كل الكيسة تحت stereomicroنطاق في 4.0X التكبير والتحقق من الفقس والتعلق طبقة MEF.
ملاحظة: عندما الكيسات الأريمية يفقس، فإنها تفقد المنطقة الشفافة التي بتغليف لهم. تحتاج إلى تحديث باستخدام pipetting لالفم الآبار مع الكيسات الأريمية غير مرتبط. - اختيار الامتداد ICM الفردية (باستخدام مجهر تشريحي) بعد 10-12 يوما من الثقافة باستخدام ماصة P10 مع نصائح التخلص منها. نقل ثمرة في ما يقرب من 10 ميكرولتر من متوسطة إلى ذلك، لوحة 96-جيدا على شكل V تحتوي على 30 ميكرولتر / بئر PBS (في درجة حرارة الغرفة).
- إضافة 50 ميكرولتر من 0.25٪ التربسين إلى كل بئر باستخدام ماصة الأقنية واحتضان لمدة 3 دقائق عند 37 درجة مئوية في 5٪ CO 2.
- إضافة 100 ميكرولتر من FBS التي تحتوي على مسك المتوسطة. فصل في الامتداد ICM إلى الخلايا واحد من قبل pipetting 10-15 مرات؛ ونقل الخلايا نأت إلى ميتوميسين-C-المعالجة، 96-جيدا لوحات MEF التي تم إعدادها قبل يوم واحد يتم اختيار المستعمرات ICM.
- من هذه الخطوة فصاعدا، أومي ر pluripotin أو 2I من المتوسط مسك. في اليوم التالي، وتغيير المتوسطة من FBS- والمتوسطة مسك تحتوي ريال (100 ميكرولتر / جيد).
- توسيع خطوط مسك أنشئت من 96- إلى 24 جيدا شكل 19.
- غسل الخلايا مع 200 ميكرولتر من برنامج تلفزيوني، إضافة 50 ميكرولتر من التربسين، واحتضان لمدة 5 دقائق عند 37 درجة مئوية في 5٪ CO إضافة 100 ميكرولتر من المتوسطة مسك أساس FBS.. فصل من قبل pipetting 10-15 مرات باستخدام ماصة الأقنية. ونقل الخلايا نأت إلى ميتوميسين-C-المعالجة، 24-جيدا لوحات MEF.
- تغيير والمتوسطة القائمة على SR-في اليوم التالي. توسيع mESCs بطريقة مماثلة من 24- إلى تنسيق 6 جيدا. جعل 3-4 برودة شديدة من متكدسة 6 جيدا لوحة 19.
- تحديد-RMCE متوافق، mESCs KO متماثل باستخدام بادئات PCR للمكان R26 23 و KO أليل الاختيار (في هذه الحالة، p120ctn، تقارير إتمام المشروعات لp120ctn لاغية ووصفت الأليلات floxed قبلمعشوقة = "XREF"> 12).
- إعداد لوحة 12-جيدا مع MEFS DR4 تعامل ميتوميسين-C (انظر جدول المواد) قبل يوم واحد من العزلة الكيسة.
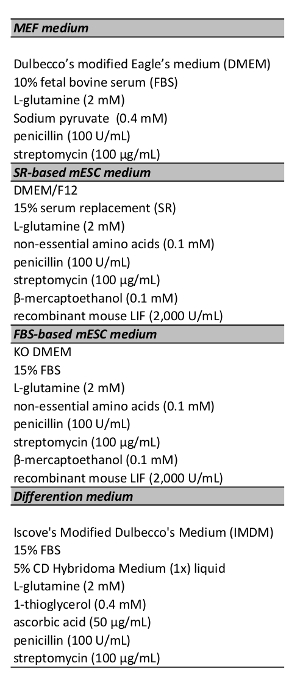
الجدول 1. وسائل الإعلام الثقافة. تم تخزين جميع وسائل الإعلام في 4 درجات مئوية ودرجة حرارة إلى 37 درجة مئوية مدة 30 دقيقة قبل الاستخدام.
2. الجيل من ناقلات استهداف-RMCE متوافق عن طريق إعادة التركيب الاستنساخ
- استنساخ الإنقاذ يبني في ناقلات إعادة التركيب متوافق باستخدام انزيم التقييد (RE) القائم أو 24 تقنيات الاستنساخ PCR القائم. تأكد من أن cDNAs تحتوي على رامزة توقف.
- تصميم AttB الموسومة الاشعال 24. تأكد من أن التمهيدي إلى الأمام يحتوي على العناصر التالية: امتداد GGGG، وهو موقع AttB1، والربط، وهو تسلسل كوزاك، وحوالي 25 النيوكليوتيدات من [كدنا الإنقاذ (بدءا ATG به). تأكد من أن التمهيدي العكسي لديه تركيبة مشابهة: امتداد GGGG، وهو موقع AttB2، والربط، وحوالي 25 مجلس التوحيد الوطنىleotides من [كدنا الإنقاذ (تكملة العكسي).
- تضخيم [كدنا الإنقاذ عبر PCR للحصول كدنا] يحيط AttB.
- إجراء رد فعل 10 ميكرولتر BP مع 100 نانوغرام من [كدنا يحيط AttB-و 150 نانوغرام من ناقلات المانحين إعادة التركيب متوافق، والذي يحتوي على الجينات كانامايسين المقاومة.
- تحويل 5 ميكرولتر من خليط من BP في الحرارة صدمة المختصة MC1061 الإشريكية القولونية (إي كولاي) البكتيريا (مماثلة لتلك التي وصفها في الخطوة 2.3).
- تحديد المستعمرات التي تحتوي على إنقاذ الناقلة التي تحتوي على [كدنا الصحيحة (على غرار تلك التي وصفها في الخطوة 2.4)
- إجراء 10 ميكرولتر LR رد فعل باستخدام 100 نانوغرام من إنقاذ ناقلات التي تحتوي على كدنا]. 150 نانوغرام من رفعه لجنة المساواة العرقية ناقلات pRMCE-DV1 11 (LMBP 8195)؛ و2 ميكرولتر من مزيج recombinase، والذي يحتوي على إنزيم مدمج ترميز فج وexcisionase والبكتيريا عاملا المضيف تكامل. احتضان لمدة 2 ساعة عند 25 ° C.
ملاحظة: رد فعل LR هو إعادة التركيب يتفاعلأيون التي يتم فيها معاد استنساخ دخول تحتوي على مواقع attL وناقلات جهة التي تحتوي على مواقع ATTR من مزيج انزيم clonase LR. وهذا يؤدي إلى استنساخ التعبير التي تحتوي على مواقع attB المرافقة الجينات في المصالح. - تحويل 5 ميكرولتر من خليط LR في MC1061 E. البكتيريا القولونية الحرارة صدمة المختصة.
- إضافة 5 ميكرولتر من خليط LR لمضلع، متجنب، أنبوب 2 مل المسمار الحد الأقصى مع 40 ميكرولتر من البكتيريا القولونية E. الحرارة صدمة المختصة واحتضان لمدة 20 دقيقة على الجليد. احتضان لمدة 5 دقائق عند 37 درجة مئوية.
- إضافة 1 مل من مرق لوريا (LB) المتوسطة واحتضان لمدة 1 ساعة عند 37 درجة مئوية. لوحة 50 ميكرولتر على الأمبيسلين (الأمبير؛ 100 ميكروغرام / مل) التي تحتوي لوحات أجار وتنمو بين عشية وضحاها في 37 ° C.
- تحديد المستعمرات مع ناقلات استهداف الصحيح.
- اختيار 5 المستعمرات بشكل عشوائي باستخدام طرف P200. نقل معلومات سرية إلى أنبوب اختبار يحتوي على الزجاج 2-5 مل من LB المتوسطة وتنمو بين عشية وضحاها في 37 ° C.
- السابقالمسالك الحمض النووي البلازميد من الثقافات البكتيرية باستخدام مجموعات المتاحة تجاريا.
- تحقق لهم باستخدام هضم RE والتسلسل. قطع 0،5-2 ميكروغرام البلازميد باستخدام 0.2 ميكرولتر من RE (20 U / ميكرولتر) و 1 ميكرولتر من العازلة 10X المقابلة في رد فعل 10 ميكرولتر. احتضان لمدة 1 ساعة على الأقل عند 37 درجة مئوية ومنفصلة على agarose هلام 1٪. حدد للالمستعمرات مع النمط المتوقع لشظايا الحمض النووي.
- تحليل المتجهات وأكد (50 نانوغرام / ميكرولتر) مع Tlox F (ATC ATG TCT GGA TCC CCA TC) وIRES R (GGG GCG غا TTC GAT ATC AAG) الاشعال (5 بمول / ميكرولتر) باستخدام سانجر التسلسل.
3. مسك بوساطة RMCE استهداف الإنقاذ بنيات إلى R26 الحالة رقم
- بدء ثقافة mESCs KO-RMCE متوافق والمرور لهم على الأقل مرتين في MEFS في المتوسط مسك أساس FBS. تقسيم mESCs على مهيلم لوحة 6 جيدا.
- في اليوم التالي، وتجديد الخلايا، في حوالي 50٪ confluency، مع 1.5مل من المتوسط مسك أساس FBS وtransfect في mESCs مع رفعه لجنة المساواة العرقية pRMCE-DV1 استهداف ناقلات تحتوي على كدنا] الإنقاذ.
- جعل مزيج DNA. إضافة 1 ميكروغرام من استهداف ناقلات و 1 ميكروغرام من FLPe التعبير عن البلازميد 25-250 ميكرولتر من المتوسطة DMEM النقي.
- جعل مزيج lipofection. إضافة 7 ميكرولتر من القائم lipofection ترنسفكأيشن الكاشف (على سبيل المثال، Lipofectamine 2000) إلى 250 ميكرولتر من المتوسط DMEM نقية واحتضان لمدة 5 دقائق في درجة حرارة الغرفة (RT).
تم الحصول على RMCE مماثلة تستهدف الكفاءات باستخدام الكواشف القائم على lipofection أخرى (على سبيل المثال، Lipofectamine LTX وEffectene): ملاحظة. - خلط مزيج DNA مع مزيج lipofection واحتضان لمدة 20 دقيقة في RT. ماصة الخليط ترنسفكأيشن على mESCs منتعشة. دوامة بلطف وترك بين عشية وضحاها.
- بعد يوم واحد ترنسفكأيشن، وتقسيم كل mESCs من لوحة 6 جيدا على طبق ثقافة 10 سم، وبها طبقة متموجة من MEFS DR4 وم المستندة إلى FBS 10 مل منESC المتوسطة.
- بعد يومين من ترنسفكأيشن، حدد استنساخ مسك مع الصحيح الصرف كاسيت بوساطة FLPe بإضافة 0.2 ملغ / مل G418 (100X) إلى المتوسطة.
ملاحظة: تأكد منحنى القتل لكل دفعة من G418 لتحديد أقل تركيز من G418 أن يقتل كل mESCs. - تحديث mESCs يوميا مع المحتوية على G418 مسك المتوسطة. يجب أن تظهر المستعمرات بعد 7-10 أيام، بحيث تنتقي وتوسيع هذه كما في الخطوة 1.4.
- تأكيد استنساخ الصحيحة عن طريق PCR 11.
4. تمايز mESCs في الهيئات مضغي (EBS)
- بدء ثقافة mESCs KO مع ثوابت الإنقاذ مدفوعة R26-والمرور لهم على الأقل مرتين في MEFS في المتوسط مسك أساس FBS. تمرير mESCs مرة واحدة على مهيلم 6 لوحات جيدا للتخلص من MEFS.
- يغسل مع برنامج تلفزيوني ويعرض للتريبسين الثقافات مسك ما يقرب من متموجة. نأت لوحة mESCs في التخفيفات مختلفة (1/20 و 1/40) على غير ملتصقة، والحيوانات الأليفة البكتيرية الصفأطباق ري في متوسطة التمايز.
- السماح EBS لتشكيل في هذه الأطباق لمدة 30 يوما. تحديث المتوسطة كل 2-3 أيام باستخدام الإجراء التالي: نقل تعليق EB إلى أنبوب 50 مل، والسماح للEBS تسوية عن طريق الجاذبية، وإزالة طاف، إضافة متوسطة جديدة، ونقل تعليق EB مرة أخرى إلى الصف البكتيرية طبق.
- تحليل mESCs المستهدفة وEBS المناعي والإلكترون انتقال المجهر باستخدام البروتوكولات التي تم وصفها سابقا 12.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
وصفت الإجراء لعزل خطوط KO مسك-RMCE متوافقة في الشكل 2. مطلوبة اثنين من قطعان متتالية للحصول على الكيسات الأريمية KO-RMCE متوافق. أولا، وعبرت الفئران KO متخالف مع الفئران RMCE متوافق للحصول على-RMCE متوافق، الفئران KO متخالف. ثم يتم استخدام هذه الفئران لالتزاوج في الوقت المناسب مع الفئران KO متخالف أخرى للحصول على 3.5 DPC، RMCE متوافق، الكيسات الأريمية KO متماثل. فرصة الحصول على مثل هذا الجنين هو واحد في ثمانية، كما تنبأ به وراثة من...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
لدينا طريقة مسك العزلة هو سهل الاستعمال ولا يتطلب مهارات متقدمة أو المعدات، مثل المجهرية من الكيسات الأريمية. وهكذا، وهذه التكنولوجيا يمكن الوصول إلى نسبة كبيرة من المجتمع العلمي. يمكن لأي شخص من ذوي الخبرة الأساسية ثقافة الخلية نشر الامتداد ICM وإنشاء خطوط mESCs. ومع ذلك، فإن التنظيف والتعامل مع الكيسات الأريمية يتطلب بعض الممارسة. يتم استخدام ماصة الفم لنقل الكيسات الأريمية ويتكون من micropipette، حامل micropipette، وأنابيب، والناطقة باسم الشافطة 28. بال ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
الكتاب ليس لديهم ما يكشف.
شكر وتقدير
نشكر Jinke وD'هونت، فريدريك فان Rockeghem، ناتالي Farla، كيلي ليمير، وRIET دي Rycke حصول على الدعم الفني الممتاز. كما نشكر EEF Parthoens، Evelien فان HAMME، وأماندا جونكالفيس من مرفق Bioimaging الأساسية لمركز أبحاث التهاب للحصول على مساعدة الخبراء التابعة لها. ونحن نعترف أعضاء مجموعتنا البحثية لإجراء مناقشات قيمة. وأيد هذا العمل من قبل سياسة البلجيكي العلوم (Belspo بين الجامعات الجذب البولنديين - جائزة IAP VII-07 DevRepair، https://devrepair.be)، من قبل مؤسسة الملكة إليزابيث الطبي، بلجيكا (GSKE 2008-2010، HTTP: // شبكة الاتصالات العالمية .fmre-gske.be)، ومن قبل تطبيقات البحوث المنسقة (GOA 01G01908) من جامعة غنت، بلجيكا (http://www.ugent.be/en/ghentuniv). SG هو زميل ما بعد الدكتوراه من صناديق البحوث فلاندرز (FWO-V).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| فئران ROSALUC | المصنوعة في المنزل | المنوية المجمدة متوفرة عند الطلب | |
| الفئران R26-iPSC | المصنوعة في المنزل | المنوية المجمدة المتاحة عند الطلب | |
| مسبار السفينة | أدوات العلوم الدقيقة | 10160-13 | للتحقق من وجود سدادات جماع |
| M2 متوسطة | Sigma-Aldrich | M7167 | تجعل aliquots وتخزينها في -20 درجة ؛ C |
| ملقط ناعم (Dumont # 5 ملقط الطالب القياسي) | أدوات العلوم | الدقيقة 11251-10 | رش مع 70٪ EtOH قبل الاستخدام (لا تستخدم الأوتوكلاف) |
| 23 G إبر | Fine-ject | 8697 | |
| 1 مل محاقن | ناعمة | 6680 | |
| 60 مم لوحات بكتيرية (للتنظيف) | Gosselin | BB60-01 | |
| ماصة الفم | المصنوعة في المنزل | انظر المناقشة | |
| الخلايا الليفية الجنينية للفأر (MEFs ، TgN (DR4) 1 سلالة Jae) | ATTC | SCRC-1045 | |
| TgN (DR4) 1 Jae mice | The Jackson Laboratory | 3208 | |
| Mitomycin C & nbsp ؛ | Sigma-Aldrich | M0503 | |
| محلول ملحي مخزن بالفوسفات (PBS) بدون كالسيوم أو مغنيسيوم | Gibco | 14190-094 | |
| Tg (DR4) 1Jae / J الفئران | JAX | 3208 | التي تحتوي على أربعة جينات قابلة للاختيار من قبل الأدوية و DR4 MEFS يمنح مقاومة للنيومايسين والبورومايسين والهيجروميسين و 6-ثيوغوانين |
| 0.1٪ جيلاتين | سيجما ألدريتش | G1393 | قم بإذابة 0.5 جم في 500 مل من الماء المقطر والأوتوكلاف وتخزينه في درجة حرارة 4 درجات مئوية. |
| التربسين (0.25٪) | جيبكو | 25200-056 | |
| 2 & M pluripotin | كايمان كيماويات | 10009557 | |
| pRMCE-DV1 | BCCM / LMBP مجموعة | LMBP 08870 | عام متاح من مجموعة BCCM / LMBP (http://bccm.belspo.be) |
| مجموعة pRMCE-DV1 | BCCM / LMBP المقطوعة | LMBP 08195 | متاح من مجموعة BCCM / LMBP (http://bccm.belspo.be) |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| صدمة حرارية مختصة DH5 & alpha البكتيريا | صنع في المنزل | ||
| Gateway pDONR221 vector | Thermo Fisher | 12536-017 | يحتوي على جين مقاومة الكاناميسين |
| BP clonase II مزيج | Thermo Fisher | 11789-020 | |
| LR clonase II mix | Thermo Fisher | 11791-020 ؛ | |
| مرق لوريا (LB) | |||
| أمبيسيلين | |||
| محلل الحمض النووي للأنظمة الحيوية التطبيقية 3730XL | Thermo Fisher | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Lipofectamine 2000 كاشف التعداء | Thermo Fisher | 11668027 | |
| Lipofectamine LTX كاشف التعداء | Thermo Fisher | 15338100 | |
| كاشف | تعداء EffecteneQiagen | 301425 | |
| GATEWAY pENTR 1A vector | Thermo Fisher | A10462 | متوافق مع إعادة التركيب ناقلات |
| الفأر أحادي النسيلة مضاد للجسم المضاد p120ctn | مختبرات نقل BD | 610134 | |
| الفأر أحادي النسيلة المضاد للأجسام المضادة | BD مختبرات نقل التنبيغ | 610181 | |
| < قوية > معدات عامة < / قوية> | |||
| تشريح معقمة | مقص وملقط ناعم لتشريح الرحم | ||
| الماصات المعقمة: 5 مل و 10 مل و 25 مل | |||
| طرد مركزي مخروطية 15 مل و 50 مل ألواح | |||
| ثقافة 96 بئر قاع على شكل حرف V وقاع مسطح) ؛ | |||
| أطباق الاستزراع: 24 بئرا و 12 بئرا و 6 آبار ماصات | |||
| متعددة القنوات (إلى ماصة 30 و 50 و 100 و 200 مو ؛ L) | |||
| خزانات معقمة متعددة القنوات الوصول | |||
| إلى تدفق | |||
| الوصول إلى حاضنة عند 37 درجة ؛ C مع 5٪ CO2 | |||
| الوصول إلى المجهر | |||
| الوصول إلى جهاز | |||
| الطاولة الوصول إلى مجهر ستيريو مع الضوء المنقول | |||
| <قوي>ثقافة وسائل الإعلام | |||
| <قوي>MEF متوسط | مخزنة في 4 درجات ؛ C; دافئ لمدة 30 دقيقة عند 37 درجة ؛ C قبل استخدام | ||
| Dulbecco s النسر المعدل s متوسط (DMEM) | Gibco | 41965-062 | |
| 10٪ مصل بقري الجنين (FBS) | سيجما ألدريتش | F-7524 | |
| L-جلوتامين (2 ملليمتر) | جيبكو | 25030-024 ؛ | |
| بيروفات الصوديوم (0.4 مل) | جيبكو | 11360-039 | |
| البنسلين (100 U / mL) | Gibco | 15140-122 ؛ | |
| الستربتومايسين (100 & ميكرو; g / mL) | Gibco | 15140-122 ؛ | |
| <قوي> المستندة إلى SR mESC متوسطة< / em>< / strong> | مخزنة في 4 درجات ؛ C; دافئ لمدة 30 دقيقة عند 37 درجة ؛ C قبل الاستخدام | ||
| DMEM / F12 | Gibco | 31330-038 | مختلطة بنسبة 1: 1 |
| ٪ استبدال المصل بالضربة القاضية (SR) | Gibco | 10828 &ndash ؛ 028 | |
| L-الجلوتامين (2 مل) | Gibco | 25030-024 ؛ | |
| 0.1 ملي مولار من الأحماض الأمينية غير الأساسية | Gibco | 11140-050 | |
| البنسلين (100 U / mL) | Gibco | 15140-122 ؛ | |
| الستربتومايسين (100 & ميكرو; g / mL) | Gibco | 15140-122 ؛ | |
| β-mercaptoethanol (0.1 mM) | سيجما ألدريتش | م 3148 | |
| 2,000 وحدة / مل ماوس مؤتلف LIF ؛ | (مرفق خدمة البروتين IRC / VIB) | ||
| <قوي >< م > FBS القائم على وسيط mESC (على غرار وسيط mESC المستند إلى SR) < / em >< / strong > | المخزن في 4 درجة ؛ C; دافئ لمدة 30 دقيقة عند 37 درجة ؛ ج قبل الاستخدام | ||
| Knockout DMEM | Gibco | 10829-018 | |
| 15٪ FBS | Hyclone | SH30070.03E | |
| Differention Medium< / em>< / strong> | المخزنة في 4 درجات ؛ C; دافئ لمدة 30 دقيقة عند 37 درجة ؛ C قبل الاستخدام | ||
| Modified Dulbecco's Medium (IMDM) من Iscove | Gibco | 21980-032 | |
| 15٪ FBS | Hyclone | SH30070.03E | |
| 5٪ CD Hybridoma متوسط (1x) سائل | جيبكو | 11279-023 | |
| 2 ملي مولار L-الجلوتامين | جيبكو | 25030-024 | |
| 0.4 ملي مولار 1-ثيوجلسرين | سيجما ألدريتش | M-6145 | |
| 50 مو ؛ جم / مل حمض الأسكوربيك | سيجما ألدريتش | A-4544 ؛ | |
| البنسلين (100 U / mL) | Gibco | 15140-122 ؛ | |
| الستربتومايسين (100 & ميكرو; g / mL) | Gibco | 15140-122 ؛ | |
| <قوي><إم>2i | |||
| 1 & mu; مثبط إرك PD0325901 | أكسون ميدشيم | أكسون 1408 | |
| 3 & مثبط M Gsk3 CHIR99021 | Axon Medchem | Axon 1386 |
المراجع
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
