تهدف هذه المراجعة إلى استكشاف الدور الميكانيكي لأنكيرين 1 (TRPA1) في مسببات CIPN وتقييم إمكاناته كهدف علاجي للتدخل المناعي المعدل والمضاد للالتهابات.
مقالة مراجعة
TRPA1 في الاعتلال العصبي المحيطي الناتج عن العلاج الكيميائي: هدف واعد للتعديل المناعي والعلاج المضاد للالتهابات
في هذه المقالة
ملخص
الملخص
الاعتلال العصبي المحيطي الناتج عن العلاج الكيميائي (CIPN) هو حالة سريرية شائعة وخطيرة تحدث عندما يتسبب عامل العلاج الكيميائي في تلف الجهاز العصبي الطرفي، وغالبا ما يتميز بألم غير طبيعي في الأطراف البعيدة وزيادة الحساسية للمحفزات الساخنة والباردة. ومع ذلك، هناك عدد قليل من العلاجات السريرية ل CIPN، لذا من الضروري تحديد طرق العلاج الفعالة. يمكن تنشيط مستقبل المستقبل العابر المحتمل، وهو مستقبل إصابة، بواسطة الإجهاد التأكسدي، والوسطاء الالتهابيين، وحالات انخفاض حرارة الجسم أثناء المرض وتقدم CIPN. يقوم TRPA1 بتنظيم المسار الالتهابي في الأسفل ويعزز إفراز العوامل الالتهابية والببتيدات العصبية، مما يؤدي إلى اختلال في تنظيم المناعة، مما يؤدي بدوره إلى استجابة التهابية عصبية وإشارات ألم. في هذه الدراسة، تم دراسة دور TRPA1 في التسبب المرضي ل CIPN، وتم التحقق من إمكانية استهداف TRPA1 لعلاج CIPN عن طريق تثبيط الالتهاب العصبي، وتم استكشاف آفاق استخدام مضادات TRPA1 والأعشاب الطبيعية للعلاج السريري ل CIPN.
المقدمة
لا يزال السرطان أحد أكبر تحديات الصحة العامة العالمية1. على الرغم من أن العلاج الكيميائي يلعب دورا حيويا في تحسين البقاء على قيد الحياة من السرطان، إلا أنه غالبا ما يصاحبه آثار جانبية شديدة، من بينها يعد CIPN من أكثر المضاعفات شيوعا وتعقيدا. يتميز CIPN سريريا بألم متماثل، وتنزل، وحساسية غير طبيعية للبرد أو الحرارة في الأطراف البعيدة2، وقد يعاني بعض المرضى أيضا من ضعف في التنسيق الحركي الدقيق3. تختلف معدلات الإصابة المبلغ عنها ب CIPN بشكل كبير، حيث تتراوح بين حوالي 50٪ إلى 90٪، وقد تتطور حوالي 30٪-40٪ من الحالات إلى مضاعفات عصبية مزمنة2، مما يقلل بشكل كبير من جودة حياة المرضى والتزامهم بالعلاج. يتأثر خطر الإصابة ب CIPN بعدة عوامل، منها طريقة الإعطاء (جرعة واحدة، جرعة تراكمية، أو مدة العلاج)، والأدوية المصاحبة، والعمر، وفقر الدم، ومؤشر كتلة الجسم الأعلى، والاعتلال العصبي الموجودمسبقا 2,4,5. تشمل العوامل المضادة للأورم التي يقال إنها تحفز درجات متفاوتة من السمية العصبية المركبات القائمة على البلاتين، والتاكسانات، وقلويات فينكا، ومثبطات البروتيازوم (مثل بورتيزوميب)، وأدوية فوق جينية أو مناعية (مثل الثاليدوميد والليناليدوميد)، ومثبطات الأنابيب الدقيقة (مثل إيريبولين)6.
حاليا، لا تزال الخيارات الدوائية لإدارة CIPN محدودة. توصي الجمعية الأمريكية للأورام السريرية (ASCO) باستخدام دولوكسيتين كالتدخل الدوائي الوحيد الذي يدعم العلاج ب CIPN قائم على الأدلة. أظهرت الدراسات السريرية أن دولوكسيتين فعال في تخفيف الألم المرتبط ب CIPN، حيث تكون فائدته العلاجية أكثر وضوحا في الاعتلال العصبي الناتج عن العوامل الكيميائية المعتمدة على البلاتين، وخاصة الأوكساليبلاتين (OXA)، في حين أن فعاليته في CIPN الناتجة عن عوامل أخرى مثل التاكسانات وقلويات فينكا تبدو أكثر تنوعا عبر الدراسات7. على الرغم من فعاليته المسكنة المثبتة، فإن الفائدة السريرية العامة للدولوكسيتين معتدلة، حيث يوفر بشكل أساسي تخفيف الأعراض بدلا من منع CIPN أو عكس التغيرات المرضية الأساسية. علاوة على ذلك، على الرغم من أن دولوكسيتين عادة ما يكون مقبولا جيدا، إلا أن العلاج قد يصاحبه آثار جانبية خفيفة إلى متوسطة، بما في ذلك التعب والأرق والغثيان، مما قد يحد من الالتزام طويل الأمد لدى بعض المرضى. تستخدم عوامل أخرى شائعة الاستخدام مثل الجابابنتين والبريجابالين لإدارة الأعراض لكنها أظهرت نتائج علاجية غير متسقة أو غير مرضية في CIPN 8,9. لذلك، لا تزال هناك حاجة ملحة لتطوير استراتيجيات وقائية أكثر فعالية وتحديد أهداف علاجية جديدة ل CIPN.
في السنوات الأخيرة، ومع تعمق الفهم لسبب مرض CIPN، جذبت آليات متعددة مثل الاستجابة الالتهابية، والإجهاد التأكسدي، والتغيرات في اللدونة العصبية اهتماما متزايداتدريجيا 10,11,12. من بين هذه العوامل، يعتبر الإجهاد التأكسدي والالتهاب العصبي من العوامل المركزية في بدء وتقدم الإصابة العصبية في CIPN. ومن المهم أن قناة TRPA1، وهي قناة أيونية حساسة للأكسدة والاختزال تعبر عنها بكثرة في الخلايا العصبية الحسية، برزت كوسيط جزيئي رئيسي يربط الإجهاد التأكسدي والإشارات الالتهابية بفرط إثارة الخلايا العصبية وفرط حساسية الألم13,14. على عكس TRPV1، الذي يستشعر بشكل أساسي الحرارة السامة، وTRPM8، الذي يكتشف محفزات البرد، يتميز TRPA1 بحساسيته العالية لمختلف المستقلبات المؤكسدة والكهروفيلية مثل 4-هيدروكسي نونينالي (4-HNE)15. عادة ما يتضمن تنشيط TRPA1 تعديلا تساهميا لبقايا السيستين الحرجة16، وهي آلية فريدة تضع TRPA1 كجسر جزيئي حيوي يربط بين الإجهاد التأكسدي الناجم عن العلاج الكيميائي وتوتر بيروكسيد الدهون وتطور فرط الحساسية للألم. علاوة على ذلك، أظهرت عدة دراسات على الحيوانات تورطا وظيفيا ل TRPA1 في الألم العصبي الناتج عن العلاج الكيميائي. على وجه الخصوص، في نماذج الاعتلال العصبي الناتجة عن OXA، يخفف الاستئصال الجيني أو الحجب الدوائي ل TRPA1 بشكل ملحوظ من الألودينيا الباردة والميكانيكية، مما يشير إلى مساهمة حاسمة ل TRPA1 في مسببات مرض CIPN17,18.
تحديدا، TRPA1 هو قناة أيونية حساسة للأكسدة والاختزاز تعبر عنها بشكل كبير في الخلايا العصبية الحبالية المحيطية. غالبا ما تسبب العوامل الكيميائية خللا في وظيفة الميتوكوندريا، والإجهاد التأكسدي، وتأكسد الدهون في الخلايا العصبية، مما يؤدي إلى تراكم مفرط لأنواع الأكسجين التفاعلية (ROS) ومنتجات أكسدة الدهون مثل 4-HNE. يمكن لهذه الجزيئات التفاعلية تعديل بقايا السيستين الرئيسية ل TRPA1 بشكل تساهمي أو تغيير عتبة تنشيطها، مما يؤدي إلى فتح القنوات، وتدفق Ca²⁺، وإزالة استقطاب الخلايا العصبية، مما يعزز انتقال الألم والإشارات الالتهابية 19,20,21. أظهرت الدراسات السابقة أيضا أن TRPA1 حساس للبرد ويمكن تنشيطه بواسطة وسطاء التهابيين داخليين، مما يساهم في تطور فرط حساسية الألم الناتج عن البرد22. بالإضافة إلى ذلك، أظهر أن TRPA1 يعمل كقناة أيونية حساسة للميكانيكي يتم تعديل نشاطها بواسطة حالة الأكسدة الخلوية الاختزالية، حيث يشارك في الألم الميكانيكي غير الطبيعي وفرط الحساسية22,23. بعيدا عن الخلايا العصبية، يعبر عن TRPA1 أيضا في أنواع متعددة من الخلايا المناعية، حيث يقوم تنشيطه بتنظيم إطلاق السيتوكينات وتسلسلات الالتهاب، مما يزيد من الالتهاب العصبي المحيطي24. بشكل مجتمع، تؤسس حساسية البرد، والحساسية الميكانيكية، واستجابة TRPA1 للأكسدة والاختزاز ارتباطا ميكانيكيا واضحا بين الإجهاد التأكسدي الناتج عن العلاج الكيميائي وعمليات الألم المرضية الناتجة، مما يساهم في بدء وصيانة CIPN. وبناء عليه، قد يمثل استهداف TRPA1 لتعطيل الدورة المفرغة للإجهاد التأكسدي والسمية الالتهابية العصبية استراتيجية علاجية واعدة لإدارة الألم العصبي المحيطي الناتج عن العلاج الكيميائي. في الدراسات الحالية، تم التحقق من استراتيجيات التدخل التي تستهدف TRPA1 عبر عدة أنظمة نموذجية. في المختبر، تستخدم زراعة الخلايا العصبية DRG مع تصوير الكالسيوم عادة للتحقق من تأثير تنشيط TRPA1 على الإثارة العصبية الناتجة عن العلاج الكيميائي25. في الجسم الحي، يتم تحفيز CIPN عادة في القوارض باستخدام OXA أو باكليتاكسيل أو بورتيزوميب، يليه تثبيط دوائي أو جيني ل TRPA1 وتقييمات سلوكية لاحقة مثل فرط الحساسية الميكانيكيةللبرد والميكانيكي 17,26,27. على المستوى العلاجي، أظهرت مضادات TRPA1 فعالية في تخفيف الألم العصبي في النماذج ما قبل السريرية28,29. مجتمعة، توفر هذه النتائج أساسا تجريبيا قويا للأبحاث الانتقالية التي تستهدف TRPA1 كاستراتيجية علاجية ل CIPN.
كشفت الأبحاث الحالية بالفعل عن وجود صلة محتملة بين TRPA1 وCIPN. ومع ذلك، ركزت هذه الدراسات بشكل رئيسي على التأثير المباشر ل TRPA1 على انتقال إشارة الألم ودوره المحلي في الاستجابة الالتهابية. ومع ذلك، لا يزال هناك نقص في البحث المنهجي والاستكشاف العميق للآليات التي يضبط بها TRPA1 الاستجابات المناعية للتأثير على العملية المرضية العامة ل CIPN. لذلك، تناقش هذه المقالة الآليات المحتملة ل CIPN، مع التركيز على استكشاف دور TRPA1 في تطور أمراض CIPN. كما يتم تلخيص الوضع الحالي للأبحاث حول مضادات TRPA1 والأعشاب الطبيعية للتحقق من جدوى تثبيط TRPA1 لإنتاج تأثيرات مناعية مضادة للالتهابات لعلاج CIPN. تكمن ابتكارات هذا المقال في دراسة دور TRPA1 بشكل منهجي في مسببات مرض CIPN من منظور مناعي-تنظيمي، متغلبا على قيود البحث السابقة التي كانت تركز فقط على تأثيراته في الخلايا العصبية أو الالتهاب الموضعي. بالإضافة إلى ذلك، يوفر أهدافا جديدة ودعما نظريا لتطوير أدوية لعلاج CIPN، ذات أهمية علمية كبيرة وقيمة تطبيقية سريرية.
مراجعة ومنظور
1. الآليات المحتملة ل CIPN
آلية مرضية CIPN معقدة وترتبط بخلل الميتوكوندريا الناتج عن العلاج الكيميائي بالأدوية الكيميائية، والإجهاد التأكسدي، واضطرابات الجهاز المناعي، واضطراب تنظيم قنوات الأيونات، وتلف عصبون العقدة الجذرية الظهرية (DRG)، وتعطيل الهيكل الخلويالعصبي 2,30,31,32,33,34,35,36,37,38، 39، 40، 41، 42. يقدم الجدول 1 نظرة عامة على الآليات الممرضة المحددة المشاركة في CIPN.
- خلل الميتوكوندريا والإجهاد التأكسدي
العوامل الكيميائية العلاجية تحفز تغيرات شكلية في الميتوكوندريا، واضطرابات حيوية، وإنتاج مفرط ل ROS، مما يؤدي إلى تلف هيكلي الميتوكوندريا، وضعف وظيفي، وإجهاد تأكسدي 12,43. تنشط هذه الأحداث الخلايا المناعية، وترفع مستويات السيتوكينات الالتهابية، وتحفز مسارات الإشارات الالتهابية، مما يساهم في نهاية المطاف في تطوير CIPN. على وجه التحديد، تشكل العوامل الكيميائية الكيميائية القائمة على البلاتين مقاربات الحمض النووي البلاتيني التي تتجمع في DRG، حيث ترتبط بالحمض النووي النووي (nDNA) والحمض النووي الميتوكوندري (mtDNA). هذا يعزز الربط المتبادل، ويغير بنية وتخليق الحمض النووي النووي، ويحفز تلف الحمض النووي والميتوكوندريا، ويعزز إنتاج ROS، وينشط قنوات مستقبلات الإصابة، ويحفز الاستماتة العصبية. هناك أيضا أدلة على أن OXA يسبب ألما عصبيا عن طريق تنشيط الخلايا النجمية وتنظيم السيتوكينات الالتهابية في مسار كيناز البروتين المنشط بالميتوجين (MAPK).
بالإضافة إلى المركبات القائمة على البلاتين، يمكن لعوامل علاجية كيميائية أخرى أن تؤثر سلبا على سلامة الميتوكوندريا من خلال آليات متنوعة. يتداخل باكليتاكسيل مع النقل المحوري والميتوكوندريا، مما يؤدي إلى فتح مسام الانتقال النفاذية للميتوكوندريا (mPTP). يؤدي هذا الحدث إلى فقدان جهد غشاء الميتوكوندريا، وتوليد مفرط لمتلازمة ROS، ونقص ATP، وتدفق الكالسيوم، وتورم الميتوكوندريا. أما بورتيزوميب، فيثبط نشاط البروتيازوم ويعطل توازن البروتين الخلوي، مما يسبب ضررا هيكليا للميتوكوندريا وضعف وظيفي. تظهر هذه التغيرات في تورم الميتوكوندريا والتفريغ، واضطراب تنظيم الكالسيوم، وكبح السلسلة التنفسية، وانخفاض إنتاج ATP، وتراكم ROS. علاوة على ذلك، يثبط فينكريستين (VCR) بلمرة الأنابيب الدقيقة، مما يعيق نقل الميتوكوندريا عبر المحاور العصبية ويؤدي لاحقا إلى انخفاض جهد الغشاء، واضطراب توازن الكالسيوم، واستثارة عصبية غير طبيعية. تسلط هذه العوامل مجتمعة الضوء على الدور المركزي لخلل الميتوكوندريا في التأثيرات العصبية السامة للأدوية الكيميائية 41,44,45,46,47.
وبالمثل، يعمل خلل الميتوكوندريا كمنظم مركزي للإشارات الالتهابية، بينما يؤدي الالتهاب بدوره إلى تفاقم تلف الميتوكوندريا، مما يخلق دورة مفرغة من السمية العصبية30,31. ومن الجدير بالذكر أن ROS الناتج خلال هذه العملية ينشط مباشرة قناة الأيونات الحساسة للأكسدة والاختزاز TRPA1، مما يسبب تدفق الكالسيوم، وفرط الإثارة العصبية، والأعراض المميزة المرتبطة ب CIPN مثل البرد ومرض الألودينيا الميكانيكية. لذا، يعمل الإجهاد التأكسدي كنقطة اتصال محورية تربط بين تلف الميتوكوندريا، وتنشيط TRPA1، وسبب مرض CIPN. يوضح الشكل 1 الآليات التي تساهم بها خلل وظيفة الميتوكوندريا والإجهاد التأكسدي في تطور CIPN. - الشذوذات في الجهاز المناعي
- التفاعلات المناعية العصبية
تلعب التفاعلات المناعية العصبية دورا حيويا في تطور واستمرارية CIPN. تشير الأدلة المتزايدة إلى أن التواصل بين الجهاز العصبي والجهاز المناعي يساهم بشكل كبير في سبب مرضه. العوامل الكيميائية العلاجية تحفز إجهاد خلوي وإصابات في المحور، مما يؤدي إلى إطلاق أنماط جزيئية مرتبطة بالضرر (DAMPs) تنشط إشارات المستقبل الشبيه ب Toll 4 (TLR4) على الخلايا البلعمية والخلايا الدبقية. يعزز هذا التنشيط استقطاب البلاعم M1 وإفراز الكيموكينات مثل CCL2 وCXCL10، التي تستقطب الخلايا اللمفاوية التائية CD4+ وCD8+ وخلايا B إلى DRG، مع تقليل عدد الخلايا التائية المضادة للالتهابات48، 49، 50، 51. على الرغم من أن العدلات عرضة بشدة للتأثيرات السامة للعلاج الكيميائي، مما يؤدي إلى العدلات الجهازية، فقد أبلغت عدة دراسات عن زيادة في تنشيط وتسرب العدلات إلى الجهاز العصبي المحيطي وDRG أثناء الاعتلال العصبي الناجم عن العلاج الكيميائي32. تنظم الخلايا البدينة (MCs) الاستجابات الالتهابية بشكل أكبر من خلال تجنيد الخلايا المناعية وإطلاق مجموعة متنوعة من السيتوكينات الالتهابية. بالإضافة إلى ذلك، يمكن للسيتوكينات المضادة للالتهاب أن تثبط نشاط الخلايا القاتلة الطبيعية (NK)، مما يزيد من التهاب الأعصاب والإجهاد التأكسدي وبالتالي يعزز تقدم CIPN52.
يمكن للعوامل الكيميائية أيضا تغيير تعبير الجينات المرتبطة بالوظائف المناعية والخلايا العصبية في الخلايا العصبية الحسية. على سبيل المثال، يرفع جهاز VCR تعبير عامل النسخ المنشط 3 (ATF3) ونيوروتنسين (Nts)، مما يضبط إفراز الكيموكينات ويعزز تجنيد الخلايا المناعية إلى DRG، مما يؤثر بدوره على الاستجابة الالتهابية العصبية. ينظم OXA تعبير البروستاجلاندين-H2 D-إيزوميراز (Ptgds) وجين المضيف النووي النووي الريبي الصغير 1 (Snhg1)، اللذين يشاركان في تخليق الوسطاء الالتهابيين وتعديل اللدونة العصبية، مما يؤثر على استثارة الخلايا العصبية ونقل إشارات الألم. على النقيض من ذلك، يغير السيسبلاتين (CDDP) تعبير الليبوكالين-2 (Lcn2) وصندوق الهوميوبكس 2 لإصبع الزنك (Zfhx2)، مما يعطل التوازن الأيضي العصبي وتنظيم النسخ، وبالتالي يعزز الالتهاب العصبي وخلل الوظائف العصبية53. بشكل عام، يكشف اضطراب هذه الملفات البيانية للتعبير الجيني تحت ضغط العلاج الكيميائي عن التفاعل المعقد بين إصابة الخلايا العصبية وتنشيط المناعة أثناء المرض لمرض CIPN.
علاوة على ذلك، يعبر عن TRPA1 ليس فقط في الخلايا العصبية الحسية بل أيضا في الخلايا المناعية مثل البلعم والMCs، حيث يتوسط في إطلاق السيتوكينات الالتهابية. قد يكون هذا التعبير العصبي المزدوج والجهاز المناعي ل TRPA1 حلقة رئيسية جزيئية تدفع التداخل المناعي العصبي والالتهاب الكامنين وراء CIPN. - تفاقم التهاب الأعصاب
تعدل العوامل الكيميائية العلاجية تنشيط وإفراز الوسيط المناعي من خلايا الدبقية الأقمارية (SGCs) في DRG، والدبقية الصغيرة والخلايا النجمية في الحبل الشوكي، وخلايا شوان في المحاور العصبية54. تنشيط الخلايا المناعية يزيد من مستويات السيتوكينات المضادة للالتهابات، مثل عامل نخر الورم-ألفا (TNF-α)، الإنترلوكين-1 بيتا (IL-1β)، الإنترلوكين-6 (IL-6)، الإنترلوكين-8 (IL-8)، الإنترلوكين-20 (IL-20)، التي تعزز الالتهاب العصبي وتحسس الخلايا العصبية؛ وعلى العكس، يتم كبح تعبير السيتوكينات المضادة للالتهابات مثل الإنترلوكين-10 (IL-10) والإنترلوكين-4 (IL-4)، مما يعيق حل الالتهاب. بالتوازي، تساهم الكيموكينات مثل CCL2 وCXCL1 وCXCL12 وCX3CL1 وCCL3 في تجنيد الخلايا المناعية والتفاعلات بين الخلايا الدبقية. تنشط هذه التغيرات مجتمعة مسارات الإشارات الالتهابية الرئيسية مثل MAPK والعامل النووي kappa-محسن السلسلة الخفيفة لخلايا B المنشطة (NF-κB)، مما يعزز إنتاج السيتوكينات وفرط الإثارة العصبية 54,55,56,57,58,59. يوضح الشكل 2 الآليات التي من خلالها اضطراب تنظيم الجهاز المناعي يحفز CIPN.
ومن المهم أن الدراسات الحديثة أظهرت أن TRPA1 يعمل كمؤثر ومضخم حاسم لهذه التسلسلات الالتهابية. يمكن للسيتوكينات المضادة للالتهابات والوسائط المؤكسدة أن تحسس أو تنشط مباشرة قنوات TRPA1 على الخلايا العصبية الحسية، مما يربط الالتهاب العصبي بزيادة استثارة الخلايا العصبية وفرط حساسية الألم في CIPN60,61.
- التفاعلات المناعية العصبية
- اختلال تنظيم قنوات الأيونات
- قنوات البوتاسيوم
تحفز العوامل الكيميائية استجابة التهابية عصبية، مما يؤدي إلى تعبير شاذ لقنوات Kir4.1، مما يعزز تنشيط الخلايا العصبية العصبية العصبية، وزيادة تنظيم بروتين الحمض الليفي الدبقي (GFAP)، وإفراز السيتوكينات المضادة للالتهابات (مثل TNF-α وIL-6). هذا يزيد من استثارة خلايا DRG ويحفز CIPN33. - قنوات TRP
تشارك قنوات TRP في الاستجابة الالتهابية والألم العصبي المرتبط ب CIPN ويمكن تنشيطها بواسطة الإجهاد التأكسدي الناتج عن العلاج الكيميائي. من بينها، قناة TRPA1، التي تتمركز بشكل رئيسي في الخلايا العصبية الحسية، تتوسط الالتهاب العصبي عن طريق إطلاق ببتيدات العصبية مثل الببتيد المرتبط بجين الكالسيتونين (CGRP) والمادة P (SP)، التي تعزز تجنيد الخلايا المناعية إلى مواقع الإصابة. وفي الوقت نفسه، يعبر عن TRPA1 أيضا في الخلايا الدبقية والخلايا المناعية، حيث يحفز تنشيطه إطلاق السيتوكينات المضادة للالتهابات والكيموكينات، مما يعزز استنشاق الخلايا المناعية ويضخم الاستجابة الالتهابية. بشكل عام، يعمل TRPA1 كجسر حيوي بين الجهاز العصبي والجهاز المناعي، ويساهم في زيادة الالتهاب وفرط الحساسية العصبية في CIPN. لذلك، قد يخفف مضاد TRPA1 الألم من خلال التعديل المناعي العصبي المزدوج عن طريق تثبيط إطلاق CGRP و SP، وتقليل الالتهاب العصبي وتجنيد الخلايا المناعية، وخفض مستويات السيتوكين المضادةللالتهابات 62.
أفاد سينغ وآخرون أن علاج OXA زاد من التعايش المشترك بين فانيلويد 1 (TRPV1) والمستقبل العابر M8 (TRPM8) مع TRPA1 في DRGs لدى الفئران، مما أدى إلى زيادة سلوكيات الألم العصبي. ومن الجدير بالذكر أن TRPA1 وTRPV1 يشتركان في التداخل الوظيفي في إشارات الألم الناتج عن العلاج الكيميائي؛ ومع ذلك، تركز التطبيقات السريرية الحالية بشكل رئيسي على الكابسيسين المنشط TRPV1، الذي يخفف الألم العصبي عن طريق إزالة التحسس لمستقبلات الألم التي تعبر عن TRPV134. يوفر هذا رؤى لتطوير استراتيجيات مسكنات الألم المستقبلية التي تستهدف TRPA1. يعمل TRPA1 بشكل جماعي كمدمج حيوي للإجهاد التأكسدي، وتنشيط المناعة، وإشارات الألم، مما يجعله هدفا واعدا لكل من العلاجات المسكنة والمضادة للالتهاب في CIPN.
- قنوات البوتاسيوم
- إصابة عصبية DRG
- الضرر العصبي المباشر
يعد DRG الموقع الرئيسي المتأثر ب CIPN، لكن آليات تلف الخلايا العصبية تختلف بين العوامل الكيميائية العلاجية. يوضح الشكل 3 المسارات المميزة المشاركة في إصابة الخلايا العصبية ب DRG الناتجة عن أدوية مختلفة. على سبيل المثال، يعزز PTX تسرب البلاعم إلى DRG، مما يقلل لاحقا من عدد ألياف الأعصاب داخل الجلد (IENFs) ويسرع تقدم CIPN35. تتراكم العوامل القائمة على البلاتين في خلايا DRG، مما يسبب خللا في وظيفة الميتوكوندريا، وزيادة توليد ROS، واستماتة الخلايا العصبية. الثاليدوميد يمكن أن يسبب ضررا عصبيا في DRG بشكل مباشر. علاوة على ذلك، تغير العديد من العوامل الكيميائية تعبير ووظيفة قنوات أيونات الصوديوم والبوتاسيوم والكالسيوم، مما يؤدي إلى فرط استثارة الخلايا العصبية36,37. يؤدي اضطراب هياكل الأنابيب الدقيقة في DRG إلى إعاقة النقل المحوري وتحفيز التنكس الواليري، مما يؤدي في النهاية إلى فقدان ألياف الأعصاب وضعف النقل العصبي38. - الضرر غير المباشر الناتج عن المناعة
بالإضافة إلى السمية العصبية المباشرة، يمكن للعوامل الكيميائية أن تؤذي خلايا DRG بشكل غير مباشر من خلال تنشيط الإشارات المناعية الفطرية. الإصابة الخلوية الناتجة عن هذه العوامل تطلق DAMPs، والتي بدورها تنشط مستقبلات التعرف على الأنماط (PRRs) مثل TLR4 ومستقبل المنتجات النهائية للجليكيشن المتقدم (RAGE). تنشيط هذه المستقبلات يحفز سلاسل التهابية عصبية، ويزيد من استثارة الخلايا العصبية، ويزيد من الألم العصبي39. تشير هذه النتائج مجتمعة إلى أن العوامل الكيميائية العلاجية تحفز إصابة DRG من خلال آليات سامة خلاوية مباشرة ومسارات مناعية غير مباشرة، مما يساهم في بداية وتقدم CIPN.
- الضرر العصبي المباشر
- تعطيل الهيكل الخلوي العصبي
أظهرت دراسات سابقة أن إزالة بلمرة الأنابيب الدقيقة تضعف بشكل مباشر سلامة الهيكل العصبي العصبية وتؤثر على قدرتها على الاستطالة المحورية. يسبب تفكيك الهيكل الخلوي اختلالات على سطح الخلايا العصبية، ويمكن أن تكون هذه التغيرات الميكانيكية سمات فيزيائية مميزة ل CIPN40. كانت دراسة أخرى أجراها Chine وآخرون أول من أثبت أن Hsp27 يمكنه منع CIPN من خلال حماية البنية المحورية. على عكس الآليات المضادة للالتهابات التقليدية، يمارس Hsp27 تأثيرات واقية عصبية من خلال تنظيم مسارات الاستماتة والحفاظ على استقرار الهيكل الخلوي46.
ترتبط قلويدات فينكا (مثل فينكريستين، VCR) تحديدا بنهايات β-تيوبولين، مما يمنع تكوين المغزل والنقل المحوري، مما يؤدي إلى إزالة بلمرة الأنابيب الدقيقة وعيوب نمو العصبوبات40. على النقيض من ذلك، يقوم باكليتاكسيل بتثبيت الأنابيب الدقيقة ويمنع إزالة البلمرة منها، مما يعطل نقل الإشارات الكهربائية ونقل الميتوكوندريا داخل المحاور العصبية، مما يؤدي إلى إزالة الميالين من ألياف الأعصاب الطرفية41. بورتيزوميب، من خلال مسار غير بروتيازومي، يحفز بلمرة الأنابيب الدقيقة بشكل مفرط، ويثبط امتداد العصابات، ويحفز التنكس المحوري42.
تؤدي هذه الأدوية مجتمعة إلى ضعف في نقل المحاور العصبية، وموت الخلايا المبرمجة، وفقدان التوصيل العصبي، مما يشكل الأساس المرضي الأساسي ل CIPN. بالإضافة إلى ذلك، يمنع تنشيط مسار الإشارة RhoA/ROCK/LIMK/cofilin إعادة تشكيل خيوط الأكتين، مما يعيق تجدد المحاورالمحورية 63. يتفاعل اضطراب الهيكل الخلوي أيضا مع عيوب نقل الميتوكوندريا وتنشيط الكالبين، مكونا دورة "هيكل-طاقة-استماتة" مفرغة تسرع تقدم CIPN64.
2. آليات CIPN المرتبطة ب TRPA1
TRPA1 هو قناة كاتيونية غير انتقائية توجد عادة كهوموترايمر في غشاء الخلية. يحتوي على ستة مقاطع عابرة للغشاء (S1-S6) مميزة لقنوات TRP. من بين هذه المناطق، تشكل S1-S4 مجال مستشعر الجهد (VSLD)، بينما تشكل S5 وS6 المسام التي تمر من خلالها الأيونات. هذه المناطق ضرورية لتنشيط القناة ودورها في استشعار المؤلمة والحرارة والمحفزاتالكيميائية. تحتوي المنطقة الطويلة على الطرف الشمالي في TRPA1 على عدة مجالات تكرار أنكيرين (ARDs)، والتي تتوسط التفاعلات مع بروتينات أخرى وتساهم في تنظيم القنوات. تعمل هذه المنطقة أيضا كموقع رئيسي لتعديل الكينازات المشاركة في إشارة الألم66,67. عند الطرف C، يتصل المجال الشبيه ب TRP بمنطقة الأغشية العابرة ويلعب دورا مركزيا في تحديد قنوات القنوات. حركة هذا المجال، إلى جانب إعادة ترتيب S5 و S6، تكمن وراء فتح القناة وتدفق Ca2+، الذي ينشط مسارات الإشارة اللاحقة المرتبطة بالالتهاب والألم68,69. بشكل عام، تعد ARDs، واللولب العابر للغشاء (S1-S6)، والمجال الشبيه ب TRP هي السمات الهيكلية الرئيسية التي تحدد تنشيط TRPA1 ودوره في الألم والإشارات الالتهابية. يوضح الشكل 4 المجالات الهيكلية الرئيسية ل TRPA1 ذات الصلة بتفعيله بواسطة العوامل الكيميائية، بينما يلخص الجدول 2 آليات CIPN المرتبطة ب TRPA1 61,62,70,71,72,73,74,75,76,77,78,79 ,80,81,82,83.
- تنشيط TRPA1 بفعل الإجهاد التأكسدي في CIPN
- يعد الإجهاد التأكسدي سببا رئيسيا في فعالية مضادات الأورام وسمية الأعصاب للأدوية الكيميائية84. يعمل TRPA1 كقناة أيونية حساسة للتكسيد والتحليل الكهربائي ويتم تنشيطها في ظروف الإجهاد التأكسدي المرتفع أثناء العلاج الكيميائي. تقوم الفوسفوليبيدات المؤكسدة (OxPAPCs) وغيرها من أنواع الأكسجين التفاعلي (ROS) بتعديل بقايا السيستين في المجال N-terminal ل TRPA1 بشكل تساهمي، مما ينشط القناة ويعزز تدفق الكالسيوم. يؤدي هذا التنشيط إلى إطلاق الببتيدات العصبية والوسطاء الالتهابيين مثل CGRP وSP، والتي تتوسط انتقال الألم غير الطبيعي والالتهاب العصبي في CIPN61,70. وفي الوقت نفسه، يؤدي الالتهاب الطرفي الناتج عن الأدوية الكيميائية إلى توليد وتراكم مفرط لROS في العقد الحسية، مما ينشط ويرفع من TRPA1، مكونة حلقة تغذية راجعة إيجابية ROS-TRPA1 تعزز فرط الحساسية الالتهابية والميكانيكية85.
يعتمد CIPN الناتج عن CDDP أيضا على هذه الآلية، حيث يعزز CDDP إنتاج ROS في أنسجة الفم، مما ينشط TRPA1 ويؤدي إلى ألم فمي مستمر في الوجه86. وبالمثل، ينظم OXA نشاط TRPA1 عبر آليات متعددة. من ناحية، يقوم OXA بتنشيط TRPA1 مباشرة عبر آلية حساسة للجلوتاثيون، مما يؤدي إلى تحمض السيتوبلازم في خلايا DRG71,87. من ناحية أخرى، يثبط OXA هيدروكسيلاز البروليل (PHD)، مما يمنع هيدروكسيليشن بقايا البرولين في المنطقة الطرفية N من TRPA1، مما يعزز حساسية القناة لROS ويزيد بشكل ملحوظ من استجابتها لمحفزات البرد71. بالإضافة إلى ذلك، ينشط OXA مسار الإشارة p38 MAPK، مما يعزز فرط الحساسية للبرد الناتج عن TRPA188.
قدمت الدراسات الحيوانية أدلة قوية تدعم هذه الآليات. في الفئران البرية المعالجة ب OXA، لوحظت ألودينيا ميكانيكية واضحة وحساسية مفرطة للبرد، في حين تم تخفيف هذه الاستجابات بشكل ملحوظ في فئران TRPA189. تم الحصول على نتائج متسقة أيضا في نموذج يرقات سمك الزرد لتقنية CIPN، حيث عزز تنشيط TRPA1 إنتاج ROS من خلال تعزيز الإجهاد التأكسدي ونقل إشارات الألم، مما حافظ على استجابة الألم90. تشير هذه النتائج مجتمعة إلى أن TRPA1 يعمل كنقطة اتصال حاسمة تربط بين استشعار ROS وتضخيم الألم، مكونة مسارا مركزيا يتوسط من خلاله الإجهاد التأكسدي الألم العصبي في CIPN.
- يعد الإجهاد التأكسدي سببا رئيسيا في فعالية مضادات الأورام وسمية الأعصاب للأدوية الكيميائية84. يعمل TRPA1 كقناة أيونية حساسة للتكسيد والتحليل الكهربائي ويتم تنشيطها في ظروف الإجهاد التأكسدي المرتفع أثناء العلاج الكيميائي. تقوم الفوسفوليبيدات المؤكسدة (OxPAPCs) وغيرها من أنواع الأكسجين التفاعلي (ROS) بتعديل بقايا السيستين في المجال N-terminal ل TRPA1 بشكل تساهمي، مما ينشط القناة ويعزز تدفق الكالسيوم. يؤدي هذا التنشيط إلى إطلاق الببتيدات العصبية والوسطاء الالتهابيين مثل CGRP وSP، والتي تتوسط انتقال الألم غير الطبيعي والالتهاب العصبي في CIPN61,70. وفي الوقت نفسه، يؤدي الالتهاب الطرفي الناتج عن الأدوية الكيميائية إلى توليد وتراكم مفرط لROS في العقد الحسية، مما ينشط ويرفع من TRPA1، مكونة حلقة تغذية راجعة إيجابية ROS-TRPA1 تعزز فرط الحساسية الالتهابية والميكانيكية85.
- دور TRPA1 في تنظيم المناعة والألم الالتهابي
TRPA1 هو قناة كاتيونية غير انتقائية حساسة للأكسدة والاختزال، تعبر عنها في كل من الجهاز العصبي الحسي المحيطي وأنواع مختلفة من خلايا المناعة. يمكن تنعيزه بواسطة إجهادات التأكسد والنتراتيف والألديهيد الناتجة عن العلاج الكيميائي، بالإضافة إلى الوسائط الالتهابية والمحفزات الكهروكيميائية، مما يلعب دورا حيويا في الاستجابات الالتهابية وتحسس الألم أثناء CIPN24,91,92.- ينظم TRPA1 الالتهاب العصبي الناتج عن خلايا المناعة
في الجهاز العصبي الطرفي، يمكن توصيف TRPA1 بشكل أفضل في الخلايا العصبية الحسية DRG، حيث يعمل كوسيط رئيسي للإدراك الألم (nociception). خلال العلاج الكيميائي، يمكن أن تؤدي مستويات ROS، وأنواع النيتروجين التفاعلية (RNS)، ومستقلبات الألدهيد، والتي تنشأ أساسا من الخلايا العصبية المصابة وخلايا شوان المحيطة، إلى تنشيط TRPA1 العصبي بشكل مباشر، مما يؤدي إلى زيادة الإثارة العصبية وفرط الحساسية للألم93. وفي الوقت نفسه، في الخلايا الحسية، أظهرت إشارات TLR4 زيادة من تعبير TRPA1 في خلايا DRG، مما يعزز فرط حساسية الألم94.
بعيدا عن الخلايا العصبية، تعبر خلايا شوان أيضا عن TRPA1، الذي يمكن تنعيله بواسطة الإجهاد التأكسدي. تقوم خلايا شوان المنشطة بتضخيم إشارات ROS وتطلق وسطاء التهابيين، مكونة حلقة تغذية راجعة "خلايا شوان-عصبون-TRPA1" التي تحافظ على الالتهاب العصبي وتساهم في تطوير CIPN72,73. أظهرت الدراسات الحيوانية أن استنزاف البلعم المقيمة في الأعصاب النسا يخفف بشكل ملحوظ من الألم المرتبط بالسرطان الناتج عن تنشيط TRPA1 لخلايا شوان والإجهاد التأكسدي، مما يبرز التفاعل بين خلايا شوان وخلايا الميلويد73.
بالإضافة إلى الخلايا الحسية، يعبر TRPA1 وظيفيا في عدة مجموعات من الخلايا المناعية، بما في ذلك الخلايا البلعمية، خلايا التائية، خلايا NK، وMCs 24,74,95. يمكن لروكس الروبي وRNS والمستقلبات الناتجة عن العلاج الكيميائي تنشيط TRPA1 في هذه الخلايا، مما يؤدي إلى استجابات مناعية متنوعة حسب نوع الخلية91. في البلعميات، يثبط TRPA1 التنشيط الالتهابي، ويعزز نمطا مضادا للالتهابات، ويحد من تسرب البلعم، مما يمارس تأثيرات مضادة للالتهاب وحماية الأنسجة14,96. في الخلايا اللمفاوية، يؤدي تنشيط TRPA1 إلى تثبيط تنشيط الخلايا التائية ووظائف التأثير، مما ينظم سلبا الاستجابات المناعية التي تتوسطها الخلايا التائية97، في حين قد يعزز تدفق Ca2+ بواسطة TRPA1 سمية خلايا NK، مما يعدل الاستجابات الالتهابية العصبية بعد إصابة الأعصاب52,74. في الخلايا البدينة، تم ربط تنشيط TRPA1 بإزالة الحبيبات الناتجة عن التوتر والإشارات الالتهابية، مما ساهم في تضخيم الالتهاب التحسسي والعصبي24,75.
تشير هذه الملاحظات معا إلى أن TRPA1 يعمل كمركز إشارات يربط الخلايا العصبية وخلايا شوان والخلايا المناعية، مع زيادة تنشيط TRPA1 في كل نوع من الخلايا تساهم في بدء وصيانة CIPN. يوضح الشكل 5 الآليات المقترحة للتواصل المناعي العصبي المتداخل وإشارات الألم التي توسطها TRPA1 في CIPN. - TRPA1 في الألم الالتهابي وحساسية الألم المرتبطة ب CIPN
في الجهاز العصبي الحسي، يتمركز TRPA1 بشكل رئيسي في الخلايا العصبية الحسية الأولية في DRG، والعقد الثلاثية التوائم (TG)، والعقد المبهمية (VG). تعزز منتجات الإجهاد التأكسدي، والوسطاء الالتهابيين، وإشارات إنزيم البروتين (PKA/PKC) التي تحفزها العوامل الكيميائية الكيميائية على تعزيز فسفرة TRPA1 ونشاط القناة26. تنشيط القناة يزيد من تدفق Ca2+ داخل الخلية، مما يحفز إفراز الببتيدات العصبية مثل SP، وNEUROKININ A (NK-A)، وCGRP، التي تعزز توسع الأوعية، وتمدد البلازما، وتجنيد الخلايا المناعية، مما يحفز الالتهاب العصبي والتفتيش بالألم62.
في الحالات الالتهابية، تؤدي مستويات مرتفعة من السيتوكينات المضادة للالتهاب (عائلة IL-1، TNF-α، IL-6، IL-8) والكيموكينات (CXCL5/CXCR2) إلى زيادة إنتاج ROS وتنشيط TRPA1، مما يؤدي إلى إزالة استقطاب الغشاء وفرط الإثارة لخلايا DRG، مما يساهم في نهاية المطاف في الألم العصبي. بالإضافة إلى ذلك، ترفع الوسطاء الالتهابيون مثل NGF من تعبير TRPA1، مكونة حلقة تغذية راجعة إيجابية تحافظ على الالتهاب والألم 14,98,99,100. يشارك TRPA1 أيضا في التحسس المحيطي والمركزي، مما يعزز انتقال الألم101.
علاوة على ذلك، يعزز TRPA1 الإشارات الحصية للألم من خلال تعديل المسارات المرتبطة بالالتهابات. يزيد معدل TRPA1 من تدفق Ca2+ وينشط مسار البانكسين-1 (PANX1)، مما يعزز إفراز الأدينوسين ثلاثي الفوسفات (ATP). يعمل ATP خارج الخلية كناقل عصبي، مما يزيد من فرط حساسية الألم102. يمكن للعوامل الكيميائية أيضا تحسيس TRPA1 من خلال تنشيط مستقبلات براديكينين B2 وإشارات PLC/PKCε في الخلايا البدينة، مما يزيد من الألم المرتبط ب CIPN103. وعلى العكس، ثبت أن مركبات الأفيونات مثل اللوبيراميد تثبط نشاط TRPA1 وقناة الصوديوم المحجوزة بالجهد (VGSC)، وتثبط تنشيط الميكرودبقية والإجهاد التأكسدي، وبالتالي تخفف من فرط الألم في CIPN104,105.
باختصار، يعمل TRPA1 كهدف جزيئي رئيسي يربط بين الإجهاد التأكسدي والإشارات الالتهابية في CIPN. من خلال تنسيق التفاعلات ثنائية الاتجاه بين الخلايا المناعية والخلايا الحسية، لا يبدأ TRPA1 الالتهاب وينشر فقط، بل يزيد أيضا من الألم، مما يشكل جسرا حيويا بين تنظيم المناعة، والالتهاب العصبي، وفرط الحساسية تجاه الألم الحسية. - التواصلات المتبادلة عبر قناة الأيونات بواسطة TRPA1 وتحسس الخلايا العصبية في DRG
يعبر عن TRPA1 بشكل كبير في الخلايا العصبية الحسية المصابة، خصوصا في DRG، ويعمل كقناة أيونية رئيسية توسيط CIPN. يضبط استثارة الخلايا العصبية ويعزز نقل الإشارات الحسبية من خلال التفاعلات مع قنوات أيونية متعددة. على سبيل المثال، يمكن أن يعزز تنشيط TRPV1 حساسية TRPA1، وغالبا ما يتم التعبير عن القناتين معا، مما يساهم بشكل تآزري في زيادة التبريد البارد وفرط الألم الميكانيكي76,106. بالإضافة إلى ذلك، يظهر TRPA1 وظائف مكملة مع القناة الحساسة للبرد TRPM8: حيث يتوسط TRPM8 إحساسات تبرد غير ضارة ضمن نطاق 25-28 درجة مئوية، بينما يتم تنشيط TRPA1 تحت 17 درجة مئوية ومسؤول عن اكتشاف المحفزات الباردة الشديدة والسامة. تم ربط التنشيط غير الطبيعي لكلا القناتين بفرط الحساسية للبرد الذي يلاحظ عادة لدى مرضى CIPN77. يمكن للإجهاد التأكسدي الناتج عن العلاج الكيميائي وزيادة نشاط قناة Ca2+ تنشيط قنوات TRPA1 بشكل أكبر، مما يؤدي إلى إطلاق جهد فعل متكرر يعتمد على قنوات Na+ المحجوزة بالجهد (Nav1.7)78,79. علاوة على ذلك، يمكن للZn2+ تنشيط TRPA1 مباشرة لتعزيز إطلاق CGRP80، بينما تمارس قنوات K+ المقيدة بالجهد (Kv7) تأثيرا تنظيميا سلبيا على هذه العملية81. بشكل جماعي، يعزز التفاعل التعاوني بين TRPA1 وقنوات الأيونات الأخرى، بما في ذلك TRPV1 وTRPM8 وCa2+ وNa+ وK+ وZn2+، من الإثارة العصبية ونقلها بالألم في CIPN.
علاوة على ذلك، يمكن لتوازن الرقم الهيدروجيني داخل الخلايا أن يعدل نشاط TRPA1. يؤثر مبادل Na+/H+ 1 (NHE1) على حساسية TRPA1 من خلال تنظيم الرقم الهيدروجيني داخل الخلية. في حالات الإصابة الالتهابية أو الكيميائية، يتفاعل TRPA1 وNHE1 في خلايا DRG 87,107، ويعزز التحمض داخل الخلايا استجابة TRPA1، مما يؤدي إلى زيادة تردد جهد الفعل وزيادة إطلاق الناقلات العصبية مثل الجلوتامات وCGRP82,83. تساهم هذه العملية في الألم الالتهابي وفرط الحساسية للبرد وتزيد من استمرار التهاب الأعصاب. وعلى العكس، فإن تثبيط تعبير أو وظيفة TRPA1 في خلايا DRG يقلل بشكل ملحوظ من انتقال الحساسية الألم والاستجابات الالتهابية العصبية108.
باختصار، يعمل TRPA1 كمركز جزيئي مركزي يربط الإجهاد التأكسدي وإشارات قنوات الأيونات في CIPN. من خلال التداخل المكثف مع قنوات أيونية متعددة وآليات تنظيمية داخل الخلايا، يعزز TRPA1 فرط استشعار الخلايا العصبية الحسية وحساسية الألم المفرطة، ويمثل هدفا جزيئيا حيويا لعلاج الألم المرتبط ب CIPN. يوضح الشكل 6 الآلية التي من خلالها ينظم TRPA1 استثارة الخلايا العصبية ويعزز الإشارات الأنجحية من خلال التفاعلات مع قنوات الأيونات المختلفة.
- ينظم TRPA1 الالتهاب العصبي الناتج عن خلايا المناعة
3. إمكانية استهداف TRPA1 لعلاج CIPN
في القسم السابق، أوضحنا كيف أن TRPA1 هدف رئيسي لتخفيف CIPN من خلال تحفيز استجابة متتالية التهابية عصبية. آلية عمل TRPA1 ذات شقين: من ناحية، يتم تعديل TRPA1 مباشرة بواسطة سلسلة الالتهاب العصبي وتشارك في العملية المرضية ل CIPN؛ من ناحية أخرى، يتفاعل TRPA1 مع الإشارات الالتهابية، والتي بدورها تتوسط الاستجابات العصبية السامة وتزيد من تلف الخلايا العصبية. لذلك، يمكن أن يقلل التثبيط المستهدف ل TRPA1 من الإجهاد التأكسدي والاستجابات الالتهابية العصبية، ويقلل من إشارات الألم، وفي النهاية يحسن الأعراض المرتبطة ب CIPN. يوضح الشكل 7 الآليات المقترحة التي من خلالها يؤدي تثبيط TRPA1، سواء بواسطة مضادات محددة أو عوامل عشبية طبيعية، إلى تخفيف الألم العصبي المرتبط ب CIPN.
- خصم TRPA1
يمكن تنشيط TRPA1 بواسطة مواد خارجية (مثل زيت الخردل والسينمالديهايد) والمواد الداخلية (مثل منتجات الإجهاد التأكسدي والوسطاء الالتهابيين)62 ليسبب الألم والحكة والالتهاب109. لهذا السبب، تم الاعتراف ب TRPA1 كهدف علاجي ذو إمكانيات تطبيقية واسعة، بما في ذلك إدارة الألم، والأمراض الالتهابية، والاضطرابات العصبية. لذلك، فإن البحث وتطوير مضادات TRPA1 أمر بالغ الأهمية.
أظهرت عدة مضادات ل TRPA1 قيمة علاجية محتملة في تخفيف CIPN109,110,111,112,113,114,115,116,117. تشمل آلياتها الأساسية كبح استجابات الإجهاد التأكسدي التي تتتوسط بواسطة TRPA1، وتدفق الكالسيوم، والإشارات الالتهابية العصبية، مما يسبب تأثيرات معاكسة على نشاط TRPA1. في الدراسات ما قبل السريرية، خفف حاصر TRPA1 الانتقائي HC-030031 بشكل ملحوظ من فرط الحساسية الميكانيكية والباردة الناتجة عن OXA وCDDP28. وفي الوقت نفسه، تقدمت مضادات الجيل القادم مثل GRC-17536 وLY-3526318 إلى المرحلة الثانية من التجارب السريرية لاعتلال الأعصاب السكري، والسعال المزمن، والألم العصبي المرتبط بالتهاب المفاصل العظمي، وأظهرت قدرة تحمل جيدة وفعالية أولية109,113.
يقدم الجدول 3 ملخصا لحالة التطور الحالية والتطبيقات السريرية لمضادات TRPA1 الممثلة. توفر هذه الدراسات أدلة سريرية تدعم الإمكانات الترجمية لمضادات TRPA1 في علاج الألم العصبي. ومع ذلك، لا تزال معظم مضادات TRPA1 محدودة بسبب انخفاض التوافر الحيوي وتأثيرات محتملة خارج الهدف 115,118,119، ولم تدخل بعد التقييم السريري الخاص ب CIPN. يجب أن تركز الأبحاث المستقبلية على تحسين انتقائية المركبات والخصائص الدوائية الحركية، بالإضافة إلى تصميم تجارب سريرية تستهدف بشكل خاص CIPN، للتحقق من الأهمية العلاجية لتثبيط TRPA1 في هذا السياق.
بالإضافة إلى العداء المباشر، أظهر تعديل نشاط TRPA1 عبر أهداف جزيئية أخرى واعدا أيضا في CIPN. تمارس مستقبلات سيغما-1 وظائف تنظيمية على مجموعة متنوعة من قنوات الأيونات، وقد ثبت أن مضادات مستقبلات سيغما-1 تثبط بشكل كبير تعبير ووظيفة غشاء البلازما لقنوات TRPA1، مما يمنع تطور أعراض الألم في فئران نموذج CIPN الناجم عن OXA89. أظهرت دراسة أجراها تريفيسان وآخرون أن أعراض فرط الحساسية لفيروس CIPN الناتجة عن البورتيزوميب يمكن الوقاية منها وتخفيفها بفعالية باستخدام مضاد TRPA1 HC-030031 أو مضاد الأكسدة α-ليبويك قبل أو أثناء العلاج الكيميائي120. علاوة على ذلك، في سياق السمية العصبية الناتجة عن الأدوية الكيميائية، تستطيع مثبطات TRPA1 التخفيف من الضرر العصبي عن طريق تقليل الإشارات الالتهابية المعتمدة على الكالسيوم.
باختصار، تلعب مضادات TRPA1 أدوارا مهمة في الوقاية والعلاج من CIPN من خلال تعديل وظيفة هذه القناة وتثبيط نشاطها، إلى جانب آليات أخرى، لتخفيف فرط حساسية الألم وتخفيف تلف الأعصاب. - معدلات نشاط TRPA1 كخيارات جديدة لعلاج CIPN
يشارك TRPA1 في العمليات المرضية ل CIPN من خلال الاستجابة المتسلسلة الالتهابية العصبية والإصابة العصبية السامة، وقد يكون هدفا جديدا لعلاج CIPN.
أظهرت عدة دراسات أن بعض الأعشاب الطبيعية ومكوناتها الفعالة مرتبطة ارتباطا وثيقا بتنظيم نشاط قناة TRPA1 وتظهر تأثيرات بيولوجية مثل مضادات الالتهاب والمسكنات، مما يوفر استراتيجيات محتملة للوقاية وعلاج CIPN. على سبيل المثال، ثبت أن الليكويريتين يمتلك خصائص مضادة للالتهابات بشكل كبير121، بينما يظهر الأليسين قدرة على مسكنات الألم بسبب خصائصه المضادة للأكسدة والالتهابية122; كلا المركبين يشاركان في تعديل نشاط قناة TRPA1. استنادا إلى هذه النتائج، يعتقد أن هذه المركبات الطبيعية قد تخفف من إدراك الألم المرتبط ب CIPN والاستجابات الالتهابية العصبية من خلال تنظيم نشاط TRPA1، مما يمارس تأثيرات علاجية محتملة. كشفت دراسات إضافية أن المنثول يظهر تأثيرا تنظيميا ثنائي الاتجاه على قنوات TRPA1، حيث ينشط TRPA1 عند تركيزات منخفضة بينما يثبط نشاطه عند تركيزات أعلى. لذا قد يؤدي الاستخدام المناسب للمنثول إلى تعديل نشاط TRPA1 لتحقيق تأثيرات مسكنة ومضادة للالتهاب لدى مرضى CIPN123. وبالمثل، تحتوي القرفة، التي تستخدم تقليديا كعلاج تدفئة لتعزيز الدورة الدموية، على السينامالديهايد كمكون نشط رئيسي. أفاد لي وآخرون أن السينامالديهيد ينشط مستقبلات TRPA1، مما يعزز التكوين الحراري في الأنسجة الدهنية البنية وبالتالي يساعد في الحفاظ على درجة حرارة الجسم وتخفيف حساسية البرد124. علاوة على ذلك، يعزز السينامالديهايد الاستجابة المضادة للأكسدة من خلال تنشيط عامل نووي مرتبط بإريثرويد 2 (Nrf2)125. بشكل عام، قد يخفف المنثول، من خلال تثبيط TRPA1 بتركيزات أعلى، من الألودينيا الميكانيكية والباردة المميزة ل CIPN، في حين أن السينامالديهايد، من خلال آلياته المنشطة ل TRPA1 ومضادات الأكسدة التي تتوسطها Nrf2، قد يعاكس الإجهاد التأكسدي الناتج عن العلاج الكيميائي ويحسن من عدم تحمل البرد لدى مرضى CIPN. بالإضافة إلى ذلك، أظهرت البرجينين أحادية الهيدرات، والليغوسترازين، والسايكوسابونين، ومستخلصات الماء من نوتوبتيريجيوم إنسيسوم أنها تقلل من الألم العصبي126,127,128,129.
الجدول 4 يلخص المصادر العشبية الطبيعية للرابطات TRPA1 وآلياتها المحتملة في تخفيف CIPN. تسلط هذه النتائج الضوء على إمكانات مكونات الطب الصيني التقليدي في التخفيف من السمية العصبية في CIPN. على الرغم من تحديد مجموعة متنوعة من المركبات الطبيعية كمعدلات TRPA1 ذات تأثيرات علاجية محتملة، إلا أن معظمها لا يزال في in vitro ومراحل البحث في الحيوانات، والأدلة على فعاليتها في CIPN مستمدة بشكل رئيسي من نماذج ما قبل السريرية. على النقيض من ذلك، فقط المنثول لديه أدلة إثبات المفهوم البشرية محدودة والتجارب السريرية المسجلة الجارية130. تشير هذه النتائج مجتمعة إلى أنه بينما تظهر المنتجات الطبيعية المستهدفة ل TRPA1 وعدا كبيرا في تخفيف السمية العصبية المرتبطة ب CIPN، هناك حاجة إلى دراسات سريرية مصممة بشكل جيد أخرى للتحقق من إمكاناتها الانتقالية وفعاليتها العلاجية.
المعدلات الطبيعية ل TRPA1 التي تم تحديدها من مستخلصات النباتات لا توفر فقط رؤى علاجية جديدة لإدارة الألم، بل تمثل أيضا مصادر طبيعية محتملة لعلاج CIPN. تشير الأدلة المتزايدة إلى أن المركبات الطبيعية يمكن أن تخفف من أعراض السمية العصبية الناتجة عن العلاج الكيميائي عن طريق كبح تنشيط TRPA1 الزائد أو ممارسة تأثيرات تنظيمية ثنائية الاتجاه على القناة، مما يحقق نتائج مسكنة ومضادة للالتهاب. ومع ذلك، وعلى الرغم من إمكاناتها الواعدة قبل السريرية، لا تزال المراجعة السريرية المنهجية غير كافية. علاوة على ذلك، تظهر هذه المركبات عادة خصائص تنظيمية متعددة الأهداف والمسارات، مما يصعب تحديد المساهمة المحددة لتعديل TRPA1 في تأثيراتها العلاجية العامة. يجب أن تركز الدراسات المستقبلية على توضيح الآليات الجزيئية التي تؤثر من خلالها معدلات TRPA1 الطبيعية على CIPN، واستكشاف التفاعلات التآزرية بين TRPA1 وقنوات الأيونات أو مسارات الإشارة الأخرى، وإجراء تجارب سريرية مصممة جيدا لتأكيد فعاليتها وسلامتها. ستكون هذه الجهود ضرورية لتحويل العوامل الطبيعية المستهدفة ل TRPA1 إلى استراتيجيات عملية لإدارة CIPN.
4. النقاش
وفقا لأحدث الإحصائيات من الوكالة الدولية لأبحاث السرطان (IARC)، سيكون هناك ما يقرب من 20 مليون حالة جديدة من السرطان في عام 2022، وحوالي 50٪ من هؤلاء المرضى سيموتون في النهاية بسبب السرطان أو مضاعفاته. تشير توقعات IARC أيضا إلى أن عدد حالات السرطان الجديدة سنويا سيتجاوز 35 مليون في عام 2050. لذلك، يعد السرطان مصدر قلق صحي عام رئيسي على مستوى العالم وأحد المساهمين الرئيسيين في العبء العالمي للمرض1. على الرغم من استمرار البحث والتطوير في العلاجات الجديدة للسرطان (مثل العلاجات المستهدفة والعلاج المناعي)، إلا أن العلاج الكيميائي لا يزال يلعب دورا مركزيا في علاج السرطان. يعد CIPN من الآثار الجانبية الشائعة للعلاج الكيميائي ويؤثر على مسار العلاج وفعاليته. ومع ذلك، فإن سبب مرض CIPN غير واضح لكنه قد يكون مرتبطا بخلل وظائف الميتوكوندريا، والإجهاد التأكسدي، والاضطرابات في الجهاز المناعي، وخلل في تنظيم قنوات الأيونات، وتلف خلايا DRG2. حاليا، أوصى ASCO فقط بالدولوكسيتين لإدارة الألم لدى مرضى CIPN، وعلى الرغم من فعاليته المسكنة المثبتة، إلا أن الفائدة السريرية العامة للدولوكسيتين معتدلة، حيث يوفر بشكل أساسي تخفيف الأعراض بدلا من منع CIPN أو عكس التغيرات المرضية الكامنة8. لذلك، فإن استكشاف الأهداف المحتملة ل CIPN مهم لتطوير الأدوية والعلاج الدقيق.
قنوات TRP، التي تعد وسطاء رئيسيين في الإشارات الحسية للألم، تحظى باهتمام متزايد في سياق تطوير علاجات CIPN. من بين قنوات TRP، اقترح أن TRPA1 عامل رئيسي في تحفيز فرط حساسية الألم بواسطة مجموعة متنوعة من العوامل الكيميائيةالعلاجية 131. لذلك، تركز هذه الدراسة على دور TRPA1 في التسبب المرضي ل CIPN وتوضح بشكل أكبر الآليات التي يتوسط بها الألم العصبي، كما هو موضح في الشكل 8. يتم تنشيط هذه القناة بواسطة الإجهاد التأكسدي لإثارة ألم ميكانيكي غير طبيعي وحساسية مفرطة للبرد 61,70,71، وتشارك في الإحساس الالتهابي بالألم عن طريق تعديل الخلايا المناعية لتسهيل الالتهاب العصبي 62,72,73,74,75. بالإضافة إلى ذلك، تتفاعل قنوات TRPA1 مع TRPV1 وTRPM8 والقنوات المقيدة بالجهد مثل Ca+، Nav1.7، Zn2+، وKv7. هذه التفاعلات تعزز استجابات الألم العصبية والالتهابية76، 77، 78، 79، 80، 81. هذا التعديل التآزري له آثار سريرية كبيرة. نظرا لأن TRPA1 وTRPV1 وTRPM8 تعبر عنها معا في الخلايا العصبية الحسية ويمكنها تنظيم نشاط بعضها البعض بشكل متبادل، فإن المثبطات الثنائية أو متعددة الأهداف قادرة على إحداث تأثيرات مسكنة أكثر وضوحا من تلك التي تستهدف TRPA1 فقط. علاوة على ذلك، يسمح هذا التفاعل التآزري لكل مركب بتحقيق فعالية مسكنة مماثلة عند الجرعات المنخفضة، مما يقلل من الآثار الجانبية المحتملة. وبالمثل، يتأثر DRG، وهو هدف لسمية CIPN العصبية، ب TRPA1. تنشيط TRPA1 يعزز استثارة خلايا DRG، مما يعزز إطلاق الناقلات العصبية من DRG، مما يؤدي إلى زيادة فرط الحساسية لأعراض الحساسية الألم82,83. في الختام، يمكن ل TRPA1 أن يزيد من الألم العصبي لدى مرضى CIPN من خلال تحفيز استجابة متتالية التهابية عصبية. لذا، يمكن لمضاد TRPA1 أن يخفف بفعالية من الأعراض الالتهابية والمؤلمة ل CIPN، مما يشير أيضا إلى أن تطبيق مضادات TRPA1 والأعشاب الطبيعية أمر بالغ الأهمية.
تم إثبات فعالية مضادات TRPA1 بفعالية في نماذج حيوانية. على سبيل المثال، في فئران TRPA1 KO وعند تطبيق مضادات TRPA1 (مثل HC-030031)، تخفف أعراض الألم العصبي الناتج عن الأدوية الكيميائيةبشكل ملحوظ بنسبة 86,89. ومع ذلك، لا تزال هناك قيود على تطبيق مضادات TRPA1، حيث لم تجر بعد التجارب السريرية لمرضى CIPN، مما يشير إلى أن سلامة وفعالية مضادات TRPA1 في البشر بحاجة إلى تقييم وتأكيد إضافي. على سبيل المثال، قد تؤدي الاختلافات في أنماط تعبير TRPA1 والحساسية للمضادات بين القوارض والبشر إلى فروقات بين النتائج ما قبل السريرية والسريرية. بالإضافة إلى ذلك، لا يزال تحويل الجرعات التجريبية من الحيوانات إلى البشر غير مؤكد، مما يزيد من تعقيد تطوير الأدوية.
بالإضافة إلى ذلك، لم يتم توضيح الآليات الدقيقة التي يعمل بها TRPA1 كهدف علاجي في CIPN بشكل كامل، وتتطلب أدواره الخاصة بالأنسجة مزيدا من البحث. نظرا للتعبير الواسع عن TRPA1 في الخلايا العصبية الحسية، وخلايا شوان، والخلايا المناعية، يبقى تحديد وظائفه المحددة عبر سياقات خلايا مختلفة أمرا صعبا. تعتمد معظم الدراسات الحالية على مضادات TRPA1 الجهازية، مما يصعب تحديد التأثيرات المرصودة بدقة إلى أقسام خلوية محددة. يجب التأكيد على أن TRPA1 المعبر عنه في الخلايا العصبية الحسية يتوسط مباشرة في الإشارات الحسية، بينما TRPA1 في خلايا شوان والخلايا المناعية ينظم بشكل أساسي العمليات الالتهابية والبيئية الدقيقة التي تعدل حساسية الألم بشكل ثانوي. لذلك، فإن حذف TRPA1 من نوع الأنسجة سيوفر رؤى ميكانيكية مهمة. قد يوضح فقدان TRPA1 في الخلايا العصبية دوره المباشر في إثارة مستقبلات الألم وانتقال الألم، بينما قد يوضح حذف خلية شوان الخاصة كيف يعزز الإجهاد التأكسدي المدفوع ب TRPA1 والتفاعلات الدبقية مع الخلايا العصبية الالتهابية العصبية المستمرة. ومن المهم أن نماذج إلغاء السيطرة الخاصة بخلايا المناعة على TRPA1 (مثل في الخلايا البلعمية أو الخلايا التائية) ستساعد في تحديد مساهمة إشارات TRPA1 المناعية في التداخل المناعي وتنظيم الالتهابات في CIPN. مثل هذه الأساليب ستعمق بشكل كبير فهمنا لوظائف TRPA1 الخاصة بالأنسجة والخلايا وتسهل تطوير استراتيجيات علاجية أكثر دقة. وفي الوقت نفسه، لا تزال جوانب متعددة من معارضة TRPA1 في معالجة CIPN بحاجة إلى مزيد من الاستكشاف. على سبيل المثال، ما إذا كان TRPA1 يظهر أدوارا وظيفية مختلفة في CIPN ناتج عن عوامل كيميائية مميزة، وكيف يمكن تعديل نشاطه بدقة أكبر لتحقيق فعالية علاجية مثالية، تظل أسئلة مهمة لم تحل.
في هذا السياق، يمثل الاستخدام الجمع بين مضادات TRPA1 والمركبات العشبية الطبيعية أو تركيبات الطب الصيني التقليدي نهجا علاجيا واعدا. قد لا يقلل هذا العلاج المركب من السمية المرتبطة بالأدوية فحسب، بل يعزز أيضا الفعالية من خلال تأثيرات تآزرية متعددة الأهداف. بشكل عام، يمكن لمضاد TRPA1 أن يعدل الاستجابات المناعية ويقطع سلاسل الالتهاب العصبي، مما يقلل بفعالية من السمية العصبية وتلف الخلايا العصبية، مقدما رؤى واستراتيجيات جديدة للإدارة السريرية ل CIPN.
الاستنتاجات
تستكشف هذه المراجعة بشكل شامل العلاقة المعقدة بين TRPA1 وCIPN، بالإضافة إلى التأثيرات المضادة للالتهابات المحتملة لمضادة TRPA1 في علاجه. أظهرت الدراسات ما قبل السريرية أن التثبيط الدوائي أو الحذف الجيني ل TRPA1 يمكن أن يثبط الالتهاب العصبي، ويقلل من استثارة الخلايا العصبية، ويقلل من السمية العصبية، مما ينتج تأثيرات مضادة للالتهاب ومسكنات قد تساعد في تخفيف أعراض CIPN. ومع ذلك، لا تزال هناك بعض القيود في الأبحاث الحالية. ينبغي أن تستكشف الدراسات المستقبلية بشكل أعمق الآليات الجزيئية المحددة التي تقوم عليها تورط TRPA1 في CIPN، وتحسين استراتيجيات الاستهداف، وإجراء تجارب سريرية واسعة النطاق للتحقق من سلامة وفعالية مضادات TRPA1. سيوفر ذلك خيارات علاجية أكثر دقة وفعالية لمرضى CIPN.
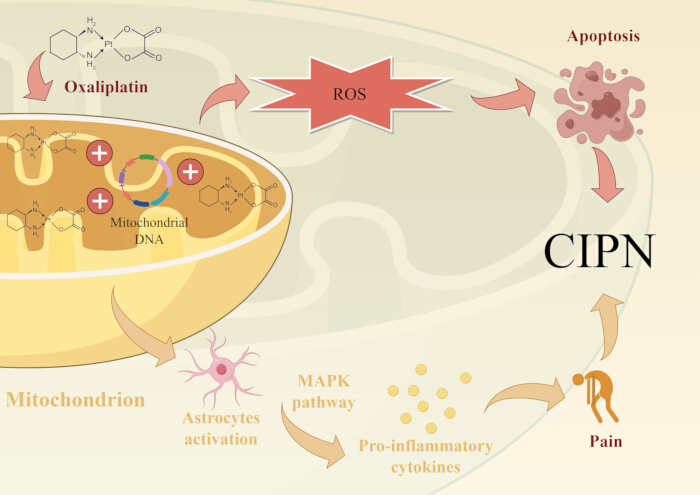
الشكل 1: خلل الميتوكوندريا وآليات CIPN الناتجة عن الإجهاد التأكسدي. تشكل عوامل العلاج الكيميائي القائمة على البلاتين مقاربات البلاتين للحمض النووي التي تتجمع في DRG، حيث ترتبط بالحمض النووي النووي وmtDNA. هذا يسبب تلف الحمض النووي/الميتوكوندريا، ويعزز إنتاج ROS، ويحفز الاستماتة العصبية. هناك أيضا أدلة على أن OXA يسبب الألم العصبي عن طريق تنشيط الخلايا النجمية وزيادة تنظيم السيتوكينات المضادة للالتهاب في مسار MAPK. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
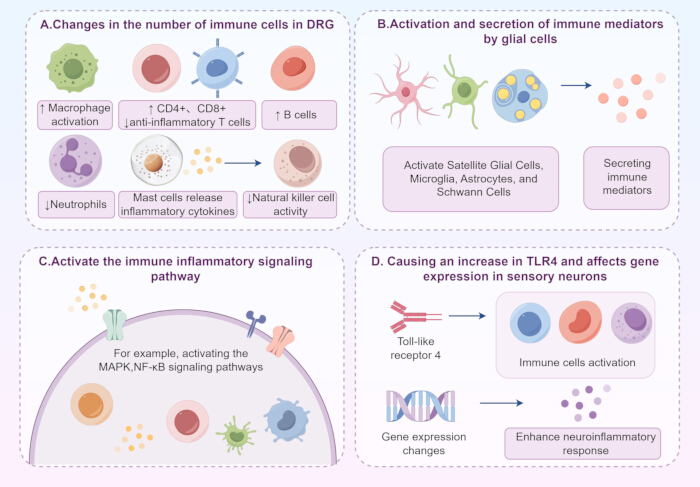
الشكل 2: آليات تحفيز CIPN من خلال اضطرابات في الجهاز المناعي. (أ) تؤدي العوامل الكيميائية إلى تنشيط الخلايا البلعمية، وزيادة أعداد الخلايا اللمفاوية التائية (CD4+)، والخلايا التائية السامة للخلايا (CD8+)، والخلايا البائية في DRG، وانخفاض عدد الخلايا التائية المضادة للالتهاب والعدلات. تساهم الخلايا العصبية في تطور CIPN من خلال تجنيد الخلايا المناعية وإطلاق مجموعة متنوعة من السيتوكينات الالتهابية في CIPN، مما يقلل من نشاط خلايا NK، مما يزيد من التهاب الأعصاب والإجهاد التأكسدي. (ب) تقوم العوامل الكيميائية بتنظيم تنشيط وإفراز وسيط المناعة من خلال SGCs في DRG، والدبقية الدبقية الصغيرة والخلايا النجمية في الحبل الشوكي، وخلايا شوان في المحاور العصبية، مما يؤدي إلى زيادة استثارة الخلايا العصبية الحسية وزيادة حساسية الألم في CIPN. (ج) يلعب تنشيط مسارات الإشارات المناعية الالتهابية، مثل MAPK وNF-κB، دورا مهما في تفاقم الاستجابات الالتهابية العصبية. (د) يمكن للعوامل الكيميائية أيضا تنشيط الخلايا المناعية وتعزيز الاستجابات الالتهابية العصبية من خلال زيادة TLR4 وتحفيز اضطراب الجينات المرتبط. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
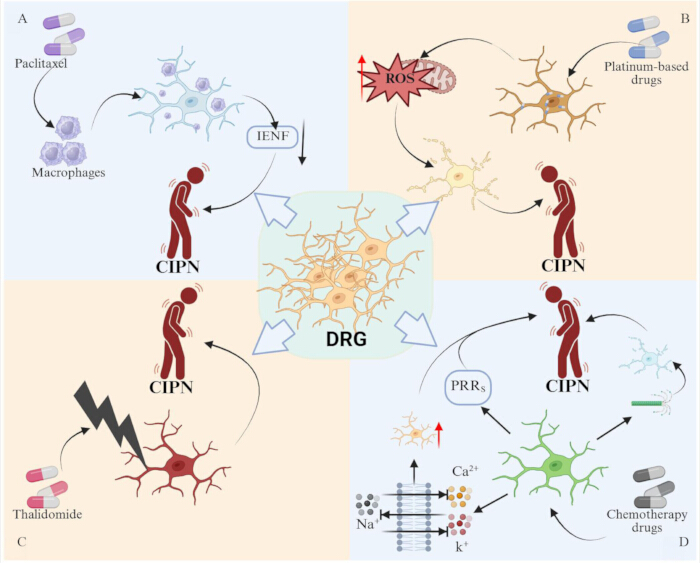
الشكل 3: يعد DRG هدفا رئيسيا للعوامل الكيميائية العلاجية لتحفيز CIPN. (أ) يمكن أن يؤدي PTX إلى تسرب البلعم إلى DRG، مما يؤدي بدوره إلى انخفاض عدد ال IENFs. (ب) تتراكم أدوية البلاتين في DRG، مما يؤدي إلى خلل في وظيفة الميتوكوندريا وزيادة مستويات ROS، مما يعزز الاستماتة العصبية. (ج) الثاليدوميد يمكن أن يضر مباشرة ب DRG. (د) يمكن للعوامل الكيميائية أيضا أن تضر خلايا DRG العصبية عن طريق تغيير قنوات أيونات الصوديوم والبوتاسيوم والكالسيوم، وتعطيل بنية الأنابيب الدقيقة، وتنشيط PRRs. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
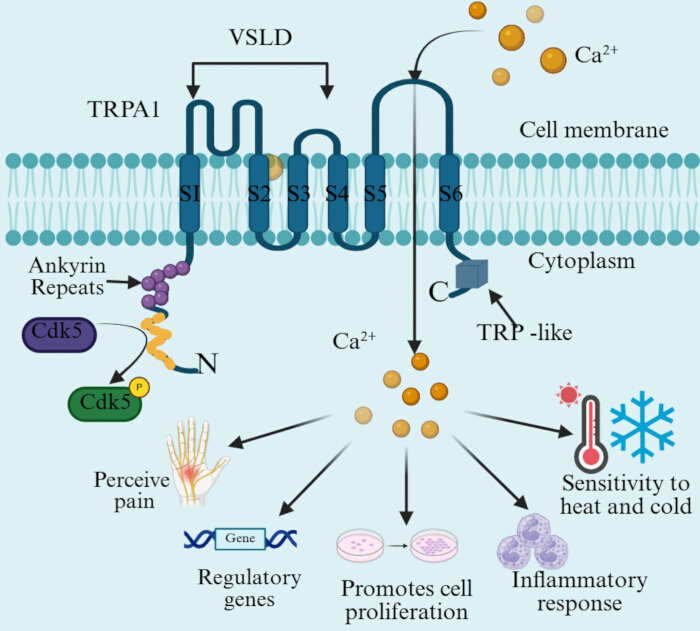
الشكل 4: المجالات الهيكلية الرئيسية ل TRPA1 ذات الصلة بتفعيله بواسطة العوامل الكيميائية العلاجية. تحتوي قناة TRPA1 على ستة شظايا α حلزونية عبر الغشاء (S1-S6). من بينها، تشكل S1-S4 VSLD، بينما تشكل S5 وS6 هيكلا مقعرا لحلقة المسام. تقع كل من نهايتي NH2 وCOOH لقناة TRPA1 داخل السيتوبلازم. أحد أطراف NH2 الأطول يحتوي على ARDs وموقع Cdk5، بينما يحتوي الطرف C ل TRPA1 على مجال يشبه TRP ويرتبط بمجال البنية العابر للغشاء. يمكن أن يسبب تنشيط القناة تدفق Ca2+ ، مما يؤدي بدوره إلى تحفيز سلسلة من مسارات الإشارات الخلوية، مثل تلك التي تنظم التعبير الجيني وتعزز تكاثر الخلايا وتحفز استجابات التهابية. هيكل TRPA1 يحدد وظيفته في استشعار الألم وحساسية الحرارة/البرد. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
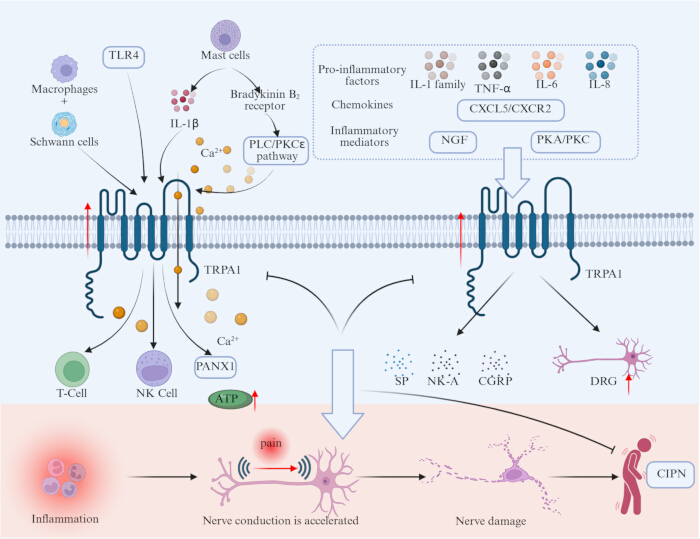
الشكل 5: ينظم TRPA1 الإحساس الالتهابي العصبي الناتج عن الخلايا المناعية. الخلايا المناعية (البلعميات، خلايا شوان، والخلايا العصبية المختلطة)، والعوامل الالتهابية (عائلة IL-1، TNF-α، IL-6، IL-8)، الكيموكينات (CXCL5/CXCR2)، الوسطاء الالتهابيين (NGF، PKA/PKC)، وTLR4 يمكن أن تفعل قنوات TRPA1. تنشيط قنوات TRPA1 يمكن أن يزيد من تركيز Ca2+ داخل الخلية، مما يعزز إطلاق SP وNK-A وCGRP، ويؤثر على الخلايا المناعية (الخلايا التائية، خلايا NK)، ويعدل المسارات المرتبطة بالالتهاب (مسار PANX1)، مما يعزز قابلية تنشيط خلايا DRG ويحافظ على الالتهاب العصبي والألم المستمر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
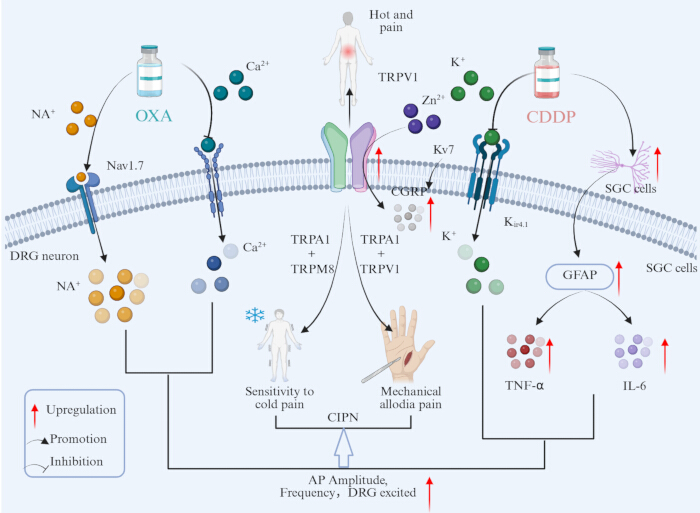
الشكل 6: TRPA1 يعدل قنوات الأيونات لتسريع إشارات الألم. TRPA1 و TRPM8 يتورطان في فرط حساسية البرد، وTRPA1 وTRPV1 يتورطان في الألودينية الميكانيكية. بالإضافة إلى ذلك، تعزز قنوات TRPA1 التي تحتوي على قنوات Ca2+ وNav1.7وZn 2+ وKv 7 وKir4.1 المجهدة على إطلاق الوسطاء الالتهابيين (مثل CGRP، GFAP) والعوامل المضادة للالتهابات (مثل TNF-α، IL-6)، مما يحفز فرط الإثارة لخلايا DRG، مما يؤدي بدوره إلى تأثير تآزري في تفاقم الألم العصبي والالتهابي. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
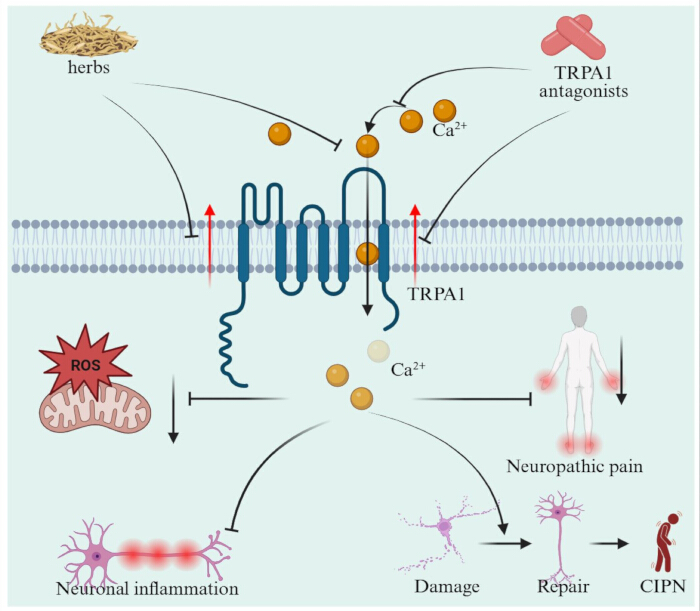
الشكل 7: إمكانية استهداف TRPA1 لعلاج CIPN. يمكن أن يؤدي استخدام مضادات TRPA1 والأعشاب الطبيعية إلى تثبيط نشاط قناة TRPA1، وبالتالي تقليل تدفق Ca2+ والإجهاد التأكسدي، مما يؤدي إلى كبح الاستجابات الالتهابية العصبية وتقليل الألم العصبي، مما يقلل في النهاية من تلف الأعصاب ويحسن الأعراض المرتبطة ب CIPN. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
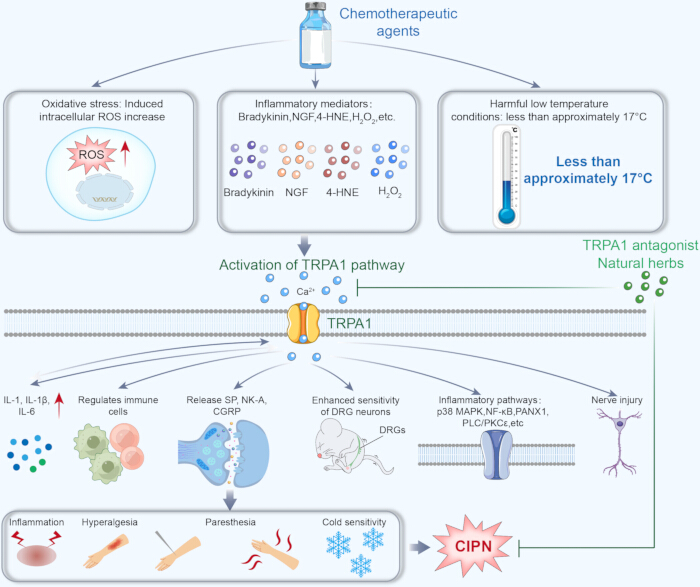
الشكل 8: تثبيط TRPA1. استراتيجية علاجية ل CIPN. تنشيط TRPA1 يدفع الالتهاب وفرط الحساسية في CIPN؛ قد يقلل تثبيطه بواسطة مضادات أو أعشاب الالتهاب العصبي، وتحسس الحسي للألم، وأعراض CIPN. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
الجدول 1: الآليات المحتملة وراء CIPN. تساهم العوامل الكيميائية العلاجية في CIPN من خلال عدة مسارات مرضية، بما في ذلك خلل الميتوكوندريا والإجهاد التأكسدي، واضطرابات الجهاز المناعي، وخلل في تنظيم قنوات الأيونات، وإصابة الخلايا العصبية بسبب DRG، وتعطيل الهيكل الخلوي العصبي. تؤدي هذه الآليات مجتمعة إلى التهاب الأعصاب، والسمية العصبية، والألم العصبي. يرجى الضغط هنا لتحميل هذا الجدول.
الجدول 2: آليات CIPN المرتبطة ب TRPA1. يساهم TRPA1 في CIPN من خلال عمليات مرضية متعددة، بما في ذلك التنشيط الناتج عن الإجهاد التأكسدي، وتعديل المناعة والالتهاب، وتفاعلات قنوات الأيونات، وإصابة الخلايا العصبية DRG. تعزز هذه الآليات مجتمعة استثارة الخلايا العصبية وتعزز الألم العصبي وفرط الحساسية. يرجى الضغط هنا لتحميل هذا الجدول.
الجدول 3: حالة التطور الحالية والمؤشرات السريرية لمضادات TRPA1 الممثلة. يلخص هذا الجدول المضادات الرئيسية ل TRPA1 التي تم التحقيق فيها في الدراسات ما قبل السريرية والسريرية، بما في ذلك آليات عملها، ومؤشرات علاجها، ومراحل تطوير الدواء. تثبط هذه العوامل نشاط قناة TRPA1، مما يقلل من الإجهاد التأكسدي والالتهاب والألم العصبي المرتبط ب CIPN والحالات المرضية الأخرى. يرجى الضغط هنا لتحميل هذا الجدول.
الجدول 4: المصادر العشبية الطبيعية لرابطات TRPA1 وآلياتها المحتملة في تخفيف CIPN. يلخص هذا الجدول المركبات الطبيعية الممثلة والمستخلصات العشبية التي تعدل نشاط TRPA1، بما في ذلك مصادرها وأنواعها الكيميائية والظروف التجريبية والأهداف الجزيئية. تمارس هذه العوامل الطبيعية تأثيرات واقية عصبية ومضادة للالتهابات من خلال تنظيم TRPA1 ومسارات الإشارة المرتبطة بها، مما يخفف من الإجهاد التأكسدي والالتهاب العصبي وفرط الإثارة العصبية المرتبط ب CIPN. يرجى الضغط هنا لتحميل هذا الجدول.
الإفصاحات
لا توجد تضارب مصالح مالية يمكن الإفصاح عنها.
شكر وتقدير
يرغب المؤلفون في التعبير عن امتنانهم لجميع أعضاء مجموعة مينغتشو لي على دعمهم ومساعدتهم. وقد حظيت هذه المخطوطة بدعم من المؤسسة الوطنية للعلوم الطبيعية الصينية (82104838)، وبرنامج الشرارة لمؤسسة تعزيز الصين (XH-D001)، وبرنامج البحث والتطوير الرئيسي في مقاطعة لياونينغ (2024JH2/102500062)، وهو أمر يحظى بامتنان. تم رسم الشكل 1 والشكل 2 باستخدام FigDraw.
المراجع
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).