نقدم نموذج هجرة ثلاثي الأبعاد للورم الأرومي الدبقي باستخدام الكرات الدبقية المشتقة من المرضى الناتجة عن أورام جديدة ومتكررة تم تشخيصها حديثا. تتيح هذه المنصة تصور ديناميكيات الهجرة الخاصة بالمرضى وتقييم فعالية العلاج. يمكن تعدد التحليل بعد الهجرة لتقييم تموضع البروتين وأنماط تعبيره.
مقالة منهجية
اختبار هجرة الورم الأرومي الدبقي ثلاثي الأبعاد القابل للتكرار مع تحديد موقع كروي بوسيطة جسيمات نانوية مغناطيسية تحت ظروف نقص الأكسجين
في هذه المقالة
ملخص
الملخص
نحن نصف اختبار هجرة ثلاثي الأبعاد قابل للتكرار لنمذجة الإمكانات الهجرة والغازية لكرة الورم الدبقي المشتقة من المرضى من أورام جديدة ومتكررة تحت ظروف منخفضة الأكسجين ذات صلة سريريا. يتم نقل الكرات الدبقية ذات الحجم الموحد إلى طبقة رقيقة من المصفوفة خارج الخلية ويتم زراعتها معا مع جسيمات أكسيد الحديد المغناطيسية، مما يتيح توطينها المركزي داخل آبار الزراعة من خلال وضعها على حامل ألواح مغناطيسي. إدراج جسيمات أكسيد الحديد المغناطيسي النانوية في البذر يسهل التصوير الدقيق والموضعي للكرات الدبقية المشتقة من المرضى عبر قوة مغناطيسية لطيفة، ويحسن خطوط معالجة الصور الآلية من خلال تقليل التباين الموضعي. يدعم هذا الاختبار دراسة مفصلة لسلوك الهجرة الناتج عن الورم الأرومي الدبقي في بيئة دقيقة ذات صلة فسيولوجية، ويسمح بمقارنة مباشرة بين الاحتمالات الغازية والسلوك المهاجر بين الكرات الدبقية المشتقة من المرضى الجدد والمتكررة. تتوافق هذه الطريقة مع تصوير الخلايا الحية والتحليل المتعدد الإصدارات، وتوفر منصة قابلة للتوسع للتحقيق قبل السريري في هجرة الورم الأرومي الدبقي والإمكانات الغازية والاستجابة العلاجية.
المقدمة
يظل الورم الأرومي الدبقي واحدا من أهم التحديات في علم الأورام العصبية. هذا المرض مدفوع بتنوع واسع بين المرضى وداخلهم، وتجنب قوي للاستجابة لمعايير الرعاية، ومقاومة لتحفيز الاستماتة، والمرونة الملحوظةاستجابة للظروف البيئية. مؤخرا، حظي تعقيد البيئة الدقيقة للورم (TME) باهتمام كبير، لا خصوصا الطبيعة الديناميكية لخلايا الورم الدبقي الشبيهة بالورم الدبقي (GSCs)، التي يمكنها تغيير النمط الظاهري وحالة الخلية استجابة للتغيرات البيئية الدقيقة2،3. تعزز هذه اللدونة الظاهرية تقدم الورم وتساهم في تكرار المرض الحتمي رغم العلاج العالي المعتاد. يظل الاستئصال الجراحي هو التدخل الأكثر فعالية لتحسين توقعات المرضى، ومع ذلك، بسبب الطبيعة الغازية الدقيقة والجراحية لورم الأرومة الدبقية، فإن إزالة الورم بالكاملغير ممكنة. نمذجة الديناميكيات الغازية لعينات المرضى عبر مراحل المرض المختلفة وفي الحالات الخاصة بالورم سيسهل فهما أعمق للقدرة الديناميكية والبلاستيكية لهجرة الورم الأرومي الدبقي وبالتالي يساعد في تحديد أساليب علاجية جديدة فعالة5. لذلك، فإن تطوير نماذج فسيولوجية ذات صلة تلتقط ديناميكيات الغزو والهجرة الخاصة بالمريض أمر ضروري لتعزيز البحث قبل السريري ودفع هذه الأهداف. علاوة على ذلك، تعد هذه النماذج ضرورية لتقييم فعالية العلاجات الجديدة المضادة للأورام، والتي يمكن نظريا تطويرها للاستخدام بالاشتراك مع الجراحة لمنع الغزو المجهري المتبقي وتقليل خطر الانتكاف في النهاية. تعقيد الورم الأرومي الدبقي يبرر الحاجة إلى نماذج متقدمة ومعقدة قبل سريرية يمكنها تلخيص السمات المعمارية الرئيسية للورم. حظيت النماذج ثلاثية الأبعاد المستمدة من المرضى باهتمام متزايد لقدرتها على الحفاظ على التفاعلات بين الخلية، والحفاظ على تدرجات المغذيات والأكسجين والعوامل العلاجية، وتكرار سلامة البنية للأورام الأصلية 6,7. ومع ذلك، فإن تصور هذه النماذج ثلاثية الأبعاد يواجه تحديات تقنية، بما في ذلك تحديد موقع الكروي، وتغير التصوير، وقابلية إعادة إنتاج الاختبار.
هنا، نصف نموذج هجرة ورم الأرومة الدبقية ثلاثي الأبعاد خاص بالمريض يتم في ظروف نقص الأكسجين، مما يمكن من دراسة ديناميكيات الهجرة عبر عينات مشتقة من أنواع وأورام مختلفة ومراحل مرضية، بما في ذلك عينات الأورام العلاجية البسيطة والمتكررة. تتيح هذه المنصة تقييم الاستجابات التفاضلية للعوامل العلاجية وتدعم تحليل ما بعد الهجرة في المجموعات المتعددة من خلال تقسيم الصور، مما يتيح التقييم الكمي لديناميكيات الهجرة، ونمو الكروي، وتعبير البروتينات. يسمح دمج جزيئات أكسيد الحديد المغناطيسية النانوية بمركزية متسقة للكرويدات داخل كل بئر من خلال تطبيق قوة مغناطيسية لطيفة8. غالبا ما تظهر الكرويدات التي تزرع في صفائح متعددة الآبار القياسية ميلا للانجراف نحو حواف الآبار، وهو سلوك يعتقد أنه يتأثر بتكوين الغضروف الهلالي السائل والتبخر المحيطي، خاصة في الآبار عند محيط الصفيحة 9,10,11. تؤدي هذه الظواهر إلى ظهور تشوهات تصويرية وضوضاء خلفية، خاصة أثناء المجهر الضوئي المنقول، مما قد يعقد تصوير التصوير الزمني لديناميكيات الغزو. على عكس الزراعة أحادية الطبقة ثنائية الأبعاد، حيث يمكن اختيار مناطق ذات كثافة خلوية موحدة للتصوير، تتطلب اختبارات الغزو الكروي الواحد تحديد مواقع دقيقة ومتسقة لمنطقة الكروية والهجرة داخل مجال التصوير. وهذا يضيف تحديا إضافيا، حيث يمكن أن يؤثر الانحراف أو التموضع غير المنتظم داخل البئر على جودة البيانات وقابليتها للتكرار. لذلك، فإن مركزية الكرويدات باستمرار داخل صفائح الآبار المتعددة يقلل من هذه التحديات ويحسن ليس فقط جودة التصوير بل أيضا من الاتساق التجريبي، وخطوط معالجة الصور، والتحليلات بعد الهجرة. بالإضافة إلى ذلك، فإن بدء زراعة الكروات عند كثافات خلايا موحدة في هذه الصفائح المتخصصة من زراعة الكرويد يعزز تكوين الكرويدات القابل للتكرار، مما يقلل من التغير في الشكل ومعدل النمو والسلامة البنيوية10,11. عمليا، تتراوح الطبقات الدبقية النموذجية المستخدمة في هذه الاختبارات بين 150–300 ميكرومتر في القطر، وتتشكل بشكل متكرر تحت كثافات الخلايا الموحدة. يتم الحفاظ على الزراعة في ظروف نقص الأكسجين (1٪–2٪O 2).
تدعم المنصة الموضحة هنا صيغ متوسطة إلى عالية الإنتاجية، مثل ألواح 96 بئرا، مما يتيح عدة نسخ لكل عينة مريض، وهي قابلة للتوسع لفحص الأدوية أو اختبارات الحالات المتعددة12 . لذلك، فإن تحسين تموضع الكروي وظروف الزراعة أمر ضروري لتعزيز متانة وملاءمة النماذج السريرية ثلاثية الأبعاد قبل السريرية المستخدمة لدراسة الورم الدبقي المحتمل الغازي والعمليات الخلوية الديناميكية الأخرى.
البروتوكول
تم توفير خلايا الورم الأرومي الدبقي المستخرج من المرضى من قبل مركز إيراسموس MC، روتردام، هولندا، ومستشفى الأطفال المرضى (تورونتو، كندا). تم الحصول على عينات المرضى الأولية الأصلية لهذه الخطوط كجزء من عمليات استئصال روتينية من المرضى بموافقتهم المستنيرة (أرقام الموافقة الأخلاقية، MEC-2013-090، 0020010404).
1. تحضير الكرات الدبقية المشتقة من المرضى المغناطيسية (الشكل 1)
- قبل 30 دقيقة على الأقل من تفكك الكرة الدبقية، يجب تخصيص ما يكفي من وسط إنزيم انفصال الخلية ووسط الكرة الدبقية للتجربة (عادة 1 مل لكل قارورة T75 متلافقة) ورفع كلاهما إلى درجة حرارة الغرفة.
- في ظروف معقمة، يجمع الكرات الدبقية من قارورة الزراعة عن طريق الشفط اللطيف باستخدام ماصة مصلية بقطر 10 مل ومساعد ماصة ونقلها إلى أنبوب مخروطي بحجم 15 مل. الطرد المركزي عند 300 × g لمدة 3 دقائق. تخلص من المادة الفائقة بعناية دون إزعاج حبيبة الخلية.
- أعد تعليق الحبيبة في 1 مل من وسط إنزيم انفصال الخلايا بدرجة حرارة الغرفة وحضن لمدة 10–15 دقيقة، مع تحريك الكرة بلطف كل 2-3 دقائق عن طريق التوصيل بالماصة P1000 لتسهيل التفكك إلى تعليق خلية واحدة.
- أضف نفس الحجم من وسط الكرة الدبقية لتعطيل الإنزيم. قم بعمل تعليق خلية واحدة بجهاز الطرد المركزي عند 300 × جرام لمدة 3 دقائق عند 37 درجة مئوية، ثم أعد تعليق حبيبة الخلية بلطف في 3–5 مل من وسط الغلاف الدبقي الكامل، حسب حجم الحبيبة، مع ملاحظة الحجم الدقيق المستخدم في عد الخلية لاحقا.
ملاحظة: سيعتمد وقت حضانة وسط الإنزيم إلى حد كبير على حجم الكرات الدبقية في الزرعة، يجب دائما فحصها بصريا قبل الاستخدام واعتمادها وفقا لذلك. - خذ أليكوت ممثل بحجم 10 ميكرولتر من نظام التعليق أحادي الخلية وامزجه بلطف مع 10 ميكرولتر من تريبان بلو في أنبوب ميكرو طرد مركزي بسعة 1.5 مل. قم بتحميل 10 ميكرولتر من هذا الخليط في جهاز قياس الدم أو عداد الخلايا الآلي لتحديد الخلايا القابلة للحياة.
- زرع 500 خلية ورم دبقي مفردة في كل بئر في صفيحة ميكروفية كروية ذات ارتباط منخفض جدا ب 96 بئر. قد تختلف كثافة البذور المثلى بين عينات المرضى.
- أضف 1 ميكروغرام/مل من يوديد البروبيديوم (PI) و0.05 ميكرولتر من جسيمات أكسيد الحديد النانوية لكل بئر (على سبيل المثال، استخدم 1.5 ميكرولتر من الجسيمات النانوية المغناطيسية ل 20 كرويا، أي ما يعادل حوالي 10,000 خلية منفردة). تأكد من أن جسيمات أكسيد الحديد النانوية متجانسة قبل الإضافة عن طريق التوصيل بأنابيب لأعلى وأسفل مع P100 مضبوط على 100 ميكرولتر.
ملاحظة: يمكن تحسين حجم جسيمات أكسيد الحديد النانوية المستخدمة اعتمادا على خط الخلية المستخدم، ومع ذلك، في هذه الحالة، كان 1.5 ميكرولتر لكل 10,000 خلية كافيا لتحديد موقع الكرويدات مركزيا. يضمن هذا الترتيب وجود حجم كروي متسق عبر عينات المرضى، مما يسهل المقارنة المباشرة بين ديناميكيات الغزو والنمو أثناء اختبار الغزو. - حضانة الصفائح لمدة 48 ساعة في حاضنة زراعة الخلايا المرطبة عند 37 درجة مئوية، 5٪ ثاني أكسيد الكربون2 و21٪ أوكسيد الأكسجينللسماح بتكوين الغلاف الدبقي (gliomasphere).
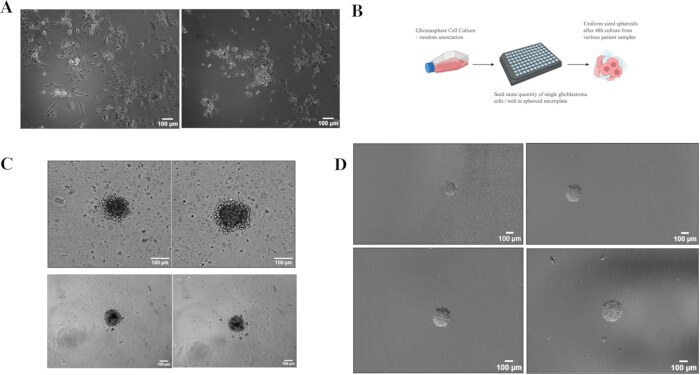
الشكل 1: الكرات الدبقية ذات الحجم المنتظم والمحددة التي تم زراعتها معا مع جسيمات أكسيد الحديد النانوي. (أ) تظهر الكرات الدبقية المشتقة من أورام مريض تم تشخيصها حديثا ومتكررة تظهر نمطا ظاهريا مزدوجا وارتباطات عشوائية بين الخلية. (ب) تمثيل تخطيطي لتكوين كروي منتظم الحجم خلال 48 ساعة من البذر. (ج) صور الضوء المرسلة لكرات الدبقية التي زرعت لمدة 48 ساعة في صفيحة كروية دائرية القاع بدون (اللوحة العلوية) ومع (اللوحة السفلية) جزيئات أكسيد الحديد النانوي. لاحظ المظهر الداكن والمرقط للكرات الدبقية التي تحتوي على جسيمات أكسيد الحديد النانوي. (د) تحديد موقع الكرة الدبقية يظهر تحديد موقع عشوائي للكرات الدبقية التي تم زراعتها بدون جسيمات نانوية (الأعلى) مقارنة بالتوطين المركزي المتسق لتلك التي تم زراعتها بجسيمات نانوية (الأسفل)، مما يؤدي إلى تقليل الضوضاء الخلفية وتحسين جودة الصورة. شريط القياس = 100 ميكرومتر. تم إنشاء مخطط باستخدام Biorender.com. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
2. تحضير ألواح متعددة الآبار المطلية بمصفوفة خارج الخلية (ECM) (اختبار الهجرة قبل ساعة واحدة)
- قم بتخزين جهاز ECM حسب تعليمات الشركة المصنعة وخزنها. قم بإذابة كمية 1 مل من ECM (تخفيف 1:10) ببطء على الجليد طوال الليل عند درجة حرارة 4 درجات مئوية. قبل الطلاء مباشرة، جهز محلول عمل نهائي عند 1:100 (v/v) عن طريق إجراء تخفيف إضافي بنسبة 1:10 لمخزون 1:10 في وسط كامل للغلاف العصبي البارد جدا. احتفظ بجهاز ECM المخفف على التجميد دائما لمنع البلمرة المبكرة. دائما احتفظ بهذا التخفيف على الثلج لأن ECM سيبلمر بسرعة في درجة حرارة الغرفة.
- قم بتوزيع 50 ميكرولتر من محلول ECM العامل بنسبة 1:100 في كل بئر من لوح بسعة 96 بئرا شفافا أو مسطحا أو قاع شفاف. حضن الصفيحة على حرارة 37 درجة مئوية لمدة ساعة واحدة على الأقل للسماح للجهاز بتثبيت وتكوين مصفوفة رقيقة في كل بئر.
- بعد الحضانة، قم بإزالة 30 ميكرولتر من كل بئر بعناية، مع ترك 20 ميكرولتر من ECM المبلمرة (التركيز النهائي 1:100 فولت/فولت) تغطي قاع كل بئر. يجب الحفاظ على وحدة التحكم الإلكترونية باردة قدر الإمكان خلال هذه الفترة، لأنها تتحول بسرعة إلى بلمرة عند درجة حرارة الغرفة. يمكن أيضا تبريد لوحة التصوير مسبقا وتخزينها على الثلج خلال هذه العملية.
3. إعداد لوحة التصوير وتصوير الخلايا الحية
- في يوم الفحص (بعد 48 ساعة من بذر الكرة الدبقية) ضع الصفيحة الدقيقة المطلية ب ECM على محرك مغناطيسي يحتوي على 96 بئرا من الصفائح، كما هو موضح في الشكل 2B,C. قم بتعقيم اللوح المغناطيسي برش 70٪ إيثانول ومسح المسح حتى الجفاف، ولا تنقعه.
- افحص الكرويدات بصريا للجودة والتجانس. باستخدام مبوبة، انقل 80 ميكرولتر من الوسط الذي يحتوي على الكرة الدبقية الواحدة من كل بئر واستخدم الماصة بلطف إلى الصفيحة على سطح ECM.
ملاحظة: بالنسبة للكرويدات الكبيرة جدا، حرص على تقليل إجهاد القص أثناء النقل؛ يمكن تحقيق ذلك عن طريق قطع 1-2 مم من طرف ماصة P100 باستخدام المقص لتوسيع الفتحة وتقليل الضرر الميكانيكي. تأكد من أن المقص قد تم تعميمه تحت أشعة فوق البنفسجية قبل الاستخدام. والأهم من ذلك، تقليل إضافة أي فقاعات هواء، لأن ذلك يؤثر بشكل كبير على التصوير. - عامل الكرويدات وفقا لتصميم التجريب. جهز المحاليل المعالجة بتركيزات مطلوبة في حجم 20 ميكرولتر، ثم أضف هذه ال 20 ميكرولتر إلى كل بئر يحتوي على الكرويدات للوصول إلى حجم نهائي يبلغ 100 ميكرولتر.
ملاحظة: معالجة الكرات الدبقية بهذه الطريقة تقلل من استخدام الماصات وتقلل من خطر إزالة الكرويدات من البئر. - نقل اللوحة، مع بقائها على محرك مغناطيسي، إلى نظام التصوير للتصوير الحي. كن حذرا عند إزالة اللوح من حامل المغناطيسي وابق مستقيما قدر الإمكان لتقليل حركة الكرويدات من مركز البئر.
- قم بإجراء تصوير حي باستخدام مجهر خلية معكوسة قابلة للبرمجة مزود بهدف Plan-Apochromat 5x/0.35 NA، وعدسة أنبوب 0.5x، كاميرا Axiocam 506 (التضحية =2) وباستخدام برنامج Zen 3.1 (Blue Edition). معايرة البكسل إلى الميكرون مدمجة في نظام التصوير ويتم التعامل معها تلقائيا من قبل البرنامج، لذلك لا حاجة للمعايرة اليدوية. في هذه الحالة، قم بتصوير بحجم تكبير 2.5x (5x مع عدسة أنبوبية 0.5x)، مع تثبيت الكاميرا على 2 × 2، مما يؤدي إلى معايرة 1 بكسل = 3.645 ميكرومتر.
- قم بضبط التحكم البيئي بحيث يكون هناك 1٪ أكسجين و5٪ ثاني أكسيد الكربونمع معدل تدفق هواء بطيء جدا من خلاط الغاز. يساعد ذلك في منع التبخر غير المرغوب فيه عند تمرير الهواء الداخل عبر زجاجة ترطيب.
- لمنع إزاحة الكرة الدبقية خلال فترة التصوير الأولية، قلل تسارع وسرعة مرحلة المجهر إلى 10٪، مما يقلل الحركة عبر سطح ECM قبل الالتصاق الكروي.
- قم بتحميل لوحة الحفر متعددة الحفر بلطف دون الحاجة إلى محرك مغناطيسي داخل المجهر. إذا كان ذلك ممكنا، تأكد من اختيار مادة اللوحة في البرنامج لضمان ضبط الأنظمة لتتطابق.
- استخدم تكبيرا مناسبا يشمل كامل مجال الرؤية الغازي. على سبيل المثال، في Cell Discoverer 7 تم اختيار عدسة الهدف 5x وعدسة الأنبوب 0.5x لإنتاج تكبير 2.5x.
- حدد موقع كل كرة دبقية، ركز وحدد موقعا يتضمن إحداثيات x-y-z. يجب استخدام التركيز التلقائي في الأجهزة إذا كان متاحا لضمان تصوير متسق لنفس مستوى البؤرة طوال التجربة.
- تحقق من كل من تباين تدرج الطور (الضوء المنقول) وقنوات الفلورة وضبط وقت التعريض وشدة الضوء لضمان عدم وجود تعريض زائد. استثار يوديد بروبيديوم (صبغة خلية ميتة) باستخدام LED بقطر 590 نانومتر. اجمع الانبعاث باستخدام مرشح رباعي النطاق، مع التقاط نطاق طول موجة 618–756 نانومتر. قد يختلف هذا حسب المجاهر الأخرى، اعتمادا على المرشحات ومصدر الضوء الموجود.
- قم بضبط التقاط الصور كل ساعة لعدد الأيام المطلوبة.
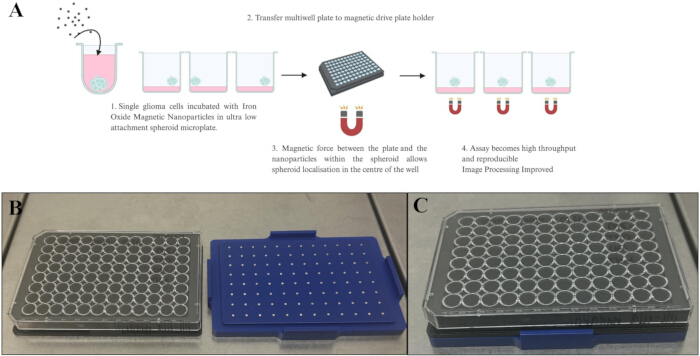
الشكل 2: وصف لإعداد لوحة التصوير. (أ) مخطط تخطيطي يمثل البروتوكول الموصوف. (ب) صورة للوحة متعددة الآبار بجوار محرك الألواح المغناطيسية وتركيب بسيط للوحة متعددة الآبار فوق محرك مغناطيسي، مع كل مغناطيس فردي في مركز كل بئر، مما يسهل تحديد موقع الكرة الدبقية. تم إنشاء مخطط باستخدام Biorender.com. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
4. تثبيت الكرويدات بعد اختبار الغزو لتحليل البروتينات متعددة الإرسال (الشكل 3)
- بعد الانتهاء من اختبار الغزو، غسل كل بئر ب 100 ميكرولتر من PBS. هذا سيصل الحجم إلى 200 ميكرولتر/بئر. كرر هذه الخطوة بإزالة 100 ميكرولتر من PBS واستبداله ب 100 ميكرولتر إضافي من PBS.
- قم بإزالة 200 ميكرولتر من الوسط بعناية، ثم أضف 100 ميكرولتر من 4٪ بارافورمالديهايد (PFA) إلى كل بئر وحضن لمدة 10 دقائق في درجة حرارة الغرفة تحت غطاء أبخرة.
تحذير: البارافورمالديهايد مادة كيميائية سامة، ويجب توخي الحذر لتقليل المخاطر أو التعرض. - بعد التثبيت، أزل PFA من كل بئر واغسله 3 مرات باستخدام PBS عن طريق إزالة PFA وإضافة 100 مل من PBS في كل مرة.
- أضف صبغة مناعة حسب تعليمات الشركة المصنعة. بدلا من ذلك، للتخزين طويل الأمد، أضف أزيد الصوديوم (0.02٪) إلى PBS للحفاظ على التعقيم وإغلاق اللوح بطبقة شفافة. خزن عند 4 درجات مئوية حتى الحاجة المطلوبة.
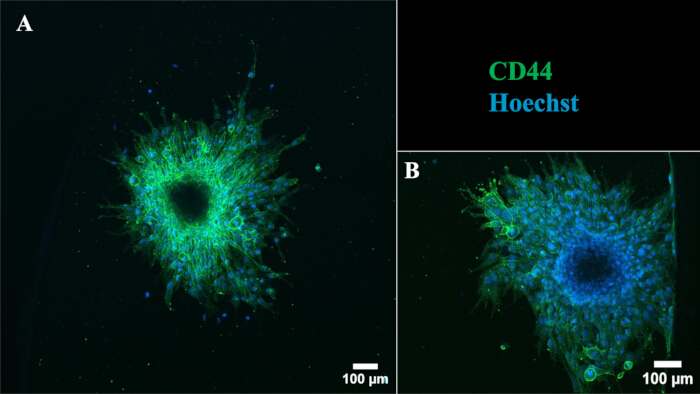
الشكل 3: تحليل البروتين التمثيلي بعد اختبار الهجرة للكرات الدبقية الموجودة في المركز مقابل حافة البئر. المجهر الكونفوكلي بالليزر للكرات الدبقية المتكررة الملطخة بجسم مضاد يستهدف اختبار ما بعد الهجرة مؤشر الخلايا الجذعية للورم الأرومي الدبقي CD44. CD44-FITC (أخضر) وهوشت (نوى، زرقاء). شريط القياس = 100 ميكرومتر. تشير رؤوس السهام إلى حافة البئر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
5. خط معالجة الصور لديناميكيات الهجرة المستمدة من المرضى
ملاحظة: من خلال تجربتنا مع مجموعة بياناتنا، نوصي بأن يكون لدى حاسوب المعالجة معالج متعدد النوى بتردد أساسي عالي وكمية كبيرة من الذاكرة، حيث أن معالجة WEKA تناسب بشكل كبير عدد النوى العالي وستستفيد من الذاكرة المتاحة حسب حجم مجموعة البيانات. المواصفات المستخدمة والموصى بها كما هو موضح أدناه. لاحظ أن معالجة GPU لا تستخدم في هذا السير العملي.
المعالج: >= 6 أنوية | >= 2 جيجاهرتز (موصى به)؛ 32 نواة | 2.1 جيجاهرتز (مستعمل)
الذاكرة: > 32 جيجابايت (موصى بها)؛ 192 جيجابايت (مستعملة)
- Open Fiji13 [حاليا يستخدم ImageJ-win64.exe التنفيذية المرفقة للتحليل]. فتح الصورة من خلال التنقل إلى – ملف > فتح ملف صورة زمني متعدد القنوات، متعدد المشاهد (.czi) يفتح على واجهة فيجي (إذا كنت تستخدم السكريبت، فهذا هو الملف الإضافي 1).
- اختر الصور المطلوبة في واجهة المستخدم الرسومية. يعمل بشكل أفضل إذا كانت أكثر الكرات الدبقية توغلا في التجربة هي تدريب المصنف في البداية (أي التحكم الجيد – DMSO)، حيث ستوفر هذه الصورة تفاصيل عن كل جزء من الصورة، أي مظهر الخلايا الغازية/المهاجرة مقابل الكروية مقابل الخلفية.
- ثم انتقل إلى الصورة > اللون > القنوات المنقسمة - هذا يقسم الصورة إلى قناتين – واحدة في هذه الحالة مع صبغة يوديد بروبيديوم والأخرى بضوء منقول.
- اختر القناة للتقسيم – وفي هذه الحالة، قناة الضوء المرسلة التي تمثل ديناميكيات الهجرة. انتقل إلى الإضافات > التقسيم > تقسيم WEKA القابل للتدريب14.
- أعيد تسمية الفئتين الافتراضيتين إلى: الفئة 1: الكرة الدبقية؛ الفئة 2: الغزو/الهجرة. أضف فئة ثالثة باسم الخلفية (اختيارية ولكن موصى بها) عن طريق الانتقال إلى الإعدادات > فئة جديدة > خلفية.
- باستخدام أداة Freeline، قم بتوضيح مناطق التدريب داخل كل مجموعة صور وفئة عن طريق الرسم على المناطق الممثلة، أي ارسم دوامة في الكروي وانقر على إضافة إلى الكروي، كرر ذلك لمنطقة الغزو والخلفية حتى يتم تمثيل جميع المناطق في كل فئة. درب المصنف بالنقر على "مصنف القطار". يمكن إضافة تعليقات إضافية على صور لتدريب المصنف على تحسين الدقة إذا لزم الأمر.
- عند الرضا، احفظ نموذج المصنف المدرب باستخدام اسم ملف مثل CellLine_Treatment_Classifier.model. أغلق نافذة التقسيم عند الانتهاء.
- للحصول على صور جديدة باستخدام هذا المصنف المحفوظ، اذهب إلى الإضافات > التقسيم > تقسيم WEKA القابل للتدريب >مصنف التحميل> CellLine_Treatment_Classifier المصنف المحفوظ المفتوح (هذا يحفظ ملف .model - ). من المتطلبات لإعداد الملف التكميلي الثاني قبل تشغيل النص. عند بدء السكريبت، يجب اختيار الملف النموذجي المناسب).
- التنقل للحصول على الاحتمال على واجهة تقسيم WEKA القابلة للتدريب - ينتج عن ذلك خرائط احتمالية لكل فئة مختارة مثل: الكرة الدبقية، الغزو/الهجرة، الخلفية التي تشير إلى احتمال أن كل قيمة بكسل مخصصة للصورة تنتمي إلى الفئة أو المنطقة المحددة من الصورة. سيولد هذا ملفا من 3 صور منفصلة لخرائط الاحتمالات (الكرة الدبقية، الغزو، الخلفية) مع نطاق ديناميكي 32 بت لكل صورة.
- اختر خريطة الاحتمالات المقابلة للغزو/الهجرة. انتقل إلى Image > Hyperstacks > تقليل الأبعاد. اختر الاحتفاظ بالمصدر.
- إلغاء تحديد القنوات لكن احتفظ بالإطارات - هذا يقلل الخريطة إلى قناة واحدة مع مرور الوقت – وفي هذه الحالة، خريطة احتمالية الغزو. اختر خريطة الاحتمالات المقابلة لكرة الدبقية.
- كرر الخطوات 5.10-5.11. سيكون هناك الآن خريطتان احتماليتان تتوافقان مع صورة الزمن الضوئي الأصلية المرسلة لمشهد واحد من الهجرة ومنطقة الكروي. احفظ كلاهما مع العرف التالي لأسماء الملفات: ImageName_Scene_Gliomasphere_ProbabilityMap و ImageName_Scene_Invasion_Probability Map في مجلد يتوافق مع التجربة المختارة، أي CellLine_Treatment.
- اضبط العتبة لإنشاء قناع ثنائي: اذهب إلى الصورة > ضبط > العتبة. اختر طريقة عتبة (مثل الين، أوتسو). حافظ على الطريقة المحددة كما هي عبر جميع الصور المعالجة.
- انتقل لتحليل قياسات > المجموعة. اختر القياسات المطلوبة؛ مساحة القراد، الكثافة المتكاملة، والمتوسط ثم اضغط موافق. انتقل إلى تحليل > تحليل الجسيمات. بالنسبة للغزو/الهجرة، حجم المجموعة: 0 – لانهاية؛ الدورانية: 0.00 – 1.00. بالنسبة للكرات الدبقية، حجم المجموعة: عادة 1500 – اللانهاية (تعديل حسب الحاجة بناء على حجم الكروي في خط الخلية/العلاج - الكرات الضابطة ستنمو بشكل طبيعي أكثر)؛ الدورانية: 0.05 – 1.00. اختر وحدات البكسل للجميع.
- انتقل إلى تحليل>تحليل البكسلات> عرض: اختر الأقنعة. بعد توليد الأقنعة، تحقق من المنطقة المقسمة للاهتمام عبر كامل مجموعة التايم لابس لضمان تتبع دقيق. تطبيق العمليات الثنائية عبر العملية > > الثنائية ... (مثلا، اختيار تعبئة الثقوب عند تحسين القناع الكروي)، ثم التنقل لتحليل > تحليل الجسيمات > إظهار > اختيار لا شيء واختيار تلخيص. سيوفر هذا نافذة ملخصة للقياسات المختارة.
- احفظ النتائج بالنقر على ملف > حفظ ك> النتائج. حفظها كملف .csv. افتح في جداول البيانات أو برامج تحليل أخرى.
- كرر تحليل العتبة وتحليل الجسيمات لجميع الفئات المجزأة (مثل الكرات الدبقية، الغزو) لاستخراج القياسات الخاصة مع مرور الوقت. .csv الناتج يوفر مساحة (بالبكسل أو الميكرون حسب المعايرة) مع مرور الوقت.
- اختر قناة الفلورة التي تمثل صبغ PI (مثل القناة 2). تطبيق العتبة وتحليل الجسيمات كما سبق لتحديد الخلايا الميتة. استخدم إضافة Calculator Plus لضرب أقنعة خلايا PI-إيجابية باستخدام قناع الكرة الدبقية، وبشكل منفصل مع أقنعة الغزو لقياس الخلايا الميتة للمناطق المحددة.
- تصدير الأقنعة، خرائط الاحتمالات، والجداول الملخصة كملفات TIFF وCSV مع أسماء ملفات واضحة ووصفية للتوثيق والتحليل لاحقا. عند استخدام السكريبت المرفق في الملحق يمكن العثور على اتفاقية التسمية التالية: مثل FileName_Scene#_(PI-)Invasion_Summary.csv (بيانات الكائنات عبر الزمن)، FileName_Scene#_(PI-)Invasion.zip (المناطق المعرفة بجسيمات التحليل).
ملاحظة: الملف التكميلي 1 سيولد ملفات TIF مفردة مع صور تايم لابس لكل مشهد. الملف الإضافي 2 سيشغل تصنيف بكسل WEKA بناء على ملف نموذج تصنيف محدد مسبقا على جميع المشاهد وجميع الصور في كل فاصل زمني يوفر خرائط احتمالية للكرة الدبقية وكذلك الخلايا الغازية. الملف التكميلي 3 سيقسم جميع الصور إلى كرات دبقية وخلايا غازية ويحدد المناطق المغطاة وكذلك تقسيم المناطق المغطاة بالخلايا الميتة (PI-إيجابية). يفترض الملف التكميلي 4 الذي يجب تشغيله وجود طريقة عتبة محددة ومنطقة محددة لتحليلها، بينما يسمح الملف التكميلي 3 للمستخدم بتعيين العتبة وضبط المنطقة لكل مشهد. يجب ألا يتم تغيير العتبة إلى طرق مختلفة لكل مشهد، بل يمكن تعيينها لطرق مختلفة لكل كائن.
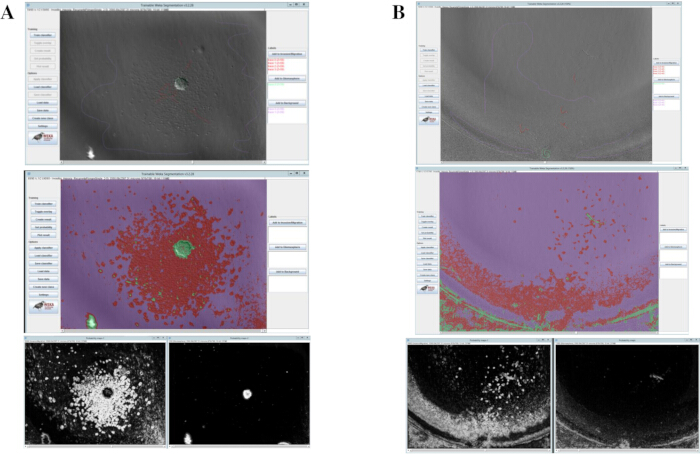
الشكل 4: تحدي معالجة الصور القابلة لإعادة الإنتاج بسبب ضعف تقسيم الكرة الدبقية. استخدام إضافة تقسيم WEKA القابلة للتدريب في فيجي تظهر (أ) كرة الدبقية المركزية مع تقسيم أكبر لمساحة الهجرة مقابل الخلفية مقابل (ب) الكرة الدبقية الموضعية على الحافة، مما يؤدي إلى تقسيم ضعيف للصورة وتكرار غير قابل للاستخدام. من خلال ضمان الاتساق في تحديد موقع الكرة الدبقية، تظهر معالجة الصور عبر النسخ البيولوجية كما هو موضح في (A)، مما يحسن بشكل كبير من قابلية تكرار الاختبارات والأتمتة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
النتائج
باستخدام اختبار الهجرة ثلاثي الأبعاد الموصوف في ظروف نقص الأكسجين، تم علاج الكرات الدبقية الناتجة عن أورام المرضى المتكررة إما بدواء المركبة أو الدواء X، وتمت مراقبة ديناميكيات الغزو كل ساعة لمدة 72 ساعة. يصف الشكل 5 تحليل تقسيم WEKA لديناميكيات الغزو، كاشفا أن الدواء X يقلل بشكل كبير من الإمكانات الغازية للكرات الدبقية المتكررة مقارنة بضوابط المركبات تحت ظروف نقص الأكسجين ذات الصلة سريريا.
لتقييم تأثير الدواء X على خصائص الخلايا الجذعية بعد الهجرة بشكل أكبر، تم تثبيت وصبغ الدواء الدبقي المناعي للتعبير وتحديد موقع علامة الخلايا الجذعية للورم الأرومي الدبقي CD44، كما هو موضح في الشكل 6. يسهل هذا التحليل متعدد القنوات تصور ديناميكيات الهجرة وتعبير علامات الخلايا الجذعية، مما يوفر رؤى حول كيفية تعديل دواء X لكل من الخصائص المحتملة الغازية والخصائص الشبيهة بالجذع لنماذج الورم الدبقي المتكرر تحت ظروف نقص الأكسجين ذات الصلة سريريا.
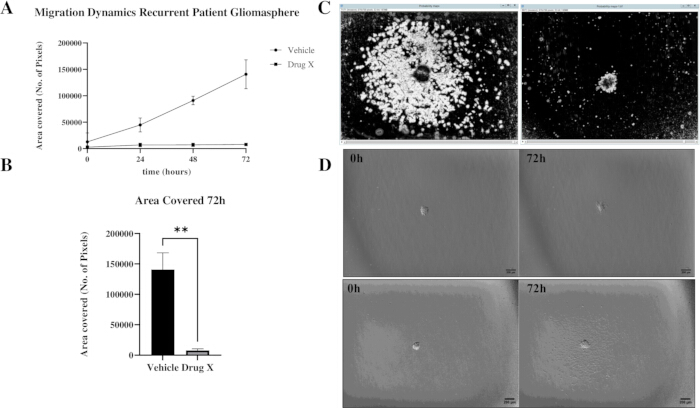
الشكل 5: اختبار الهجرة المحسن يبرز فعالية الدواء الجديد X في منع الهجرة المتكررة للورم الدبقي الكروي. عولجت الكرات الدبقية المتكررة المستمدة من المريض بالمركبة أو الدواء X لمدة 72 ساعة في ظروف نقص الأكسجين. تم التقاط ديناميكيات الغزو كل ساعة لمدة 72 ساعة. (A) تم إرسال صور ضوئية ممثلة لديناميكيات الغزو عند 0 ساعة و72 ساعة في اللوحة العلوية - المعالج بالمركبة واللوحة السفلية - تم معالجة الدواء X. (ب) خرائط احتمالية تمثيلية لمنطقة الغزو المستخدمة في تحليل التقسيم. (ج) أظهرت الكرات الدبقية المتكررة المعالجة بالدواء X إمكانات غازية أقل بكثير مقارنة بالكرات الدبقية المعالجة بالمركبات. أظهر قياس المنطقة الغازية عند 72 ساعة انخفاضا ملحوظا في الغزو الدبقي المعالج بدواء X، ممثل كإجمالي مساحة مغطاة وقت التثبيت. تمثل البيانات مساحة الغزو عبر الزمن من n=3 نسخ مستقلة. تم تقييم الدلالة الإحصائية باستخدام اختبار t غير مزدوج؛ يشار إلى p < 0.005 بواسطة **. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
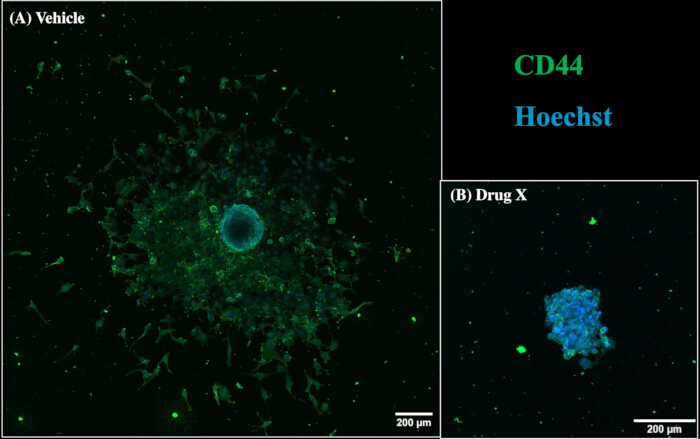
الشكل 6: الهجرة وتعبير علامات الخلايا الجذعية بعد العلاج. تم تثبيت الكرات الدبقية الموصوفة في الشكل 5 بعد الهجرة وصبغها مناعي باستخدام جسم مضاد يستهدف مؤشر الخلايا الجذعية للورم الأرومي الدبقي CD44 بعد العلاج بالمركبة أو الدواء X. يوضح هذا الشكل نوع التحليل المتعدد الأبعاد بعد الهجرة الذي يمكن إجراؤه باستخدام تقنيات التلوين المناعي القياسية. تظهر الصور CD44-FITC (أخضر) وهوشت (نوى زرقاء). شريط المقياس = 200 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
الملف الإضافي 1: إعادة حفظ ملفات CZI متعددة المشاهد من المجهر كمشاهد واحدة كملفات TIF.يرجى الضغط هنا لتحميل هذا الملف.
الملف التكميلي 2: توليد خرائط احتمالية باستخدام نموذج ويكا.يرجى الضغط هنا لتحميل هذا الملف.
الملف التكميلي 3: تحليل التقسيم بدون عتبة. يرجى الضغط هنا لتحميل هذا الملف.
الملف التكميلي 4: تحليل التقسيم مع العتبة. يرجى الضغط هنا لتحميل هذا الملف.
المناقشة
يعد نمذجة الديناميكيات الغازية للأورام شديدة العدوانية مثل الورم الأرومي الدبقي أمرا بالغ الأهمية لتحسين فهمنا لعمليات المرض وتحديد استراتيجيات علاجية أكثر فعالية. تتطلب الطبيعة المعقدة والتكيفية والبلاستيكية لهجرة خلايا الورم الأرومي الدبقي نماذج ما قبل السريرية يمكنها التقاط السلوكيات الديناميكية لخلايا الورم الدبقي الفردية بدقة أثناء هجرتها من كتلة الورم المركزية. ومن المهم أن نمذجة هذه العمليات عبر عينات المستمدة من المرضى من مراحل مختلفة من المرض يمكن الباحثين من معالجة تحدي تباين الأورام بشكل أفضل وتحديد أي تغييرات في ديناميكيات الغزو.
وبالنظر إلى هذا التعقيد، من المعقول افتراض أن النماذج ما قبل السريرية يجب أن تمتلك مستوى مماثلا من التعقيد. هنا، نصف طريقة محسنة لتوليد كرات دبقية مشتقة من المرضى ذات حجم موحد تم زراعتها بالتعاون مع جسيمات أكسيد الحديد النانوي. تسمح هذه الطريقة بتحديد مواقع متحكم بها للكرات الدبقية في مركز كل بئر، مما يتيح تصوير الخلايا الحية بشكل آلي لديناميكيات الغزو. سلطت عدة دراسات الضوء على تفاوتا كبيرا في حجم الكرويدات وشكلها وحركية النمو عند استخدام طرق الزراعة ثلاثية الأبعاد التقليدية، وأظهر سايد وزملاؤه أن الكرويدات يمكن أن تظهر توزيعات أقطار واسعة بين تلك المشتقة من مجموعات الخلايا الجذعية السرطانية غير المفترسة مقابل الفرزة، مما يعكس التباين الفطري في تكوين الكرويدات15,16. وقد تم تحديد هذا التباين أيضا كمصدر رئيسي لمشاكل قابلية التكاثر في اختبارات فحص الأدوية القائمة على الكرويد، مما يؤكد أهمية توليد تجمعات كروية متجانسة12. تؤكد هذه النتائج ضرورة توحيد شروط تكوين الكريات قبل إجراء التحليلات الوظيفية، وهي تحديات تعالجها هذه الطريقة مباشرة. من خلال توحيد حجم وموقع الكروي، تعزز هذه الطريقة بشكل كبير قابلية التكرار وتقلل من التباين المرتبط عادة بأنظمة زراعة الخلايا ثلاثية الأبعاد، حيث يمكن أن يؤثر تكوين الكروي غير المتساوي على التحليل اللاحق.
خلال التطوير الأولي لهذا الاختبار، لاحظنا تباينا كبيرا في تحديد مواقع الكرويدات عبر النسخ المكررة، مما تطلب استخدام عدد كبير من الآبار في كل تجربة وأيضا العديد من النسخ البيولوجية للحصول على نتائج ذات دلالة إحصائية. لم يزيد هذا فقط من عبء العمل، بل أدى أيضا إلى زيادة كبيرة من البيانات غير القابلة للاستخدام، مما قلل من كفاءة الاختبارات وقابلية التكرار. لذلك، عكس التباين الناتج فقدان البيانات القابلة للقياس بدلا من اختلافات في سلوك الغزو. من خلال مركزية الكرات الدبقية داخل كل بئر، يضمن التمركز المغناطيسي أن الصور من جميع النسخ يمكن تقسيمها وتحليلها بشكل متسق، حتى عندما تلاحظ اختلافات بيولوجية في ديناميكيات الغزو بين العينات.
إدخال جسيمات أكسيد الحديد النانوية يدخل قوة مغناطيسية لطيفة تجمع باستمرار الكرات الدبقية عبر جميع الآبار، مما يحسن بشكل كبير أداء خط معالجة الصور، ومعالجة البيانات، والتحليلات بعد الهجرة، دون التأثير على بيولوجيا أو قابلية العيش في الكرة الدبقية8. ميزة رئيسية لهذا النظام هي توافقه مع التحليل المتعدد بعد الهجرة، فعلى سبيل المثال، يمثل الشكل 6 تحليل تصور علامة الخلايا الجذعية للورم الدبقي CD44، مما يتيح تقييم تعبير الخلايا الجذعية الشبيهة بالخلايا الجذعية بعد الهجرة والعلاج عبر عينات المرضى. تسلط هذه القدرة الضوء على إمكانيات المنصة للدراسات التكاملية التي تربط الأنماط الظاهرية الغازية بالميزات الجزيئية، وهو اعتبار مهم نظرا للمرونة الظاهرية لخلايا الخلايا الشبيهة بالورم الأرومي الدبقي استجابة للإشارات البيئية الدقيقة وقدرتها على تجنب العلاج مما يعزز تكرار الورم الحتمي.
بينما يحسن هذا الاختبار بشكل كبير قابلية تكرار ديناميكيات غزو الكروي الفردي، لا تزال هناك بعض القيود الحرجة التي يجب أخذها في الاعتبار لتحسين الاختبارات مستقبلا. ماتريجيل هو نموذج واسع الاستخدام لأغشية القاعدة، لكنه بديل معقد وغير محدد لمصفوفة خارج الخلية (ECM) مشتق من ساركوما الفئران، والذي لا يعيد تماما بيئة الدماغ البشرية الدقيقة17. قد يشمل تحسين الاختبار مستقبلا نماذج ECM خاصة بالدماغ لمحاكاة بيئة الورم الدماغي بشكل أفضل، والتي نعتقد أنها خطوة تحسين ضرورية لنماذج غزو الدماغ في المختبر18,19. بينما يظل ماتريجيل نموذجا معتمدا على نطاق واسع للعلاج العاطفي العاطفي، فإنه يمثل مصفوفة خارج الخلية غير محددة للدماغ مشتقة من ساركوما الفأر. وبالتالي، لا يعيد تماما الخصائص الكيميائية الحيوية والميكانيكية للبيئة الدقيقة في الدماغ البشري. ومن المهم أن استراتيجية التمركز المغناطيسي الموصوفة هنا مستقلة عن المصفوفة ويمكن تكييفها بسهولة مع أنظمة ECM الخاصة بالدماغ في الدراسات المستقبلية لتعزيز الصلة الفسيولوجية.
تشمل اعتبارات أخرى للاختبار المتطلبات المحتملة لتدريب نموذج تقسيم WEKA جديد لكل خط خلوي بسبب تباين العينة وتفاوتها في شكل الغزو. بالإضافة إلى ذلك، يجب تحسين كثافة البذر وتركيز الجسيمات النانوية لكل خط خلوي ونوع كروي للحفاظ على التجانس والقابلية للبقاء قبل إجراء اختبارات الهجرة عالية الإنتاجية. وبغض النظر عن هذه القيود، توفر هذه المنصة إطارا قابلا للتوسع والتكيف لدراسة غزو الورم الأرومي الدبقي الخاص بالمريض والاستجابة للعلاج. تفتح توافقها مع تصوير الخلايا الحية، وخطوط التقسيم الآلي، وتحليل التحليل اللاحق متعدد القنوات فرصا لفحص عالي المحتوى للعلاجات الجديدة، والعلاجات المركبة، والدراسات الميكانيكية للغزو من عينات أورام المرضى شديدة التغاير. علاوة على ذلك، فإن توسيع هذا الاختبار ليشمل أنظمة الزراعة المشتركة، مثل الخلايا النجمية والعصبونات العصبية والدبقية الصغيرة أو نماذج تفاعلات الحواجز الدموية والدماغية يوفر رؤى إضافية حول تفاعلات الورم الورمي التي تدفع تقدم وعودة الورم الأرومي الدبقي وتكراره.
تم تحديد عدة خطوات تقنية أثناء تطوير الاختبارات كعوامل حاسمة لإعادة الإنتاج والأداء العام للاختبار. توحيد كثافة بذور خطوط الخلايا قبل الاختبار يضمن أن حجم الكرة الدبقية الأولي متسق، مما يمكن من مقارنة ديناميكيات نمو الكروي عبر خطوط الخلايا والعلاجات والحالات. بدون هذه الخطوة التوحيدية، ستضيف أحجام الكرويدات الأولية مستوى كبيرا من التباين، والذي قد يعكس بعد ذلك استجابات متغيرة للكرات الدبقية للظروف التجريبية. يعد تحديد الموقع المركزي الدقيق للكرات الدبقية داخل كل بئر متطلبا أساسيا لالتقاط الصور الآلي الدقيق والتقسيم إلى المراحل النهائية. أدت الكرويدات غير المركزية إلى تثبيتها ضوضاء تصويرية كبيرة وتمنع استخدام تقسيم WEKA كوسيلة لتقسيم الصور إلى مناطق محددة بوضوح. من خلال ضمان تحديد جميع الكرات الدبقية في المركز، يمكن استخدام نفس مصنف WEKA عدة مرات مع انخفاض الضوضاء بشكل كبير وتحسن جودة الصورة بشكل كبير. يظهر تمثيل لهذا في الشكل 1. لذلك، فإن دمج جزيئات أكسيد الحديد المغناطيسية النانوية هو طريقة لضمان الموقع المركزي للكرات الدبقية، مما يقلل من التغير الموقعي ويحسن بشكل كبير معالجة الصور وقابليتها للمقارنة بين النسخ المتكررة. أخيرا، يمثل تدريب نموذج التقسيم ضمن خط أنابيب WEKA خطوة توحيد قياسية حاسمة إضافية. نظرا للتغاير بين المرضى والاختلافات في شكل الغزو، قد لا يعمم نموذج تقسيم واحد عبر جميع العينات. إعادة تدريب أو تحسين معايير التصنيف لكل خط خلوي يضمن خرائط احتمالية دقيقة للمناطق الغازية ويمنع حدوث أخطاء كمية.
بشكل عام، يوفر هذا الاختبار منصة قابلة للتكرار والتوسع لدراسة السلوكيات الغازية الديناميكية لعينات الورم الدبقي المشتقة من المرضى في الوقت الحقيقي. توافقه مع التصوير متعدد الأجزاء والتحليلات الجزيئية في المراحل النهائية يجعله أداة قوية ومتعددة الاستخدامات لكل من أبحاث الورم الدبقي الأساسي والترجمي، مما سيعزز بشكل كبير الصلة الانتقالية لنماذج الورم الأرومي الدبقي قبل السريري.
الإفصاحات
لا يوجد شيء للكشف عنه
شكر وتقدير
وقد دعم هذا العمل من قبل مؤسسة العلوم في أيرلندا (Research Ireland) بموجب رمز المنح 20391A01، ومجلس أبحاث الصحة بموجب رمز المنحة ERA-TRANSCAN-2022-002. تم توفير الخلايا بلطف من قبل متعاونينا في مختبر ديركس، ومستشفى سيككيدز، تورونتو، ومركز إيراسموس الطبي (EMC)، روتردام.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| مجموعة الطباعة الحيوية 96 بئر، شفاف | غرينر | 655840 | |
| أكوتاز | إنفيتروجين | 00-4555-56 | لا يوجد |
| مكمل B-27 (50X)، مصل وكمية غير دقيقة؛ حر بدون فيتامين أ | جيبكو | 12587010 | 10% |
| عامل النمو الأساسي للأرومات الليفية، بشري وشخصي؛ (bFGF) | بيبروتك | 100-18B | 20 ng/ml |
| سيل ديسكفرر 7 | زايس | - | |
| الصفائح الكروية الدقيقة من كورنينج | كورنينغ | CLS4515 | |
| مصفوفة كورنينج ماتريجيل | كورنينغ | 354234 | التخفيف النهائي 1:100 |
| عداد الخلايا الآلي كونتيس | إنفيتروجين | - | |
| DMEM-F12 (500 مل) | ثيرموفيشر | 11320-074 | لا يوجد |
| عامل نمو البشرة البشرية (EGF) | بيبروتك | AF-100-15 | 20 ng/ml |
| فأر FITC المضاد للإنسان CD44 | بي دي فارمينجن | 555478 | 1:100 |
| صفائح ميكروكروسية لزراعة خلايا البوليسترين بئر Greiner CELLSTAR 96 مع بئر F-Bottom/مدخنة، وميكرو؛ شفاف، أسود، TC، معقم، مع غطاء | غرينر | 655090 | |
| هيبارين | ثيرموفيشر | A16198 | 5µ g/ml |
| هوشت 33258 | سيغما ألدريتش (ميرك) | 861405 | 1&ميكرو; g/ml |
| نانو شاتل-PL | غرينر | 657841 | 1.5 > l/10,000 خلية |
| البنسلين - ستريبتوميسين | ميرك | P4333 | 1% |
المراجع
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
إعادة الطباعة والأذونات
