光诱导未修饰蛋白质交联(PICUP)技术可用于表征亚稳态蛋白质混合物中寡聚体的大小分布。我们展示了将PICUP应用于三种典型的淀粉样肽:淀粉样β蛋白的40和42个残基形式、降钙素,以及一种对照肽生长激素释放因子。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
淀粉样变性蛋白组装成有毒寡聚体是包括阿尔茨海默病、帕金森病、亨廷顿病、遗传性肌萎缩侧索硬化症以及2型糖尿病在内的蛋白质错误折叠疾病发病过程中的关键事件。由于这些蛋白质组装体具有亚稳态特性,使用传统方法(如电泳、色谱法、荧光法或动态光散射)难以对其寡聚体大小分布进行定量评估。淀粉样变性蛋白的寡聚体以亚稳态混合物形式存在,其中寡聚体同时发生解离为单体和缔合成更大组装体的过程。光诱导交联法(PICUP)通过共价交联稳定寡聚体群体,当与分馏方法(如十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)或尺寸排阻色谱法(SEC))结合使用时,PICUP能够捕捉交联前存在的寡聚体大小分布的快照。因此,PICUP可实现对亚稳态蛋白质群体的可视化和定量分析,并可用于监测蛋白组装过程,解析序列修饰与寡聚化之间的关系。1. 从机制上讲,PICUP 涉及 Ru 的光氧化2+在三联吡啶合钌(II)配合物(RuBpy)中,将钌还原3+通过在电子受体存在下用可见光照射。Ru3+是一种强效的单电子氧化剂,能够从邻近的蛋白质分子中夺取一个电子,从而生成蛋白质自由基1,2. 自由基是不稳定的高活性物质,因此会通过多种分子内和分子间反应迅速消失。自由基可利用未成对电子的高能量与另一个蛋白质单体反应,形成二聚体自由基,随后失去一个氢原子,生成稳定的共价连接的二聚体。该二聚体可进一步通过类似机制与单体或其他二聚体反应,形成更高阶的寡聚体。与其它光交联或化学交联方法相比,PICUP 具有以下优势3,4包括短暂(≤1 秒)暴露于非破坏性可见光,无需pre facto对天然序列的修饰,以及零长度共价交联。此外,PICUP 能够在广泛的 pH 和温度范围内实现蛋白质的交联,包括生理条件。在此,我们展示了 PICUP 在三种淀粉样蛋白——40 和 42 个残基的淀粉样 β 蛋白变体(Aβ40 和 Aβ42)以及降钙素,以及一种对照蛋白生长激素释放因子(GRF)——交联中的应用。
方案
1. 肽的制备
- 使用微量天平称取约 100–200 μg 冻干肽,并转移至已标记的、硅化涂层、低吸附性的微量离心管中。本实验中使用人源 Aβ40、Aβ42、降钙素和 GRF 的序列。
- 本实验中使用经 1,1,1,3,3,3-六氟异丙醇(HFIP)预处理的肽,以获得均一且无聚集物的样品。此步骤是必要的,因为预先形成的聚集体可诱导淀粉样蛋白迅速聚集,导致实验间重复性差5。其他方法如过滤和尺寸排阻色谱(SEC)也可用于制备适用于 PICUP 的无聚集物样品6。
- 为用 HFIP 处理肽,首先在冰上预冷 HFIP 容器,操作时需在通风橱内佩戴适当的防护装备(HFIP 具有挥发性和毒性)。冷却一个 250 ml 的瓶子通常需要 10–15 分钟。将 HFIP 加入预先冷却的含有冻干肽的管中,使肽的终浓度为 0.5 mM。
- 在室温下,将肽溶液置于水浴超声仪中进行超声处理 5 分钟。
- 轻轻涡旋混匀,并在室温下孵育 30 分钟。
- 将管置于冰上冷却(1 分钟),然后将溶液分装为 10–50 μl 的等分试样,放入已标记的 0.6 ml 低吸附性管中。
- 通过通入温和的氮气流蒸发去除 HFIP,或在通风橱中敞口过夜。若选择过夜蒸发,应将敞口管置于管架中,并用一张较大的 Kimwipes 纸覆盖,以防止灰尘和颗粒污染。
- 将残留的 HFIP 在冻干机或离心浓缩仪中真空干燥 30 分钟,或在连接真空泵的干燥器中干燥 2 小时。in vacuo 干燥后,最终产物为附着在微量离心管底部的肽薄膜。若干燥充分,管子可在 −20 或 −80 °C 下密封保存较长时间(数月)。
2. 溶解经HFIP处理的多肽并进行光交联
- 在将经 HFIP 处理的肽用于交联反应之前,需先配制交联试剂和淬灭试剂。
- 称取过硫酸铵(APS,分子量 228.2 g/mol),用 10 mM 磷酸钠缓冲液(pH 7.4)配制成 20 mM 溶液。使用涡旋振荡器混匀,直至溶液澄清。
- 用 10 mM 磷酸钠缓冲液(pH 7.4)配制 1 mM 的三(2,2'-联吡啶)二氯合钌(II)六水合物(RuBpy,分子量 748.63 g/mol)溶液。使用涡旋振荡器混匀,并确认完全溶解。用铝箔包裹管子以避光。
- 为进行交联后的 SDS-PAGE 分析,可使用 5% β-巯基乙醇溶于 2× SDS-PAGE 上样缓冲液作为方便的淬灭试剂。也可选用 1 M 二硫苏糖醇(DTT,分子量 154.5 g/mol)溶于去离子水或适当缓冲液中。
- 将经 HFIP 处理的肽膜先溶于稀 NaOH 溶液,再加入磷酸钠缓冲液,使肽终浓度约为 30 μM。向含有肽膜的离心管中加入 60 mM NaOH 溶液,随后加入去离子水,使 NaOH 和水分别占最终体积的 10% 和 45%。用枪头刮下管壁内侧的肽膜,通过反复吹打混匀,并在水浴超声仪中超声 5 分钟。
- 加入 45% 的 20 mM 磷酸钠缓冲液(pH 7.4),通过移液混匀,然后在 16,000 g 离心 10 分钟。另取部分未交联的肽样品与淬灭试剂混合,作为阴性对照备用。
- 将相机快门延迟时间调整为 1 秒。若照射时间过长,剧烈的自由基反应可能导致蛋白降解。装入相机快门,当使用新蛋白进行该方法时,可能需要优化照射时间。
- 典型的 PICUP 反应在 20 μl 体系中进行。将 18 μl 肽溶液转移至薄壁透明的 0.2 ml PCR 管中。
- 向肽溶液中加入 1 μl RuBpy,随后加入 1 μl APS,并通过移液混匀(反应体系中 RuBpy 和 APS 的终浓度分别为 0.05 mM 和 1 mM)。
- 迅速将反应管放入 1.8 ml 玻璃小瓶中,再将小瓶放入连接在相机机身前方的皮腔内。装上镜头保护盖,按下快门,使样品在皮腔内照射 1 秒。
- 照射完成后,迅速将小瓶从皮腔中取出,再将 PCR 管从小瓶中取出。立即加入 1 μl DTT 或 10 μl 还原性 PAGE 上样缓冲液以淬灭反应。对每份肽样品重复上述反应。
- 反应混合物可于 −20 °C 冻存,但不超过 7 天,或在冰上保存,随后进行 SDS-PAGE 分析及银染检测。
3. 交联肽产物的SDS-PAGE及银染
- 通过常规 SDS-PAGE 和银染法观察交联肽。
- 每泳道上样 5 μl 反应混合物,以获得每泳道约 130 pmol 的肽段。
- 为便于比较,应包含等量的未交联肽。同时加入标准蛋白质 ladder,用于直观估计肽段条带的分子量。
- 使用标准凝胶电泳装置进行电泳。我们采用 Invitrogen 的 XCell SureLock Mini-Cell 系统,并按照 Invitrogen 出版物 IM-1002《Novex 预制凝胶电泳指南》中的方法进行银染。
第4部分:代表性结果(图1)
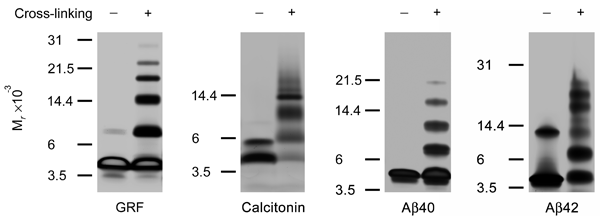
图1:银染聚丙烯酰胺凝胶显示未交联(−)和光交联(+)的GRF、降钙素、Aβ40和Aβ42
PICUP 生成的 Aβ40 寡聚体的 SDS-PAGE 及银染分析显示,单体至四聚体的条带强度大致相似,随后更高阶寡聚体的丰度急剧下降7。未交联的 Aβ40 迁移速率对应的相对分子质量(Mr)与单体一致7。Aβ42 表现出不同的寡聚体尺寸分布。Aβ42 寡聚体包含 2–3 个组8。第一组为单体至三聚体,其条带强度随寡聚体级数增加而递减;第二组在四聚体至七聚体之间呈现类似高斯分布的模式,以五聚体和六聚体为峰值;第三组(此处未显示)包含 Mr 约为 30,000–60,000 Da 的寡聚体8。这些高 Mr 寡聚体通常在使用 SEC 分离的低分子量 Aβ42 时观察到,而在经滤膜或 HFIP 处理制备的肽段中则未见6。未交联的 Aβ42 主要产生两条条带:单体条带和一条宽泛的三聚体/四聚体条带,后者是由 SDS 引起的人为假象5,9。降钙素产生的寡聚体尺寸分布在单体至四聚体范围内显著偏离单调指数下降趋势,提示二聚体、三聚体和四聚体在反应前已预先存在7。作为对照的多肽 GRF 则产生从二聚体至六聚体的单调寡聚体分布,其表观相对含量随分子质量增加呈指数衰减。在其他实验中,也可观察到更高阶的寡聚体7。寡聚体条带的确切数目及其相对强度在不同实验间可能略有差异,具体取决于实际蛋白浓度、上样量以及银染染色步骤中的显色时间。
访问受限。请登录或开始试用以查看此内容。
讨论
PICUP 最初被开发用于研究稳定的蛋白质复合物2。此后,该方法被应用于对不稳定淀粉样蛋白组装体的定量研究,包括 Aβ10、朊病毒以及与疾病相关的 PrPSc 11 和 α-突触核蛋白12。设计 PICUP 实验时必须考虑的最重要因素包括试剂的化学计量比、辐照时间以及样品制备流程。前两个问题可能需要通过实验进行优化,而后者则在很大程度上影响实验数据的解读。特别是对于淀粉样变性蛋白,要确定不稳定寡聚体的尺寸分布,必须使用无聚集物的起始样品。PICUP 的背景原理、作用机制、仪器设备、实验方案、优化方法、适用范围、改进形式、应用领域及局限性已在先前的文献中进行了详细阐述1,2,13。PICUP 可用于生成稳定的可溶性蛋白质寡聚体,这些寡聚体在经过分级分离和纯化后,可用于结构研究、细胞毒性检测、寡聚化抑制研究,以及作为分子识别工具开发的靶标。
访问受限。请登录或开始试用以查看此内容。
致谢
本工作获得了美国国立卫生研究院/国家老龄化研究所(NIH/NIA)资助项目AG027818和AG030709、Larry L. Hillblom基金会资助项目2005/2E、阿尔茨海默协会资助项目IIRG-07-58334以及加利福尼亚州公共卫生部资助项目07-65798的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 | |
|---|---|---|---|---|
| Dolan-Jenner 200 W 白炽灯 | 其他 | Dolan-Jenner Industries | Model 170-D | 灯产生的热量–对短时间孵育的样品无影响。 |
| 35毫米单镜头反光相机机身 | 工具 | Pentax | SP500 模型 | 在我们的设置中,相机机身连接了一个风箱,为放置在距离光源10 cm处的样品提供了一个便于照射的腔室。 |
| 透明薄壁 PCR 管 | 其他 | Eppendorf | 951010006,由 Fisher L22-003-24 提供 | |
| 玻璃小瓶(1.8 mL) | 其他 | Kimble Chase | 60940A 2,由 Fisher 03-340-60 提供 | |
| GRF | 试剂 | Bachem | H-3695 | |
| HFIP | 试剂 | TCI America | H0424 | 在通风橱中操作。 |
| Aβ40 和 Aβ42 | 试剂 | 加州大学洛杉矶分校生物聚合物实验室 | ||
| 降钙素 | 试剂 | 美国肽 | 22-1-10 | |
| 三(2,2-联吡啶)二氯合钌(II)六水合物 | 试剂 | Sigma-Aldrich | 224758-1G | 涡旋至溶液澄清。用铝箔包裹RuBpy管,以避光保存。RuBpy需每次新鲜配制,且应在48小时内使用。 |
| 过硫酸铵 | 试剂 | Sigma-Aldrich | A-7460 | 涡旋至溶液澄清。APS 每次现配,且应在 48 小时内使用。 |
| β巯基–乙醇 | 试剂 | Sigma-Aldrich | M7154-25 ML | 可在进行SDS-PAGE分析时使用。 |
| Novex Tricine SDS 样品缓冲液 (2x) | 试剂 | Invitrogen | LC1676 | |
| XCell SureLock 微型细胞 | 工具 | Invitrogen | EI0001 | |
| Novex Tricine 凝胶(10-20%) | 其他 | Invitrogen | EC6625B0X | |
| Novex Tricine SDS 电泳缓冲液(10x) | Invitrogen | LC1675 | ||
| 银染快速染色试剂盒 | Invitrogen | LC6100 |
参考文献
- Bitan, G. Structural study of metastable amyloidogenic protein oligomers by photo-induced cross-linking of unmodified proteins. Methods Enzymol. 413, 217-236 (2006).
- Fancy, D. A., Kodadek, T. Chemistry for the analysis of protein-protein interactions: rapid and efficient cross-linking triggered by long wavelength light. Proc. Natl. Acad. Sci. USA. 96, 6020-6024 (1999).
- Kluger, R., Alagic, A. Chemical cross-linking and protein-protein interactions—a review with illustrative protocols. Bioorg. Chem. 32, 451-472 (2004).
- Tomohiro, T., Hashimoto, M., Hatanaka, Y. Cross-linking chemistry and biology: development of multifunctional photoaffinity probes. Chem. Rec. 5, 385-395 (2005).
- Bitan, G., Fradinger, E. A., Spring, S. M., Teplow, D. B. Neurotoxic protein oligomers—what you see is not always what you get. Amyloid. 12, 88-95 (2005).
- Bitan, G., Teplow, D. B. Preparation of aggregate-free, low molecular weight amyloid-β for assembly and toxicity assays. Methods Mol. Biol. 299, 3-9 (2005).
- Bitan, G., Lomakin, A., Teplow, D. B. Amyloid β-protein oligomerization: prenucleation interactions revealed by photo-induced cross-linking of unmodified proteins. J. Biol. Chem. 276, 35176-35184 (2001).
- Bitan, G., Kirkitadze, M. D., Lomakin, A., Vollers, S. S., Benedek, G. B., Teplow, D. B. Amyloid β-protein (Aβ) assembly: Aβ40 and Aβ42 oligomerize through distinct pathways. Proc. Natl. Acad. Sci. USA. 100, 330-335 (2003).
- Hepler, R. W., Grimm, K. M., Nahas, D. D., Breese, R., Dodson, E. C., Acton, P., Keller, P. M., Yeager, M., Wang, H., Shughrue, P., Kinney, G., Joyce, J. G. Solution state characterization of amyloid β-derived diffusible ligands. Biochemistry (Mosc). 45, 15157-15167 (2006).
- Bitan, G., Teplow, D. B. Rapid photochemical cross-linking—a new tool for studies of metastable, amyloidogenic protein assemblies). Acc. Chem. Res. 37, 357-364 (2004).
- Piening, N., Weber, P., Hogen, T., Beekes, M., Kretzschmar, H., Giese, A. Photo-induced crosslinking of prion protein oligomers and prions. Amyloid. 13, 67-77 (2006).
- Li, H. T., Lin, X. J., Xie, Y. Y., Hu, H. Y. The early events of α-synuclein oligomerization revealed by photo-induced cross-linking. Protein Pept. Lett. 13, 385-390 (2006).
- Vollers, S. S., Teplow, D. B., Bitan, G. Determination of Peptide oligomerization state using rapid photochemical crosslinking. Methods Mol. Biol. 299, 11-18 (2005).
访问受限。请登录或开始试用以查看此内容。
重印与许可
