神经连接蛋白(neurexins)和神经连接素(neuroligins)是膜性神经元黏附蛋白,在突触分化和信号传递中发挥关键作用。C. elegans 中神经连接素缺陷突变体在感知渗透压强度方面存在缺陷,但当其同时携带编码神经连接蛋白的基因突变时,可恢复为野生型表型。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
渗透压回避行为中的Caenorhabditis elegans:两个基因的突触功能——人类NRXN1和NLGN1的同源基因作为自闭症候选基因的研究
本文内容
摘要
摘要
神经连接蛋白和神经连接素是存在于兴奋性和抑制性突触中的细胞黏附分子,对神经元网络的正常功能至关重要1。这些蛋白质分布于突触前膜和突触后膜2。小鼠研究表明,神经连接蛋白和神经连接素在突触传递中具有关键作用1。最近的研究报告指出,在人类神经系统发育过程中,神经元连接的异常可能构成多种自闭症谱系障碍病例病因的基础3。
秀丽隐杆线虫 可作为一种实验工具,用于促进对突触组分功能的研究,因其在实验室操作中简便易行,且其神经系统和突触连接已得到全面表征。 C. elegans nrx-1 和 nlg-1 基因与人类基因是直系同源的 NRXN1 和 NLGN1 分别编码α-神经连接蛋白-1和神经连接蛋白-1蛋白的基因。在人类和线虫中,神经连接蛋白和神经连接蛋白家族在功能结构域的组织上具有相似性。
线虫的头部包含一种称为鞘感器(amphid)的感觉器官,该器官介导线虫对多种刺激(包括渗透强度)的反应。鞘感器由12个具有纤毛树突和一个单个轴突前突触末端的感觉双极神经元构成4。其中两个神经元,名为ASHR和ASHL,在渗透感觉功能中尤为重要,能够检测高渗透强度的水溶性驱避物5。这两个神经元的树突延伸至口部顶端,轴突则伸向神经环,在此处与其他神经元形成突触连接,从而决定行为反应6。
为了评估神经连接蛋白(neurexin)和神经连接素(neuroligin)在高渗透压回避行为中的作用,我们采用基于4M果糖环的方法7,展示了nrx-1和nlg-1基因缺陷的秀丽隐杆线虫(C. elegans)突变体的不同反应。通过特异性的RNAi克隆8验证了这些行为表型。在线虫C. elegans中,引发RNA干扰(RNAi)所需的双链RNA(dsRNA)可通过喂食方式递送9。通过食物递送的dsRNA可诱导目标基因的RNA干扰,从而有助于鉴定相关的遗传组分及信号通路网络。
方案
1:渗透回避实验。
- 在实验前约16至24小时,从含有OP50 E. coli的NGM平板上挑选各基因型的L4幼虫期动物,转移至新的NGM平板,并在20 °C下培养。次日使用年轻成虫开始实验。
- 建议以“盲法”方式进行该实验。每种菌株的实验平板应由第二位实验人员重新标记,实验人员使用重新标记的平板进行操作,待实验结束后再揭开标签信息。
- 实验当天,用1%刚果红溶液配制4M的果糖储备液,并在室温下充分溶解。由于染料可能随时间发生沉淀,建议每次实验前检查溶液状态。
- 在NGM平板固体培养基中央,用15 μl红色4M果糖溶液画出一个环形区域(直径1 cm)。让果糖溶液充分渗入琼脂,通常需要2至5分钟。
- 将各品系的单个年轻成虫置于环内,并在接下来的10分钟内观察其对渗透屏障的反应。若动物连续六次以上避开环形区域,则判定为正常;若少于六次尝试即逃出环外,则视为渗透敏感性缺陷。
注意:每次实验必须使用对照品系。N2年轻成虫作为阳性对照,因其能明确避开环形屏障。此前曾处于饥饿状态、经过滞育幼虫阶段或来自过于干燥平板的动物不应使用。实验初期应对对照动物设两个重复,以确认实验平板和溶液状态正常。
2:通过RNAi饲喂法生成基因敲低线虫。
- RNAi 平板:NGM RNAi 饲喂平板每升含:17 g 琼脂,2.5 g 胰蛋白胨,3.0 g NaCl,1 ml 5 mg/ml 氯霉素,1 ml 1 M IPTG,1 ml 1 M MgSO₄,25 ml 1 M 磷酸钾缓冲液(pH 6.0),以及适量的含 RNAi 诱导质粒的大肠杆菌(如 HT115(DE3))。-1 胆固醇;用 H 填满烧瓶至 1 升2O 并高压灭菌。待琼脂冷却至约 65 °C,加入25 ml 1 M KPO4,pH 6.0,1 ml 1 M CaCl2,1 ml 1M MgSO₄4,0.5 ml 羧苄青霉素(50 mg/ml)-1)和 1 ml 1 M IPTG。如果使用预先配制的固体 NGM 培养基,可通过微波加热使其融化,随后将液态 NGM 置于实验台上冷却,然后加入 KPO4,pH 6.0,CaCl2,MgSO₄4,按先前所述添加羧苄青霉素和IPTG。
向每个60 mm培养皿中加入10 ml NGM。冷却后倒置平板,并在室温下过夜放置后使用。平板可置于塑料袋中保存于 4 °C 约 4-5 天。 - 细菌培养与诱导:分离菌落 E.coli HT115 (DE3) 菌株,转化含有对应目标基因片段的 L4440 载体,接种于含氨苄青霉素的Luria-Bertani (LB) 琼脂平板(每升含17 g 琼脂、10 g 胰蛋白胨、5 g 酵母提取物和10 g NaCl)上50 μg/ml)和四环素(15 μg/ml).
挑取一个细菌菌落,接种至LB培养基中 50 μg/ml 氨苄青霉素,并在振荡条件下培养6至8小时 37 °C;将该培养物的一滴接种到制备好的NGM平板上,充分干燥后,在室温下避光孵育过夜(12–24 h),以使细菌生长并启动诱导。孵育过程需避光,因为四环素对光敏感,光照可能影响不同平板间RNAi实验结果的变异性。
进行RNAi饲喂实验时,必须使用阳性和阴性对照。阳性对照为 E.coli 含有L4440载体的HT115细胞转化 unc-22 基因序列。基因的敲低 unc-22 基因产生“抽搐表型”。阴性对照为 E.coli 转入空L4440载体的HT115细胞 - 线虫处理与评分:第一天,将接种了OP50的大肠杆菌的NGM平板上的L4期线虫转移至无菌NGM平板上,并在 20 °C 12小时(禁食)。
第二天,将年轻的饥饿成年雌雄同体转移到涂有表达特定靶基因RNAi的细菌的培养板上。放置40–48小时 20 °C 以产生F1代子代。
然后将几只F1成虫转移到另一块接种了相同细菌的培养板上。24–48小时后,从F2子代中挑选并分离出年轻成虫(具有完全形成的突出阴门且产卵较少),并进行表型观察与记录。
注意:由于C的难转染特性,神经元中的RNAi诱导存在一定的局限性秀丽隐杆线虫 神经系统对RNAi的响应。为克服神经元中RNAi效率低下的问题,建议使用 rrf-3 品系,一种对神经元中RNAi效应高度敏感的遗传背景 10在我们的实验中,布里斯托尔 N2 与 rrf-3 用于分析基因和表型的菌株。
3:所用菌株。
的 秀丽隐杆线虫 本研究所用菌株见表1。突变菌株已进行杂交回交 抗N2野生型-类型 至少重复四次,以去除在诱变实验过程中可能产生的非预期随机突变。
OP50 E. coli 菌株由美国明尼苏达大学Caenorhabditis遗传中心提供。E.coli HT115 (DE3) 菌株携带含有 nrx-1 (JA:C29A12.5) 和 nlg-1 (JA:C40C9.5) 基因片段的 pL4440 质粒,由西班牙塞维利亚安达卢西亚发育生物学中心(CABD),西班牙高等科研理事会(CSIC)与巴勃罗·德奥拉维德大学联合提供,Peter Askjaer 博士惠赠。
4:代表性结果。
代表性结果如图1和图2所示。每种品系使用10只动物,并至少进行三次重复实验。
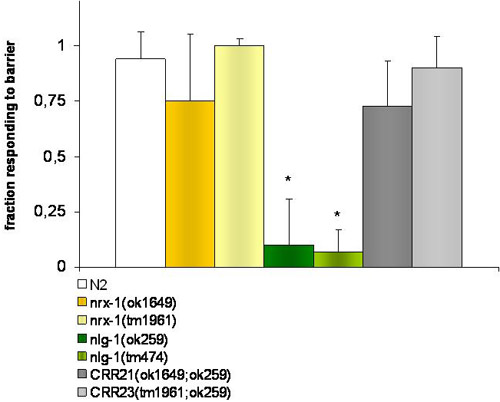
图1. 渗透压回避行为实验。
对照菌株和 nrx-1 (ok1649 和 tm1961)V 渗透压屏障(4M 果糖)存在时,缺陷型突变蠕虫会通过向后移动作出反应。 nlg-1 (ok259 和 tm474) X 突变体无法检测到这一屏障。在相关基因上存在缺陷的双突变体 nlg-1 和 nrx-1, 菌株 CRR21(ok1649 ; ok259)VX 和 CRR23(tm1961; ok259)VX 恢复了野生型表型。* 表示通过t-检验分析各菌株与野生型Bristol N2的反应,差异具有显著性(P ≤ 0.001)
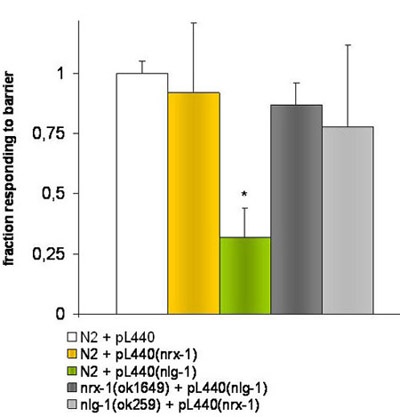
图 2. 利用RNAi饲喂法对基因敲低线虫进行的实验。
将含有空pL4440载体或插入靶基因nrx-1或nlg-1片段的E. coli HT115 (DE3)菌株用于饲喂不同线虫品系。* 表示通过t检验分析,以携带靶向nlg-1基因片段的pL4440载体的细菌饲喂的N2品系,其反应与以空pL4440载体饲喂的N2品系相比具有显著差异(P ≤ 0.001)。
访问受限。请登录或开始试用以查看此内容。
讨论
神经连接蛋白和神经连接蛋白在突触传递11以及突触连接的分化12中发挥重要作用。这两种分子均已被确定为自闭症的候选基因13,14。
在本视频中,我们展示了一种简单的方法,可用于研究影响秀丽隐杆线虫(C. elegans)渗透回避反应的基因的作用。神经黏连蛋白缺陷型突变体在感知渗透强度方面存在缺陷;而神经连接蛋白缺陷型突变体则表现出与野生型菌株相似的反应,能够避开4M的果糖溶液。然而,当无法感知果糖溶液的神经黏连蛋白突变体同时缺乏神经连接蛋白基因时,它们恢复了野生型表型,能够对渗透强度产生反应。
这一观察结果通过以下方法得到证实:使用一种 RNA干扰 喂食敲降方法。因此,当野生型菌株被喂食表达特定编码序列的细菌时,其识别渗透屏障的能力受到损害 nlg-1 基因。但是 nlg-1 无法感知渗透屏障的突变体,在喂食表达特定编码序列的细菌后,恢复了该能力 nrx-1这些结果表明,...
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢安东尼奥·米兰达-维苏埃特博士(Dr Antonio Miranda-Vizuete)提供的宝贵帮助。同时,我们向萨尔玛·布拉永纳(Salma Boulayoune)和伊莎贝尔·卡瓦列罗(Isabel Caballero)致以诚挚谢意,感谢她们提供的宝贵技术协助。本工作由安达卢西亚政府(Junta de Andalucía)资助(项目编号:BIO-272)。本研究的开展符合欧洲现行有关基因实验的法律法规。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
表1. 秀丽隐杆线虫 品系 <表格 边框="1" cellpadding="0" cellspacing="0"> | |||
| 品系 | 基因 | 等位基因 | 来源 |
| 布里斯托尔 N2 | - | - | aCGC |
| VC228 | nlg-1 | ok259 | CGC |
| FX00474 | nlg-1 | tm474 | bNBP-JAPAN |
| VC1416 | nrx-1 | ok1649 | CGC |
| FX1961 | nrx-1 | tm1961 | NBP-JAPAN |
| NL2099 | rrf-3 | pk1436 | CGC |
| CRR21 | nrx-1;nlg-1 | ok1649; ok259 | 本研究 |
| CRR22 | nrx-1;nlg-1 | tm1961;ok259 | 本研究 |
a. 秀丽隐杆线虫 美国明尼苏达大学遗传中心
b. 实验动物国家生物资源项目 "线虫 秀丽隐杆线虫"东京女子’s 医科大学, 日本
参考文献
- Sudhof, T. C. Nature. 455 (7215), 903-903 (2008).
- Fabrichny, I. P., Leone, P., Sulzenbacher, G. Neuron. 56 (6), 979-979 (2007).
- Garber, K. Science. 317 (5835), 190-190 (2007).
- Wang, K., Zhang, H., Ma, D. Nature. 459 (7246), 528-528 (2009).
- Ward, S., Thomson, N., White, J. G. The Journal of comparative neurology. 160 (3), 313-313 (1975).
- Bargmann, C. I., Thomas, J. H., Horvitz, H. R. Cold Spring Harbor symposia on quantitative biology. 55, 529-529 (1990).
- White, J. G., Southgate, E., Thomsom, J. N., Brenner, S. Philos. Trans. R. Soc. Lond. B Biol. Sci. 314, 1-1 (1986).
- Culotti, J. G., Russell, R. L. Genetics. 90 (2), 243-243 (1978).
- Fire, A., Xu, S., Montgomery, M. K. Nature. 391 (6669), 806-806 (1998).
- Timmons, L., Fire, A. Nature. 395 (6705), 854-854 (1998).
- Simmer, F., Tijsterman, M., Parrish, S., Koushika, S. P., Nonet, M. L., Fire, A., Ahringer, J., Plasterk, R. H. Curr Biol. 12, 1317-1317 (2002).
- Missler, M., Zhang, W., Rohlmann, A. Nature. 423 (6943), 939-939 (2003).
- Varoqueaux, F., Aramuni, G., Rawson, R. L. Neuron. 51 (6), 741-741 (2006).
- Graf, E. R., Zhang, X., Jin, S. X., Scheiffele, P., Fan, J., Choih, J. Cell. 119 (7), 1013-1013 (2004).
- Scheiffele, P., Fan, J., Choih, J. Cell. 101 (6), 657-657 (2000).
- Jamain, S., Quach, H., Betancur, C. Nature genetics. 34 (1), 27-27 (2003).
- Szatmari, P., Paterson, A. D., Zwaigenbaum , L. Nature genetics. 39 (3), 319-319 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
