方法文章

表达免疫刺激蛋白的重组麻疹病毒的制备

21 次观看

⸱

2026年9月30日

本文内容

摘要

来源:Heidbuechel, J. P., Engeland, C. E. 副黏病毒用于肿瘤靶向免疫调节:体外设计与评估。J. Vis. Exp. (2019)

本视频展示了利用脂质体将编码病毒抗原组和必需辅助蛋白的质粒递送至生产细胞,从而生成重组麻疹病毒的方法。转录并复制的RNA可形成表达免疫刺激蛋白和荧光报告蛋白的病毒颗粒。随后通过荧光显微镜观察合胞体的形成,以确认重组病毒的成功制备。

方案

注意:[O]、[P] 和 [M] 分别表示适用于以下内容的子章节:广义的溶瘤病毒(OVs)、(大多数)副黏病毒或仅麻疹病毒(MV)。[B] 表示针对双特异性T细胞衔接器(BTE)转基因的特定章节。

1 将编码免疫调节因子的转基因克隆至麻疹病毒载体

  1. [O] 设计插入序列。
    1. [O] 根据文献研究或探索性数据(如基因筛选)确定感兴趣的免疫调节因子,并从适当的数据库(如 GenBank、欧洲核苷酸档案库或国际 ImMunoGeneTics 信息系统(IMGT))中获取相应的互补 DNA(cDNA)序列。
    2. [O] 在转基因序列中添加额外特征(图 1)。添加前导的 Kozak 序列并进行物种特异性的密码子优化可增强表达。分泌蛋白需要信号序列。包含编码 N 端和/或 C 端蛋白标签的序列以用于检测和纯化。包含用于插入载体的限制性酶切位点。
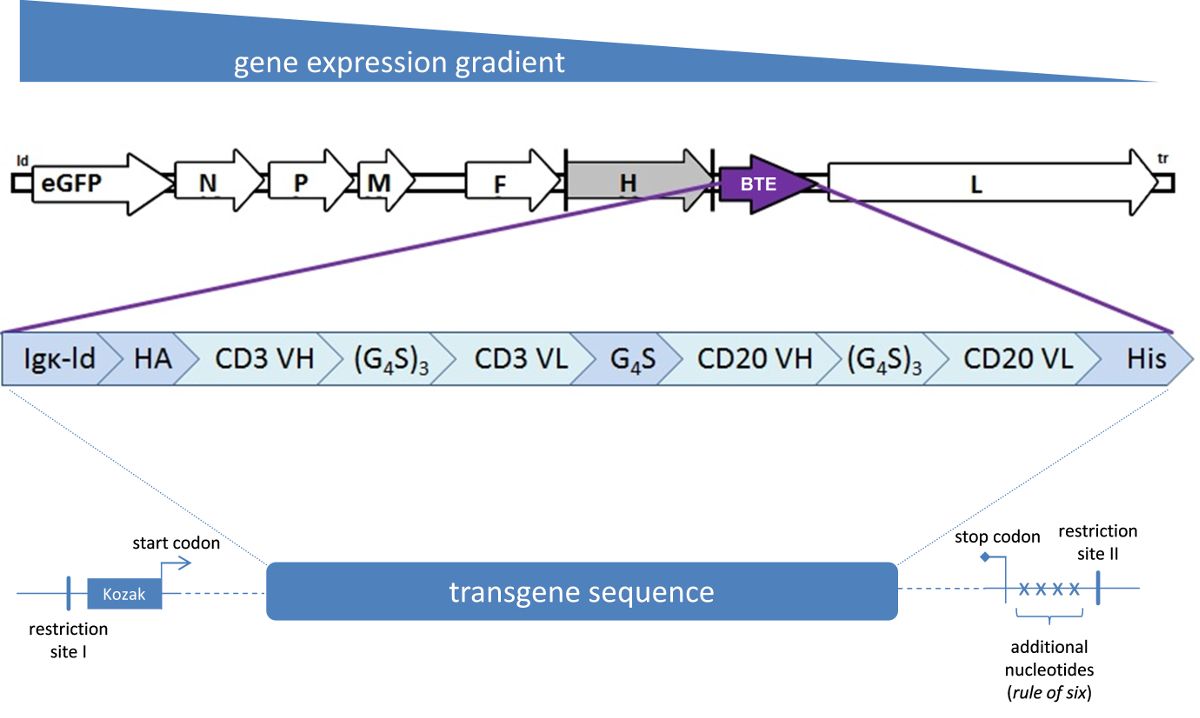
      注意: [M] 携带麻疹病毒(MV)聚合酶基因起始和终止信号的额外转录单元(ATU)对于从重组 MV 基因组中表达转基因是必需的。已有研究开发出合适的反基因组 cDNA 载体,该载体由巨细胞病毒(CMV)启动子控制,并包含具有独特限制性酶切位点的 ATU,可用于在特定位置引入正义链转基因。[P] 转基因的适当定位至关重要,因为副粘病毒科病毒具有典型的表达梯度,这会影响病毒复制和转基因表达。将转基因插入靠近反基因组 3' 端的 ATU(即引导位置或 P 基因下游)通常会导致高水平的转基因表达,但会降低病毒复制能力;而使用 H 基因下游的 ATU 则可预期获得更高的复制能力和较低水平的转基因表达。包括麻疹病毒在内的多种副粘病毒的基因组包装需要每个核衣壳蛋白结合六个核苷酸。因此,在将转基因插入此类病毒时,应确保完整基因组的核苷酸数目可被六整除,这被称为“六的规则”(rule of six)。如有必要,可在插入片段中(Kozak 序列上游或终止密码子下游)添加额外的核苷酸,但不得引入移码或提前终止密码子。[M] 应避免在转基因中使用与 MV 基因起始信号(AGGRNCMARGW)、终止信号(RTTAWANAAAA)以及 RNA 编辑序列(AAAAAGGG)相似的特定序列。
    3. [O] 购买所需序列的寡核苷酸,或使用标准分子克隆方法从现有序列组装。
      注意: [O] 为进行聚合酶链式反应(PCR)扩增转基因,设计一条正向引物,包含上游限制性酶切位点及插入片段的前 15–20 个核苷酸;设计一条反向引物,包含插入片段的最后 15–20 个核苷酸,后接下游限制性酶切位点。
  2. [O] 将插入片段克隆至编码病毒(反)基因组的 DNA 中。
    1. [O] 使用标准分子克隆技术(即酶切后进行 DNA 连接)将插入片段克隆到 RNA 病毒的 DNA 载体或 DNA 反基因组中。
      1. [O] 通过使用不兼容的限制性酶切位点或在连接前进行去磷酸化,防止载体自连。
      2. [O] 使用市售试剂盒通过琼脂糖凝胶电泳分离连接产物,并进行后续凝胶纯化。通常,当插入片段与载体的摩尔比为 3:1 时,可获得最佳连接效率。
    2. [O] 将连接产物转化至适用于高效回收大质粒的感受态细菌中(例如对 E. coli 进行热激),并通过菌落 PCR 鉴定含有正确 DNA 的细菌克隆。
    3. [O] 使用市售 DNA 提取试剂盒从单个细菌克隆中提取扩增的 DNA。通过使用适当的限制性内切酶进行对照酶切(例如,MV 基因组使用 HindIII [M])来确认基因组完整性。通过测序确认转基因的正确插入及其完整性。
      注意: [M] 对于插入 MV H-ATU 的转基因,使用以下引物进行 Sanger 测序:H-9018(正向引物,结合于 H 开放阅读框(ORF)的 MV 基因组位置 9018):5' GTGTGCTTGCGGACTCAGAATC 3';L-9249+(反向引物,结合于 L ORF 的 MV 基因组位置 9249):5' CAGATAGCGAGTCCATAACGG 3'。

2. 拯救编码免疫调节剂的重组麻疹病毒颗粒

  1. [O] 根据相应病毒的标准操作流程,通过将编码病毒抗原组的质粒转染至病毒生产细胞,从而生成重组病毒颗粒。遵循无菌操作规范。细胞培养操作均应在生物安全柜中进行,特别是所有涉及病毒的操作均需在II级生物安全柜中完成。
    1. [M] 为从cDNA拯救麻疹病毒,于转染前24小时将麻疹病毒生产细胞(非洲绿猴肾源性Vero细胞)均匀接种于6孔板中。每孔加入含10%胎牛血清(FBS)的2 mL DMEM培养基,接种2 × 10⁵个细胞,以确保转染时细胞融合度达到65–75%。
      注意: [P] 若细胞在病毒诱导合胞体形成前过度生长,则应减少接种细胞数量。
    2. [P] 使用编码病毒抗原组的DNA、必需的辅助质粒,以及(如需要)用于评估转染效率的荧光报告基因质粒对细胞进行转染。
      1. [M] 在总体积为200 µL的DMEM培养基中,混合5 µg编码麻疹病毒抗原组的重组DNA、各500 ng编码麻疹病毒N蛋白和L蛋白的哺乳动物表达质粒,以及各100 ng编码P蛋白的质粒。如需评估转染效率(且病毒抗原组构建中未包含荧光报告基因),可额外加入100 ng荧光报告质粒。
      2. 加入18.6 µL脂质体转染试剂,立即轻弹管壁混匀,室温(RT)孵育25分钟。
      3. [P] 将每孔培养基更换为1.8 mL含2% FBS和50 µg/mL卡那霉素(或其他防止污染的抗生素)的DMEM培养基,然后将转染混合物逐滴加入孔中,并轻轻摇晃混匀。于37 °C、5% CO2条件下过夜孵育。次日更换为2 mL新鲜的含2% FBS和50 µg/mL卡那霉素的DMEM培养基;当培养基变酸时重复更换。
        注意: [O] 从转染开始至后续所有步骤中,均可能存在病毒,因此必须按照生物安全规定操作细胞和相关材料。妥善处理(可能具有传染性的)废弃物。

结果

figure-results-1

图1:麻疹病毒基因组的示意图 增强型绿色荧光蛋白(eGFP)编码于位于前导序列(ld)下游的一个额外转录单元中。N、P、M、F、H 和 L 分别代表编码麻疹病毒结构蛋白的基因,即核蛋白、P 蛋白、基质蛋白、融合蛋白、血凝素蛋白和大蛋白(聚合酶),其表达水平如上图所示各不相同。一种双特异性T细胞衔接分子(BTE)转基因被插入至另一个位于下游的额外转录单元(ATU)中 H 开放阅读框。该外源基因编码免疫球蛋白κ链(Igκ)前导肽以实现高效分泌,以及用于检测和纯化的流感血凝素(HA)和六组氨酸(His)蛋白标签。分别针对CD3和CD20的抗体的可变重链(VH)和可变轻链(VL)结构域的编码基因被连接 通过 含有甘氨酸(G)和丝氨酸(S)残基的肽段连接序列。转基因序列前方包含Kozak序列。在编码区下游,额外添加了若干核苷酸作为示例,以符合“六的规则”。插入盒两侧为两个限制性酶切位点,可用于将其插入相应的ATU中。

材料

本文使用的材料清单
姓名公司目录编号评论
快速DNA去磷酸化与连接试剂盒Roche Life Science, Mannheim, Germany4898117001 
CloneJET PCR克隆试剂盒Thermo Fisher Scientific, St. Leon-RotK1231 
琼脂糖Sigma-Aldrich, Taufkirchen, GermanyA9539-500G 
QIAquick凝胶回收试剂盒QIAGEN, Hilden, Germany28704 
NEB 10-beta感受态大肠杆菌New England Biolabs (NEB), Frankfurt/Main, GermanyC3019I 
QIAquick质粒小提试剂盒QIAGEN, Hilden, Germany27104 
限制性内切酶HindIII-HFNew England Biolabs (NEB), Frankfurt/Main, GermanyR3104S 
杜尔贝科改良伊格尔培养基(DMEM)Invitrogen, Darmstadt, Germany31966-021 
胎牛血清(FBS)Biosera, Boussens, FranceFB-1280/500 
FugeneHDPromega, Mannheim, GermanyE2311可替换为其他转染试剂
卡那霉素Sigma-Aldrich, Taufkirchen, GermanyK0129 
Vero细胞ATCC, Manassas, VA, USACCL81 
6孔板Neolab, Heidelberg, Germany353046 

标签

脂质体转染病毒抗原组辅助质粒荧光显微镜合胞体形成报告蛋白表达生产细胞病毒拯救