我们描述了一种用于鉴定宿主信号分子在模式疱疹病毒——γ疱疹病毒68(γHV68)裂解性复制中关键作用的实验方案。通过利用基因修饰小鼠品系和胚胎成纤维细胞进行γHV68的裂解性复制,该方案可同时实现对病毒-宿主相互作用的表型特征分析和分子水平研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
面对病毒感染,宿主会产生多种防御反应,例如激活先天免疫信号通路,从而诱导抗病毒细胞因子的产生1,2。为了在宿主体内定植,病毒必须逃避宿主的抗病毒反应,并操控相关信号通路。解析宿主与病毒之间的相互作用,将有助于阐明针对病毒感染的新型治疗策略的开发。
小鼠γHV68与人类致瘤性卡波西肉瘤相关疱疹病毒和EB病毒密切相关3,4实验室小鼠感染γHV68为研究宿主应答和病毒感染的全过程提供了一个可行的小型动物模型 体内,这在人类疱疹病毒中尚不可行。在本方案中,我们提供了一系列方法,用于对γHV68裂解性复制过程中的宿主信号通路组分进行表型表征和分子解析 体内 和 离体基因修饰小鼠品系的可获得性使得研究人员能够探究宿主信号通路在γHV68急性感染过程中的作用 体内此外,从这些缺陷型小鼠品系中分离得到的小鼠胚胎成纤维细胞(MEFs)可用于进一步解析这些分子在γHV68裂解性复制过程中的作用 离体.
利用病毒学和分子生物学检测方法,我们可以确定宿主-病毒相互作用的分子机制,并鉴定对病毒裂解复制至关重要的宿主和病毒基因。最后,细菌人工染色体(BAC)系统有助于将突变引入特异性中断宿主-病毒相互作用的病毒因子中。携带这些突变的重组γHV68可用于重现关键宿主信号组分缺陷型小鼠胚胎成纤维细胞(MEFs)中γHV68裂解复制的表型。本方案提供了一种在多个干预层面上探究宿主-病原体相互作用的优良策略 体内 和 离体.
最近,我们发现γHV68会劫持一种先天免疫信号通路以促进病毒的裂解性复制5。具体而言,γHV68的新生感染会激活免疫激酶IKKβ,而活化的IKKβ可磷酸化病毒主要转录因子——复制和转激活因子(RTA),从而促进病毒转录的激活。通过这种方式,γHV68高效地将病毒转录激活与宿主先天免疫激活相偶联,进而促进病毒转录和裂解性复制。本研究提供了一个极佳的范例,可用于研究其他病毒与宿主相互作用的机制。
方案
1. 小鼠感染γHV68
- 使用6至8周龄、性别匹配的同窝小鼠(每组8至12只小鼠)进行病毒感染实验。小鼠运输到达后,需在实验前适应环境至少四整天(96小时)。
- 涉及病毒的操作步骤应在生物安全二级(BSL2)柜中进行,并采取标准的BSL2防护措施。
- 实验前,将γHV68病毒用无菌PBS配制成每只小鼠30 μl的病毒悬液(含40至1 × 10⁵斑块形成单位[PFU])。病毒悬液需置于冰上保存。
- 配制用于小鼠麻醉的氯胺酮/赛拉嗪溶液(每20 g体重给予1.5 mg氯胺酮和0.15 mg赛拉嗪,每只小鼠注射100 μl)。通过脚趾夹捏测试确认小鼠已进入麻醉状态。
- 通过腹腔注射方式,按每20 g体重1.5 mg氯胺酮和0.15 mg赛拉嗪(每只小鼠100 μl)的剂量对小鼠进行麻醉。
- 将病毒悬液(每只小鼠30 μl)以滴加方式经鼻腔接种至麻醉小鼠的一侧鼻孔。
- 将小鼠侧卧放置5至10分钟,以促进病毒通过气道进入肺部。
- 将小鼠放回笼中,并持续观察直至其从麻醉状态完全恢复。
- 在感染后的不同时间点,采用CO2窒息法处死小鼠,并在确认死亡或深度意识丧失后取出肺组织。将肺组织放入含有500 μl 1.0 mm氧化锆/二氧化硅珠的无菌1.5 ml螺口管中。样本管应置于冰上。若当天不进行后续操作,样本应储存于-80°C。根据实验时间安排,此时也可采集脾脏或肝脏组织用于病毒潜伏感染的分析。
- 向管中加入1 ml冷的无血清DMEM培养基,使用珠击法匀浆30秒。将管置于冰上冷却至少1分钟,重复该过程一次。
- 将肺组织裂解液在4°C下以16,000 rcf离心1分钟,取上清液用于通过斑块测定法测定病毒滴度,测定所用细胞单层为NIH3T3或BHK21细胞(详见第5节)。
2. 测定γHV68在小鼠胚胎成纤维细胞中的多步生长动力学
- 在接种细胞前一天,将野生型小鼠胚胎成纤维细胞(MEFs)及其宿主基因缺陷型细胞培养至亚汇合状态(约80%密度)。
- 感染前一天,将MEFs以每孔10,000个细胞的密度接种于24孔板中,用于低感染复数(MOI)实验。通常实验设置三个重复,MOI一般采用0.001–0.05之间。
- 制备含有适量病毒的γHV68悬液(每孔0.5 ml)。
- 吸除培养基,每孔加入0.5 ml γHV68悬液覆盖MEFs。
- 将培养板置于组织培养孵箱中孵育,每隔30分钟轻轻摇动一次,持续孵育2小时。
- 移除病毒悬液,每孔加入0.5 ml含8%胎牛血清的新鲜完全DMEM培养基覆盖细胞。
- 在感染后不同时间点,收集培养上清和细胞至无菌的1.5 ml离心管中,立即于-80°C冷冻保存。
- 通过-80°C冷冻、37°C水浴解冻并涡旋振荡的方式释放MEFs中的γHV68病毒。通常对样品进行三次冻融循环。
- 使用NIH3T3或BHK21单层细胞进行空斑实验测定病毒滴度(详见第5节)。
- 读取病毒滴度,并绘制γHV68在MEFs上的多步生长曲线。
3. 小鼠胚胎成纤维细胞中γHV68裂解性复制的分子解析
- 按照第2节中2.1至2.6步骤所述进行病毒感染。
- 在感染后的不同时间点,弃去上清液。用预冷的PBS洗涤细胞,随后进行胰蛋白酶消化。在室温下以1,000 rcf离心1分钟收集细胞,弃去上清液,将细胞沉淀储存在-80°C。
- 根据已发表的方法5,6提取总DNA(宿主和病毒基因组)和总RNA。
- 使用总DNA以及针对病毒裂解期转录本(如RTA(ORF50)、ORF57和ORF60)的特异性引物进行实时PCR。以宿主看家基因(例如β-actin)为参照,确定细胞内γHV68基因组的相对含量。
- 为去除基因组DNA污染,在使用总RNA和oligo(dT)11-19引物制备cDNA时,必须使用无RNase的DNase进行处理。有关RNA提取(包括无RNase的DNase处理和RT-PCR)的更多细节,请参见参考文献5。使用上述cDNA和引物进行实时PCR,以宿主看家基因为参照,测定病毒转录本的相对含量。
4. 利用细菌人工染色体产生重组γHV68
本文所述方法用于在参与宿主-病毒相互作用的γHV68基因中引入突变。
- 通过PCR制备一段约1.5 kb的DNA片段,该片段包含野生型序列或在中央区域带有目标突变的序列。
- 通过中等规模纯化(OriGene)制备含有转座子插入的细菌人工染色体(BAC),该插入位于目标基因突变位点附近,可特异性失活目标基因7。将BAC DNA储存于4°C(避免反复冻融)。
- 使用Lipofectamine 2000(Invitrogen)将BAC DNA和含有目标基因突变的PCR产物共转染至对γHV68裂解复制高度敏感的细胞中(例如NIH3T3或BHK21细胞)。
- 持续传代培养细胞,直至单层细胞出现细胞病变效应(CPE)。收集含病毒的上清液,并在必要时于NIH3T3或BHK21细胞中扩增病毒。
- 通过在30°C、1,800 rpm条件下离心30分钟,用重组病毒感染NIH3T3细胞。
- 收集γHV68感染的NIH3T3细胞,并按照Hirt法8,9提取环状病毒基因组。
- 通过电穿孔法将Electro-MAX DH10B感受态细胞(Invitrogen)转化,并筛选对氯霉素(Cm)耐药但对卡那霉素(Kan)敏感的菌落(Cm抗性基因位于BAC骨架中,而Kan抗性基因位于转座子插入片段中)。
- 在含氯霉素的培养基中培养CmRKanS菌落,并通过小量或中量纯化(OriGene)提取BAC DNA。
- 使用针对突变位点侧翼区域设计的特异性引物,通过PCR扩增并测序,验证目标基因中是否成功引入预期突变。
- 通过选用特定的限制性内切酶进行酶切,并结合脉冲场凝胶电泳,确认BAC中无染色体结构重排。
- 使用Lipofectamine 2000(Invitrogen)将重组BAC转染至NIH 3T3或BHK21细胞,以获得重组γHV68病毒。
- 持续传代细胞,直至单层细胞出现细胞病变效应(CPE)。收集含病毒的上清液,并在NIH3T3或BHK21细胞中扩增重组γHV68病毒。
- 测定重组病毒的滴度,并按照第1和2节所述方法,在体外(ex vivo)和体内(in vivo)条件下表征其生长特性。
5. 通过噬斑实验测定病毒滴度
- 在接种细胞前,将 NIH3T3 细胞培养至亚汇合状态(约 80% 汇合度)。
- 感染前一天,将 NIH3T3 细胞以每孔 20,000 个细胞的密度接种至 24 孔板中。
- 用含有 8% 新生牛血清(NCS)的 DMEM 培养基对病毒上清液进行 10 倍倍比稀释。
- 吸除培养基,加入 0.5 ml γHV68 悬液覆盖 NIH3T3 细胞。
- 将培养板置于组织培养孵箱中,每 30 分钟轻轻摇动一次,共孵育 2 小时。
- 移除病毒悬液,加入含 2% NCS 和 0.75% 甲基纤维素(Sigma)的 0.5 ml DMEM 培养基覆盖细胞。
- 将培养板继续置于组织培养孵箱中孵育。在感染后第 6 天计数噬斑。可使用结晶紫等染色剂对单层细胞进行染色,以辅助噬斑计数。
- 使用以下公式计算未稀释组织裂解液或细胞裂解液中的病毒滴度:滴度(PFU/ml)= D × N × 1000 μl/ml ÷ V μl。其中,N 为合适稀释度下的平均噬斑数;D 为稀释倍数(如 5、10、100……);V(μl)为每孔加入的倍比稀释上清液体积。
6. 代表性结果:
此处展示了三个代表性实验结果,包括野生型和Mavs-/-小鼠肺组织中γHV68的裂解性复制10、小鼠胚胎成纤维细胞(MEF)中γHV68裂解性复制的表型,以及携带由MAVS依赖性IKKβ调控的磷酸化位点突变的重组γHV68。这三个相互验证的实验共同构成了一套研究方案,用于明确先天免疫组分在体内(in vivo)和离体(ex vivo)条件下对γHV68裂解性复制的作用。

图1. γHV68在Mavs+/+和Mavs-/-小鼠肺组织中的病毒载量。A) MAVS下游两条主要的天然免疫信号通路。MAVS衔接分子将胞质RIG-I样受体的信号传递至NFκB和干扰素调节因子(IRFs),从而上调促炎性细胞因子和干扰素的基因表达。B) 通过鼻内接种40 PFU γHV68感染Mavs+/+和Mavs-/-小鼠,并在指定时间点采用NIH3T3单层细胞噬斑实验测定肺组织中的病毒载量。每个符号代表一只小鼠。

图 2. γHV68 在小鼠胚胎成纤维细胞(MEFs)中的裂解性复制动力学。通过多步生长曲线(A)和定量实时PCR(B)评估γHV68在Mavs+/+和Mavs-/- MEFs上的裂解性复制。两个实验均使用相同数量的MEFs和等量的γHV68进行病毒感染,感染复数(MOI)为0.01。(A)在指定时间点收集细胞和上清液,并进行噬斑测定以确定病毒滴度。(B)从感染γHV68的MEFs中提取总RNA,并使用针对选定裂解期转录本(RTA、ORF57和ORF60)的特异性引物进行定量实时PCR分析。
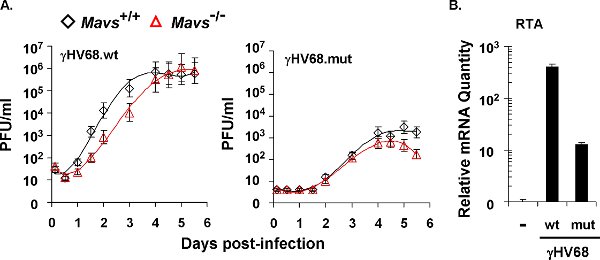
图 3. 携带 RTA 转录激活域突变(该突变可消除 IKKγ 介导的磷酸化)的重组 γHV68 病毒裂解性复制动力学。(A) 重组野生型病毒(γHV68.wt)和突变型病毒(γHV68.mut)在 Mavs+/+ 和 Mavs-/- MEF 细胞中的多步生长曲线(MOI=0.01)。以 MOI 为 0.01 感染 MEF 细胞,于指定时间点收集细胞及上清液,并通过 NIH 3T3 单层细胞的空斑实验测定病毒滴度。(B) γHV68 感染 NIH3T3 细胞(MOI=0.01)后 γHV68 RTA mRNA 水平。感染后 30 小时,提取 γHV68 感染的 NIH 3T3 细胞总 RNA,并采用定量实时 PCR 进行分析。
访问受限。请登录或开始试用以查看此内容。
讨论
在病毒感染的刺激下,依赖MAVS的先天免疫信号通路被激活,从而促进抗病毒炎症性细胞因子的产生10-14利用小鼠γHV68作为研究人类致瘤性卡波西肉瘤相关疱疹病毒和EB病毒的模型病毒3,4我们发现,γHV68 利用 MAVS-IKKβ 通路,通过转录激活促进病毒裂解复制5. 利用基因修饰的小鼠胚胎成纤维细胞(MEFs)以及分子病毒学技术,本方案可高效鉴定特定信号通路中对γHV68裂解复制至关重要的信号组分。因此,本方案包括 体内 感染, 离体 裂解性复制,以及先天免疫信号通路的解析。为阐明其分子机制,还需进行其他实验操作,包括利用细菌人工染色体构建重组疱疹病毒,以及开展分子生物学实验。此外,基因敲除小鼠品系和成纤维细胞是这些实验的关键材料。鉴于目前已有大量可用的基因敲除小鼠品系,本方案将有助于在分子水平上解析宿主信号通路及其被病毒干预的机制。若基因敲除小鼠和小鼠胚胎成纤维细胞(MEFs)不可获得(例如因基因敲除导致胚胎致死),可考虑采用RNAi/shRNA介导的基因沉默方法。本方案的其他局限性包括:1)信号通路之间的串扰;2)候选病毒因子...
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
致谢
作者感谢德克萨斯大学西南医学中心分子生物学系的 James (Zhijian) Chen 博士提供了本研究所必需的试剂,包括 Mavs-/- 小鼠,以及加州大学洛杉矶分校药理学与分子医学系的 Ren Sun 博士提供了 γHV68 的细菌人工染色体。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Lipofectamine 2000 | Invitrogen | 11668-019 | |
| Electro-MAX DH10B 感受态细胞 | Invitrogen | 18290-015 | |
| 甲基纤维素 | Sigma-Aldrich | M0512 | |
| POWERPREP HP 质粒小量提取系统 | OriGene | NP100004 | |
| POWERPREP HP 质粒中量提取系统 | OriGene | NP100006 |
参考文献
- Akira, S., Uematsu, S., Takeuchi, O. Pathogen recognition and innate immunity. Cell. 124, 783-801 (2006).
- Medzhitov, R. Recognition of microorganisms and activation of the immune response. Nature. 449, 819-826 (2007).
- Speck, S. H., Virgin, H. W. Host and viral genetics of chronic infection: a mouse model of gamma-herpesvirus pathogenesis. Curr. Opin. Microbiol. 2, 403-409 (1999).
- Speck, S. H., Ganem, D. Viral latency and its regulation: lessons from the gamma-herpesviruses. Cell Host Microbe. 8, 100-115 (2010).
- Dong, X. Murine gamma-herpesvirus 68 hijacks MAVS and IKKbeta to initiate lytic replication. PLoS Pathog. 6, e1001001-e1001001 (2010).
- Strauss, W. M. Preparation of genomic DNA from mammalian tissues. Current Protocols in Molecular Biology. Ausubel, F. M. , John Wiley & Sons, Inc. 2-2 (1998).
- Song, M. J. Identification of viral genes essential for replication of murine gamma-herpesvirus 68 using signature-tagged mutagenesis. Proc. Natl. Acad. Sci. U. S. A. 102, 3805-3810 (2005).
- Hirt, B. Selective extraction of polyoma DNA from infected mouse cell cultures. J. Mol. Biol. 26, 365-369 (1967).
- Zhao, S., Stodolsky, M. Cloning of β-herpesvirus genomes as bacterial artificial chromosomes. Methods in Molecular Biology. , Humana Press Inc. 256-256 (2004).
- Sun, Q. The specific and essential role of MAVS in antiviral innate immune responses. Immunity. 24, 633-642 (2006).
- Seth, R. B., Sun, L., Ea, C. K., Chen, Z. J. Identification and characterization of MAVS, a mitochondrial antiviral signaling protein that activates NF-kappaB and IRF 3. Cell. 122, 669-682 (2005).
- Kawai, T. IPS-1, an adaptor triggering RIG-I- and Mda5-mediated type I interferon induction. Nat. Immunol. 6, 981-988 (2005).
- Meylan, E. Cardif is an adaptor protein in the RIG-I antiviral pathway and is targeted by hepatitis C virus. Nature. 437, 1167-1172 (2005).
- Xu, L. G. VISA is an adapter protein required for virus-triggered IFN-beta signaling. Mol. Cell. 19, 727-740 (2005).
访问受限。请登录或开始试用以查看此内容。
重印与许可
