通过传统方法纯化的真核生物核糖体常因共纯化出的核酸酶和蛋白酶污染,从而对后续的生化与结构分析产生不利影响。本研究采用酵母核糖体作为模型系统,使用一种快速且简单的色谱纯化方法来解决这一问题。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
与真细菌和古菌核糖体相比,真核生物核糖体更不稳定,这给研究人员带来了显著挑战。尤其令人困扰的是,细胞裂解会释放大量蛋白酶和核酸酶,这些酶可降解核糖体。因此,必须尽快将核糖体与这些酶分离开来。然而,传统的差速超速离心方法会使核糖体暴露于这些酶的作用下过长时间,从而影响其结构完整性和功能活性。为解决这一问题,我们采用了一种使用半胱氨酸负载的Sulfolink树脂的层析方法。该方法操作简便、快速,可显著减少共纯化的蛋白水解和核酸水解活性,获得高产量的完整且生化活性高的酵母核糖体。我们建议该方法也可适用于哺乳动物核糖体。该方法的简便性以及通过层析纯化所获得的核糖体更高的纯度和活性,代表了真核生物核糖体研究领域的一项重要技术进步。
方案
1. 准备半胱氨酸负载的Sulfolink树脂
- 在室温下准备 Sulfolink 树脂(Pierce)。
- 将制造商提供的 50% Sulfolink 偶联凝胶浆液共 10 ml 分装至两个 10 ml 塑料离心管中,每管各加入 5 ml。
- 在 850 × g 条件下短暂离心,小心吸除上清液。
- 用偶联缓冲液(50 mM Tris,pH 8.5,5 mM EDTA)洗涤凝胶三次:每次加入 5 ml 缓冲液重悬凝胶珠,短暂离心(850 × g),然后用移液器吸除上清液。
- 向每根管中加入 5 ml 偶联缓冲液中含 50 mM L-半胱氨酸的溶液,在 25°C 下混合浆液 1 小时。
- 按照步骤 1.4 所述方法洗涤,以去除残留的 L-半胱氨酸。
- 将凝胶重悬于 10 ml 结合缓冲液 [20 mM HEPES,pH 7.6,5 mM Mg(OAc)2,60 mM NH4Cl,2 mM DTT] 中,并按步骤 1.4 所述方法用 10 ml 结合缓冲液洗涤 3 次,使树脂平衡。将树脂转移至 10 ml 离心柱中,加盖后于 4°C 保存。该树脂的 RNA 结合能力为每毫升约 20 A260 单位。
2. 使用半胱氨酸修饰的 Sulfolink 树脂对核糖体进行色谱纯化
注意:如果所使用的菌株存在蛋白酶活性问题,可在后续所有缓冲液中添加蛋白酶抑制剂混合物。
- 所有组分均需保持在冰上,并使用无RNase水和无菌过滤方法配制所有溶液。
- 在适当培养基中将酵母细胞过夜培养至对数中期(O.D.595 = 0.6 - 1.2)。通过离心收集细胞,用结合缓冲液洗涤1克细胞,并在4°C下以3700 × g离心5分钟。
- 将细胞重悬于1 ml结合缓冲液中,总体积约为2 ml,加入等体积预冷至4°C的0.5 mm玻璃珠,使用Biospec Mini-bead beater(Bartlesville, OK)进行细胞破碎。根据需要可将样品分装至多个离心管中。
- 在Beckman-Coulter Optima Max E超速离心机(Fullerton, CA)中以30,000 × g于4°C离心30分钟,去除未破碎的细胞、细胞器及细胞碎片。
- 使用前立即以1,000 × g离心1分钟,沉淀树脂以去除保存液。每1克细胞使用2 ml树脂。
- 从30,000 × g离心后的上清液(S30)中小心吸取裂解液,避免接触管顶的脂质层或管底的细胞碎片,并直接加入已活化的Sulfolink悬液中。可通过移除脂层或在吸头进入上清液后从移液枪中推出液体的方式避免脂质污染。
- 将S30与Sulfolink混合物置于冰上孵育15分钟,期间不进行混匀。
- 将层析柱放入15 ml锥形管中,以1,000 × g离心1分钟。
- 将穿流液重新加回到层析柱中,手动混匀后继续在冰上孵育15分钟。
- 将层析柱再次放入15 ml锥形管中,以1,000 × g离心1分钟,弃去穿流液。
- 封闭层析柱,加入5 ml结合缓冲液。手动混匀使树脂重悬,打开盖子后以1,000 × g离心1分钟。重复此洗涤步骤两次。
- 向每个层析柱中加入1.5 ml洗脱缓冲液(20 mM HEPES-KOH, pH 7.6, 10 mM Mg(OAc)2, 500 mM KCl, 2 mM DTT, 0.5 mg/ml肝素),手动混匀悬液,并在冰上孵育2分钟。
- 将层析柱转移至新的15 ml锥形管中,以1,000 × g离心1分钟,收集洗脱液。重复洗脱一次,使最终合并的样品体积约为3 ml。使用过的树脂可用不含肝素的洗脱缓冲液洗涤,随后用结合缓冲液平衡,并保存于10 ml结合缓冲液中,4°C储存以备后续重复使用。
3. 嘌呤霉素处理
注意:去除污染性tRNA的另一种方法是将培养基从富含葡萄糖更换为无葡萄糖培养基,以促进核糖体脱离。然而,这种方法会改变酵母细胞的代谢状态,可能影响核糖体的功能和浓度。
为了去除内源性肽基-tRNA上的核糖体,需用嘌呤霉素进行处理。
- 在室温下,逐滴加入 1M KOH,将 100 mM 嘌呤霉素溶液中和至 pH 7.5。
- 将中和后的嘌呤霉素溶液加入洗脱液中,使其终浓度约为 1 mM。
- 加入 100 mM GTP,使其终浓度为 1 mM。
- 在 30°C 下孵育 30 分钟。
4. 通过甘油垫沉降纯化核糖体
- 将1 ml缓冲液(20 mM HEPES,pH 7.6,10 mM Mg(OAc)2,500 mM KCl,2 mM DTT,25%甘油)加入4 ml体积的聚碳酸酯超速离心管中。
- 将嘌呤霉素处理的洗脱组分轻轻铺加在缓冲液上层,并在4°C下以100,000 × g离心过夜。
- 从转子中取出离心管,吸除上清液。
- 用1 ml缓冲液将含有纯化核糖体的沉淀洗涤两次。
- 用玻璃棒轻轻搅动,将核糖体重新悬浮于100 μl缓冲液中。
- 搅动后,用封口膜封住管口,在冷室中以中等速度在涡旋振荡器上震荡一小时。
- 将内容物转移至微量离心管中,在4°C下以最大转速离心5分钟,并将上清液转移至新的离心管中。
- 重复步骤4.1至4.7,使用2 ml缓冲液,但在步骤4.4和4.5中,使用100 μl储存缓冲液(50 mM HEPES-KOH,pH 7.6,50 mM NH4Cl,5 mM Mg(OAc)2,1 mM DTT,25%甘油)代替缓冲液。
- 通过分光光度法定量纯化的核糖体(1 A260 = 20 pmol酵母核糖体),并在-80°C保存。通常每1克酵母可获得300–400 pmol核糖体。
5. 代表性结果:
图2展示了从本方案三个主要步骤中提取的RNA种类示例。在总细胞裂解液(T)中,rRNA是主要的RNA种类,但也含有大量其他类型的RNA。从Sulfolink柱(SL)纯化的核糖体由于该柱基质对这些RNA种类具有高亲和力,同样含有大量tRNA。对此组分进行嘌呤霉素处理可使肽酰-tRNA上的肽链发生水解,并促进这些tRNA从核糖体上解离。经嘌呤霉素处理后的样品(Pm)不再含有共纯化的tRNA种类,因此代表了完全纯净的核糖体。正如先前报道8,这些核糖体结构完整且具有高度的生物化学活性,是进行深入功能与结构分析的理想底物。
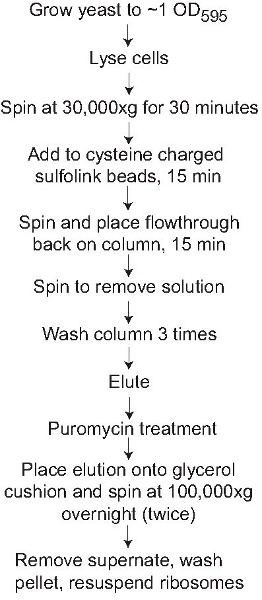
图1. 方法流程图。 图示利用半胱氨酸连接的磺酰树脂进行核糖体的层析纯化过程。
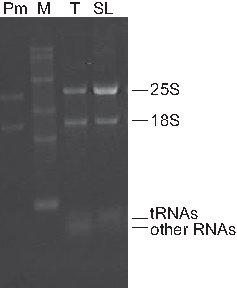
图2. 核糖体制备物的代表性分析。 从全细胞裂解液(T)、Sulfolink纯化的核糖体(SL)以及经嘌呤霉素处理并透过甘油垫沉淀的Sulfolink纯化核糖体(Pm)中提取总RNA组分。M泳道为RNA大小标记物。图中指出了代表25S和18S rRNA、tRNA及其他RNA组分的条带。每个泳道上样量均为2 μg RNA。
访问受限。请登录或开始试用以查看此内容。
讨论
核糖体纯化方案基本包括裂解细胞、通过低速离心收集细胞质组分,然后通过高速离心沉淀核糖体1。尽管已有少数新方法用于纯化细菌核糖体,但真核生物核糖体的纯化尚未取得类似进展2-4。尽管多年来已增加了一些步骤,例如盐洗涤和甘油垫层离心(例如参见5),但酵母核糖体的生化与结构研究仍受到其在纯化过程中易被内源性降解酶破坏的限制,这很可能是因为在超速离心步骤中核糖体长时间暴露于这类酶所致6。
传统方案存在的主要问题是核糖体在纯化过程中会共纯化蛋白酶和核酸酶,导致核糖体在纯化期间发生降解,从而降低具有生物化学活性的核糖体得率。在致病菌的临床分离株中,蛋白酶和核酸酶含量较高,这促使研究人员开发了一种使用半胱氨酸偶联的Sulfolink树脂进行核糖体纯化的层析方法7。采用该方法分离的细菌核糖体所获得的rRNA和蛋白质显示出更低程度的降解,且纯化后的核糖体结合红霉素和合成蛋白质的能力显著增强。核糖体与Sulfolink树脂结合的具体化学机制尚不明确,但据推测可能涉及疏水相互作用7
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢Dinman实验室的所有成员,包括Ashton Belew、Karen Jack、Sharmishtha Musalga、Sergey Sulima、Shivani Reddy和Michael Rhodin,为本项目提供的帮助和建议。本研究得到了美国心脏协会(AHA 0630163N)向AM提供的资助,以及美国国立卫生研究院(5R01 GM058859-12)向JDD提供的资助。JAL的研究得到了2009年美国复苏与再投资法案对母基金的补充资助(3R01GM058859-11S1)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 硫联偶联树脂 | Pierce, Thermo Scientific | 20402 | |
| Mini bead-beater 16 | Biospec Products | 607 | |
| Optima Max E 超速离心机 | Beckman Coulter Inc. | ||
| Legend RT | Sorvall, Thermo Scientific | ||
| 0.5 mm 玻璃珠 | Biospec Products | 11079105 | |
| Tris | Sigma-Aldrich | 252859 | |
| EDTA | Sigma-Aldrich | E9884 | |
| DTT | Sigma-Aldrich | 43815 | |
| HEPES | Sigma-Aldrich | 54459 | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| KCl | Sigma-Aldrich | 60128 | |
| Mg(OAc)2 | Sigma-Aldrich | M5661 | |
| KOH | Sigma-Aldrich | 221473 | |
| 甘油 | Sigma-Aldrich | G5516 | |
| 嘌呤霉素 | Sigma-Aldrich | P7255 | |
| GTP | Fermentas | R0461 |
参考文献
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
访问受限。请登录或开始试用以查看此内容。
重印与许可
