本文介绍了一种在活细胞中监测泛素-蛋白酶体活性的方法。通过慢病毒表达载体,将一个含有降解决定子的不稳定型绿色荧光蛋白融合蛋白(GFP-dgn)和一种稳定的GFP-dgnFS融合蛋白导入细胞。该技术可用于建立稳定表达GFP-dgn/GFP-dgnFS的细胞系,在该细胞系中,可通过落射荧光显微镜或流式细胞术方便地评估泛素-蛋白酶体系统的活性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蛋白酶体是细胞内负责降解异常、错误折叠、受损或氧化蛋白质的主要细胞器1, 2。蛋白酶体活性的维持参与多种关键的细胞过程,如细胞应激反应3、细胞周期调控和细胞分化4,以及免疫系统反应5。泛素-蛋白酶体系统的功能障碍与肿瘤及神经退行性疾病的发生发展密切相关4, 6。此外,蛋白酶体活性的降低已被发现是细胞衰老和有机体衰老的一个特征7, 8, 9, 10。本文介绍一种利用GFP-dgn融合蛋白在活细胞中检测泛素-蛋白酶体活性的方法。为了能够在活体原代细胞中监测泛素-蛋白酶体活性,我们将编码绿色荧光蛋白(GFP)–dgn融合蛋白(GFP–dgn,不稳定型)以及携带移码突变的变体(GFP–dgnFS,稳定型11)的互补DNA构建体插入慢病毒表达载体中。我们更倾向于使用该技术而非传统的转染方法,因为它能够实现极高的转染效率,且不受细胞类型或供体年龄的影响。在有或无蛋白酶体抑制剂的条件下,GFP–dgnFS(稳定型)蛋白与去稳定化蛋白(GFP-dgn)所显示的荧光差异可用于估算特定细胞系中的泛素-蛋白酶体活性。这些差异可通过落射荧光显微镜进行观察,或通过流式细胞术进行定量测定。
方案
1. 质粒构建
- 订购编码 dgn(ACKNWFSSLSHFVIHL11)和 dgnFS(HARTGSLACPTSSSICE)的定制寡核苷酸,并将其连接至 pEGFP-C1 载体中,以获得 GFP 与 dgn/dgnFS 的融合蛋白(图 1)。
- 根据 pENTR 定向 TOPO 克隆试剂盒的操作说明,通过 PCR 扩增 GFP-dgn 和 GFP-dgnFS 的编码序列,随后使用 pLenti6/V5 定向 TOPO 克隆试剂盒进行后续操作(图 6)。
2. 病毒生产
- 转染前一天(第1天),将HEK 293FT细胞接种于T75培养瓶中,使其在转染当天达到90–95%的融合度。
- 转染当天,取36 μl Lipofectamine 2000试剂加入1.5 ml无血清、无抗生素的DMEM培养基中,于15 ml离心管中稀释;另取一个15 ml离心管,将3 μg携带GFP-dgn或GFP-dgnFS互补DNA构建体的pLenti6/V5质粒、2.5 μg编码包膜蛋白的pMD2.G质粒以及7.5 μg载体骨架psPAX2质粒溶于1.5 ml无血清、无抗生素的DMEM培养基中进行稀释。5分钟后,将稀释后的DNA溶液与稀释后的Lipofectamine 2000试剂混合。
- 室温孵育20分钟,使DNA-脂质体复合物形成。
- 吸除HEK 293FT细胞原有培养基,小心加入7 ml不含抗生素的新鲜培养基,并将DNA-脂质体混合液加入培养瓶中,轻轻前后摇动混匀(第2天)。将培养瓶置于37 °C、含5% CO2的湿润化培养箱中过夜孵育。
- 次日更换培养基(加入10 ml不含抗生素的培养基;第3天)。
- 48小时后(第5天),收集上清液,在室温下以300 × g离心5分钟,并通过0.45 μm PVDF滤膜过滤上清液。
培养基 - DMEM(HEK 293FT)
DMEM
10% FBS
0.1 mM MEM 非必需氨基酸
6 mM L-谷氨酰胺
1 mM MEM 丙酮酸钠
1% 青霉素-链霉素(可选)
500 μg/ml 遗传霉素(Geneticin,可选)
3. 聚乙二醇(PEG)沉淀法浓缩病毒
- 向四体积的上清液中加入一体积的聚乙二醇溶液(50 mM 聚乙二醇,41 mM NaCl,经高压灭菌,pH = 7.2;PEG),在 4 °C 下孵育 2 小时。每 20–30 分钟轻轻倒置混匀一次。
- 在 4 °C 下以 1500 × g 离心 30 分钟。应可见白色沉淀。
- 吸除上清液,再在 4 °C 下以 1500 × g 离心 5 分钟。吸除残留的 PEG 溶液。
- 用移液器反复吹打并剧烈涡旋 20 至 30 秒,将沉淀重悬于培养基或磷酸盐缓冲液(PBS)中。作为参考,每瓶 T75 培养瓶使用 500 μl,并分装为每份 100 μl。将病毒储存于 -80 °C。
4. 病毒滴度测定
- 转染前一天,将 5×10⁴ 个 U2-OS 细胞接种至 6 孔板的每个孔中。
- 转染当天,吸除培养基,每孔加入 1 ml 含 8 μg/ml 多聚素(聚凝胺,hexadimethrine bromide)的 DMEM 培养基。将浓缩病毒上清液按 1:10 和 1:100 稀释,每孔分别加入 1 μl。对于病毒浓度较高的样品,在其余孔中分别加入 1 μl、5 μl 和 10 μl 的浓缩病毒上清液。留一孔作为阳性对照。
- 次日,将每孔培养基更换为 2 ml DMEM。
- 从次日起开始筛选,每孔加入 10 μg/ml 杀稻瘟菌素(Blasticidin)。每两天更换一次含抗生素的培养基。
- 筛选开始约 6–7 天后,未转导的细胞已全部死亡。进行染色时,用 PBS 洗涤细胞三次,加入结晶紫溶液(含 10 mg/l 结晶紫的 20% 乙醇溶液)覆盖细胞,室温孵育 5–10 分钟。吸除结晶紫溶液(可重复使用数次),用 ddH2O 洗涤两次,然后将培养板干燥。
- 计数克隆数,乘以 1,000 及相应的稀释倍数(图 7)。该方法可用于计算病毒的转导单位(TU)/ ml。
培养基 - DMEM(HFF-2/U2-OS)
DMEM
10% FBS
6 mM L-谷氨酰胺
1% 青霉素-链霉素
5. 人二倍体成纤维细胞的转导(此操作步骤适用于任何细胞类型)
- 转导前一天,将 5×10⁴ 个人类二倍体成纤维细胞(HDFs)接种至 6 孔板中。
- 以感染复数为 2,并加入 8 μg/ml 多聚素(polybrene)作为转导增强剂,总体积为 1 毫升。
- 次日更换培养基。
- 当细胞融合度达到 70–80% 时,开始使用 10 μg/ml 焦宁(blasticidin)进行筛选。筛选完成后(未转染细胞不再死亡),即可开始扩增细胞,此时细胞可用于实验。通过焦宁持续筛选,可获得稳定过表达 GFP-dgn 或 GFP-dgnFS 融合蛋白的细胞系,适用于蛋白酶体活性的检测。该方法可确保极高的转染效率,且不受细胞类型影响。
6. 流式细胞术检测
- 实验前一天接种 1×10⁵ 个细胞(携带 GFP-dgn 或 GFP-dgnFS)。
- 在测量前 3 小时,用蛋白酶体抑制剂处理对照细胞,例如 100 μg/ml LLnL。
- 用 PBS 洗涤两次,然后使用 0.5 ml 胰蛋白酶收集细胞。加入 4.5 ml 培养基以终止消化反应,并将细胞转移至 15 ml 离心管中。
- 在室温下以 300 × g 离心 5 分钟。
- 吸除上清液,用 PBS 重悬细胞,并在 37 °C 下以 300 × g 再次离心 5 分钟。
- 吸除 PBS,将细胞重悬于 400 μl FACS 缓冲液(10 mM Hepes、140 mM NaCl、2.5 mM CaCl2,pH=7.4)中,然后将细胞转移至 FACS 管中。
- 将细胞置于冰上,并立即进行流式细胞术检测。细胞在 4 °C 下保存时间不应超过 30 分钟。
7. 代表性结果
GFP-dgn 融合蛋白携带一段靶向蛋白酶体的序列,因此该蛋白会立即被降解,从而导致 GFP 荧光信号减弱。而移码突变体(GFP-dgnFS)携带的是该序列的突变版本,不会被蛋白酶体降解,因而产生更强的绿色荧光。基于上述原因,预期具有较高蛋白酶体活性的年轻 HDF 细胞在转导 GFP-dgn 后,无论是在流式细胞术检测还是落射荧光显微镜观察中,均表现出较低的荧光信号(阳性细胞占 6%)(图 2A 和 B、图 3)。相同 HDF 细胞转导 GFP-dgnFS 后,阳性细胞比例达到 39.7%。当使用蛋白酶体抑制剂 LLnL(N-乙酰-L-亮氨酰-L-亮氨酰-L-正亮氨酸醛)处理细胞时,GFP-dgn 和 GFP-dgnFS 转导的细胞荧光信号均升至最高水平,阳性细胞比例分别达到 62.9%(图 2A 和 B)。
为了确定衰老的人类皮肤样本中蛋白酶体活性可能下降的情况,从年轻、中年和老年供体中分离的真皮成纤维细胞按照上述方法分别感染GFP-dgn和GFP-dgnFS,并在流式细胞术分析前培养至相同的传代次数。在这些实验中,年轻个体(11.2±0.88%的GFP阳性细胞)与中年供体(20.4±2.27%的GFP阳性细胞,P=0.003)之间GFP信号显著升高,表明来自老年供体的样本中蛋白酶体活性下降7(图4)。在来自最年长个体的成纤维细胞中未观察到蛋白酶体活性进一步下降(图4)。在所有情况下,GFP-dgnFS的荧光强度均约为90%(数据未显示),表明这三个不同年龄组的转染效率较高。

图 1. GFP-dgn 和 GFP-dgnFS 序列。 图示为 GFP 的 3'-端(绿色)、pEGFP-CL1 载体的多克隆位点(灰色)以及 dgn/dgnFS 序列(红色)。

图2. GFP-dgn 和 GFP-dgnFS 人二倍体成纤维细胞的流式细胞术分析。A. 年轻的人包皮成纤维细胞(HFF-2)被携带绿色荧光蛋白(GFP)–dgn 基因或 GFP–dgnFS(移码突变)构建体的慢病毒载体感染,如图所示,并使用流式细胞仪(FACS Canto II, Becton Dickinson)检测 GFP 荧光。如标注所示,部分细胞同时用蛋白酶体抑制剂 N-乙酰-L-亮氨酰-L-亮氨酰-L-正亮氨酸(LLnL)处理 3 小时。未感染细胞作为对照。实验重复三次。B. 数据来自三次独立实验,具有代表性。数值表示 GFP 阳性细胞的比例。 点击此处查看大图。
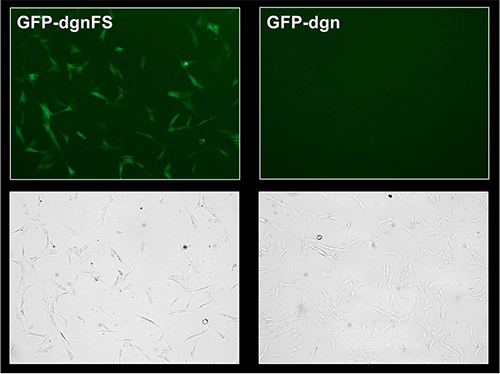
图3. GFP-dgn和GFP-dgnFS HFF-2细胞的荧光显微分析。
年轻的HFF-2细胞处理方式同图2。感染后9天,通过荧光和相差显微镜观察细胞。
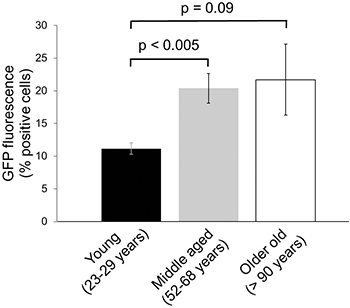
图4. 人类皮肤衰老过程中蛋白酶体活性的变化。
从指定年龄组的九位不同供体获取的人类包皮成纤维细胞经少量扩增后,用编码GFP–dgn的慢病毒载体进行感染。感染后第9天,通过流式细胞术分析细胞。每组年龄的样本重复检测三次,每次设两个复孔(± 标准误)。

图 5. 实验方案。 将用于 dgn 和 dgnFS 的定制寡核苷酸克隆至 pEGFP-C1 载体中,并利用 HEK 293FT 细胞为每种构建体生产病毒。测定病毒滴度后,用病毒感染细胞并进行扩增。经特定处理后,通过流式细胞术检测细胞的荧光信号。

图6. pLenti GFP-dgn质粒图谱。 展示了包含GFP-dgn序列的pLenti6/V5-DEST载体图谱。缩写:PCMV(CMV启动子),GFP-dgn(GFP-dgn序列),PSV40(SV40早期启动子),EM7(EM7启动子),Blasticidin(杀稻瘟菌素抗性基因),ΔU3/3'LTR(缺失U3区的3'LTR),SV40 pA(SV40多聚腺苷酸化信号),Ampicillin(氨苄青霉素抗性基因),pUC ori(pUC复制起点),PRSV/5'LTR(RSV/5'LTR杂合启动子),Ψ(HIV-1 Ψ包装信号),RRE(HIV-1 Rev应答元件)。

图7. U2-OS 滴定板。 将 U2-OS 细胞接种于 6 孔板中,并用不同浓度的病毒(浓缩病毒上清液按 1/100 和 1/10 稀释,以及 1、5 和 10 μl)进行转染。其中一个孔作为未转染对照(NT)。转染后 6–7 天,用结晶紫染色细胞并空气干燥。
访问受限。请登录或开始试用以查看此内容。
讨论
2000年首次发表了利用绿色荧光蛋白(GFP)作为泛素-蛋白酶体活性报告底物的研究12。自此以后,GFP已成为可视化细胞活动的常用工具,尤其是用于研究泛素-蛋白酶体过程。为了在活体(in vivo)条件下监测泛素-蛋白酶体活性,已有研究引入了一种基于GFP的报告基因转基因小鼠模型13。后续的活体(in vivo)研究又建立了一种类似的转基因小鼠模型,该模型使用了与本文所用相同的含降解决定子(degron)且稳定性降低的GFP报告系统14。
遗憾的是,作为报告基因的GFP存在一些缺陷,这一点已被Dantuma 等和Bowman 等的研究证实12,15。首先,由于未知原因,即使未抑制蛋白酶体活性,不稳定的GFP仍可能发生积累。由于泛素-蛋白酶体系统是一个依赖多个步骤才能正常发挥作用的体系,因此在降解前任何环节的干扰都可能导致报告底物的积累,从而产生假阳性结果12。其次,基于GFP的报告底物因其半衰期较短,对...
访问受限。请登录或开始试用以查看此内容。
致谢
本研究由以下机构资助:奥地利科学基金会(FWF)国家衰老研究网络(NFN S93)、欧洲委员会综合项目MiMAGE和PROTEOMAGE、荷兰基因组计划/荷兰科学研究组织(NGI/NWO;05040202和050-060-810 NCHA)、欧盟资助的卓越网络Lifespan(FP6 036894)以及创新导向基因组研究计划(SenterNovem;IGE01014和IGE5007)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| pEGFP-C1 载体 | BD Bioscience Clontech | 6084-1 | |
| pENTR 定向 TOPO 克隆试剂盒 | Invitrogen | K2400-20 | |
| pLenti6/V5 定向 TOPO 克隆试剂盒 | Invitrogen | V496-10 | |
| Lipofectamine 2000 转染试剂 | Invitrogen | 11668019 | |
| DMEM 培养基 | Sigma-Aldrich | D5546 | |
| PVDF 滤膜(Rotilabo-注射式滤器) | Carl Roth Gmbh | P667.1 | |
| 聚乙二醇 | Sigma-Aldrich | P2139 | |
| NaCl | Merck & Co., Inc. | 1.06404.1000 | |
| Dulbecco 磷酸盐缓冲液 1x (PBS) | Invitrogen | 14190 | |
| 六亚甲基溴化铵 | Sigma-Aldrich | 10,768-9 | |
| 杀稻瘟菌素 | Invitrogen | R21001 | |
| 结晶紫 | Sigma-Aldrich | C3886 | |
| FACS 管 | BD Biosciences | ||
| 青霉素-链霉素溶液 (Pen-Strep) | Invitrogen | 15140130 | |
| L-谷氨酰胺 200 mM | Invitrogen | 25030024 | |
| 胎牛血清 (FBS) | Biochrom AG | S0115 | |
| MEM 非必需氨基酸 (NEAA) 100x | Invitrogen | 11140035 | |
| MEM 丙酮酸钠 100 mM | Invitrogen | 11360039 | |
| D-(+)-葡萄糖 (45%) | Sigma-Aldrich | G8769 | |
| 遗传霉素 | Invitrogen | 11811023 | |
| CaCl₂ | Merck & Co., Inc. | C5080 | |
| HEPES | Sigma-Aldrich | H3375 | |
| 胰蛋白酶-EDTA (0.05%) | Invitrogen | 25300054 |
参考文献
- Coux, O., Tanaka, K., Goldberg, A. L. Structure and functions of the 20S and 26S proteasomes. Annu. Rev. Biochem. 65, 801-847 (1996).
- Davies, K. J. Degradation of oxidized proteins by the 20S proteasome. Biochimi. 83, 301-310 (2001).
- Stangl, K., Stangl, V. The ubiquitin-proteasome pathway and endothelial (dys)function. Cardiovasc. Res. 85, 281-290 (2009).
- Tuoc, T. C., Stoykova, A. Roles of the ubiquitin-proteosome system in neurogenesis. Cell Cycle. 9, 3174-3180 (2010).
- Rock, K. L., et al. Inhibitors of the proteasome block the degradation of most cell proteins and the generation of peptides presented on MHC class I molecules. Cell. 78, 761-771 (1994).
- Lehman, N. L. The ubiquitin proteasome system in neuropathology. Acta Neuropathol. 118, 329-347 (2009).
- Koziel, R., Greussing, R., Maier, A. B., Declercq, L., Jansen-Durr, P. Functional Interplay between mitochondrial and proteasome activity in skin aging. J. Invest. Dermatol. 131, 594-603 (2010).
- Grillari, J., Grillari-Voglauer, R., Jansen-Durr, P. Post-translational modification of cellular proteins by ubiquitin and ubiquitin-like molecules: role in cellular senescence and aging. Adv. Exp. Med. Biol. 694, 172-196 (2010).
- Bulteau, A. L., Szweda, L. I., Friguet, B. Age-dependent declines in proteasome activity in the heart. Arch. Biochem. Biophys. 397, 298-304 (2002).
- Strucksberg, K. H., Tangavelou, K., Schroder, R., Clemen, C. S. Proteasomal activity in skeletal muscle: A matter of assay design, muscle type, and age. Anal. Biochem. , (2009).
- Bence, N. F., Sampat, R. M., Kopito, R. R. Impairment of the ubiquitin-proteasome system by protein aggregation. Science. 292, 1552-1555 (2001).
- Dantuma, N. P., Lindsten, K., Glas, R., Jellne, M., Masucci, M. G. Short-lived green fluorescent proteins for quantifying ubiquitin/proteasome-dependent proteolysis in living cells. Nat. Biotechnol. 18, 538-543 (2000).
- Lindsten, K., Menendez-Benito, V., Masucci, M. G., Dantuma, N. P. A transgenic mouse model of the ubiquitin/proteasome system. Nat. Biotechnol. 21, 897-902 (2003).
- Liu, J., et al. Impairment of the ubiquitin-proteasome system in desminopathy mouse hearts. FASEB J. 20, 362-364 (2006).
- Bowman, A. B., Yoo, S. Y., Dantuma, N. P., Zoghbi, H. Y. Neuronal dysfunction in a polyglutamine disease model occurs in the absence of ubiquitin-proteasome system impairment and inversely correlates with the degree of nuclear inclusion formation. Hum. Mol. Genet. 14, 679-691 (2005).
- Myung, J., Kim, K. B., Lindsten, K., Dantuma, N. P., Crews, C. M. Lack of proteasome active site allostery as revealed by subunit-specific inhibitors. Mol. Cell. 7, 411-420 (2001).
- Menendez-Benito, V., Heessen, S., Dantuma, N. P. Monitoring of ubiquitin-dependent proteolysis with green fluorescent protein substrates. Methods Enzymol. 399, 490-511 (2005).
- Lener, B., et al. The NADPH oxidase Nox4 restricts the replicative lifespan of human endothelial cells. Biochem. J. 423, 363-374 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
