13C-同位素标记是一种用于确定多种微生物细胞中心代谢的有效技术。在使用特定标记底物培养细胞后,通过GC-MS检测可基于蛋白质源性氨基酸中的独特标记模式,揭示功能性的代谢通路。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
微生物具有复杂的代谢途径,可通过生物化学和功能基因组学方法进行研究。研究细胞中心代谢并发现新酶的一种重要技术是 13C标记辅助的代谢分析 1. 该技术基于同位素标记,即通过向微生物提供含有 13C标记的底物。通过追踪生化网络中代谢物之间的原子转移路径,我们可以确定功能通路并发现新的酶。
作为转录组学和蛋白质组学的补充方法,同位素异构体辅助代谢通路分析包含三个主要步骤 2. 首先,我们用以下条件培养细胞 13C标记的底物。在这一步骤中,培养基的组成和标记底物的选择是两个关键因素。为了避免营养补充物中非标记碳带来的测量噪声,需要使用仅含单一碳源的最低培养基。此外,标记底物的选择取决于其对所分析代谢途径的解析效果。由于新酶通常涉及不同的反应立体化学或中间产物,因此一般来说,单一位点标记的碳底物在检测新代谢途径时比均匀标记的底物提供更丰富的信息3, 4. 第二我们采用气相色谱-质谱联用技术(GC-MS)分析氨基酸的同位素标记模式。氨基酸在蛋白质中含量丰富,因此可通过生物量水解获得。在进行气相色谱分离前,氨基酸可经N-(叔丁基二甲基硅基)-N-甲基三氟乙酰胺(TBDMS)衍生化。TBDMS衍生化的氨基酸在质谱中可发生断裂,产生不同的碎片离子阵列。根据断裂与未断裂氨基酸的质荷比(m/z),我们可以推断出作为氨基酸前体的中心代谢物可能的标记模式。 第三我们追踪了所提出途径中13C碳的转化,并根据同位素异构体数据确认这些途径是否具有活性 2氨基酸的测定可提供中心代谢中八种关键前体代谢物的同位素标记信息。这些代谢关键节点能够反映相关中心代谢途径的功能。
13C辅助的代谢分析通过蛋白质源性氨基酸可广泛用于对尚未充分表征的微生物代谢进行功能表征1。在本方案中,我们将以集胞藻51142(Cyanothece 51142)作为模式菌株,演示如何利用标记碳底物来发现新的酶功能。
方案
1. 细胞培养(图1)
- 在含有微量元素、盐类、维生素以及特异性标记的碳源底物的最小培养基中培养细胞,这些成分最适合用于代谢通路研究。细胞培养可采用摇瓶或生物反应器。有机营养物质(如酵母提取物)可能会干扰氨基酸标记的检测,因此不能存在于培养基中。
- 使用紫外-可见分光光度计在最佳波长下(例如,Cyanothece 51142 使用 OD730)测定培养液的光密度,以监测细胞生长情况。
- 可先将细胞在非标记培养基中预培养。选择对数生长中期的细胞用于接种(接种体积比为 3% (v/v))标记培养基。标记培养物应以相同标记培养基进行传代培养(接种体积比为 3% v/v),以避免初始接种物引入非标记碳源。
2. 氨基酸提取
- 通过离心(10 分钟,8000×g)收集处于对数生长中期的继代培养细胞(10 mL)。
- 将沉淀重悬于 1.5 mL 的 6 M HCl 中,并转移至透明玻璃螺口 GC 小瓶中。盖紧瓶盖,置于 100°C 烘箱中加热 24 小时,使生物量中的蛋白质水解为氨基酸。生物量沉淀的水解可产生 20 种常见氨基酸中的 16 种(图 2)5。其中半胱氨酸和色氨酸会被降解,谷氨酰胺和天冬酰胺则分别转化为谷氨酸和天冬氨酸。
- 将氨基酸溶液在 2 mL 离心管中以 20,000×g 离心 5 分钟,然后将上清液转移至新的 GC 小瓶中。此步骤用于去除水解液中的固体颗粒。
- 取下 GC 小瓶盖,使用 Thermo Scientific Reacti-Vap 浓缩仪在气流下彻底干燥样品(注意:也可使用冷冻干燥机干燥样品)。此步骤可过夜进行。
3. 氨基酸衍生化及气相色谱-质谱条件
通过气相色谱法(GC)分析氨基酸或带电/高度极性的代谢物时,需要对这些代谢物进行衍生化处理,以使氨基酸具有挥发性,从而能够通过气相色谱进行分离2。
- 用 150 μL 四氢呋喃(THF)和 150 μL 的 N-(叔丁基二甲基硅基)-N-甲基三氟乙酰胺衍生化试剂溶解干燥的样品。
- 将所有样品在 65 至 80°C 的烘箱或水浴中孵育 1 小时。期间偶尔涡旋振荡,以确保瓶中的代谢物充分溶解。
- 在 20,000×g 离心 10 分钟,然后将上清液转移至新的 GC 进样瓶中。上清液应为澄清微黄色溶液。由于检测器可能饱和,高浓度的 TBDMS 衍生化氨基酸进样会影响 GC-MS 测量的准确性(此类样品通常呈深棕色),因此在进行 GC-MS 测定前应使用 THF 对这些样品进行稀释6。
- 通过 GC-MS 分析样品(采用 1:5 或 1:10 的分流比,进样体积 = 1 μL,载气氦气流速 = 1.2 mL/min)。使用以下 GC 程序:在 150°C 保持 2 分钟,以每分钟 3°C 升温至 280°C,再以每分钟 20°C 升温至 300°C,然后保持 5 分钟。溶剂延迟时间可设置为约 5 分钟(适用于 30 米长的 GC 色谱柱)。质谱(MS)中质荷比(m/z)的扫描范围可设定为 60 至 500。
4. 气相色谱-质谱数据分析
- 在GC分离过程中,TBDMS衍生化的氨基酸测定也可能受到同位素分馏效应的影响。在GC色谱柱中,轻同位素的迁移速度略快于重同位素。为降低潜在的测量偏差,可对整个氨基酸峰范围的质谱信号进行平均处理6
- 此前已有文献报道过TBDMS衍生化代谢物的GC和质谱图谱7。各氨基酸的GC保留时间及其特征性m/z峰如图3所示。
- 氨基酸或中心代谢物的衍生化过程会引入大量天然同位素标记,包括13C(1.13%)、18O(0.20%)、29Si(4.70%)和30Si(3.09%)。原始质量同位素异构体质谱中由天然同位素引起的测量噪声,可通过已发表的软件进行校正5, 8。最终的同位素标记数据以质量分数形式报告,例如M0、M1、M2、M3和M4(分别表示含有零至四个13C标记碳原子的碎片)。
- 氨基酸的测定可提供关于八种关键前体代谢物的同位素标记信息:2-氧代戊二酸、3-磷酸甘油酸、乙酰辅酶A、赤藓糖-4-磷酸、草酰乙酸、磷酸烯醇式丙酮酸、丙酮酸和核糖-5-磷酸。这些代谢物中的标记模式可用于鉴定多个中心代谢途径(图2)9。标记实验的结果还可通过其他生物化学方法(如RT-PCR)进一步验证。
5. 利用标记氨基酸数据进行通路分析
通过研究精心设计的13C示踪实验所产生的少数关键氨基酸,我们或许能够在不进行整个中心代谢系统复杂的13C代谢通量分析的情况下,揭示若干独特的代谢途径或酶活性。
- Entner–Doudoroff途径:[1-13C]葡萄糖可作为碳源。如果该通路处于活跃状态,丝氨酸的标记水平将显著低于丙氨酸的标记水平 10.
- 支链三羧酸循环:[1-13C] 可使用丙酮酸作为碳源。如果三羧酸循环中断,天冬氨酸可被两个碳标记,而谷氨酸仅被一个碳标记。 11, 12.
- CO2 通过卡尔文-本森-巴萨姆循环在混合营养代谢中的固定:非标记CO2 以及标记的碳底物均被用作碳源。如果卡尔文循环具有功能,则与其它氨基酸相比,丝氨酸和组氨酸的标记将显著被稀释。该方法可用于测定相对CO₂固定水平。2 培养基中存在有机碳源时的固定作用 13.
- 氧化戊糖磷酸途径:[1-13C]葡萄糖可作为碳源。如果该通路处于活跃状态,将生成未标记的丙氨酸 >50% 12.
- 回补途径(例如,PEP + CO₂)2 草酰乙酸: 13CO2 以及非标记的碳底物(例如甘油或丙酮酸)可作为碳源。如果该代谢通路处于活跃状态,与丙氨酸和丝氨酸相比,天冬氨酸的标记将显著富集。 13.
- Re-柠檬酸合酶:[1-13C]丙酮酸可用作碳源。若该酶具有活性,则谷氨酸的β-羧基会被标记 3, 4.
- 柠檬酸途径:[1-13C]丙酮酸,[2-13C]甘油,或[1-13C] 乙酸盐可作为碳源。若该通路具有活性,亮氨酸和异亮氨酸的标记量相同 14.
- 丝氨酸-异柠檬酸裂解酶循环:[1-13C]丙酮酸或[1-13C]乳酸可用作碳源。如果该通路具有活性,丝氨酸的第三个位置碳将被标记 15.
- 营养物质(即外源性氨基酸)的利用:可使用含有完全标记碳源底物和未标记氨基酸的培养基。如果细胞选择性利用这些添加的未标记营养物质,则会在生物量中观察到这些氨基酸显著的标记稀释现象。该方法可用于研究细胞优先利用哪些营养补充物 16.
6. 代表性结果
近年来,生物能源研究重新激发了利用新型光合微生物进行生物能源生产和二氧化碳固定的兴趣2 捕获。近年来,已有相当数量的13C代谢分析方法,包括先进的13C代谢通量分析(13C-MFA),被应用于研究光合细菌的中心代谢,因为这些非模式生物的中心代谢途径的生物化学知识尚不完善10, 11, 17-20. 此处,我们展示了一个发现异亮氨酸替代合成途径的示例 Cyanothece 51142 21. Cyanothece 51142 缺乏催化典型异亮氨酸合成途径中苏氨酸转化为2-酮丁酸的酶(EC 4.3.1.19,苏氨酸氨裂解酶)。为了重建异亮氨酸合成途径,我们进行培养 Cyanothece 51142(20 mL)在 ASP2 培养基中 22 含54 mM 甘油(2-13C, >98%). Cyanothece 51142 利用 2nd 将标记的甘油作为主要碳源。我们观察到苏氨酸和丙氨酸各含有一个标记碳,而异亮氨酸则含有三个标记碳。因此,其合成过程中 Cyanothece 51142 无法通过大多数生物所采用的苏氨酸途径生成(图4)。另一方面,亮氨酸和异亮氨酸基于碎片(M-15)具有相同的标记模式。+ 和片段(M-159)+例如,来自[M-15]的同位素异构体数据+ (含有未断裂的氨基酸)中亮氨酸和异亮氨酸的标记模式相同(亮氨酸:M0=0.01,M1=0.03,M2=0.21,M3=0.69;异亮氨酸:M0=0.01,M1=0.03,M2=0.24,M3=0.67)。因此,亮氨酸和异亮氨酸必须由相同的前体物质(即丙酮酸和乙酰辅酶A)合成。该结果与异亮氨酸生物合成中柠檬酸途径的标记碳转化过程一致。为验证该途径,我们检索了美国联合基因组研究所(Joint Genome Institute)数据库,发现存在柠檬酸合酶基因 CimA (cce_0248) 在 Cyanothece.

图1.
13C辅助的代谢通路分析步骤。

图2.
用于获取其代谢前体标记模式的氨基酸。ACoA,乙酰辅酶A;AKG,α-酮戊二酸;C5P,核糖-5-磷酸;CIT,柠檬酸;E4P,赤藓糖-4-磷酸;G6P,葡萄糖-6-磷酸;OAA,草酰乙酸;PEP,磷酸烯醇式丙酮酸;PGA,3-磷酸甘油酸;PYR,丙酮酸。

图3. 16 种氨基酸的 GC 峰。经 TBDMS 衍生化的氨基酸在质谱裂解中产生两个碎片峰:(M-57)+,包含完整的氨基酸,以及(M-159)+,缺少氨基酸的α-羧基。对于亮氨酸和异亮氨酸,(M-57)+ 峰与其他质谱峰重叠。我们建议使用碎片离子 (M-15)+ 来分析整个氨基酸的标记情况。(f302)+ 离子在大多数氨基酸中均可检测到,其包含氨基酸骨架中的第一个碳(α-羧基)和第二个碳。由于该质谱峰常具有较高的噪声与信号比,(f302)+ 不建议用于代谢通量的定量分析7.
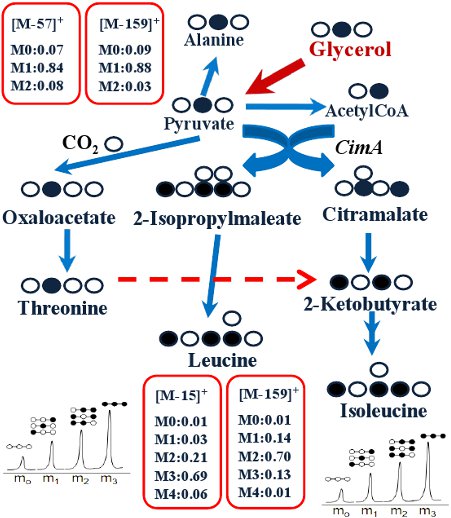
图4.
中国台湾51142中异亮氨酸通路的标记转化(改编自我们之前的研究)21。
访问受限。请登录或开始试用以查看此内容。
讨论
本方案包括向细胞提供标记底物,并通过气相色谱-质谱联用(GC-MS)检测氨基酸中产生的同位素标记模式。由于质谱数据(m/z 比值)仅能提供质谱离子整体标记程度的信息,因此我们需要通过分析未断裂离子(M-57)的 m/z 比值来评估氨基酸的同位素异构体分布+ 以及断裂的氨基酸(即 (M-159)+ 和 (f302)+)。此外,我们可以使用化学成分相同的培养基但标记模式不同的底物进行多种细胞培养(1st 位置标记,2nd 位置标记等信息。这些实验中获得的代谢物标记信息可被整合,以解析中心代谢途径中的实际碳原子转移路径。
在通路分析中,标记底物的选择至关重要。通常,当13C通过中心代谢通路传递时,单一位点标记的碳底物更易于追踪标记碳的去向,而多位点碳标记的底物则可能使碳流追踪变得复杂。此外,与均匀标记的底物相比,单一位点标记的底物在解析代谢物中独特分子结构方面更具信息价值。4 例如,(Re)-型柠檬酸合酶与...
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
致谢
本研究得到了美国国家科学基金会职业奖(MCB0954016)和美国能源部生物能源研究奖(DEFG0208ER64694)的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| TBDMS | Sigma-Aldrich | 19915 | - |
| THF | Sigma-Aldrich | 34865 | - |
| 标记碳底物 | Cambridge Isotope Laboratories | 根据实验需求而定 | 网站:http://www.isotope.com |
| 气相色谱仪 | Agilent Technologies | Hewlett-Packard,型号 7890A | - |
| GC 柱 | J&W Scientific | DB5 (30 m) | - |
| 质谱仪 | Agilent Technologies | 5975C | - |
| Reacti-Vap 浓缩仪 | Thermo Fisher Scientific, Inc. | TS-18825 | 用于干燥氨基酸样品 |
参考文献
- Zamboni, N., Sauer, U. Novel biological insights through metabolomics and 13C-flux analysis. Curr. Opin. Microbiol. 12, 553-558 (2009).
- Tang, Y. J. Advances in analysis of microbial metabolic fluxes via 13C isotopic labeling. Mass. Spectrom. Rev. 28, 362-375 (2009).
- Tang, Y. J. Investigation of carbon metabolism in Dehalococcoides ethenogenes strain 195 via isotopic and transcriptomic analysisa. J. Bacteriol. 191, 5224-5231 (2009).
- Tang, Y. J. Pathway confirmation and flux analysis of central metabolic pathways in Desulfovibrio vulgaris Hildenborough using GC-MS and FT-ICR mass spectrometry. Journal of Bacteriology. 189, 940-949 (2007).
- Dauner, M., Sauer, U. GC-MS analysis of amino acids rapidly provides rich information for isotopomer balancing. Biotechnology Progress. 16, 642-649 (2000).
- Wittmann, C. Fluxome analysis using GC-MS. Microbial Cell Factories. 6, 6-6 (2007).
- Antoniewicz, M. R., Kelleher, J. K., Stephanopoulos, G. Accurate assessment of amino acid mass isotopomer distributions for metabolic flux analysis. Anal. Chem. 79, 7554-7559 (2007).
- Wahl, S. A., Dauner, M., Wiechert, W. New tools for mass isotopomer data evaluation in 13C flux analysis: mass isotope correction, data consistency checking, and precursor relationships. Biotechnology and Bioengineering. 85, 259-268 (2004).
- Shaikh, A., Tang, Y. J., Mukhopadhyay, A., Keasling, J. D. Isotopomer distributions in amino acids from a highly expressed protein as a proxy for those from total protein. Analytical Chemistry. 80, 886-890 (2008).
- Tang, K. -H., Feng, X., Tang, Y. J., Blankenship, R. E. Carbohydrate metabolism and carbon fixation in Roseobacter denitrificans OCh114. PLoS One. 4, e7233-e7233 (2009).
- Tang, K. -H. Carbon flow of Heliobacterium modesticaldum is more related to Firmicutes than to the green sulfur bacteria. J. Biol. Chem. 285, 35104-35112 (2010).
- Feng, X. Characterization of the Central Metabolic Pathways in Thermoanaerobacter sp. X514 via Isotopomer-Assisted Metabolite Analysis. Appl. Environ. Microbiol. 75, 5001-5008 (2009).
- Feng, X. Mixotrophic and photoheterotrophic metabolisms in Cyanothece sp. ATCC 51142 under continuous light. Microbiology. 156, 2566-2574 (2010).
- Tang, Y. J. Flux analysis of central metabolic pathways in Geobacter metallireducens during reduction of soluble Fe(III)-NTA. Appl. Environ. Microbiol. 73, 3859-3864 (2007).
- Tang, Y. J., Meadows, A. L., Kirby, J., Keasling, J. D. Anaerobic central metabolic pathways in Shewanella oneidensis MR-1 reinterpreted in the light of isotopic metabolite labeling. Journal of Bacteriology. 189, 894-901 (2007).
- Zhuang, W. Q. Selective utilization of exogenous amino acids by Dehalococcoides ethenogenes strain 195 and the enhancement resulted to dechloronation activity. Appl. Environ. Microbiol. , Forthcoming (2011).
- Feng, X., Tang, K. -H., Blankenship, R. E., Tang, Y. J. Metabolic flux analysis of the mixotrophic metabolisms in the green sulfur bacterium Chlorobaculum tepidum. J. Biol. Chem. 285, 35104-35112 (2010).
- McKinlay, J. B., Harwood, C. S. Carbon dioxide fixation as a central redox cofactor recycling mechanism in bacteria. Proc. Natl. Acad. Sci. U.S.A. 107, (2010).
- McKinlay, J. B., Harwood, C. S. Calvin cycle flux, pathway constraints, and substrate oxidation state together determine the H2 biofuel yield in photoheterotrophic bacteria. MBio. 2, (2011).
- Erb, T. J. Synthesis of C5-dicarboxylic acids from C2-units involving crotonyl-CoA carboxylase/reductase: The ethylmalonyl-CoA pathway. PNAS. 104, 10631-10636 (2007).
- Wu, B. Alternative isoleucine synthesis pathway in cyanobacterial species. Microbiology. 156, 596-602 (2010).
- Reddy, K. J., Haskell, J. B., Sherman, D. M., Sherman, L. A. Unicellular, aerobic nitrogen-ï¬xing cyanobacteria of the genus Cyanothece. J. Bacteriol. 175, 1284-1292 (1993).
- Shastri, A. A., Morgan, J. A. A transient isotopic labeling methodology for 13C metabolic flux analysis of photoautotrophic microorganisms. Phytochemistry. 68, 2302-2312 (2007).
- Tang, Y. J. Invariability of central metabolic flux distribution in Shewanella oneidensis MR-1 under environmental or genetic perturbations. Biotechnol Prog. 25, 1254-1259 (2009).
- Zamboni, N., Fendt, S. M., Ruhl, M., Sauer, U. 13C-based metabolic flux analysis. Nature Protocols. 4, 878-892 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
