模式生物 C. elegans 利用假体腔液作为被动循环系统。此前尚无法对此液体进行直接检测。本文介绍一种直接检测细胞外空间的新技术,并以RNAi反应中的系统性沉默信号作为原理验证示例。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
模式生物秀丽隐杆线虫(C. elegans)因其世代周期短、易于培养且体型微小,已成为研究众多生物学问题的重要遗传学模型。然而,其微小体型也限制了某些在其他模式系统中常用的技术手段的应用。例如,哺乳动物中的输血技术以及植物中的嫁接技术,均可用于研究循环系统的组成与信号传递。直到最近,线虫的循环系统——假体腔液——仍无法被直接检测。为了探究细胞间信号传递及循环系统组成,C. elegans 研究人员传统上依赖遗传分析、细胞/组织特异性挽救实验以及嵌合体分析。这些技术虽可间接推断细胞间的相互作用,但在细胞外分子的鉴定与表征方面并非普遍适用。本文介绍一种新近开发的技术,可直接提取并检测 C. elegans 的假体腔液。该技术首先通过遗传或物理手段增加细胞外液体积,随后采用一种类似“吸血”的逆向显微注射技术,利用具备精细压力调控功能的显微注射装置从线虫体内回收液体。在分离获得细胞外液后,可通过将其转移至其他个体或采用分子生物学方法进行检测。为验证该技术的有效性,本文详细展示了一个具体应用实例:在系统性RNA干扰(RNAi)反应中检测特定的细胞外信号分子——长链双链RNA(long dsRNA)。尽管系统性RNAi的表征仅作为原理验证示例,但我们认为该技术可广泛适用于探究循环系统组成与信号传递的多种科学问题。
方案
1. 材料准备
进行吸血鬼反向显微注射所需的材料与用于制备转基因C. elegans品系的标准显微注射技术所需材料相似1。尽管某些试剂(例如实验用培养板)可在实验转移当天制备,但许多材料必须在8天内协调准备(参见表1中的时间安排)。因此,使用该技术时,必须提前周密规划(所需试剂和设备见表2)。
注射垫:
- 在 H2O 中配制 2% 琼脂糖溶液,加热至完全溶解。将溶液分装至 1.5 mL 微量离心管中,每管 1 mL,4 °C 保存。
- 将 22 × 50 mm 盖玻片平铺于实验台面,使其边缘略微伸出实验台边缘,以便快速取用。
- 用图钉在微量离心管盖上扎一个小孔,以利于排气。将该管放入盛有约 5 mL 水的 15 mL 烧杯中,微波加热至琼脂糖完全融化(约 35 秒)。
- 使用巴斯德吸管和吸球吸取一滴融化的琼脂糖(约 35 μL),滴加于一张盖玻片上,立即以 90° 角将另一张盖玻片覆盖于液滴之上。对其他多张盖玻片重复此操作。
- 待琼脂糖完全凝固后,取下盖玻片,将凝胶垫置于空气中彻底干燥过夜(若需加快干燥,可将载片置于 50–80 °C 烤箱中 15–30 分钟)。
- 制备好的凝胶垫可长期室温保存于盖玻片盒中。
检测板:
为了检测与pal-1 RNAi相关的胚胎致死性,应在进行吸血实验当天制备检测平板。目标是在不使线虫饥饿的前提下,保持尽可能少的细菌菌苔。若菌苔过厚,会使得Pal-1幼虫的表型鉴定极为困难,因为体型微小、半透明且形态异常的L1期个体很容易隐藏在食物中而被遗漏。平板制备应针对目标表型的观察进行优化。
- 准备 OP50:取在 LB 琼脂平板上培养的单个 OP50 菌落,接种至 5 mL LB 液体培养基中。在 37 °C 条件下振荡培养过夜,然后置于 4 °C 保存。
- 根据基本实验步骤制备 35 mm NGM 平板(见注释 1)。
- 将过夜培养的 OP50 菌液(步骤 1.7)20 μL 点种于每块 NGM 平板上。待 LB-OP50 菌液自然干燥(通常少于 20 分钟)。
注射针头:
- 使用 Sutter Instruments 公司的 P97 火焰/布朗微量移液器拉制硼硅酸盐玻璃毛细管,制备注射针(代表性针形参见图1)。
- 将注射针存放于由培养皿和油泥制成的针 holder 中(参见1)。
2. 蛔虫的制备
成年C. elegans雌雄同体的假体腔体积估计为40–80皮升(据David Hall个人交流)。要从如此微小的储液空间中获取细胞外液样本,增加总体可用资源将非常有利。我们已确定三种方法可显著增加供体线虫中的可获取液体量。我们的主要方法利用了clr-1(e1745)突变体的表型,该突变可使细胞外液体积增加10倍或更多(图2)。另外两种替代方法基于以下事实:生殖系几乎占线虫总体积的三分之一,通过glp-1(RNAi)或激光消融去除生殖系后,假体腔液会填充原本由生殖系占据的空间(图2)2。
使用 clr-1(e1745) 准备受体蠕虫
参见图3以了解clr-1(e1745) 转移实验流程
- 在含有25μg/mL羧苄青霉素的LB平板上划线接种表达dsRNA的细菌,以获得单菌落。本演示中将使用表达pal-1 dsRNA的细菌。于37 °C过夜培养。
- 从已划线的含25 μg/mL羧苄青霉素的LB平板上挑取一个pal-1(RNAi)细菌单菌落,接种至3 mL含有25μg/mL羧苄青霉素的LB液体培养基中,过夜培养。
- 取15 μL过夜培养物滴加到添加了25 μg/mL羧苄青霉素和1 mM IPTG的35 mm NGM平板上。注意将细菌滴加在平板偏心位置。静置干燥(约20分钟)。
- 配制500 μL新鲜漂白液(1:1体积比的5M KOH与次氯酸钠溶液)。
- 将10 μL漂白液滴加至已接种细菌的平板上。注意将漂白液滴加在远离细菌菌斑的位置。
- 为获得少量、洁净且同步化的clr-1(e1745)动物用于反向显微注射,挑取2–10只成年 gravid 个体至漂白液滴中。成虫将被溶解,留下洁净且处于特定发育阶段的胚胎。这些胚胎随后将孵化,幼虫会爬向食物区域。
- 于20 °C培养四天。
- 将平板转移至25 °C环境,持续四小时以诱导肿胀。
- 将线虫转移至未接种细菌的NGM平板,使其有足够时间清除体表附着的细菌。(可选步骤)在转移至NGM平板时,可用M9缓冲液冲洗线虫。
- 将L4期/年轻成虫(YA)受体线虫转移至未接种细菌的NGM平板,使其有足够时间清除体表附着的细菌。(可选步骤)在转移至NGM平板时,可用M9缓冲液冲洗线虫。
A2)使用 glp-1(RNAi) 制备受体蠕虫的替代方法
- 从含有25 μg/mL羧苄青霉素的LB平板上,挑取单个glp-1(RNAi)细菌菌落,接种至3 mL添加了羧苄青霉素的LB液体培养基中,37 °C过夜培养。
- 取15 μL glp-1(RNAi)过夜培养物,滴加到添加了25 μg/mL羧苄青霉素和1 mM IPTG的35 mm NGM平板上,室温过夜培养。
- 将五只L3/L4期动物转移至glp-1(RNAi)平板中,于20 °C培养两天。glp-1基因的RNA干扰会导致子代出现生殖系增殖缺陷,由于生殖系无法完全发育,形成空腔并充满细胞外液。根据实际情况,可能需要优化RNAi食物条件,以获得能够发育至成虫但无生殖细胞增殖的子代。
- 参照上述clr-1(e1745)线虫制备方案中的步骤2.1–2.3,提前准备好pal-1(RNAi)平板。
- 配制新鲜的漂白液(1:1体积比的5 M KOH与次氯酸钠溶液)。
- 将10 μL漂白液滴加至已接种细菌的pal-1(RNAi)平板上,注意将液滴置于细菌菌斑以外区域。
- 通过挑取2–10只处于产卵期的glp-1(RNAi)成虫,将其转移至漂白液滴中以获取胚胎。
- 于20 °C培养四天。
- 将线虫挑至未接种细菌的60 mm NGM平板上,使其有足够时间清除体表附着的细菌。(可选步骤)在转移至NGM平板时,可用M9缓冲液冲洗线虫。
B2)利用生殖系激光消融制备供体蠕虫的替代方法
- 在含有25 μg/mL羧苄青霉素的LB平板上划线接种表达dsRNA的细菌,以获得单菌落。本演示中将使用表达pal-1 dsRNA的细菌。于37 °C过夜培养。
- 从含羧苄青霉素的平板上挑取单菌落,接种至3 mL LB液体培养基中,培养基中添加25 μg/mL羧苄青霉素,过夜培养。
- 取15 μL上述过夜培养的表达pal-1 dsRNA的细菌菌液,点种于直径35 mm的NGM平板上,平板中添加25 μg/mL羧苄青霉素和1 mM IPTG。室温晾干过夜。
- 从标准OP50平板上分离L1期动物,按照标准方案3使用激光消融体细胞生殖系前体细胞Z1和Z4。
- 将激光消融后的线虫转移至前述的pal-1 RNAi平板上恢复培养。
- 于20 °C培养3天。
- 挑取线虫至干净的NGM平板,使其有足够时间清除体表附着的细菌。(可选步骤)在转移至NGM平板时,可用M9缓冲液冲洗线虫。
受体蠕虫的制备
- 在LB平板上划线接种OP50以获得单菌落,37 °C过夜培养。
- 从LB平板接种3 mL LB培养基,进行过夜培养。
- 将15 μL过夜培养物滴加到35 mm NGM平板上。注意将细菌滴加在平板偏心位置。静置干燥(约20分钟)。
- 配制新鲜的漂白液(1:1的5M KOH与次氯酸钠溶液)。
- 将10 μL漂白液滴加至已接种细菌的平板上。确保漂白液滴远离细菌菌斑区域。
- 通过挑取2–10条成熟的N2成虫至漂白液滴中,转移胚胎。
- 在20 °C条件下培养三天。
- 将线虫转移至干净的未接种NGM平板上,在20 °C继续培养至少30分钟。
3. 细胞外液的吸血鬼式分离
以下方案专用于由 pli-100 微注射仪、固定在显微操作器上的注射针以及可移动载物台组成的微注射装置,其中线虫可在载物台上滑动进入针尖。然而,通用技术是:将一根空的微注射针插入供体动物体内,同时保持足够的压力,以防止在进入前矿物油通过毛细作用流入针内,以及在穿透体壁组织时细胞物质进入针内。当注射针位于供体动物体内时,降低压力,使针头通过毛细作用被细胞外液充满,随后将液体移至受体线虫,并通过增加压力将其排出。此外,也可利用微注射仪的填充(或抽吸)功能辅助通过毛细作用吸取液体。该通用技术应可轻松适配于其他能够控制平衡压力的微注射系统。
- 打开倒置显微镜、解剖显微镜和微量注射仪(见图1)。
- 将微量注射仪的选择旋钮转至 Pclear,并确认当前压力单位为 psi。该读数即为清洗压力,代表输入压力,应约为 0 psi。
- 检查氮气瓶减压阀上的主阀门,确保输出端已关闭(逆时针旋转至旋钮松动)。
- 打开氮气瓶的主阀门。此时靠近氮气瓶的减压表应显示气瓶内部压力。
- 顺时针缓慢旋转主减压阀以逐步升高输出压力。通过微量注射仪监测压力上升情况(其读数比减压表上的输出压力更准确)。缓慢将压力升至 100 psi。严禁超过 105 psi。
- 当压力达到 100 psi 时,将选择旋钮切换至 Pinject,并使用 Pinject 旋钮将注射压力设定为 30 psi。
- 将选择旋钮切换至 Pbalance。
- 在洁净的供体板和受体板上各放置一滴 15 μL 的矿物油。
- 用矿物油覆盖 2% 琼脂糖注射垫。
- 将拉制好的微毛细管针装入针夹并进行对准。
- 在解剖显微镜下,将 1 条供体线虫和 1 条受体线虫并列放置在琼脂糖垫上。
- 使用低倍镜定位线虫,并将针头移至供体附近的矿物油中。
- 切换至高倍镜,将针头定位至假体腔附近。
- 将平衡压力升高至约 10 psi。注意观察针尖处出现的矿物油柱塞。
- 通过移动载物台,将线虫推入针头,使针尖进入假体腔。
- 注意针尖处矿物油位置发生跳跃。
- 降低平衡压力,利用毛细作用使液体充满针头。(也可使用填充功能以加快此过程)。
- 收集完液体后,将线虫从针头旁移开。
- 切换回低倍镜,将针头移至受体线虫附近(严禁让针尖离开矿物油)。[另可选择取下针夹,将液体转移至微量离心管中的液滴内。]
- 重新切换至高倍镜,通过移动显微镜载物台将针头插入受体线虫体内。
- 当针头定位至受体线虫体内后,使用注射功能(设定为 35 psi)将从供体收集的假体腔液注入。
- 通过反向移动显微镜载物台,将针头从受体线虫体内退出。
- 当针头完全退出线虫后,将针头从注射垫上方抬起。
- 移除注射垫,并在虫体上滴加一滴 M9 缓冲液以使其恢复。
- 在检测板上滴加 10 μL 的 M9 缓冲液。
- 将受体线虫挑入检测板上的 M9 液滴中。
4. 检测RNAi表型的传递
- 将回收的线虫在 20 °C 下培养 24 小时。
- 移除受体成虫,保留平板上的胚胎及已孵化的子代。将平板在 20 °C 下继续孵育 24 小时。
- 对子代进行表型评分:未孵化、已孵化但表现为突变表型,或为野生型幼虫。
注意事项
- NGM 培养基以 1 升为一批次制备,加入 18 g 琼脂、2.5 g 胰蛋白胨、3 g 氯化钠和 H2O。加入搅拌子后高压灭菌。灭菌后将烧瓶置于磁力搅拌器上,边搅拌边使培养基冷却至 60 °C。培养基冷却后,加入 1 ml 胆固醇(5 mg/ml 溶于乙醇)、1 mL 1M CaCl2、1 mL 1M MgSO4 和 25 mL 磷酸钾缓冲液(pH 6.0)。若平板用于 RNAi 实验,则在培养基冷却至 60 °C 后补充 1 mL 1M IPTG 和 1 mL 25 mg/mL 羧苄青霉素。平板可使用 35 mm(每板 3.5 mL NGM)或 60 mm(每板 8.5 mL NGM)的培养皿倾注。
- 用去离子水配制 2% 琼脂糖,储存于冰箱中。应在伪体腔液分离实验前较长时间内提前熔化并制备琼脂垫。琼脂垫的干燥程度有助于线虫黏附于垫上,至少需要一天的空气干燥时间才能达到足够干燥。若注射垫过于干燥,导致供体线虫脱水速度过快而难以操作,可在添加矿物油前向垫面哈气以增加适量湿度。无论如何,必须能够快速操作,在线虫干燥前完成伪体腔液的分离。
- 我们在 RNAi 食物制备的所有步骤中均使用羧苄青霉素,以筛选含有氨苄青霉素抗性标记的菌株。羧苄青霉素是氨苄青霉素的类似物,具有更高的稳定性,并且比氨苄青霉素产生更少的卫星菌落。
- 我们使用的 RNAi 平板是在 NGM 培养基中添加 1 mM IPTG 和 25 μg/mL 羧苄青霉素制备而成。RNAi 饲喂载体构建于 HT115 E. coli 菌株中,该菌株缺乏特异性降解双链 RNA 的核酸酶。
- (可选步骤)我们发现,将供体和受体线虫转移至未接种细菌的 NGM 平板上静置一小时,可有效去除从饲喂平板携带而来的、附着于角质层的细菌。然而,当供体动物中的 RNAi 靶基因影响其运动能力时(例如 unc-22(RNAi)),此方法效果不佳,因此需要辅助处理。为此,我们使用凹面载玻片,加入约 50 μL M9 缓冲液,将线虫从 RNAi 饲喂平板挑入 M9 液滴中,再用标准铂金线虫挑针搅拌,即可有效去除大多数黏附的细菌。
5. 代表性结果
以下是将表达靶向 pal-1 的dsRNA细菌上培养的 clr-1(e1745) 线虫的细胞外液进行实验性转移的代表性结果。供体动物的后代出现死亡和/或后部图式形成缺陷。随后,我们将这些动物的细胞外液转移至未接受过RNAi处理的野生型线虫的假体腔中。受体动物的部分后代表现出预期的 pal-1 突变表型(图4)。相比之下,接受在标准细菌食物或对照RNAi载体细菌上培养的供体动物细胞外液的受体动物,其后代仅表现出基础水平的致死率(图4)。尽管接受经历RNAi处理的供体动物细胞外液的受体后代中,dsRNA诱导表型的发生频率显著增加,但其外显率仍不及供体动物的后代——在后者中,几乎100%的后代以未孵化胚胎的形式死亡,仅有极少数严重畸形的个体能够孵化。
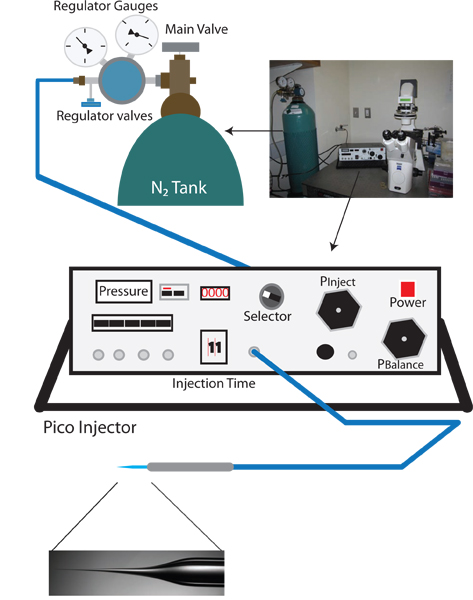
图 1. 蛊毒式反向注射装置示意图。进行蛊毒式反向显微注射所需的装置与标准的 C. elegans 显微注射系统类似,包括解剖显微镜、配备10X和40X物镜的倒置显微镜、可移动载物台用于样品定位,以及带有注射针夹持器的显微操作仪。此外,还需要针头拉制仪以制备注射针。反向显微注射方案特有的设备是皮升注射仪,其可精确控制平衡压力(例如 Warner Instruments PLI-100)。
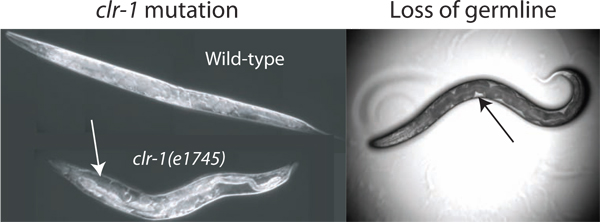
图 2。 假体腔体积的增加。在野生型动物中,可用于分离的假体腔液体积不足以进行检测。通过温度转换破坏 clr-1(e1745) 动物的渗透平衡调控,可增加该体积,导致假体腔液明显积聚(白色箭头)。此外,通过激光消融或 glp-1(RNAi) 使性腺缺失,也可获得细胞外液(图中显示激光消融导致的缺失)。可用的液体最易观察为深色肠道与体壁之间的透明区域(黑色箭头),尽管其总体积远小于在限制性温度下培养的 clr-1(e1745) 动物中的液体量。
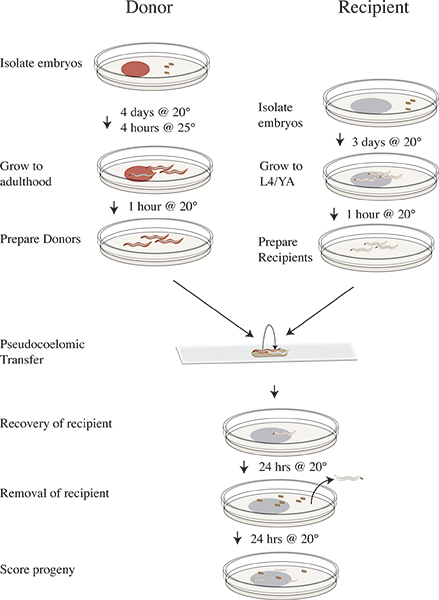
图 3。 吸血鬼式分离与移植操作时间线。在移植实验前四天,将 clr-1(e1745) 供体胚胎接种于含 RNAi 食物的培养板上,并在 20 °C 下培养。实验前三天,将 N2 受体胚胎接种于 OP50 培养板上。实验当天,将供体培养板转移至 25 °C 环境中孵育四小时。在 25 °C 孵育结束后,将供体转移至无食物的洁净培养板,并移回 20 °C 环境。将受体动物转移至无食物的洁净培养板,并继续在 20 °C 下孵育。进行移植实验,并将受体线虫回收至 OP50 培养板,在 20 °C 下继续培养。在 20 °C 培养 24 小时后移除受体动物。将受体后代在 20 °C 下继续孵育 24 小时。对后代进行表型评分,分为野生型、突变型或未孵化三类。
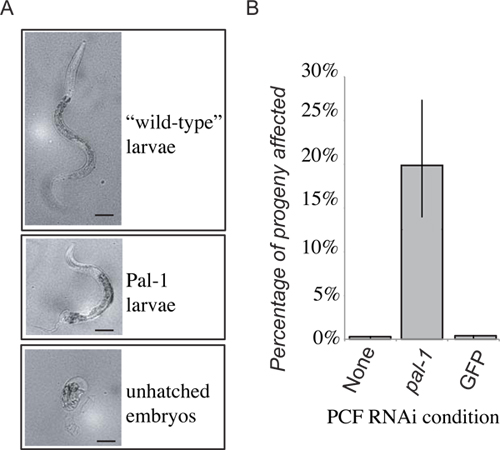
图 4. 代表性结果。受体中 PAL-1 功能的丧失将导致胚胎致死,或出现明显的后部发育缺失(A)。在 PCF 转移后 48 小时,对前 24 小时内产下的子代进行评分,分为野生型幼虫、Pal-1 幼虫或未孵化胚胎。未孵化胚胎的频率与表型为 Pal-1 幼虫的频率合并,用以衡量 pal-1(RNAi) 转移所诱导的表型。接受在 PAL-1 dsRNA 食物上生长的动物的假体腔液后,受体会出现显著的表型诱导,而对照组转移受体中则未见此类现象(B)。
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了一种新颖的方法,可实现对模式生物 C. elegans 的细胞外液进行分离与表征。该技术首先通过遗传或物理手段操控供体蠕虫,以增加其细胞外液的总体积。随后采用改良的显微注射技术分离细胞外液。在进行显微注射时,将蠕虫固定在干燥的琼脂糖垫上以保持其在操作过程中的稳定。蠕虫通过干燥垫的脱水作用产生的静水压力实现物理固定。这带来了一定挑战,因为一旦蠕虫被固定,其体内可用的细胞外水分便开始从供体动物中流失,因此必须迅速操作。对部分实验人员而言,可将蠕虫悬浮于注射垫上的矿物油中,但避免其直接接触垫面,可能更为有利。在将注射垫置于显微镜下并对齐蠕虫与注射针后,需等待蠕虫自行接触垫面并完成“自我固定”。此外,尽管在常规显微注射过程中可直接将蠕虫物理放置于琼脂糖垫上,但我们发现,施加的物理固定力会显著加速供体蠕虫的脱水过程。最佳操作方式是将供体蠕虫在矿物油中拾取,并将挑虫针的尖端靠近垫面,使蠕虫自行爬离挑虫针完成转移。
除了操作迅速外,还必须规范地进行 vampiric 分离技术,以避免感染。将通常无害的细菌引入角质层内会导致持续且致命的感染。正确的操作技术可完全避免...
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
致谢
我们感谢Hunter实验室的合作氛围,并感谢他们提供的有益讨论和帮助,使得本技术的开发成为可能并充满乐趣。我们感谢Nigel Delaney以及线虫遗传学中心(Caenorhabditis Genetics Center)提供线虫和细菌菌株。本研究由美国国立卫生研究院(National Institutes of Health)资助,项目编号GM089795,授予CPH。
访问受限。请登录或开始试用以查看此内容。
参考文献
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of Stable Transgenic C. elegans Using Microinjection. J. Vis. Exp. (18), e833-e833 (2008).
- Hirose, T., Nakano, Y., Nagamatsu, Y., Misumi, T., Ohta, H., Ohshima, Y. Cyclic GMP-dependent protein kinase EGL-4 controls body size and lifespan in C elegans. Development. 130, 1089-1099 (2003).
- Kimble, J. Alterations in cell lineage following laser ablation of cells in the somatic gonad of Caenorhabditis elegans. Dev. Biol. 87, 286-300 (1981).
- Hegreness, M., Shoresh, N., Hartl, D., Kishony, R. An equivalence principle for the incorporation of favorable mutations in asexual populations. Science. 311, 1615-1617 (2006).
- Labrousse, A., Chauvet, S., Couillault, C., Kurz, C. L., Ewbank, J. J. Caenorhabditis elegans is a model host for Salmonella typhimurium. Curr. Biol. 10, 1543-1545 (2000).
- Kamath, R. S., Martinez-Campos, M., Zipperlen, P., Fraser, A. G., Ahringer, J. Effectiveness of specific RNA-mediated interference through ingested double-stranded RNA in Caenorhabditis elegans. Genome. Biol. 2, (2001).
- Min, K., Kang, J., Lee, J. A modified feeding RNAi method for simultaneous knock-down of more than one gene in Caenorhabditis elegans. Biotechniques. 48, 229-232 (2010).
- Zhuang, J. J., Hunter, C. P. Tissue-specificity of Caenorhabditis elegans Enhanced RNAi Mutants. Genetics. 188 (1), 235-237 (2011).
- Way, J. C., Chalfie, M. mec-3, a homeobox-containing gene that specifies differentiation of the touch receptor neurons in C. elegans. Cell. 54, 5-16 (1988).
- Kamath, R. S., Fraser, A. G., Dong, Y., Poulin, G., Durbin, R., Gotta, M., Kanapin, A., Bot, N. L. e, Moreno, S., Sohrmann, M. Systematic functional analysis of the Caenorhabditis elegans genome using RNAi. Nature. 421, 231-237 (2003).
- Winston, W. M., Molodowitch, C., Hunter, C. P. Systemic RNAi in C. elegans requires the putative transmembrane protein SID-1. Science. 295, 2456-2459 (2002).
访问受限。请登录或开始试用以查看此内容。
重印与许可
