对引起局部感染的病原体(如人乳头瘤病毒)的T细胞表位进行表征具有挑战性,原因是循环中的T细胞数量有限。本文描述了一种方法,该方法从极少量细胞开始,分离并表征稀有的T细胞。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
已开发出一种实验方案,用于克服分离和表征针对引起局部感染病原体(如人乳头瘤病毒(HPV))的稀有T细胞所面临的困难。该方案包括:确定来自受试者体内HPV蛋白中包含T细胞表位的区域,根据干扰素-γ(IFN-γ)的分泌情况筛选出肽特异性T细胞,并培养和表征T细胞克隆(图1)。受试者1是一名近期经活检确诊为高级别鳞状上皮内病变,并在采集T细胞当天接受了环形电切术治疗的患者1。通过使用重叠合成肽进行干扰素-γ(IFN-γ)酶联免疫斑点(ELISPOT)检测,鉴定出人乳头瘤病毒16型(HPV 16)E6和E7蛋白中包含T细胞表位的区域(图2)。该检测结果不仅用于确定含有T细胞表位的区域,还用于估算表位特异性T细胞的数量,并利用市售磁珠(CD8 T细胞分离试剂盒,Miltenyi Biotec,Auburn CA)根据IFN-γ的分泌情况分离这些细胞。将筛选出的IFN-γ分泌型T细胞进行稀释后,单个接种于含有经辐照的饲养细胞混合物的培养体系中,以支持每个孔中单个T细胞的生长。随后使用IFN-γ ELISPOT检测对这些T细胞克隆进行筛选,检测时加入覆盖已鉴定区域的肽段以及自体EB病毒转化的B淋巴母细胞样细胞系(LCLs,制备方法参见Walls和Crawford的描述)2,以最大限度减少所需T细胞克隆的数量。与ELISPOT检测中通常使用的每孔1×10⁵个细胞相比1,3,本实验仅使用1,000个T细胞克隆细胞与1×10⁵个自体LCLs共培养,显著减少了所需T细胞克隆的数量。自体LCLs不仅能够向T细胞克隆呈递肽抗原,还能维持孔内较高的细胞密度,从而促进表位特异性T细胞克隆分泌IFN-γ,确保IFN-γ ELISPOT检测的成功进行。同样,利用IFN-γ ELISPOT检测进一步确定了CD8 T细胞表位(HPV 16 E6 52-61 FAFRDLCIVY)的最小及最优氨基酸序列及其HLA I类限制性分子(B58)。此外,还使用表达HPV 16 E6或E7蛋白的痘苗病毒感染的自体LCLs进行IFN-γ ELISPOT检测,结果显示该E6 T细胞表位可在细胞内源性加工处理。实验还证实了该T细胞表位对其他高危型HPV同源表位的交叉识别能力。该方法也可用于描述CD4 T细胞表位4。
方案
通过使用从受试者1建立的CD8 T细胞系进行IFN-γ ELISPOT实验,确定HPV 16 E6 46-70区域含有T细胞表位1(图2),并且在启动本方案之前,已根据IFN-γ的分泌情况筛选出表位特异性的T细胞(图1)。
1. 表位特异性T细胞的有限稀释
- 使用含1%混合人血清的完全Yssel培养基,将经照射(4,000 rad)的同种异体外周血单个核细胞(PBMCs)以5 × 10⁵ 个细胞/ml、经照射(5,000 rad)的同种异体LCLs以5 × 10⁴ 个细胞/ml,以及植物血凝素(PHA)以0.1 μg/ml的浓度混合,制备饲养细胞混合物。整个实验过程中,细胞操作均需在无菌条件下进行。
- 用上述饲养细胞混合物对分离得到的表位特异性T细胞(图3)进行连续稀释,直至浓度达到0.5个细胞/100 μl或5个细胞/1 ml。总共使用约3 × 10³ 个表位特异性T细胞。
- 使用多通道移液器,将稀释后的表位特异性T细胞以100 μl/孔的体积加入总计30至60块96孔圆底培养板中。
- 将培养板置于37 °C、5% CO2的培养箱中孵育。
- 第5天,向每孔加入100 μl含20 u/ml重组人白细胞介素-2(rhIL-2)的完全Yssel培养基。
- 通过观察96孔圆底培养板底部较大的细胞沉淀团块,肉眼识别生长中的T细胞克隆。
- 第11至14天,使用完全Yssel培养基重新制备新的饲养细胞混合物,其中包含经照射(4,000 rad)的同种异体PBMCs(1 × 10⁶ 个细胞/ml)、经照射(5,000 rad)的同种异体LCLs(1 × 10⁵ 个细胞/ml)以及PHA(0.1 μg/ml)。将该新饲养细胞混合物以1 ml/孔的体积接种至24孔板中。
- 使用可容纳约200 μl体积的微量移液器,逐孔吸取T细胞克隆。
- 将T细胞克隆分别转移至含有新饲养细胞混合物的24孔板中。重复此步骤,直至所有T细胞克隆均完成转移。
2. 使用高通量筛选ELISPOT实验鉴定表位特异性T细胞克隆(改编自Larsson et al.5 描述的方法)
- 用 50 μl/孔的抗-IFN-γ 单克隆抗体(克隆号 D1K,Mabtech,瑞典斯德哥尔摩)以无菌组织培养级磷酸盐缓冲液(PBS)稀释至 5 μg/ml,包被 2 块无菌 ELISPOT 板(Multiscreen-HA;Millipore,美国马萨诸塞州贝德福德),4 °C 孵育至少 1 小时。
- 每孔加入 150 至 200 μl PBS 洗板并弃去,重复洗涤三次。
- 每孔加入 50 μl 用 RPMI 1640 稀释至 5% 的混合人血清,37 °C、5% CO2 条件下孵育至少 1 小时,以阻断非特异性结合。使用无菌针头刺破大体积气泡以分散。
- 每孔加入 50 μl 含 1 × 10⁵ 个自体 LCLs2 的 RPMI 1640 培养基(含 5% 人血清)。
- 使用 1 ml 移液器混匀含有 T 细胞克隆的 24 孔板中各孔细胞。每孔转移 100 μl 至无菌 Eppendorf 管中,每管加入 500 μl 含 5% 混合人血清的 RPMI 1640 培养基,在微量离心机中以 3,000 RPM 离心 5 分钟。
- 倒去 Eppendorf 管中的上清液,每管加入 110 μl 含 5% 人血清的 RPMI 1640 培养基,使用涡旋振荡器重悬细胞。
- 将含有特定 T 细胞克隆的培养基各取 50 μl 加入两块 ELISPOT 板中位置相同的孔内(无需计数细胞数量,用于快速筛选)。对所有 T 细胞克隆重复此操作。通过省略细胞计数步骤,可一次性检测大量 T 细胞克隆。
- 合并多个 Eppendorf 管中剩余的培养基,各取 50 μl 加入下一对位置相同的孔中,作为阳性对照孔(后续将加入 PHA)。
- 每孔加入 50 μl 含 5% 混合人血清的 RPMI 1640 培养基,作为不含 T 细胞克隆的阴性对照孔。
- 向阳性反应区域所含肽段(表 1)每孔加入 50 μl/孔,使终浓度为每种肽段 10 μM。肽段母液根据其溶解度以 PBS 中含 5%–15% 二甲基亚砜(DMSO)溶解,浓度为 5 mM。每孔最终体积为 200 μl(50 μl 封闭液、50 μl LCLs、50 μl T 细胞克隆、50 μl 肽段)。
- 向阳性对照孔中每孔加入 50 μl PHA(终浓度 10 μg/ml)。
- 向阴性对照孔中每孔加入 50 μl 含 5% 混合人血清的 RPMI 1640 培养基。
- 37 °C、5% CO2 条件下过夜孵育。
- 每孔加入 150 至 200 μl 含 0.05% Tween-20 的 PBS 洗板并弃去,重复洗涤三次。
- 每孔加入 50 μl 含 1 μg/ml 生物素标记的抗-IFN-γ 单克隆抗体(克隆号 7B-6,Mabtech),37 °C、5% CO2 条件下孵育 2 小时。使用针头刺破大体积气泡以分散。
- 在 2 小时孵育结束前 20 分钟,将 Vectastain Elite ABC 试剂盒(Vector Laboratories, Inc.,美国加利福尼亚州伯林盖姆)中的溶液 A 和溶液 B 各加 2 滴至 5 ml 含 0.1% Tween-20 的 PBS 中,配制亲和素结合的生物素化辣根过氧化物酶 H。
- 每孔加入 150 至 200 μl 含 0.1% Tween-20 的 PBS 洗板并弃去,重复洗涤三次。
- 每孔加入 50 μl 生物素化辣根过氧化物酶 H,37 °C、5% CO2 条件下孵育 1 小时。使用针头刺破大体积气泡以分散。
- 每孔加入 150 至 200 μl 含 0.1% Tween-20 的 PBS 洗板并弃去,重复洗涤三次。
- 每孔加入 50 μl 室温下的显色试剂——稳定型二氨基联苯胺(DAB),反应 5 分钟。使用针头刺破大体积气泡以分散。
- 每孔加入 150 至 200 μl 去离子水洗板并弃去,重复洗涤两次。
- 将 ELISPOT 板完全干燥。
- 使用解剖显微镜或自动 ELISPOT 分析仪(AID ELISPOT Classic Reader;Autoimmun Diagnostika GmbH,德国斯特拉斯贝格)计数斑点。
3. 使用 ELISPOT 检测验证T细胞克隆的表位特异性(图4)
- 选择生长良好的T细胞克隆。按上述方法进行ELISPOT实验,不同之处在于每孔加入1 × 10⁵个自体LCL细胞和1 × 10³个T细胞克隆细胞,并分别加入该区域包含的三种肽段中的每一种(表1)至终浓度10 μM。每个样本设2~3个复孔。
4. 确定表位是否经过内源性加工(图 5)
- 选择生长良好的T细胞克隆。按上述方法进行ELISPOT实验,但每个孔中加入1 × 10⁵个自体LCL细胞,这些LCL细胞预先用表达HPV 16 E6、E76的重组痘苗病毒(实验前感染)或不携带外源基因的病毒(野生型,WR株)感染(感染复数为5,感染1小时),同时每孔加入1 × 10³个T细胞克隆细胞。
5. T细胞表位最小及最优序列的表征(图6a、6b和6c)
- 选择生长良好的T细胞克隆。除每孔加入1 × 10⁵个自体LCL细胞和1 × 10³个T细胞克隆细胞,并同时加入覆盖目标区域的一系列重叠9-mer肽(表1)至终浓度10 μM外,其余步骤按上述方法进行ELISPOT实验(图6a)。
- 除每孔加入1 × 10⁵个自体LCL细胞和1 × 10³个T细胞克隆细胞,并同时加入一系列不同长度的肽段(表1)至终浓度10 μM外,其余步骤按上述方法进行ELISPOT实验(图6b)。
- 除每孔加入1 × 10⁵个自体LCL细胞和1 × 10³个T细胞克隆细胞,并同时加入最可能包含最小及最优氨基酸序列的少数几个肽段外,其余步骤按上述方法进行ELISPOT实验;这些肽段将按10-5 M至10-10 M的浓度梯度进行测试(图6c)。
6. 使用ELISPOT实验鉴定限制性元件(图7)
- 选择生长良好的T细胞克隆。按照上述方法进行ELISPOT实验,不同之处在于每孔接种1 × 10³个T细胞克隆细胞,并加入10 μM的最小肽段和最优肽段。同时,每孔接种10万个与被研究对象共享一种或两种HLA I类分子的同种异体LCL细胞。
7. 研究表位特异性T细胞克隆对其他高危型HPV中同源氨基酸序列的交叉反应性(图8)
- 选择生长良好的T细胞克隆。除每孔接种1 × 10³个T细胞克隆细胞并加入含有其他高危型HPV同源氨基酸序列的肽段(10 μM)外(表2),其余步骤同上所述进行ELISPOT实验。同时,在各自的孔中分别接种每孔10万个自体LCL细胞以及表达限制性HLA I类分子的同种异体LCL细胞。
8. 代表性结果
本文所述受试者为一名22岁的非裔美国女性,近期经活检诊断为高级别鳞状上皮内病变。她在接受环形电切术治疗的当天采集了T细胞1。其CD8 T细胞系的ELISPOT检测显示,HPV 16 E6 46-70区域(每个区域均使用3段重叠的15肽进行检测)包含一个T细胞表位(图2)。基于IFN-γ分泌所筛选出的表位特异性T细胞数量为1.2 × 10⁵。对筛选所得细胞的五分之一进行有限稀释(图3)后,共获得262个T细胞克隆。由于首次T细胞克隆尝试已成功,其余筛选所得细胞未被使用。对其中94个克隆进行高通量筛选ELISPOT检测,鉴定出62个初筛阳性克隆,这些克隆在ELISPOT板上可肉眼清晰识别。其余T细胞克隆未再检测,因首次ELISPOT检测已成功鉴定出肽段特异性T细胞克隆。选取8个生长良好的初筛阳性克隆,分别用覆盖该区域的三个15肽单独重新检测(图4)。所有T细胞克隆均对HPV 16 E6 51-65肽段呈阳性反应,8个克隆中有6个对E6 46-60肽段呈阳性,而所有克隆对E6 56-70肽段均无反应。使用表达HPV 16 E6蛋白或E7蛋白的重组痘苗病毒感染的自体LCLs进行检测,结果表明这些T细胞克隆可识别内源性加工的E6表位(图5)。使用一系列覆盖HPV 16 E6 46-65区域的重叠9肽进行检测(表1),发现E6 53-61肽段诱导的反应最强(图6a)。随后测试了包含E6 53-61肽段的两个10肽、包含于E6 53-61肽段内的两个8肽,以及包含这两个10肽的一个11肽,结果表明E6 52-61(10肽)为最稳定呈现阳性反应的最小最优序列(图6b)。然而,T细胞克隆#79对E6 53-61(9肽)的反应强度与E6 52-61(10肽)相当。该T细胞克隆在更宽的肽浓度范围内对这两个肽段进行了检测,结果表明在较低肽浓度下,E6 52-61(10肽)维持阳性反应的能力明显优于E6 53-61(9肽)(图6c)。未检测更长的E6 52-62(11肽),因研究目标是确定能够引发强反应的最短序列。最终确定E6 52-61(10肽)包含最小且最优的序列。
可使用ELISPOT实验检测CD8 T细胞表位的限制性HLA I类分子,该实验采用异基因LCL细胞,这些细胞表达与受试者共有的一个或两个HLA I类分子。然而,由于ELISPOT实验中背景信号较高,受试者1的结果尚不明确。随后通过铬释放实验确定受试者1的HLA I类限制性分子为B58(数据未显示)。图7展示了另一名受试者(受试者A)的示例,该受试者被发现可识别E6 75-83(KFYSKISEY)的最小及最优序列,如Wang 等7所述。表达B62和Cw3分子的LCL显示出强阳性反应,而仅表达Cw3分子的LCL则显示背景水平的阳性信号。铬释放实验进一步证实,B62分子是受试者A的限制性分子7。
HPV 基因组的某些区域高度保守,在其他13种高危型HPV中均存在与HPV 16 E6 52-61区域同源的序列(表 2)。其中,8种高危型HPV显示出强烈的交叉识别反应(针对HPV 16 E6 52-61多肽的斑点形成单位超过50%,>50%)(图 8)。
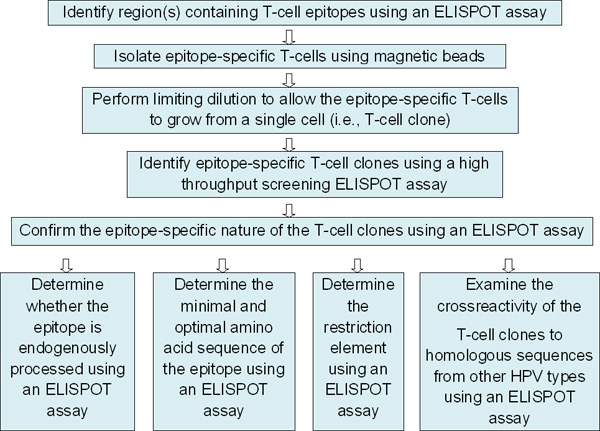
图1. 概述用于鉴定新型T细胞表位的一系列实验的整体方案。本文所述实验方案从自上而下的第三个步骤开始。
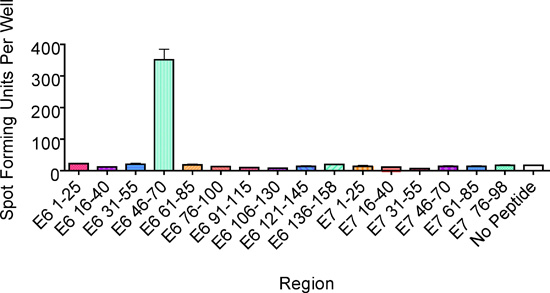
图2. 采用ELISPOT实验鉴定含有T细胞表位的区域。用十万个经刺激的CD8 T细胞 体外 每孔加入覆盖HPV 16 E6和E7蛋白各区域的三条15-mer重叠肽段(每种10 μM)。该示例来自受试者1,显示E6 46-70区域存在T细胞表位。柱状图表示均值的标准误差。
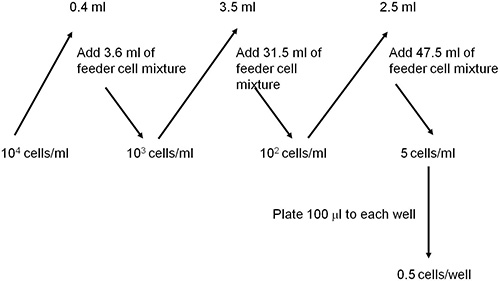
图3. 示意图展示如何使用饲养细胞混合物对表位特异性T细胞进行稀释,使其浓度达到每孔0.5个细胞。
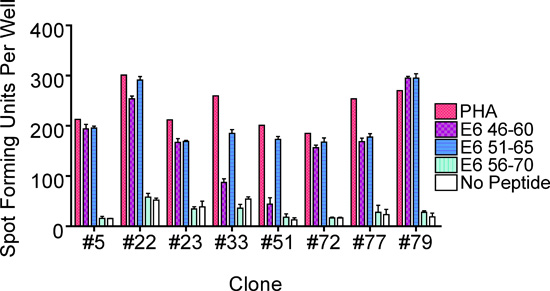
图 4. 通过分别检测三种15-mer肽段进行ELISPOT实验,以鉴定含有T细胞表位的亚区域。本例来自受试者1,显示表位存在于E6 46-60和E6 51-65亚区域。柱状图表示均值的标准误差。
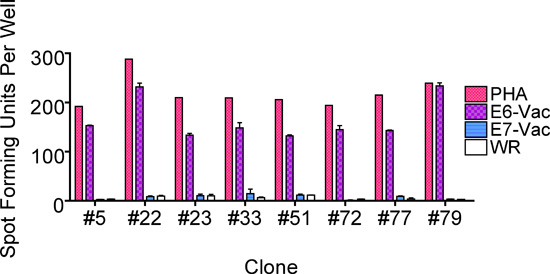
图 5. 进行 ELISPOT 检测以评估 T 细胞表位是否被内源性呈递。来自受试者 1 的此例结果显示,T 细胞克隆识别了一种内源性加工的 E6 表位。柱状图表示均值的标准误差。
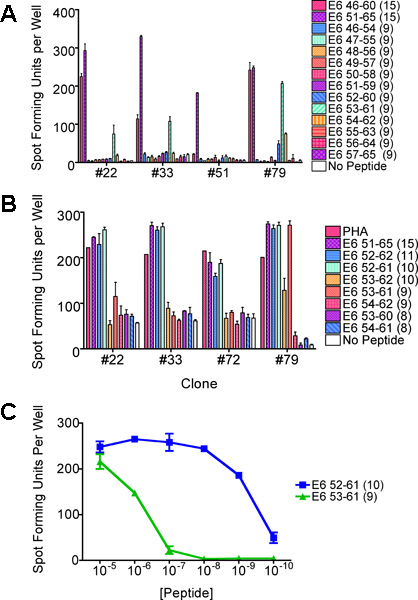
图6. 通过ELISPOT实验鉴定T细胞表位中最短且最优的肽段序列。若条件允许,全程使用相同的克隆。 (a) 使用重叠的9肽进行ELISPOT实验。此例来自受试者1,结果显示表位位于E6 53-61亚区。 (b) 使用不同长度的肽段进行ELISPOT实验,以确定最小且最优的肽段序列。本例显示,最稳定有效的最短肽段序列通常为E6 52-61肽,其次为E6 53-61肽。 (c) 进一步通过ELISPOT实验验证哪个肽段包含最小且最优的序列。E6 52-61肽在较低浓度下仍保持阳性反应,因此被确定为最短且最优的序列。图中柱状图的误差线代表均值的标准误。
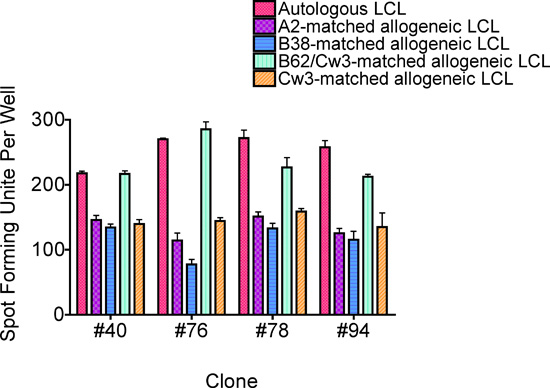
图7. 用于鉴定限制性HLA I类分子的ELISPOT实验。本示例支持B62分子是受试者A的CD8 T细胞克隆识别HPV 16 E6 75-83表位的限制性分子这一结论7。该结果通过铬释放实验得以确认。柱状图表示均值的标准误。
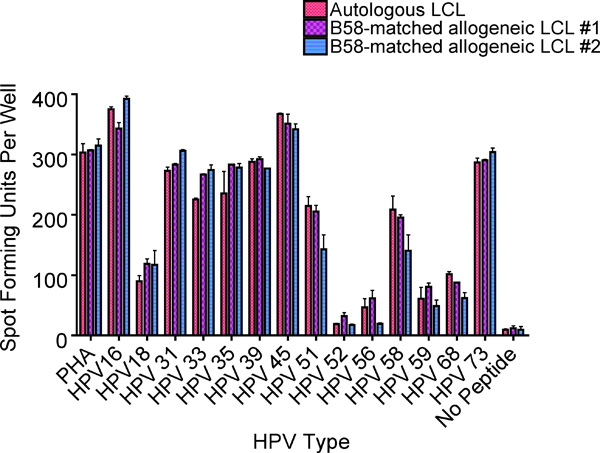
图 8. 通过 ELISPOT 实验评估 HPV 16 52-61 特异性 T 细胞克隆对其他高危型 HPV 中相似序列的交叉反应性(表 2)。来自受试者 1 的此例结果显示,在检测的 13 种其他高危型 HPV 中,有 8 种表现出显著的交叉反应性(与 HPV 16 52-61 相比,阳性率>50%)。柱状图表示均值的标准误差。
| HPV 类型 | 氨基酸残基* | 序列^ |
| 16 | E6 46-60 (15) | RREVYDFAFRDLCIV |
| 16 | E6 51-65 (15) | DFAFRDLCIVYRDGN |
| 16 | E6 56-70 (15) | DLCIVYRDGNPYAVC |
| 16 | E6 52-62 (11) | FAFRDLCIVYR |
| 16 | E6 52-61 (10) | FAFRDLCIVY |
| 16 | E6 53-62 (10) | AFRDLCIVYR |
| 16 | E6 46-54 (9) | RREVYDFAF |
| 16 | E6 47-55 (9) | REVYDFAFR |
| 16 | E6 48-56 (9) | EVYDFAFRD |
| 16 | E6 49-57 (9) | VYDFAFRDL |
| 16 | E6 50-58 (9) | YDFAFRDLC |
| 16 | E6 51-59 (9) | DFAFRDLCI |
| 16 | E6 52-60 (9) | FAFRDLCIV |
| 16 | E6 53-61 (9) | AFRDLCIVY |
| 16 | E6 54-62 (9) | FRDLCIVYR |
| 16 | E6 55-63 (9) | RDLCIVYRD |
| 16 | E6 56-64 (9) | DLCIVYRDG |
| 16 | E6 57-65 (9) | LCIVYRDGN |
| 16 | E6 53-60 (8) | AFRDLCIV |
| 16 | E6 54-61 (8) | FRDLCIVY |
* 氨基酸的数量在括号中显示。
表1. 用于确定HPV 16 E6最小及最优抗原肽序列的氨基酸序列。
| HPV 类型 | 氨基酸残基* | 序列^ |
| 16 | E6 52-61(10) | FAFRDLCIVY |
| 18 | E6 47-56 (10) | FAFKDLFVVY |
| 31 | E6 45-54 (10) | FAFTDLTIVY |
| 33 | E6 45-54 (10) | FAFADLTVVY |
| 35 | E6 45-54 (10) | FACYDLCIVY |
| 39 | E6 47-56 (10) | FAFSDLYVVY |
| 45 | E6 47-56 (10) | FAFSDLYVVY |
| 51 | E6 45-54 (10) | VAFTEIKIVY |
| 52 | E6 45-54 (10) | FLFTDLRIVY |
| 56 | E6 48-57 (10) | FACTELKLVY |
| 58 | E6 45-54 (10) | FVFADLRIVY |
| 59 | E6 47-56 (10) | FAFNDLFIVY |
| 68 | E6 47-56 (10) | FAFGDLNVVY |
| 73 | E6 45-54 (10) | FAFSDLCIVY |
* 括号中显示的是氨基酸的数量。
^ 与HPV-16 E6 52-61表位不同的氨基酸残基以粗体显示。
表2. 用于评估交叉识别的高危型HPV中与HPV 16 E6 52-61 CD8 T细胞表位同源的肽段的氨基酸序列。
访问受限。请登录或开始试用以查看此内容。
讨论
传统上,免疫学家通过在体外(in vitro)刺激感兴趣的T细胞,并进行极限稀释实验以分离出表位特异性的T细胞克隆,从而鉴定新的T细胞表位。随后使用铬释放实验对T细胞克隆进行表征8,9。然而,许多尝试均未成功,原因可能是T细胞频率过低而无法分离,或可用于完成表征的T细胞克隆数量不足。本文所述方法通过以下方式克服了这些限制:(1)评估是否存在足够数量的感兴趣T细胞;(2)基于干扰素-γ(IFN-γ)的分泌情况富集目标T细胞,提高其频率;(3)采用ELISPOT实验,将自体淋巴母细胞样细胞系(LCLs)与T细胞克隆共同接种,从而仅需少量T细胞克隆细胞即可完成分析。图2展示了一个ELISPOT实验的示例,该实验不仅用于确定潜在T细胞表位所在的区域,还可用于评估表位特异性T细胞的频率。通过从目标区域的斑点形成单位数中减去无肽阴性对照的斑点形成单位数,即可估算出表位特异性T细胞的数量。将该频率乘以仍可用于分析的细胞数,即可得到表位特异性T细胞的估计总数。根据我们的经验,若该数值≥2,500个细胞,则值得继续后续实验。随后可使用市售的磁分离试剂盒,基于IFN-γ的分泌情况分离...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由美国癌症协会学者奖(RSG-06-180-01-MBC)以及美国国立卫生研究院基金(R01 CA143130 和 UL1RR029884)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| CD8 T细胞分离试剂盒 | Miltenyi Biotec | 130-094-156 | |
| 植物血凝素 | Remel, Thermo Fisher Scientific | R-30852801 | 2mg/瓶 |
| Yssel’s 培养基 | Gemini Bio Products | 400-102 | 含1%混合人血清 |
| 96孔圆底培养板 | BD Biosciences | 08-772-17 | |
| 重组人IL-2 | R&D Systems | 202-IL-050 | 50μg |
| 24孔培养板 | Corning | 07-200-84 | |
| 磷酸盐缓冲液 | Cellgro | MT-21-031-CV | |
| 抗IFN-γ单克隆抗体(D1K) | Mabtech | 3420-3-1000 | |
| 生物素标记的抗IFN-γ单克隆抗体(7B-6) | Mabtech | 3420-6-1000 | |
| 多孔HA ELISPOT板 | EMD Millipore | MAHA S45 10 | |
| 二甲基亚砜 | Sigma-Aldrich | D2650 | 100 ml 瓶装 |
| 混合人血清 | Atlanta Biologicals | S40510H | 需热灭活 |
| RPMI 1640培养基 | Cellgro | MT-10-040-CV | |
| 吐温-20 | Sigma-Aldrich | P2287-100ml | |
| Vectastain Elite ABC试剂盒 | Vector Laboratories | NC9313719 | |
| 稳定型二氨基联苯胺 | Open Biosystems | MBI 1241 | |
| AID EliSpot Reader Classic | Autoimmun Diagnostika GmbH | ELR06 |
参考文献
- Nakagawa, M. A favorable clinical trend is associated with CD8 T-cell immune responses to the human papillomavirus type 16 e6 antigens in women being studied for abnormal pap smear results. J. Low. Genit. Tract Dis. 14, 124-129 (2010).
- Walls, E., Crawford, L. Lymphocytes: A practical approach. Klaus, G. G. B. , IRL Press. 149-149 (1987).
- Nakagawa, M., Kim, K. H., Moscicki, A. B. Patterns of CD8 T-cell epitopes within the human papillomavirus type 16 (HPV 16) E6 protein among young women whose HPV 16 infection has become undetectable. Clin. Diagn. Lab Immunol. 12, 1003-1005 (2005).
- Wang, X., Santin, A. D., Bellone, S., Gupta, S., Nakagawa, M. A novel CD4 T-cell epitope described from one of the cervical cancer patients vaccinated with HPV 16 or 18 E7-pulsed dendritic cells. Cancer Immunol. Immunother. 58, 301-308 (2009).
- Larsson, M. A recombinant vaccinia virus based ELISPOT assay detects high frequencies of Pol-specific CD8 T cells in HIV-1-positive individuals. AIDS. 13, 767-777 (1999).
- Nakagawa, M. Cytotoxic T lymphocyte responses to E6 and E7 proteins of human papillomavirus type 16: relationship to cervical intraepithelial neoplasia. J. Infect. Dis. 175, 927-931 (1997).
- Wang, X., Moscicki, A. B., Tsang, L., Brockman, A., Nakagawa, M. Memory T cells specific for novel human papillomavirus type 16 (HPV16) E6 epitopes in women whose HPV16 infection has become undetectable. Clin. Vaccine Immunol. 15, 937-945 (2008).
- Evans, M. Antigen processing defects in cervical carcinomas limit the presentation of a CTL epitope from human papillomavirus 16 E6. J. Immunol. 167, 5420-5428 (2001).
- Shi, Y., Smith, K. D., Kurilla, M. G., Lutz, C. T. Cytotoxic CD8+ T cells recognize EBV antigen but poorly kill autologous EBV-infected B lymphoblasts: immunodominance is elicited by a peptide epitope that is presented at low levels in vitro. J. Immunol. 159, 1844-1852 (1997).
- Varadarajan, N. A high-throughput single-cell analysis of human CD8+ T cell functions reveals discordance for cytokine secretion and cytolysis. The Journal of Clinical Investigation. , (2011).
- Nakagawa, M., Kim, K. H., Moscicki, A. B. Different methods of identifying new antigenic epitopes of human papillomavirus type 16 E6 and E7 proteins. Clin. Diagn. Lab Immunol. 11, 889-896 (2004).
- Nakagawa, M., Kim, K. H., Gillam, T. M., Moscicki, A. B. HLA class I binding promiscuity of the CD8 T-cell epitopes of human papillomavirus type 16 E6 protein. J. Virol. 81, 1412-1423 (2007).
- Brown, S. A. T cell epitope "hotspots" on the HIV Type 1 gp120 envelope protein overlap with tryptic fragments displayed by mass spectrometry. AIDS Res. Hum. Retroviruses. 21, 165-170 (2005).
- Masemola, A. M. Novel and promiscuous CTL epitopes in conserved regions of Gag targeted by individuals with early subtype C HIV type 1 infection from southern Africa. J. Immunol. 173, 4607-4617 (2004).
- Walker, B. D., Korber, B. T. Immune control of HIV: the obstacles of HLA and viral diversity. Nat. Immunol. 2, 473-475 (2001).
访问受限。请登录或开始试用以查看此内容。
重印与许可
