我们描述了一种定性检测方法,用于监测由细菌介导的竞争现象 铜绿假单胞菌 VI型分泌系统(T6SS)。该实验依赖于携带特定质粒的大肠杆菌(Escherichia coli)靶细胞的存活/杀伤情况 lacZ-报告基因。该技术可调节用于评估具有VI型分泌系统(T6SS)的微生物的杀菌/抑菌活性。
本文内容
摘要
摘要
VI型分泌系统(T6SS)是一类分子纳米机器,可使革兰氏阴性细菌将蛋白质转运并注入多种靶细胞中1,2。T6SS由13种核心组分构成,其结构与噬菌体的尾管具有相似性3。噬菌体利用尾管和穿刺装置穿透靶细菌的细胞包膜并注入DNA。目前认为,T6SS是一种倒置的噬菌体装置,可在细菌细胞包膜上形成特定通道,将效应蛋白和毒素输送至细胞表面。该过程可能进一步延伸:当细菌与其他细胞接触时,T6SS装置亦可穿孔这些细胞,从而将效应蛋白注入此类靶标。T6SS的尾管和穿刺装置部分分别由Hcp和VgrG蛋白构成4,5。
通过使用多种细菌病原体的研究,已证明T6SS具有多功能性。Vibrio cholerae 的T6SS可通过注射携带C端肌动蛋白交联结构域的“进化”型VgrG蛋白,重塑真核宿主细胞的细胞骨架6,7。另一个显著的例子是近期利用Pseudomonas aeruginosa所证实的,该菌能够以依赖T6SS的方式靶向并杀死其他细菌,从而促进自身在特定微生物生态位及竞争性环境中的定植8,9,10。
在后一种情况下, 三种T6SS分泌蛋白,即Tse1、Tse2和Tse3,已被鉴定为注入靶细菌的毒素(图1)。通过Tsi1、Tsi2和Tsi3免疫蛋白介导的抗毒素机制,供体细胞可免受这些效应因子的有害影响。8,9,10这种抗菌活性可在T6SS功能完整的细菌与同种的T6SS失活菌株或其他细菌物种于固体表面共培养竞争时进行监测。8,11,12,13.
现有的数据强调了细菌竞争实验的数值化方法,包括耗时的菌落形成单位(CFU)计数,该方法在很大程度上依赖于抗生素生产商。对于P. aeruginosa等抗生素耐药菌株,这些方法可能并不适用。此外,随着在超过100种细菌基因组中已鉴定出约200种不同的VI型分泌系统(T6SS)位点14,开发一种便捷的筛选工具显得尤为迫切。我们建立了一种操作简便、仅需常规实验器材和试剂的检测方法。该方法利用报告菌株作为猎物(本实验中为Escherichia coli DH5α),通过lacZ基因的α-互补作用,提供了一种快速且定性的技术,用于监测T6SS依赖性的杀菌/抑菌活性。总体而言,该方法具有直观性,可在琼脂平板上快速识别与T6SS相关的表型。本实验方案可根据其他菌株或细菌种类的具体条件(如培养基、温度或接触时间)进行适当调整。
方案
1. 细菌菌株与培养
- 设计一个 大肠杆菌 受体细胞(猎物, P) 通过使用标准的 CaCl 转化法2 处理或电穿孔15 E. coli DH5α 带有质粒的细胞,该质粒可实现α-互补 lacZ 基因表1)。将转化后的细胞接种于含5-溴-4-氯-吲哚基-β-半乳糖苷(5-bromo-4-chloro-indolyl-β-β-D-半乳糖吡喃糖苷(X-gal),终浓度为40 mg/ml,并加入适当的抗生素。37℃培养 °C 过夜培养,次日早晨筛选蓝色转化子(参见 §1.3).
- 培养 铜绿假单胞菌 具有T6SS活性的供体细胞(D+)或 T6SS 失活(D-) (表1在37℃的LBA上过夜培养 °C. 在本示例中,我们使用了 铜绿假单胞菌 retS 具有组成型活性 H1-T6SS 的菌株16 以及一个缺失H1-T6SS基因簇的同基因突变体(表1).
- 第二天,在振荡培养瓶中接种一个亮蓝色克隆,制备过夜液体培养物 E. coli 转化子(P)从上述平板中描述的 §1.1,在5 ml添加了适当抗生素的胰蛋白胨大豆肉汤(TSB)中培养。在37℃下振荡培养。 °C. 以单个菌落同样进行后续操作(D+)以及(D-)从上述平板中描述的 §1.2.
2. 竞争实验
- 为第二天的实验准备LBA平板。确保这些平板充分干燥(可在本生灯旁或层流柜中干燥)。为菌株(D+)、(D-)和(P)准备一块“检测输入”(A-输入)平板。为菌株(D-+P)和(D++P)准备一块“检测输出”(A-输出)平板。将平板分区并做好相应标记。
- 过夜培养后(见§1.3),测定输入细菌培养物(D-、D+和P)的光密度(OD600nm),并计算获得每种菌株相当于1单位OD600nm细胞密度所需的体积。将每种“输入”细胞培养物(D-、D+和P)分别收集至无菌的1.5 ml离心管中。
- 在室温下以13,000 rpm离心细菌样品1分钟,并弃去上清液。
- 用移液枪轻轻吹打,将D-、D+和P培养物的菌体沉淀重悬于100 μl新鲜TSB中,并将每种对应菌株各10 ml以单点形式接种至“A-输入”平板(按§2.1制备)。
- 接种“A-输出”平板(按§2.1制备)。更具体地说,分别在两个独立的离心管中,将30 μl(D+)与30 μl(P)混合,以及30 μl(D-)与30 μl(P)混合(注意:所用培养物为§2.4中所述)。将混合液(D+/P)和(D-/P)各取20 μl,分别以单点形式接种至“A-输出”平板上。在本生灯旁让接种点自然干燥,随后将平板置于37 °C培养箱中孵育适当时间,以进行细菌杀伤反应。以P. aeruginosa为例,当比较T6SS活性菌株与T6SS缺陷菌株时,通常在孵育5小时后可观察到显著的细菌杀伤效应。
3. 细菌杀灭作用的定性观察
- 准备含有 40 μg/ml X-gal 的 LBA 平板,用于检测实验结果。这些平板将被称为“读出输入”(R-input),用于点样分离的细菌,或“读出输出”(R-output),用于点样混合细菌培养物,从而读取杀伤效果。这些平板也需要充分干燥。在平板背面将其均分为四个部分,并标记为 0、10-1、10-2 和 10-3,代表待点样于琼脂平板上的细菌培养物稀释度(见 §3.3)。该稀释梯度将允许在同一菌斑内对蓝/白细菌比例进行半定量评估。
- 使用无菌接种环从“A-input”平板(见 §2.4)和“A-output”平板(见 §2.5)上分别收集单个细菌菌落,并将每个菌落重悬于不同的含有 1 ml TSB 的 1.5 ml Eppendorf 管中。将管子置于 Eppendorf 振荡器中振荡 30 分钟,以有效重悬细菌。
- 准备 5 组、每组 3 个 Eppendorf 管,每管加入 900 μl TSB,并对每个重悬的菌样进行连续 10 倍梯度稀释至 10-3。确保每次稀释时更换移液器吸头,并在每步稀释之间涡旋振荡 5 秒。
- 将 §3.3 中制备的细菌稀释液点样到充分干燥的含 40 μg/ml X-gal 的 LBA 平板上,从最高稀释度到未稀释的悬液依次点样,这些平板即为“A-input”菌落对应的“R-input”平板和“A-output”菌落对应的“R-output”平板(图 2)。在点样前短暂涡旋每根试管,以保持细菌悬液均匀。为保证结果可重复性,在每个象限内以 20 μl 为一份,点样三份(图 2)。此时平板的相对干燥程度至关重要,因为菌斑必须在平板上保持彼此分离,不能相互流动融合。
在实验的这一阶段也可对竞争实验进行定量分析。在完成步骤 3.3 后,取 10-3 稀释度的菌液 100 μl 涂布于含 40 μg/ml X-gal 的 LBA 平板上。为保证结果可重复性,对“A-output”平板上的每个菌样均进行三份涂布。将稀释平板置于 37 °C 恒温培养箱中过夜培养(相当于 16 小时)。随后计数蓝色菌落(即仍存活的 P 细胞)。竞争 5 小时后的典型结果如 图 3 所示。 - 将平板打开(不加盖)置于无菌区域内,使每个菌斑中的多余液体被充分吸收。
- 将平板置于 37 °C 恒温培养箱中过夜培养。在此培养期间,混合菌群(D+/P)中的杀伤作用仍在持续,因为两种菌株仍处于接触状态。
- 对平板进行拍照或扫描,用于结果分析(图 2)。若菌斑大部分呈蓝色,表明 E. coli 未被 P. aeruginosa 杀死。当 E. coli 与 T6SS 缺陷型 P. aeruginosa 菌株(D-)混合时即出现此情况(图 2,右下角平板)。
结果
典型结果如图所示 图1 使用文中所述的菌株和试剂 表1图中所示的平板在过夜培养后进行扫描。“读出-输入”平板显示了本实验所用菌株的系列稀释模式。正如预期的那样, E. coli 猎物斑点(P)过表达的 lacZ 基因在添加了X-gal的培养基上呈蓝色,而供体 P. aeruginosa 菌株(D+, T6SS 活性)和(D-, T6SS 无活性)保持白色。捕食菌与T6SS活性菌株混合后所用的“读出-输出”平板(D+/P) 上出现的斑点显示蓝色猎物消失,表明其已被杀死,这证明了供体具有战胜猎物的能力。蓝色在(D-/P) 平板显示无活性的T6SS供体无法杀死蓝色猎物。

图1. 杀伤作用 大肠杆菌 由具备T6SS功能的 P. aeruginosa P. aeruginosa 将毒素注入 E. coli 以T6SS依赖的方式靶向细胞(白色箭头所示)。两种毒素Tse1和Tse3(橙色和红色圆圈)被注入 E. coli 周质空间并降解肽聚糖9Tse2 毒素(黄色圆圈)被注入 E. coli 细胞质,具有抑菌活性8,10。毒素的协同作用可杀死靶细胞(闪电和头骨图标)。通过检测产生的β-半乳糖苷酶活性,可监测靶细胞的存活情况(另见 图2). P. aeruginosa 通过免疫蛋白 Tsi1、Tsi2 和 Tsi3(分别为橙色、黄色和红色方块)免受毒素活性的影响8,9,10.
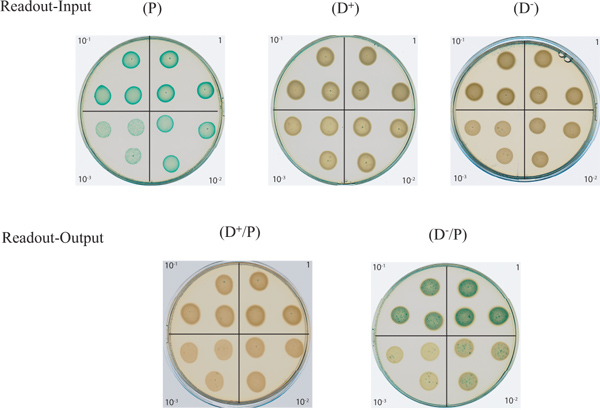
图2. 用于监测T6SS依赖性细菌杀伤作用的琼脂平板实验。 本图上半部分显示的是“读出-输入”平板,包含D-、D+和P输入菌株的系列稀释液。P输入菌株因lacZ基因的α-互补作用呈蓝色,从而产生可切割X-gal的β-半乳糖苷酶。下半部分显示的是“读出-输出”平板,包含活性(D+/P)或非活性(D-/P)T6SS供体菌株P. aeruginosa与E. coli捕食菌混合后的系列稀释液。 点击此处查看大图。
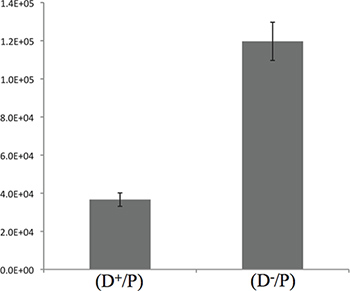
图 3. P. aeruginosa 在孵育 5 小时后对 E. coli 杀伤作用的定量分析。 该图展示了步骤 3.4 中描述的 E. coli 的菌落形成单位(CFU)计数结果。结果显示,T6SS+ 与 T6SS- 菌株之间存在 3 倍的差异,表明大部分杀伤作用发生在最初接触的 5 小时内。
讨论
本文介绍的方法可实现对T6SS介导的杀菌/抑菌活性的直观观察。该检测在琼脂平板表面进行。先前研究表明,采用混合细菌液体培养物进行的T6SS依赖性杀伤检测效率较低,原因可能是两种细菌之间缺乏稳定的接触8。目前认为,T6SS的作用机制类似于噬菌体将DNA注入靶细胞的机制17。在液体培养条件下,T6SS的管状结构可能更容易断裂,细菌间的接触可能中断,导致毒素无法有效递送。
就孵育时间而言,我们所描述的供体菌株与捕食对象之间最初的5小时接触已足以观察到铜绿假单胞菌(P. aeruginosa)与大肠杆菌(E. coli)之间的细菌杀伤作用,如图3所示。然而,建议通过进行动力学实验来调整孵育时间,以优化实验条件。
由于该方法是一种基于颜色的技术,供体菌株的色素沉着可能会影响输出结果。例如,在铜绿假单胞菌(P. aeruginosa)中,某些菌株会产生高水平的有色色素,如绿脓菌素(pyocyanin)和绿脓菌荧光素(pyoverdine),这些物质可能干扰检测信号的读取,使得与捕食对象的区分相对困难。可使用其他显色型β-半乳糖苷酶底物替代X-gal(表1),例如magenta-gal或red-gal。
竞争实验可使用其他报告基因进行检测。例如,已有研究使用绿色荧光蛋白标记的猎物蛋白进行了类似的实验12。
我们的检测方法虽然不是定量的,但由于基于报告菌(reporter prey)的存活或被杀灭情况,因此能够很好地指示T6SS活性。该技术的优势在于操作简便,可方便地评估任何细菌物种T6SS的杀菌/抑菌活性。迄今为止,T6SS的活性仅在革兰氏阴性菌中得到证实,尚无明确报道显示革兰氏阳性菌对T6SS敏感12。此外,显然在测试不同细菌物种时,需考虑它们在培养条件上的不兼容性(例如生长温度、供氧条件、特定培养基)。
我们的检测方法还可用于评估T6SS中哪些组分是绝对必需的,因为即使微量分泌的毒素也可能足以杀死捕食对象。与使用培养上清液和Western印迹分析来检测T6SS依赖性分泌的标准方法相比,该方法能够清晰地检测到T6SS的微弱活性。然而,仍需进行准确的菌落形成单位(CFU)计数,以实现对T6SS活性的精确定量。
披露
我们没有需要披露的内容。
致谢
本工作由惠康基金会资助项目 WT091939MA 资助。Alain Filloux 得到英国皇家学会的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| P. aeruginosa PAKΔretS (D+) (有活性的 T6SS) | 实验室菌株 | 参见参考文献16 | |
| P. aeruginosa PAKΔretSΔH1-T6SS (D-(T6SS失活) | 本研究 | 上述 H1-T6SS 通过等位基因交换方法,按照参考文献18中描述的步骤,删除了包含PA0070至PA0095基因的基因簇。上游片段引物用于扩增突变片段,其引物序列为: 5'-ATGGTCAACGACATGGAGCTGGAG-3',以及 5'CGAGGCCGATCAGGCCTTCAGAACTGA-3'。下游片段引物: 5'-TCAGGCCTTCAGAACTGAAGCGGCGCA-3' 5'-GGTGGCGTTCAACAGTTCCATGTC-3' | |
| 大肠杆菌 DH5α | Invitrogen | 18258-012 | F- φ80lacZΔM15 Δ(lacZYA-argF) U169 重组A1 结束A1 hsdR17 (rk-,mk+) phoA supE44 λ- thi-1 gyrA96 relA1 |
| pBluescript II SK(+) | 安捷伦 | 212205 | 该载体表达 α 肽段 β-半乳糖苷酶用于 αα-互补 |
| X-gal | Invitrogen | 15520-018 | 40时使用 μg/ml |
| LB 琼脂 | 默克化学品 | 1.10283.0500 | |
| 胰蛋白胨大豆肉汤(TSB) | Oxoid | CM109 | |
| 涡旋振荡器 Genius 3 | IKA | 3340000 | |
| 扫描仪 | Epson | V700 | |
| 分光光度计 | WPA Biowave | CO8000 细胞密度计 | |
| Magenta-gal | Bioworld | 30350001-1 (715241) | |
| Red-gal | 有机化合物研究 | 1364c | |
表1. 菌株、质粒、材料与试剂的使用。 |
参考文献
- Filloux, A., et al. The bacterial type VI secretion machine: yet another player for protein transport across membranes. Microbiology. 154 (6), 1570(2008).
- Cascales, E., Cambillau, C. Structural biology of type VI secretion systems. Philos. Trans. R. Soc. Lond. B. Biol. Sci. 367 (1592), 1102(2012).
- Leiman, P. G., et al. Morphogenesis of the T4 tail and tail fibers. Virol. J. 7, 355(2010).
- Ballister, E. R., et al. In vitro self-assembly of tailorable nanotubes from a simple protein building block. Proc. Natl. Acad. Sci. U.S.A. 105 (10), 3733(2008).
- Leiman, P. G., et al. Type VI secretion apparatus and phage tail-associated protein complexes share a common evolutionary origin. Proc. Natl. Acad. Sci. U.S.A. 106 (11), 4154(2009).
- Pukatzki, S., et al. Type VI secretion system translocates a phage tail spike-like protein into target cells where it cross-links actin. Proc. Natl. Acad. Sci. U.S.A. 104 (39), 15508(2007).
- Ma, A. T., et al. Translocation of a Vibrio cholerae type VI secretion effector requires bacterial endocytosis by host cells. Cell Host Microbe. 5 (3), 234(2009).
- Hood, R. D., et al. A type VI secretion system of Pseudomonas aeruginosa targets a toxin to bacteria. Cell Host Microbe. 7 (1), 25(2010).
- Russell, A. B., et al. Type VI secretion delivers bacteriolytic effectors to target cells. Nature. 475 (7356), 343(2011).
- Li, M., et al. Structural basis for type VI secretion effector recognition by a cognate immunity protein. PLoS Pathog. 8 (4), e1002613(2012).
- Zheng, J., et al. Genetic analysis of anti-amoebae and anti-bacterial activities of the type VI secretion system in Vibrio cholerae. PLoS One. 6 (8), (2011).
- Schwarz, S., et al. Burkholderia type VI secretion systems have distinct roles in eukaryotic and bacterial cell interactions. PLoS Pathog. 6 (8), e23876(2010).
- Murdoch, S. L., et al. The opportunistic pathogen Serratia marcescens utilizes type VI secretion to target bacterial competitors. J. Bacteriol. 193 (21), 6057(2011).
- Boyer, F., et al. Dissecting the bacterial type VI secretion system by a genome wide in silico analysis: what can be learned from available microbial genomic resources? BMC Genomics. 10, 104(2009).
- Maniatis, T., et al. Molecular cloning: A Laboratory Manual. , Cold Spring Harbor Laboratory. Cold Spring, NY. (1982).
- Mougous, J. D., et al. A virulence locus of Pseudomonas aeruginosa encodes a protein secretion apparatus. Science. 312 (5779), 1526(2006).
- Records, A. R., et al. The type VI secretion system: a multipurpose delivery system with a phage-like machinery. Mol. Plant Microbe Interact. 24 (7), 751(2011).
- Hachani, A., et al. Type VI secretion system in Pseudomonas aeruginosa: secretion and multimerization of VgrG proteins. J. Biol. Chem. 286 (14), 12317(2011).
重印与许可
