体节发生是一种节律性的发育过程,可在脊椎动物胚胎中对体轴进行空间模式化。此前,我们构建了转基因斑马鱼品系,利用荧光报告基因来观察驱动该过程的周期性基因。在此,我们将这些品系的分散细胞进行体外培养,并随时间成像其振荡行为in vitro。
本文内容
摘要
摘要
体节形成是脊椎动物中一种周期性且有序的形态发生过程。沿体轴方向节律性地形成称为体节的组织块,是遗传振荡器调控胚胎发育模式的证据。在斑马鱼中,驱动体节形成的细胞内时钟由Her/Hes转录因子家族成员构成,这些成员通过负反馈环路组织起来。我们近期构建了针对周期性基因her1的转基因荧光报告品系,能够重现前体节中胚层(PSM)中振荡的时空模式。利用这些品系,我们建立了一种体外培养系统,可在单个分离的PSM细胞中实时分析体节时钟的振荡活动。通过从转基因胚胎中取出PSM组织,并将处于振荡区域的细胞分散接种到玻璃底培养皿上,我们获得了适用于对单个时钟细胞进行荧光信号延时成像的细胞培养体系。该方法为直接操控体节时钟提供了实验与概念框架,具有前所未有的单细胞分辨率,使研究者能够区分并解析其细胞自主性与组织水平上的特性。
引言
脊椎动物体轴上周期性形成体节的过程,即体节发生,是发育中胚胎存在空间与时间振荡器的证据。目前被广泛接受的调控体节发生的机制在概念上可由一个 "时钟与波前" 模型 1,其中的 "时钟" 由细胞振荡器组成,目前认为这些振荡器由一组周期性基因的节律性表达在细胞内驱动2,标记了体节从前体节中胚层(PSM)的形成过程。随着胚胎发育,一个成熟过程 "波前" PSM 随退缩的组织向后移动,在经过时逐渐减慢并终止细胞振荡器的活动 3该时空动态系统统称为体节分割钟。目前研究体节分割钟的方法涵盖了三个逐级递进的组织层次:从单个细胞内的遗传振荡器,到细胞间的局部耦合作用,最终到集体性体节前体组织中位置信息的全局调控。 4.
先前的研究表明,斑马鱼的细胞自主性分节振荡器由基因及其蛋白质产物组成 她/他 转录因子家族,据认为通过转录抑制形成负反馈环路 5-7Delta/Notch 信号通路使相邻细胞之间的振荡同步,并调控细胞群体的集体振荡周期 8-10尾芽产生的 Fgf 信号分子似乎在斑马鱼 PSM 中形成浓度梯度,因此被假定有助于减缓并终止前部振荡细胞的活动 11迄今为止,这些分子在体节发生过程中的功能作用已通过基因突变、吗啉代寡核苷酸注射、热激过表达以及对细胞间信号通路和生物钟组分的拮抗剂药物处理等方式进行了研究5,7,10,12 通过这些扰动,体节缺陷的组织水平描述以及周期性基因(如)表达的同步振荡丧失,可推断出分段钟的功能。 her1, her7, 和 deltaC. 然而,这些数据几乎均来自固定胚胎,无法准确捕捉与体节时钟动态功能固有相关的改变。最近,多胚胎延时成像技术首次揭示了振荡周期发生改变的突变体,但这些观察结果同样是在组织水平上获得的 7,13 因此,体节发生过程中假定的细胞自主振荡器的行为尚未被观察到。
体节发生过程的静态快照只能提供不完整的信息,因为该过程本质上由一个振荡系统驱动。早期在小鼠和鸡细胞中的研究表明,转录本和蛋白质水平呈现上升与下降的节律,但每隔30或45分钟对约2小时一次的振荡进行取样,必然限制所获得数据的完整性,从而影响可得出的结论。14,15 对其他生物振荡器(尤其是昼夜节律钟)的研究已从分阶段检测基因和蛋白质表达,转向利用荧光和生物发光报告系统进行实时监测 16,17这些工具对于揭示单个细胞的生物钟特性至关重要 18. 一种生物发光报告基因的 Hes1 已在单个小鼠PSM细胞中开发并初步表征了周期性基因 19对少量细胞计算了平均周期和方差,结果显示振荡可持续多个周期 体外然而,这些研究并未定量探讨振荡器频率和振幅的稳定性与鲁棒性,未阐明细胞是否能够自发进入或退出振荡状态,也未揭示细胞如何维持其相位关系。此外,胚胎中发现的信号分子对细胞自主性生物钟的直接影响尚未被直接验证。因此,单细胞振荡器的这些基本特性至今完全未知。
我们近期利用BAC重组工程开发了转基因鱼系 20 驱动Venus(YFP)荧光报告基因的表达 her1 表达30. 这些细胞系利用其所嵌入的完整染色体位点的调控信号,重现了基因表达的时间动态和空间模式 her1这一突破使得对发育中斑马鱼胚胎的基因表达进行实时监测成为可能 体内为了研究细胞自主振荡的基本特性及其随时间的调控机制,我们近期开发了一种可靠的方法,用于分离并记录体节中胚层(PSM)细胞的活动 体外本方案描述了我们如何利用转基因报告品系建立分散的细胞培养体系,从而在单细胞水平上表征斑马鱼体节时钟的振荡行为。由此,我们能够探究该领域中以往通过静态或组织水平分析无法解决的关键问题,并可在单细胞水平上直接利用信号分子和抑制剂对体节时钟进行操控。
方案
1. 解剖前准备
- 在解剖前一天,从携带转基因等位基因的杂合型斑马鱼配对交配中获取胚胎。
- 将胚胎置于不含亚甲蓝的E3培养基中,在28 oC条件下培养至盾胚期(受精后6小时)。
- 将不含亚甲蓝的E3培养基中的胚胎转移至20 oC过夜。在20 oC时,胚胎一旦进入尾芽期,每小时将形成1个体节。在20 oC过夜培养17–20小时后,次日早晨开始解剖实验时,胚胎应处于5至8个体节阶段。
- 准备解剖所需工具和试剂。
- 经火焰抛光的玻璃移液管,用于胚胎和组织的转移
- 精细镊子,用于去除胚胎的绒毛膜
- 涂有Sylgard的35 mm培养皿,用于解剖——将Sylgard聚合物倒入35 mm培养皿中,在37 °C下过夜固化。使用针尖去除少量固化后的聚合物以制作解剖凹槽。该培养皿可清洗后重复使用。
- 经打磨并压平的钨丝工具,用于PSM组织的操作
- 微型手术刀,用于切割所需PSM组织片段以进行培养
- 35 mm塑料培养皿,用于胰蛋白酶孵育
- 含10%胎牛血清的L15培养基
- 0.25%胰蛋白酶/EDTA溶液
- 经Sigmacote处理的加样枪头,用于细胞分散
- 含有不含亚甲蓝E3培养基的塑料培养皿。
- 用纤连蛋白1(Fibronectin1)包被玻璃底成像培养皿(PBS中浓度为10 μg/ml)。在解剖过程中将培养皿置于实验台上进行包被。
- 使用配备适当荧光滤光片的体视显微镜识别并筛选阳性转基因胚胎(5至8个体节阶段)。
- 通过荧光通道观察前体节中胚层(PSM)中的YFP表达来鉴定转基因胚胎(图1A)。荧光信号应出现在最后一个已形成体节至尾芽的区域。选择荧光信号最强的胚胎;后代中约25%为携带两份转基因拷贝的纯合子胚胎。所需筛选胚胎数量根据实验而定。平均而言,一个解剖得到的尾芽组织片段可获得约1,000个细胞。通常建议额外准备几个阳性胚胎,以防解剖过程中出现操作失误。
- 使用透射光作为位置参考,以区分任何自发荧光信号,特别是卵黄细胞中的自发荧光。
- 将阳性胚胎转移至另一个含有不含亚甲蓝E3培养基的塑料培养皿中。
2. PSM 解剖与分散
- 准备用于解剖的胚胎。
- 在解剖显微镜下,使用精细镊子小心地从 E3 培养基中的每个胚胎上去除绒毛膜。注意不要损伤胚胎或破坏卵黄细胞。
- 在涂有Sylgard的解剖皿中加入含血清的L15培养基。使用镊子或其它扁平工具,清除Sylgard表面的气泡。
- 使用火焰抛光的玻璃移液管将去绒毛膜的胚胎转移至解剖皿中。
- 使用金属丝工具将所有胚胎移至解剖皿的一侧。
- 从单个胚胎中解剖分离体节形成区(PSM)。
- 将单个胚胎侧卧放置于解剖皿中Sylgard层上制作的小凹槽内(图1B)。
- 使用显微手术刀,在前脑后方紧邻的位置以及胚胎的腹极处,切穿胚胎和卵黄细胞(图1B,红色虚线)。
- 将胚胎的前段部分从凹槽中移出并置于皿的一侧,然后使用金属丝工具刮除包括PSM在内的后段组织上残留的卵黄颗粒。
- 待卵黄物质被刮除后,将PSM展平并调整方向,使其前端远离操作者,后端朝向操作者(图1C)。
- 若此时外胚层的薄层仍未自然脱落,可使用金属丝工具将其从PSM组织顶部剥离。
- 使用显微手术刀将尾芽——即位于脊索末端之后的PSM最尾端部分——从其余组织上切下(图1C,红色虚线)。注意:根据实验目的,也可将PSM的其他部分(例如靠近最新形成体节的前部PSM)用于培养。
- 将切下的尾芽组织移至解剖皿的一个角落,远离操作区域。使用金属丝工具清除解剖区域内的碎屑和不需要的胚胎组织。
- 对下一个胚胎重复上述步骤。
- 根据实验所需细胞数量,汇集多个胚胎的尾芽组织。平均而言,单个尾芽组织可获得约1,000个细胞。
- 在空的35 mm塑料培养皿中加入少量胰蛋白酶-EDTA溶液。
- 使用火焰抛光的玻璃移液管,将尾芽组织从解剖皿转移至含有胰蛋白酶/EDTA的培养皿中。在室温下孵育20分钟。
- 在组织于胰蛋白酶中孵育的同时,从玻璃底成像皿中移除纤维连接蛋白1(Fibronectin1)溶液。
- 用MilliQ水清洗玻璃表面3次。每次清洗后用抽吸法去除液体,并确保培养皿完全干燥。
- 将尾芽组织在成像用培养基中分散。
- 向成像皿中加入100 μL含血清的L15培养基。
- 使用包被过的凝胶吸头,尽可能以最小体积将尾芽组织从胰蛋白酶/EDTA溶液中取出。
- 将尾芽组织移入成像皿的培养基中。反复吹打数次以将其分散成单细胞悬液。注意避免引入气泡。在显微镜下检查是否存在细胞团块,并根据需要进一步分散。
- 将细胞悬液在室温下静置20分钟,使分散的细胞沉降到Fibronectin1包被的玻璃表面。
- 开始成像前,向细胞中加入少量额外的含血清L15培养基。操作时注意不要扰动已贴壁的细胞。
- 根据具体的实验问题,向培养体系中添加所需的补充剂或药物处理。
3. 分散的体节前体细胞成像
- 在延时成像显微镜的温控腔内设置成像培养皿。将Warner腔体调节至实验所需的温度。在开始图像采集前,让培养皿至少平衡30分钟。如有需要,使用插入培养皿中的外部温度探头核对温度。注意:由于温度与体节发生速率之间存在关联21,因此稳定的温度控制对于准确测量单个PSM细胞的周期至关重要。
- 在荧光通道中采集测试图像,以确认曝光时间和增益设置能够在无信号饱和的情况下提供较大的强度动态范围,从而确保良好的信噪比。使用本方案从本实验室细胞系获得的分散细胞进行成像时,典型的荧光图像采集参数为:EMCCD相机在EM增益85条件下,曝光400毫秒;透射光图像曝光40毫秒。此外,相机的前置放大增益和读出速度也对最大化信噪比至关重要。
- 利用透射光通道,选择用于延时成像的细胞视野。
- 运行所需时长的延时成像采集程序。
- 对每个视野采集一幅透射光图像和一幅荧光图像。注意:设置合适的图像采集间隔,以捕捉时间动态变化,同时避免长时间成像过程中发生光漂白或细胞毒性。本方案采用2分钟的采集间隔。
- 在记录过程中定期检查延时成像系统的设置,确保细胞始终处于焦点位置,且无软件或硬件错误等情况发生。
4. 获取的延时成像电影的图像处理
- 在图像处理软件中打开已获取视野的视频文件。注:本方案中所有处理均使用Fiji完成。
- 将同一视野中的透射光和荧光图像帧分离,生成两组图像堆栈。
- 在透射光通道中追踪单个细胞。
- 在透射光通道的第一帧中,围绕选定细胞绘制一个圆形感兴趣区域(ROI)。注:仅追踪满足以下条件的细胞:1. 在记录结束时仍保持健康状态;2. 未移出视野范围;3. 未与其他细胞发生接触。
- 每隔若干帧保存一次ROI至ROI管理器,持续追踪该细胞直至最后一帧。
- 利用已保存的ROI在荧光通道中测量荧光强度。
- 选择荧光图像堆栈,并结合已保存的ROI,使用自定义圆形插值插件及宏程序,测量目标细胞随时间变化的荧光强度。
- 检查宏程序输出的荧光强度曲线。若该曲线能合理反映荧光时间序列图像的动态特征,则将数据导出至Excel工作表。
- 保存该细胞的ROI列表。
- 对同一视野中的其他细胞重复进行透射光通道的追踪和荧光通道的强度测量。
- 对实验中其他视野重复执行所有步骤。
结果
本方案可制备具有活性、分散的单个体节前体细胞(PSM)培养物,用于荧光信号的延时成像(图2)。我们的转基因构建体表达一种报告基因,其合成与降解的周期在胚胎中与内源基因及蛋白的动力学相似,周期约为半小时。由于该报告蛋白周转迅速,应在单细胞水平快速检测YFP信号,以尽量减少光漂白,并以高时间分辨率捕捉每个振荡周期的特征。此外,鉴于信号相对微弱,已对细胞培养和图像采集条件进行了精细优化,以确保结果的灵敏性和稳定性。我们发现以下因素对于获得适用于成像的优质PSM细胞培养至关重要:1. 使用细胞外基质(ECM)作为包被材料涂布玻璃底培养皿。2. 在解剖和成像培养基中添加血清。3. 从已知基因型的杂合子配对交配后获得的胚胎中解剖获取PSM组织,其后代可能携带两份转基因拷贝。4. 在合适的放大倍数范围内进行图像采集,使用高数值孔径(NA)物镜以高效捕获荧光信号。5. 采用固态光源照明,以最大限度减少可能引起背景噪声的光强波动。6. 使用高灵敏度的EM-CCD相机进行信号检测,以最大化信号读出效率。
次优培养条件下,细胞在记录过程中无法保持圆形且健康的状态。我们推测,与常用的其他基质(如多聚赖氨酸或层粘连蛋白)相比,我们所使用的细胞外基质(ECM)基质——斑马鱼fibronectin1的一个片段——能够使细胞维持在未分化的、类似体节前体中胚层(PSM)的状态。我们测试的其他基质会导致细胞在玻璃表面变扁平,并在记录过程中逐渐失去振荡性荧光信号。我们还发现,在解剖、分散和记录过程中向培养基中添加血清不仅有助于中和用于解离的胰蛋白酶,还能提高背景之上的荧光强度,这可能是由于细胞活力得到改善。为了确保从单个细胞中获得最佳信号,我们使用了专为荧光成像设计的40倍物镜(Zeiss Plan NeoFluor系列),其具有高数值孔径(NA)。此外,我们发现固态光源比传统的汞灯提供更稳定的照明,这对于最大限度减少导致图像噪声的背景波动至关重要。这些改进对于确保实验结果的可靠性非常重要。
采用本方案,我们预期在记录期间,给定视野中的大多数细胞在某一时刻会呈现荧光。我们发现,荧光细胞通常保持圆形,且在记录过程中有时表现出较强的运动性。部分细胞(包括荧光细胞)在记录期间可能发生凋亡,这些细胞将被排除在所有分析之外。此外,我们也会排除与其他细胞接触或移出视野范围的细胞。平均而言,通过明场通道计数健康细胞数量,10小时记录结束时,每个视野的细胞数量减少约12%。这种减少包括细胞死亡以及移出视野的细胞。考虑到上述因素,我们平均每个视野可追踪到5个保持存活且可见的荧光细胞,通常每种条件记录6个视野。例如,一个包含4种条件的实验将总共获得24个视野,每种条件通常可追踪约30个细胞。在含有10%胎牛血清的L15培养基的标准成像条件下,我们发现PSM细胞(来自4次独立实验重复的n=101个细胞)可产生2至7个峰,平均值和标准差为3±1个峰(即2-3个周期)。峰数的中位数以及第25百分位数均为2个峰,第75百分位数为3个峰。利用我们的半自动化追踪与分析方法,可快速生成单个PSM细胞随时间变化的荧光强度轨迹,代表性细胞轨迹如图2C所示。这些原始轨迹可用于对振荡性PSM细胞的特性进行定量测量,例如频率、振幅、周期数以及峰出现的时间。
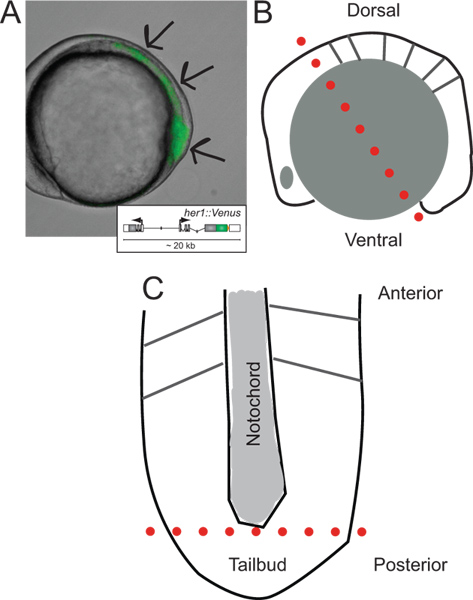
图1. 转基因胚胎的鉴定及其解剖示意图 (A) 转基因斑马鱼胚胎在约5体节阶段的侧视图,表达YFP荧光。图像为透射光与荧光通道的叠加。箭头指示信号起始于尾芽尖端,沿体节形成区(PSM)延伸至最新形成的体节。插图为报告基因转基因的示意图(有关其构建与开发的更多信息,请参见 体内 行为请参考 Soroldoni 等.30. (B) 胚胎解剖首次切割前的侧视示意图。红色虚线表示穿过后脑并延伸至尾芽后方卵黄细胞的第一次切割位置。 (C) 去除卵黄颗粒和表皮层后,体节中胚层(PSM)沿其前后轴展平的示意图。红色虚线表示为分散和培养而切除尾芽尖端的第二次切割位置。 请点击此处以查看此图的放大版本。
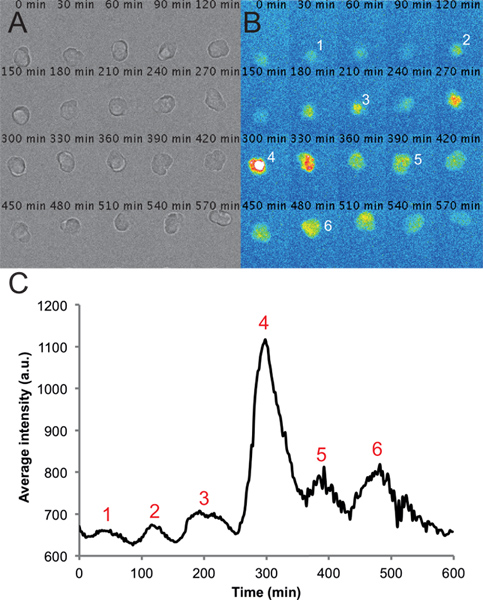
图 2. 分散的体节前体中单个细胞的代表性图像及信号轨迹。 (A) 单个体节前体细胞在6小时延时记录中的透射光图像拼接图。请注意,该细胞在整个记录过程中保持圆形且状态健康。(B) 同一细胞对应的荧光图像拼接图。细胞荧光强度的峰值在记录过程中被依次编号。(C) 对该细胞上划定的兴趣区域(ROI)随时间变化的平均荧光强度测量结果。数据来源于一段每2分钟采集一帧的延时影片,使用Fiji软件中的圆插值插件及自定义宏进行分析。轨迹图中荧光强度的峰值同样被依次编号。请点击此处查看该图的高清版本。
讨论
为了研究在胚胎发育过程中发生的细胞过程,生物学家通常采用在完整胚胎背景下进行研究的方法。然而,为了全面理解单个细胞在发育时间框架内的行为,建立一种在分离条件下观察和干预单个细胞的方法也具有重要意义。通过利用转基因斑马鱼胚胎建立分散的体节中胚层(PSM)细胞培养体系,我们现在拥有一种工具,能够以定量的方式直接研究体节时钟中基因振荡的细胞自主特性。该方法使得我们能够在多种条件下,对数百个细胞中荧光报告基因的振荡动态进行测量。
培养中单个细胞的振荡周期比完整胚胎中的体节形成周期更长。我们观察到,完整的体节极化区(PSM)外植体在培养中也表现出比完整胚胎更慢的振荡(数据未显示),这表明分离的单细胞中观察到的较长周期并非仅仅由分散过程造成的损伤所致。在大多数单细胞时间序列中,我们观察到周期和振幅存在变异。这种变异的来源尚不清楚,但可能揭示有关体节分割钟起搏回路的重要细节。
利用该方法,我们可以在细胞水平上研究体节形成的遗传组分,并解决在整体胚胎中难以探究的问题。例如,通过向培养体系中可控地添加发育胚胎中存在的已知信号分子,我们可以在稳健且可重复的实验体系中检测这些分子对单个体节极化区(PSM)细胞振荡器的影响。我们的体节极化区(PSM)培养系统为严格评估哪些因子单独或联合作用可促进这些细胞中的振荡、哪些因子抑制此类振荡,以及检验这些分子之间的相互作用提供了可能。借助这些工具,我们的目标是验证基于已发表的组织水平数据提出的体节发生现有模型,同时利用单细胞实验结果生成可在整体胚胎中进行检验的预测。
据我们所知,这是首个用于单细胞荧光急性延时成像的斑马鱼原代细胞培养方案;该方案无疑仍有进一步发展与优化的空间。其他方案通常利用斑马鱼胚胎建立稳定细胞系,经转染报告基因后用于长期成像。 27-29虽然稳定细胞系适用于对不受发育时间限制的过程(如生物钟)进行成像,但针对胚胎体节形成这一问题的研究则需要在细胞仍处于振荡的前体细胞状态时立即进行成像。一旦细胞停止振荡,便会进入分化状态,并在组织中被整合进体节。有可能在特定因子或多种因子存在的条件下 体外 我们能够生成类似PSM的斑马鱼细胞系,这些细胞系将保持振荡特性,从而实现更长期的观察、连续多次的干扰实验或高通量筛选。
我们预期,这种用于延时成像的分散细胞原代培养制备方法,非常适用于研究那些在发育时间尺度内发生、但无法通过稳定的斑马鱼细胞系来研究的任何细胞过程。通过显微解剖或胚胎解离后经荧光激活细胞分选(FACS)技术,从合适的转基因报告基因品系中分离特定发育阶段的特定细胞类型,可获得起始细胞。根据细胞的胚胎来源,可能需要对培养条件进行一定的优化。通过将这一灵活且灵敏的实验方案与日益增长的转基因斑马鱼品系资源相结合,我们希望促进对 体外 一种与经典遗传学和胚胎学方法相辅相成的发育生物学研究途径。
披露
作者贡献:
ABW 开发并优化了细胞分散、培养、成像及细胞追踪的实验方案。DS 构建了转基因品系,并指导了本方案中所用延时荧光显微镜的设计。AO 率先开展了初步的概念验证实验,实现了体外培养中 PSM 细胞的解离与成像。JS 编写了 Fiji 中用于从延时成像视频测量荧光强度的圆插值器插件工具。ABW 和 ACO 撰写了论文。
致谢
本工作得到了欧洲分子生物学组织(EMBO)长期博士后奖学金(ABW)、美国国家科学基金会国际博士后研究奖学金(ABW)、马克斯·普朗克学会(ABW, DS, JS, ACO)、DIGS-BB奖学金(AO)以及欧洲研究理事会欧洲共同体第七框架计划(STG-207634,DS, ACO)的资助。我们感谢Ravi Desai对本文稿提出的宝贵意见。同时,我们还要感谢马克斯·普朗克分子细胞生物学与遗传学研究所(MPI-CBG)蛋白质表达平台为我们提供斑马鱼纤连蛋白1片段,感谢MPI-CBG鱼类养殖平台工作人员对鱼类品系的护理与维护,以及感谢MPI-CBG光学显微镜平台提供的成像支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 落射荧光显微镜 | Olympus | 型号:SZX16 | |
| 落射荧光显微镜 | X-cite 照明系统 | 系列:120Q | |
| 解剖显微镜 | Olympus | 型号:SZX12 | |
| 55号精细镊子 | Fine Science Tools | 11295-51 | |
| 玻璃转移移液管 | Assistent | 567/2 | |
| 35 mm 塑料培养皿 | Greiner | 627102 | |
| 60 mm 塑料培养皿 | Greiner | 628102 | |
| Sylgard 聚合物 | SASCO | 266727 | |
| 操作工具 | 自制 | 操作工具的描述参见文献22 | |
| 显微外科刀 | World Precision Instruments | 500249 | |
| L15 培养基 | Invitrogen | 57322 | |
| 青霉素/链霉素 | PAA | P11-010 | |
| 胎牛血清 | Invitrogen | 257322 | |
| 0.05% 胰蛋白酶 / 0.02% EDTA | PAA | L11-004 | |
| 凝胶加样吸头 | Fisher Scientific | 253188 | |
| Sigmacote | Sigma Aldrich | 254589 | |
| 微量移液器套装 | Gilson International | F167300 | |
| 斑马鱼纤连蛋白1 70 kD 片段 | MPI-CBG 蛋白制备中心 | 基于已发表文献构建的质粒在本实验室制备,参见文献23-25 | |
| 玻璃底成像培养皿 | Mattek(单孔) | P35G-1.5-14-C | |
| 玻璃底成像培养皿 | Greiner(CellView 多孔) | 262502 | |
| 不含亚甲蓝的E3培养基 | 自制 | 来自《斑马鱼手册》第5版,参见文献26 | |
| 塑料转移移液管 | Ratiolab | 260011 | |
| Warner加热/冷却腔室 | Warner Instruments | TC-324B/344B | |
| EM-CCD相机 | Andor | 型号:iXOn 888 | |
| 配备Venus滤光片组的宽场荧光显微镜 | Zeiss | 型号:Axiovert 200M | |
| 配备Venus滤光片组的宽场荧光显微镜 | NeoFluor 40x,NA 0.75 | ||
| 配备Venus滤光片组的宽场荧光显微镜 | Lumencor Light Engine | 型号:Spectra X | |
| 配备Venus滤光片组的宽场荧光显微镜 | BrightLine HC 575/15 | F39-575 |
参考文献
- Cooke, J., Zeeman, E. C. A clock and wavefront model for control of the number of repeated structures during animal morphogenesis. J Theor Biol. 58, 455-476 (1976).
- Oates, A. C., Morelli, L. G., Ares, S. Patterning embryos with oscillations: structure, function and dynamics of the vertebrate segmentation clock. Development. 139, 625-639 (2012).
- Dequeant, M. L., Pourquie, O. Segmental patterning of the vertebrate embryonic axis. Nat Rev Genet. 9, 370-382 (2008).
- Oates, A. C., Gorfinkiel, N., Gonzalez-Gaitan, M., Heisenberg, C. P. Quantitative approaches in developmental biology. Nat Rev Genet. 10, 517-530 (2009).
- Oates, A. C., Ho, R. K. Hairy/E(spl)-related (Her) genes are central components of the segmentation oscillator and display redundancy with the Delta/Notch signaling pathway in the formation of anterior segmental boundaries in the zebrafish. Development. 129, 2929-2946 (2002).
- Lewis, J. Autoinhibition with transcriptional delay: a simple mechanism for the zebrafish somitogenesis oscillator. Curr Biol. 13, 1398-1408 (2003).
- Schroter, C., Oates, A. C. Segment Number and Axial Identity in a Segmentation Clock Period Mutant. Curr Biol. 20, 1254-1258 (2010).
- Riedel-Kruse, I. H., Muller, C., Oates, A. C. Synchrony dynamics during initiation, failure, and rescue of the segmentation clock. Science. 317, 1911-1915 (2007).
- Ozbudak, E. M., Lewis, J. Notch signalling synchronizes the zebrafish segmentation clock but is not needed to create somite boundaries. PLoS Genet. 4, e15(2008).
- Herrgen, L., et al. Intercellular Coupling Regulates the Period of the Segmentation Clock. Curr Biol. 20, 1244-1253 (2010).
- Sawada, A., et al. Fgf/MAPK signalling is a crucial positional cue in somite boundary formation. Development. 128, 4873-4880 (2001).
- Giudicelli, F., Ozbudak, E. M., Wright, G. J., Lewis, J. Setting the tempo in development: an investigation of the zebrafish somite clock mechanism. PLoS Biol. 5, e150(2007).
- Herrgen, L., Schroter, C., Bajard, L., Oates, A. C. Multiple embryo time-lapse imaging of zebrafish development. Methods Mol Biol. 546, 243-254 (2009).
- Hirata, H., et al. Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 298, 840-843 (2002).
- Maroto, M., Dale, J. K., Dequeant, M. L., Petit, A. C., Pourquie, O. Synchronised cycling gene oscillations in presomitic mesoderm cells require cell-cell contact. Int J Dev Biol. 49, 309-315 (2005).
- Reppert, S. M., Weaver, D. R. Coordination of circadian timing in mammals. Nature. 418, 935-941 (2002).
- Welsh, D. K., Imaizumi, T., Kay, S. A. Real-time reporting of circadian-regulated gene expression by luciferase imaging in plants and mammalian cells. Methods Enzymol. 393, 269-288 (2005).
- Soroldoni, D., Oates, A. C. Live transgenic reporters of the vertebrate embryo's Segmentation Clock. Curr Opin Genet Dev. 21, 600-605 (2011).
- Masamizu, Y., et al. Real-time imaging of the somite segmentation clock: revelation of unstable oscillators in the individual presomitic mesoderm cells. Proc Natl Acad Sci USA. 103, 1313-1318 (2006).
- Soroldoni, D., Hogan, B. M., Oates, A. C. Simple and efficient transgenesis with meganuclease constructs in zebrafish. Methods in molecular biology. 546, 117-130 (2009).
- Schroter, C., et al. Dynamics of zebrafish somitogenesis. Dev Dyn. 237, 545-553 (2008).
- Picker, A., Roellig, D., Pourquie, O., Oates, A. C., Brand, M. Tissue micromanipulation in zebrafish embryos. Methods in molecular biology. 546, 153-172 (2009).
- Mould, A. P., et al. Identification of multiple integrin beta1 homologs in zebrafish (Danio rerio). BMC Cell Biol. 7, 24(2006).
- Mould, A. P., Koper, E. J., Byron, A., Zahn, G., Humphries, M. J. Mapping the ligand-binding pocket of integrin alpha5beta1 using a gain-of-function approach. Biochem J. 424, 179-189 (2009).
- Zhao, Q., Liu, X., Collodi, P. Identification and characterization of a novel fibronectin in zebrafish. Exp Cell Res. 268, 211-219 (2001).
- Westerfield, M. In The zebrafish book : a guide for the laboratory use of zebrafish (Brachydanio rerio). , (1993).
- Vallone, D., Santoriello, C., Gondi, S. B., Foulkes, N. S. Basic protocols for zebrafish cell lines: maintenance and transfection. Methods Mol Biol. 362, 429-441 (2007).
- Carr, A. J., Whitmore, D. Imaging of single light-responsive clock cells reveals fluctuating free-running periods. Nat Cell Biol. 7, 319-321 (2005).
- Whitmore, D., Foulkes, N. S., Sassone-Corsi, P. Light acts directly on organs and cells in culture to set the vertebrate circadian clock. Nature. 404, 87-91 (2000).
- Soroldoni, D., et al. A Doppler effect in embryonic pattern formation. Science. 345, DOI. 222-225 (1126).
重印与许可
