我们介绍一种可重复的小鼠胰腺腺泡细胞制备方法,用于在生理和病理相关刺激下检测腺泡细胞的钙信号及细胞损伤。同时提供了一种对这些细胞进行腺病毒转染的方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
胰腺腺泡细胞是外分泌胰腺的主要实质细胞,主要负责将胰酶分泌至胰管中,同时也是胰腺炎起始发生的部位。本文描述了如何从完整的胰腺组织中分离腺泡细胞,并检测细胞内钙信号的方法。此外,还介绍了利用腺病毒载体转染这些细胞的技术,以及在诱导腺泡细胞损伤的条件下, subsequently 测定乳酸脱氢酶泄漏量(细胞损伤标志物)的方法。 体外这些技术为表征腺泡细胞的生理学和病理学提供了强有力的工具。
引言
细胞质钙离子的动态变化对于腺泡细胞的生理和病理事件均至关重要。钙信号在空间和时间上的不同模式被认为是导致这些不同生物学效应的原因。 1例如,腺泡细胞的酶和液体分泌与分泌发生区域——顶极局部区域的钙振荡密切相关 2相比之下,伴随强烈非振荡性钙信号的全局性钙波与导致急性胰腺炎的早期病理事件相关 3,4这些包括腺泡内蛋白酶的激活、酶分泌减少以及腺泡细胞损伤。我们的实验室利用分离的胰腺腺泡来研究这些导致疾病的早期病理事件 体内 和 体外 5-7. 本文所述方法用于分离原代腺泡细胞,以检测细胞质钙离子水平和细胞损伤。同时提供了一种针对这些细胞的腺病毒感染方法。
访问受限。请登录或开始试用以查看此内容。
方案
1. 钙成像用胰腺腺泡细胞的制备
- 配制含有 20 mM HEPES、95 mM NaCl、4.7 mM KCl、0.6 mM MgCl2、1.3 mM CaCl2、10 mM 葡萄糖、2 mM 谷氨酰胺和 1 × 最低必需培养基非必需氨基酸的 HEPES 孵育缓冲液。用 NaOH 将最终溶液调节至 pH 7.4。
- 向 25 ml 上述 HEPES 孵育缓冲液中加入牛血清白蛋白(BSA),使其终浓度为 1%(w/v),配制 BSA 孵育缓冲液。
- 向 6 ml 上述 BSA 孵育缓冲液中加入 1.1 mg/ml(200 单位/ml)IV 型胶原酶和 1 mg/ml 大豆胰蛋白酶抑制剂,配制胶原酶消化缓冲液。
- 将 22×22 mm 盖玻片浸入两份 HNO3 与一份 HCl 的混合液中酸洗 2 小时,然后用去离子水倾倒清洗,并保存于 70% 乙醇中。
- 通过 CO2 窒息法处死一只小鼠。将动物置于仰卧位,用 70% 乙醇清洁腹部表面。进行剖腹手术以暴露腹腔,解剖取出胰腺,并立即在含有 6 ml 胶原酶消化缓冲液的小称量皿中冲洗。
- 去除所有大块脂肪组织和可见血管,然后移除 5 ml 胶原酶消化缓冲液并将其加回 15 ml 圆锥形离心管中。
- 使用精细解剖剪在含有 1 ml 胶原酶消化缓冲液的小称量皿中将胰腺剪碎,直至溶液呈现均匀分散状态。
- 将剪碎的组织转移至 125 ml 锥形塑料烧瓶中,并将剩余的 5 ml 胶原酶消化缓冲液加入容器中。确保组织完全浸没于缓冲液中。
- 将烧瓶置于 37 °C 水浴中,以 90 rpm 振荡 30 分钟。在此短暂等待期间,准备钙激活激动剂(例如 蓝色肽、卡巴胆碱),并用去离子水冲洗经酸洗的 22×22 mm 盖玻片。干燥后将其放置在铺有实验室膜的平坦表面上。
- 30 分钟消化完成后,将悬液转移回 15 ml 圆锥形离心管中,让细胞自然沉降。小心吸除胶原酶消化缓冲液,并替换为 6 ml BSA 孵育缓冲液。手动剧烈振荡离心管 10 秒,以使细胞分散成更小的细胞簇。振荡后立即去除未沉降液体中任何较大的漂浮碎片。
- 让剩余细胞沉降,并更换为新鲜的 BSA 孵育缓冲液。
- 重复步骤 1.11 两次,直至悬液中仅含有肉眼勉强可见的小细胞簇。细胞形态应类似于 图 1A(上排)所示。
- 移除 BSA 孵育缓冲液,并替换为 HEPES 孵育缓冲液。
- 用 10% DMSO 配制 750 μM 的 Fluo-4AM 储存液(100×)。
- 对含有细胞悬液和无 BSA 的 HEPES 孵育缓冲液的 15 ml 圆锥形离心管中的细胞进行染料加载:向细胞悬液中加入适当体积的储存液(1:100 稀释)。然后将 500 μl 该悬液接种到每张 22×22 mm 盖玻片上。
- 将盖玻片避光保存于室温。染料加载 30 分钟后进行首次 Ca2+ 测量。灌流开始时染料会自动从培养基中去除,灌流应在染料加载后 30 分钟进行。
2. 胰腺腺泡细胞中钙离子的检测
- 用去离子水冲洗每套灌流装置,并加入适量缓冲液或激动剂。用缓冲液或激动剂预充每支注射器,以确保液体流动顺畅。将注射器夹固在铁架台上,高度约为显微镜载物台上方30–60厘米。
- 使用精细镊子小心夹住载有细胞悬液的盖玻片边缘,将盖玻片倾斜 45°,让多余的缓冲液流尽。将盖玻片置于橡胶垫圈上方,细胞面朝上,然后组装反应室(图2A和图2B).
- 将灌流室固定在载物台上,并将装有缓冲液的管路插入灌流室的第一个入口(图2C)。打开装有缓冲液的注射器,使缓冲液流经盖玻片的整个表面。当缓冲液到达腔室的另一端时,将真空管插入真空入口。插入其他任何导管(含有激动剂、抑制剂、 等等。) 沿着腔室将其置于相应位置。
- 使用200倍或400倍、数值孔径为1.4的物镜,结合氩离子激光器在488 nm波长下激发Fluo-4AM染料,对细胞进行成像图1A,底部)。应调整激光的功率设置,以确保光电倍增管(PMT)不被发射光饱和。此外,需优化PMT两端的电压,以实现最大光信号检测。
- 长通发射信号 > 515 nm 的信号以每帧 2-5 秒的速度采集,用于观察缓慢的振荡模式,或以每帧 0.2-0.3 秒的速度采集,用于观察较快的全细胞钙波。图3和图4).
- 成像完成后,关闭注射器并移除所有管路。拆卸腔室,重复步骤 2.2–2.4。
- 以荧光强度随时间变化的数值形式收集数据,并导入 Image J(由美国国立卫生研究院提供的免费软件包,可于 http://rsb.info.nih.gov/ij/).
- 实时观察细胞图像并识别感兴趣区域(ROIs; 即 顶端,基底外侧,细胞核 等等。)
- 获取这些 ROI 的荧光强度,并表示为荧光强度/基线荧光强度(即 F/F0
- 通过绘制 F/F 生成轨迹图0 与时间的关系。除了描记图外,通常还提供代表性图像,并使用伪彩色显示。
3. 细胞损伤检测用胰腺腺泡细胞的制备
- 将不含酚红的 DMEM F-12 培养基预热至 37 °C。
- 向 DMEM F-12 培养基中加入 BSA(终浓度 0.1% w/v)和 HCl(终浓度 50 μM)。
- 将 50 ml DMEM 分装至一个锥形管中。
- 在 10 ml 添加了补充物的 DMEM F-12 培养基中加入 IV 型胶原酶,使其终浓度为 0.5 mg/ml(12 U/ml),配制胶原酶缓冲液。
- 通过 CO2 窒息法处死一只小鼠。将动物置于仰卧位,用 70% 乙醇清洁腹部表面。进行剖腹手术以暴露腹腔,解剖取出胰腺,并立即在含有 6 ml 胶原酶缓冲液的小型称量皿中冲洗。
- 使用精细解剖剪将组织剪碎 3–5 分钟,直至溶液呈现均匀分散状态。
- 将剪碎的组织转移至 125 ml 锥形烧瓶中,加入 5 ml 新鲜胶原酶缓冲液,然后置于 37 °C 水浴中,以 90 rpm 振荡 5 分钟。
- 从振荡器中取出,让细胞短暂沉降,弃去上清并更换为 5 ml 新鲜胶原酶缓冲液。随后在 37 °C 水浴中继续以 90 rpm 振荡孵育 35 分钟。
- 用移液管剧烈吹打消化产物,直至悬液呈现均一且无明显细胞团块。然后轻轻将细胞悬液通过预先润湿的尼龙筛网转移至锥形烧瓶中。
- 再用 3 ml 新鲜 DMEM F-12 培养基(含胶原酶)通过筛网吹打,以确保所有残留细胞均被洗出。
- 加入另外 6–10 ml DMEM F-12 培养基,让细胞沉降 2–3 分钟。重复此步骤两次,最后一次洗涤后弃去上清液。
- 加入新鲜 DMEM F-12 培养基重悬细胞,并将 500 μl 细胞悬液接种至 48 孔组织培养板的每个孔中。细胞形态应类似于图 1B所示。
- 在加入激动剂前,将培养板置于 37 °C 水浴中,以 90 rpm 振荡 5 分钟。
- 用不同激动剂刺激细胞 2–4 小时。
- 将培养板倾斜一定角度,使细胞沉降,小心吸取一定量培养基(通常为 100 μl),并在液氮中快速冷冻。
- 将剩余的细胞悬液也进行快速冷冻。对于 LDH 检测,快速冷冻并非必需;若样品当天检测,可将其置于冰上保存,或长期储存于 -20 °C。
4. 检测乳酸脱氢酶泄漏
- 主要使用 Promega CytoTox 96 非放射性细胞毒性检测试剂盒(见特定试剂和材料表)中提供的试剂和说明测定乳酸脱氢酶(LDH)的释放量。
- 用 12 ml 检测缓冲液(试剂盒中提供)重悬试剂盒中的 LDH 底物。
- 在室温水浴中解冻冷冻的细胞悬液和培养基样品。
- 将每种培养基样品各 50 μl 加入 96 孔板中。
- 向细胞悬液中加入适量体积的 10X 裂解缓冲液,使终浓度为 1X。短暂涡旋混匀,并在 37 °C 下孵育 60 分钟。
- 将裂解后的样品在 250 × g 下离心 4 分钟,以沉淀细胞碎片。
- 对于细胞裂解物,将 1:10 稀释的样品各 50 μl 加入 96 孔板的每个孔中。
- 向每个孔中加入 50 μl 重悬后的底物,在室温避光条件下孵育 30 分钟。
- 通过向每个孔中加入 50 μl 终止液(试剂盒中提供)来终止反应。
- 在 490 nm 处测定吸光度。
- 使用以下公式计算 LDH 释放百分比。以下光密度值已通过减去仅含 PBS、底物和终止液的空白孔的 OD 值进行校正。
培养基中的LDH =(培养基在492 nm处的吸光度)×(培养基稀释倍数)×(培养基体积)*由于通常无需稀释培养基样品,稀释倍数通常等于1。
总LDH = ((裂解液OD490)×(裂解液稀释倍数)×(细胞悬液中的体积))+ ((培养基OD490)×(稀释倍数)×(取样时分装的培养基体积))
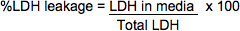
5. 用腺病毒感染胰腺腺泡细胞
- 按照第3节所述方法制备胰腺腺泡细胞。
- 完成步骤3.12后,向细胞悬液中加入107感染单位(IFUs)的腺病毒,并在37 °C下孵育30分钟。
- 将2 ml细胞悬液均匀接种至6孔板中。
- 对于大多数表达载体,细胞在18小时内应已充分感染;而对于某些荧光素酶载体,仅需6小时即可。
访问受限。请登录或开始试用以查看此内容。
结果
在图3中展示了腺泡细胞在生理刺激下钙离子浓度变化的测量示例。腺泡细胞负载了钙离子荧光染料Fluo-4,并灌注乙酰胆碱类似物卡巴胆碱(CCh;1 μM)8。细胞产生钙波作为响应,该钙波起始于顶区,并向基底外侧区传播3,9。图3B中所示的代表性记录曲线显示了使用1 μM卡巴胆碱时常见的峰-平台型响应模式。相反,使用亚最大浓度的胆囊收缩素类似物雨蛙素(10 pM)则产生振荡型钙响应(图4)10。
在胰腺炎诱导性激动剂作用下,腺泡细胞乳酸脱氢酶(LDH)的泄漏情况如图5所示。本研究显示,在存在雨蛙素(caerulein)、卡巴胆碱(carbachol)或胆汁酸牛磺石胆酸-3-硫酸盐(TLCS)的情况下,LDH的泄漏量呈浓度依赖性增加。诱导LDH最大泄漏所需的浓度与诱导腺泡内蛋白酶活化及病理性钙信号所需的浓度一致,提示这些事件可能导致细胞损伤。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述的细胞分离方法及后续实验是研究外分泌胰腺生理与病理生理特征的有力工具。分散胰腺腺泡细胞的分离方法最早由 Amsterdam 和 Jamieson 于 1972 年描述11。本文所采用的方法是在 Van Acker 及其同事近期描述的细胞分离技术基础上改进而来12。尽管这些技术具有高度可重复性且易于掌握,但每种方法中均存在若干关键步骤,必须精确执行。充分理解这些技术细节将有助于更便捷地排除故障并提升实验效果。
在为钙离子检测准备细胞时,我们发现来自较年轻啮齿类动物的胰腺能获得更一致的结果。腺泡分布更为均匀,可能是因为其中含有的纤维脂肪组织较少。对于 Ca2+ 检测,我们制备较小的腺泡,以实现最佳的单细胞成像。这需要比乳酸脱氢酶(LDH)检测更高的胶原酶浓度(1.1 mg/ml 或 200 U/ml)。而对于 LDH 检测,我们制备较大的腺泡,因为该方法在基础状态下造成的损伤更小。因此,其制备过程中使用的胶原酶浓度较低(0.5 mg/ml 或 91 U/ml)。
访问受限。请登录或开始试用以查看此内容。
致谢
本工作由美国国立卫生研究院资助项目 DK083327 和 DK093491(资助对象:S.Z.H.)支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 小鼠 | 美国国家癌症研究所 | N/A | 雄性,20-30克;几乎任何品系均可获得可比结果。 |
| HEPES | American Bioanalytical | AB00892 | |
| 氯化钠 | J.T. Baker | 3624-05 | |
| 氯化钾 | J.T. Baker | 3040-01 | |
| 氯化镁 | Sigma | M-8266 | |
| 氯化钙 | Fischer | C79 | |
| 葡萄糖 | J.T. Baker | 1916-01 | |
| L-谷氨酰胺 | Sigma | G-8540 | |
| 1X 最小必需培养基非必需氨基酸混合液 | Gibco | 11140-050 | |
| 氢氧化钠 | 电子显微镜 | SX0593 | |
| 牛血清白蛋白 | Sigma | A7906 | |
| 胶原酶 | 沃辛顿 | 4188 | |
| 大豆胰蛋白酶抑制剂 | Sigma | T-9003 | |
| 二氧化碳 | Matheson Gas | 124-38-9 | |
| 125 ml 锥形塑料烧瓶 | Crystalgen | 26-0005 | |
| 解剖工具包 | 精细科学工具 | 14161-10 | |
| 70% 乙醇 | LabChem | LC222102 | |
| P1000、P100、P10 移液器 | Gilson | FA10005P | |
| 称量纸 | Heathrow Scientific | HS1420A | |
| 塑料移液管 | USA Scientific | 1020-2500 | |
| 15 ml 离心管 | BD Falcon | 352095 | |
| 50 ml 锥形管 | BD Falcon | 352070 | |
| 1.5 ml 微量离心管 | Fisher | 05-408-129 | |
| 0.65 ml 微型离心管 | VWR | 20170-293 | |
| 22 x 22 mm 玻璃盖玻片 | Fisher | 032811-9 | |
| 硝酸 | Fischer | A483-212 | |
| 盐酸 | Fischer | A142-212 | |
| 去离子水 | N/A | N/A | |
| 18 x 18 mm 盖玻片 | Fischer | 021510-9 | |
| 实验室用薄膜 | Parafilm | PM-996 | |
| Fluo-4AM | Invitrogen | F14201 | |
| 二甲基亚砜 | Sigma | D2650 | |
| 鲁尔锁 | Becton Dickinson | 932777 | |
| 60 ml 注射器 | BD 生物科学 | DG567805 | |
| 23 ¾ 规格针头 | BD 生物科学 | 9328270 | |
| PE50 管 | Clay Adam | PE50-427411 | |
| 平头螺丝刀 | N/A | N/A | |
| DMEM/F-12,无酚红 | Gibco | 21041-025 | |
| 30.5号针头 | BD生物科学 | 305106 | |
| 5 CC 注射器 | BD 生物科学 | 309603 | |
| 25 ml 锥形瓶 | Fischer | FB50025 | |
| 尼龙网滤器 | Nitex | 03-150/38 | 150 um 孔径 |
| 48孔组织培养板 | Costar | 3548 | |
| 96孔组织培养板 | Costar | 3795 | |
| 6孔组织培养板 | Costar | 3506 | |
| 液氮 | Matheson Gas | 7727-37-9 | |
| 细胞毒性检测试剂盒 | Promega | G1782 | |
| Adeno-GFP | N/A | N/A | J. Williams 惠赠 |
| <强>仪器设备 | |||
| 带夹子的铁架台 | 联合科学 | SET462 | |
| 灌流室 | N/A | N/A | 由耶鲁大学的 S.Z.H 及其同事设计 |
| 真空管线 | Manostat | 72-100-000 | |
| 带振荡器的水浴锅 | 精准科学 | 51220076 | |
| 共聚焦显微镜 | Zeiss | LSM 710 | |
| BioTek Synergy H1 酶标仪 | BioTek | 11-120-534 | |
| 组织培养罩 | Nuaire | NU-425-600 | |
| 组织培养箱 | 赛默飞世尔科技 | 3110 |
参考文献
- Toescu, E. C., Lawrie, A. M., Petersen, O. H., Gallacher, D. V. Spatial and temporal distribution of agonist-evoked cytoplasmic Ca2+ signals in exocrine acinar cells analysed by digital image microscopy. Embo J. 11, 1623-1629 (1992).
- Ito, K., Miyashita, Y., Kasai, H. Micromolar and submicromolar Ca2+ spikes regulating distinct cellular functions in pancreatic acinar cells. Embo J. 16, 242-251 (1997).
- Husain, S. Z., et al. The ryanodine receptor mediates early zymogen activation in pancreatitis. Proc. Natl. Acad. Sci. U.S.A. 102, 14386-14391 (2005).
- Raraty, M., et al. Calcium-dependent enzyme activation and vacuole formation in the apical granular region of pancreatic acinar cells. Proc. Natl. Acad. Sci. U.S.A. 97, 13126-13131 (2000).
- Orabi, A. I., et al. Dantrolene mitigates caerulein-induced pancreatitis in vivo in mice. Am. J. Physiol. Gastrointest. Liver Physiol. 299, G196-G204 (2009).
- Shah, A. U., et al. Protease Activation during in vivo Pancreatitis is Dependent upon Calcineurin Activation. Am. J. Physiol. Gastrointest. Liver Physiol. , (2009).
- Muili, K. A., et al. Pharmacologic and genetic inhibition of calcineurin protects against carbachol-induced pathologic zymogen activation and acinar cell injury. Am. J. Physiol. Gastrointest. Liver Physiol. , (2012).
- Orabi, A. I., et al. Ethanol enhances carbachol-induced protease activation and accelerates Ca2+ waves in isolated rat pancreatic acini. J. Biol. Chem. 286, 14090-14097 (2011).
- Nathanson, M. H., Padfield, P. J., O'Sullivan, A. J., Burgstahler, A. D., Jamieson, J. D. Mechanism of Ca2+ wave propagation in pancreatic acinar cells. J. Biol. Chem. 267, 18118-18121 (1992).
- Reed, A. M., et al. Low extracellular pH induces damage in the pancreatic acinar cell by enhancing calcium signaling. J. Biol. Chem. 286, 1919-1926 (2011).
- Amsterdam, A., Jamieson, J. D. Structural and functional characterization of isolated pancreatic exocrine cells. Proc. Natl. Acad. Sci. U.S.A. 69, 3028-3032 (1972).
- Van Acker, G. J., et al. Tumor progression locus-2 is a critical regulator of pancreatic and lung inflammation during acute pancreatitis. J. Biol. Chem. 282, 22140-22149 (2007).
- Ito, K., Miyashita, Y., Kasai, H. Kinetic control of multiple forms of Ca(2+) spikes by inositol trisphosphate in pancreatic acinar cells. J. Cell Biol. 146, 405-413 (1999).
- Leite, M. F., Burgstahler, A. D., Nathanson, M. H. Ca2+ waves require sequential activation of inositol trisphosphate receptors and ryanodine receptors in pancreatic acini. Gastroenterology. 122, 415-427 (2002).
- Paredes, R. M., Etzler, J. C., Watts, L. T., Zheng, W., Lechleiter, J. D. Chemical calcium indicators. Methods. 46, 143-151 (2008).
- Schild, D., Jung, A., Schultens, H. A. Localization of calcium entry through calcium channels in olfactory receptor neurones using a laser scanning microscope and the calcium indicator dyes Fluo-3 and Fura-Red. Cell Calcium. 15, 341-348 (1994).
- Saluja, A. K., et al. Secretagogue-induced digestive enzyme activation and cell injury in rat pancreatic acini. Am. J. Physiol. 276, 835-842 (1999).
- Husain, S. Z., et al. Ryanodine receptors contribute to bile acid-induced pathological calcium signaling and pancreatitis in mice. Am. J. Physiol. Gastrointest. Liver Physiol. , (2012).
- Gurda, G. T., Guo, L., Lee, S. H., Molkentin, J. D., Williams, J. A. Cholecystokinin activates pancreatic calcineurin-NFAT signaling in vitro and in vivo. Mol. Biol. Cell. 19, 198-206 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
