我们描述了未受精的Xenopus tropicalis卵的收集以及制备停滞于减数分裂II期的卵提取物的方法。该卵提取物可用于纯化微管及与微管相关的RNA。
本文内容
摘要
摘要
许多生物体会将mRNA定位于特定的亚细胞区域,以在空间和时间上精确调控基因表达。最近的研究表明,转录组的大部分mRNA在细胞和胚胎中均定位于非随机的位置。鉴定定位mRNA的一种方法是通过生物化学手段纯化感兴趣的细胞结构,并鉴定所有与其相关的转录本。借助近年来发展的高通量测序技术,现在可以简便地鉴定与特定亚细胞结构相关联的所有RNA。为了便于转录本的鉴定,有必要使用具有完整测序基因组的生物体。一种适用于亚细胞结构生物化学纯化的理想系统是由非洲爪蟾(Xenopus laevis)制备的卵提取物。然而,X. laevis 目前尚未完成全基因组测序,这限制了转录本的鉴定。本文中,我们描述了一种从具有完整测序基因组的近缘物种热带爪蟾(X. tropicalis)制备卵提取物的方法。我们提供了微管聚合、纯化及转录本分离的详细步骤。尽管本文重点介绍了一种用于鉴定微管相关转录本的特定方法,但我们认为该方法可轻松拓展应用于其他亚细胞结构,并将为定位RNA的鉴定提供一种强有力的技术手段。
引言
基因表达的空间和时间控制对所有细胞都至关重要,尤其在早期胚胎图式形成调控中具有重要意义1。基因表达的空间控制通过将mRNA主动定位到细胞或胚胎内的特定位置来实现。在许多体积较大的细胞类型中(例如卵母细胞、胚胎和神经元),mRNA的定位可用于将蛋白质表达限制在编码蛋白发挥作用的部位。由于定位的mRNA能够催化多轮蛋白质合成,因此相较于逐个定位蛋白质分子,定位mRNA是一种更高效的策略。通常情况下,定位的mRNA在其到达目的地之前处于翻译抑制状态,这进一步限制了编码蛋白的分布2。除了大量已有明确记载的通过RNA定位调控胚胎图式形成的案例外,多项研究还报道了某些mRNA会被定位至其所编码蛋白的作用位点。典型例子包括β-actin3和Arp2/34的mRNA被定位至运动性成纤维细胞的前缘,以及多种有丝分裂调控因子的mRNA被定位至减数分裂和有丝分裂纺锤体5-7。
许多经典的局部化mRNA案例最初是通过母体效应突变的遗传筛选发现的,随后被证实编码具有定位特性的RNA。然而,近期的全基因组研究开始为局部化RNA的广泛存在提供了更深入的认识。一项近期研究 原位 杂交筛选在 果蝇 胚胎研究显示,约70%的mRNA具有特异性定位,其中包括许多新发现的定位位点8从小鼠成纤维细胞中分离伪足,鉴定出一组多样化的定位mRNA9. 我们课题组利用生化方法从减数分裂细胞中纯化微管 非洲爪蟾 卵提取物鉴定了数百种与纺锤体共纯化的mRNAs5,7我们的研究显示,大多数定位于微管的mRNA编码的蛋白质在有丝分裂调控中发挥作用,这支持了mRNA会定位于其所编码蛋白质功能位点的观点。此外,通过生化纯化方法在亚细胞组分中检测到mRNA富集的能力,凸显了该方法在鉴定定位性mRNA方面的强大优势。
大多数定位于特定区域的RNA通过细胞骨架(肌动蛋白或微管)进行主动运输,以到达其最终目的地10。为了更深入地了解通过生化方法定位于特定位置的RNA的范围和类型,有必要建立一种能够重现细胞骨架过程的体外系统。研究细胞骨架生物学的首要系统之一是来自非洲爪蟾(Xenopus laevis)未受精卵的卵提取物。X. laevis卵提取物已被使用数十年,用于研究多种细胞骨架过程,极大地促进了我们对调控细胞骨架组装与动态变化的机制及分子的理解11。此外,X. laevis卵提取物适用于大规模纯化微管及其相关蛋白12,13,并且已有多种类型卵提取物制备的成熟方法14-16。然而,在基因组学研究中,使用X. laevis作为模式系统存在若干局限性。
几十年来,Xenopus laevis 非洲爪蟾因其卵母细胞体积大且具有稳定的体外发育能力,一直是发育生物学和细胞生物学研究的有力模型系统17。此外,卵提取物系统的建立使得许多细胞过程可在试管中重现,进一步增强了这种青蛙作为实验模型的价值。然而,Xenopus laevis 的研究受到其基因组序列不完整性的限制,这一问题因其基因组的异源四倍体特性而进展缓慢。相比之下,其近缘物种 Xenopus tropicalis 具有二倍体基因组,并已于2010年完成测序18。尽管 X. tropicalis 在实验操作上不如 X. laevis17 方便,但其已测序的基因组使其成为开展全基因组范围分析的理想模型系统。
在本报告中,我们描述了一种从X. tropicalis19制备减数分裂II期、细胞静止因子阻滞提取物(CSF)的方法。随后,我们介绍了一种从该提取物中纯化微管及其相关RNA的简便方法。这些RNA可利用近年来发展的高通量测序技术转化为适用于测序的文库。文库测序后,可将其序列比对至青蛙基因组,以鉴定在微管样品中相较于总提取物显著富集的特定mRNA。该方法为在全基因组范围内检测微管靶向的mRNA定位提供了强有力的手段。除了能够检测定位的mRNA外,结合高通量测序和已测序的基因组,还有可能发现目前尚未收录于公共数据库注释中的新转录本。
方案
1. X的生成 tropicalis 卵
所有Xenopus tropicalis青蛙均从NASCO订购。我们的青蛙饲养在Aquatic Habitats循环水系统中,水温维持在27 °C。饲养X. tropicalis的水系统有多种选择。有关该青蛙物种的大量通用信息可参见Harland实验室和Grainger实验室的网站(http://tropicalis.berkeley.edu/home/,http://www.faculty.virginia.edu/xtropicalis/)。我们的青蛙饲养用水配方为(每升水含0.4 g Ciclid Lake Salts、0.6 g海水盐、0.625 g NaHCO3,pH 7.0)20。该配方所得水体电导率约为1800 μS,对X. tropicalis而言属于高盐度环境。然而,我们发现青蛙在此环境中生长良好,且卵母细胞质量更佳。其他饲养用水配方可参见上述X. tropicalis常规饲养资源列表。
- 连续三天每天向青蛙注射人绒毛膜促性腺激素(hCG),以刺激其产卵:首先,配制两种浓度的 hCG 溶液。将 10,000 U 的冻干 hCG 粉末溶于 10 ml 无菌去离子 H2O 中,得到终浓度为 1,000 U/ml 的溶液。然后,取 1 ml 浓度为 1,000 U/ml 的 hCG 溶液加入 9 ml H2O 中稀释,得到终浓度为 100 U/ml 的溶液。将两种溶液均于 4 °C 保存。
- 第 1 天,在下午 2:00 至 3:00 之间,准备 4–6 只青蛙进行产卵,每只青蛙在泄殖腔附近的背淋巴囊内注射 0.2 ml 浓度为 100 U/ml 的 hCG 溶液。在随后的两次注射期间让青蛙禁食,可减少产卵时的排泄物量,但此步骤为可选。
- 第 2 天,在下午 2:00 至 3:00 之间,对同一批青蛙每只注射 0.2 ml 浓度为 100 U/ml 的 hCG 溶液。
- 第 3 天,在上午 7:00 至 10:00 之间,对同一批青蛙每只注射 0.2 ml 浓度为 1,000 U/ml 的 hCG 溶液。设置青蛙产卵环境:用 6 夸脱的塑料桶装入新鲜的养殖用水,放入青蛙后置于 25 °C 黑暗环境中。注射后约 4 小时开始产卵,7 小时内完成。青蛙产卵环境的温度应至少维持在 25 °C。
- 在收集卵子前立即配制提取液并准备好所需设备。
20X MMR:100 mM HEPES,pH 7.8;2 mM EDTA,pH 7.8;2 M NaCl;40 mM KCl;20 mM MgCl2;40 mM CaCl2。高压灭菌后室温保存。在制备提取物前,现配 1 L 的 1X MMR 溶液。
10X XB:100 mM HEPES,pH 7.7;10 mM MgCl2;1 mM CaCl2;1 M KCl;500 mM 蔗糖。经高压灭菌后于 4 °C 保存。在制备提取物前现配 1 L 的 1X XB。脱胶溶液:在去离子 H2O 中配制 250 ml 3% 半胱氨酸溶液,并用 10 N NaOH 调节 pH 至 7.8–8.0。在制备提取物前现配。
CSF-XB:取200 ml的1X XB,加入2 ml 0.5 M EGTA(pH 7.7)和200 μl 1 M MgCl2。在准备提取物前立即配制。
CSF-XB+:取50 ml CSF-XB,加入50 μl LPC(亮抑酶肽、抑肽酶和抑肽素各10 mg/ml的DMSO储存液)。再加入50 μl 细胞松弛素D(10 mg/ml溶于DMSO)。在制备提取物前立即配制。
在去离子水 H2O 中配制 0.2% 明胶溶液,微波加热溶解,过滤除菌。室温保存。
准备 2 个 Beckman 2 x ½ 英寸超速离心管。
准备两个15 ml的玻璃圆底离心管,每管中加入0.5 ml H2O,用于缓冲超速离心管。
制备火焰抛光的玻璃巴斯德吸管。将5¾英寸的玻璃吸管尖端折断,以露出较宽的开口,然后用火焰灼烧新暴露的吸管尖端,使其光滑。
- 准备一个 500 ml 玻璃烧杯用于储存卵,将 0.2% 明胶溶液在烧杯内壁旋转晃动,使其均匀涂布。使用后弃去烧杯中的明胶溶液。
- 在第 3 天第三次注射后 6–7 小时,从用于产卵的塑料桶中收集卵。如有需要,可轻轻挤压每只青蛙一次,以获取残留的卵。用新鲜的养殖水清洗卵一次,然后转移至内壁涂有 0.2% 明胶溶液的 500 ml 玻璃烧杯中。
2. 制备热带爪蟾(X. tropicalis)卵的提取物
提取物制备的所有步骤均可在室温下进行,约为 25 °C。在整个洗涤过程中,必须保持卵子完全浸没在液体中,以确保其始终湿润。暴露于空气中可能导致卵子脱离细胞周期阻滞或发生裂解。
- 尽可能倒出大部分饲养水,同时保留足够液体以保持卵湿润。将盛有卵的烧杯倾斜,沿烧杯壁缓慢加入约 300 ml 1X MMR,以尽量减少对卵的物理扰动。让卵沉降后,倒去含有碎屑的上清液。X. tropicalis 卵在此步骤中呈丝状,因此激活卵的去除在去胶膜后进行。共重复三次 1X MMR 洗涤。
- 对卵进行去胶膜处理。尽可能倒去 MMR 溶液,加入一半量的去胶膜液。持续轻轻旋转约 5 分钟。数分钟后可在上清液中观察到溶解的胶膜。倒去溶液后加入剩余的去胶膜液。继续持续轻轻旋转,直至卵紧密聚集,且全部以植物极(具白色色素的一极)朝向培养皿底部。尽快尽可能多地倒去去胶膜液。一旦卵完成去胶膜,其对机械操作极为敏感。
- 小心向卵中加入 XB 溶液。在第一次 XB 洗涤时,通过移除已裂解、肿胀、发白及出现假性卵裂的卵,去除已逃逸 CSF 阻滞的卵。激活的 X. tropicalis 卵倾向于聚集在液面中央上方,因此使用塑料移液管将其吸出。同时移除皮肤碎片和蛙类排泄物。用约 300 ml 1X XB 溶液共洗涤三次,每次洗涤之间轻轻旋转卵液,并让卵沉降至烧杯底部。同前,每次洗涤后尽可能倒去洗涤液,同时保持卵湿润。
- 用 CSF-XB 溶液洗涤卵两次,并倒去上清液。
- 向卵中加入 CSF-XB+ 溶液。使用经明胶处理且火焰抛光的巴斯德吸管,小心将卵转移至含 CSF-XB+ 的超速离心管中,注意避免卵接触空气。将离心管放入装有水垫的 15 ml 玻璃离心管中。
- 在临床离心机中以 200 × g 离心 1 分钟,随后提高转速至 800 × g,离心 30 秒。
- 使用抽吸装置尽可能吸除卵周围的缓冲液,顶部应几乎干燥。迅速将卵转移至配备 HB-6 转子(或等效型号)的 Sorvall RC-6 离心机中,在 20 °C 下以 17,000 × g 离心 15 分钟。
- 使用连接 1 ml 注射器的 18 号针头,吸取位于色素层与脂质层之间的黄色胞质层。从管壁侧面刺入,缓慢拉动注射器活塞以获取胞质提取物层。应尽可能避免吸入色素颗粒。
- 将胞质转移至新的超速离心管中。此步骤中提取物略显浑浊属正常现象。将其放入装有水垫的 15 ml 玻璃离心管中,在 20 °C 下再次以 17,000 × g 离心 10 分钟。随后用 18 号针头重复提取一次。
- 将胞质转移至 1.5 ml 微量离心管中。估计提取物体积,并将细胞松弛素 D 和 LPC 按 1:1,000 比例稀释入提取物中。使用 1 ml 吸头反复吹打混匀,注意避免引入气泡。来自健康蛙群的典型产量约为每只蛙 300–500 μl 提取物。为保持最大活性,实验操作及储存过程均需在室温(20–25 °C)下进行。
3. 从X. tropicalis提取物中纯化紫杉醇稳定的微管
- 将紫杉醇(Taxol)加入100–200 μl提取物等分试样中,使其终浓度为10 μM,在室温下孵育30分钟。作为对照反应,用等体积的微管去稳定药物诺考达唑(Nocodazole,10 μM)处理另一份提取物。保留100 μl未经处理的提取物用于后续分析。
- 用10倍体积的BRB-80缓冲液(80 mM PIPES,pH 6.8,1 mM MgCl2,1 mM EGTA)加30%甘油稀释药物处理后的提取物。准备14 ml圆底聚丙烯管,每管加入10 ml BRB-80缓冲液加60%甘油垫层。使用宽口移液吸头,将药物处理后的提取物反应液轻柔地铺加在BRB-80加60%甘油垫层上方。在配备HB-6转子(或等效转子)及管适配器的Sorvall RC-6离心机中,于20 °C以17,000 × g离心10分钟。
- 吸除含有未沉淀提取物成分的上清液,并用去离子H2O清洗界面两次。缓慢吸除剩余的垫层液体,注意不要扰动含有微管、微管相关蛋白及微管相关RNA的凝胶状沉淀(该沉淀仅存在于紫杉醇处理的样品中)。诺考达唑处理的样品中无可见沉淀物。将沉淀重悬于1 ml TRIzol中,按照试剂盒说明书进行RNA提取。未经处理的提取物(最多100 μl)可直接重悬于1 ml TRIzol中。
- 目前已有市售试剂盒可用于构建适用于RNA-seq的转录组文库。这些试剂盒可通过http://www.illumina.com/和http://www.454.com/购买。
结果
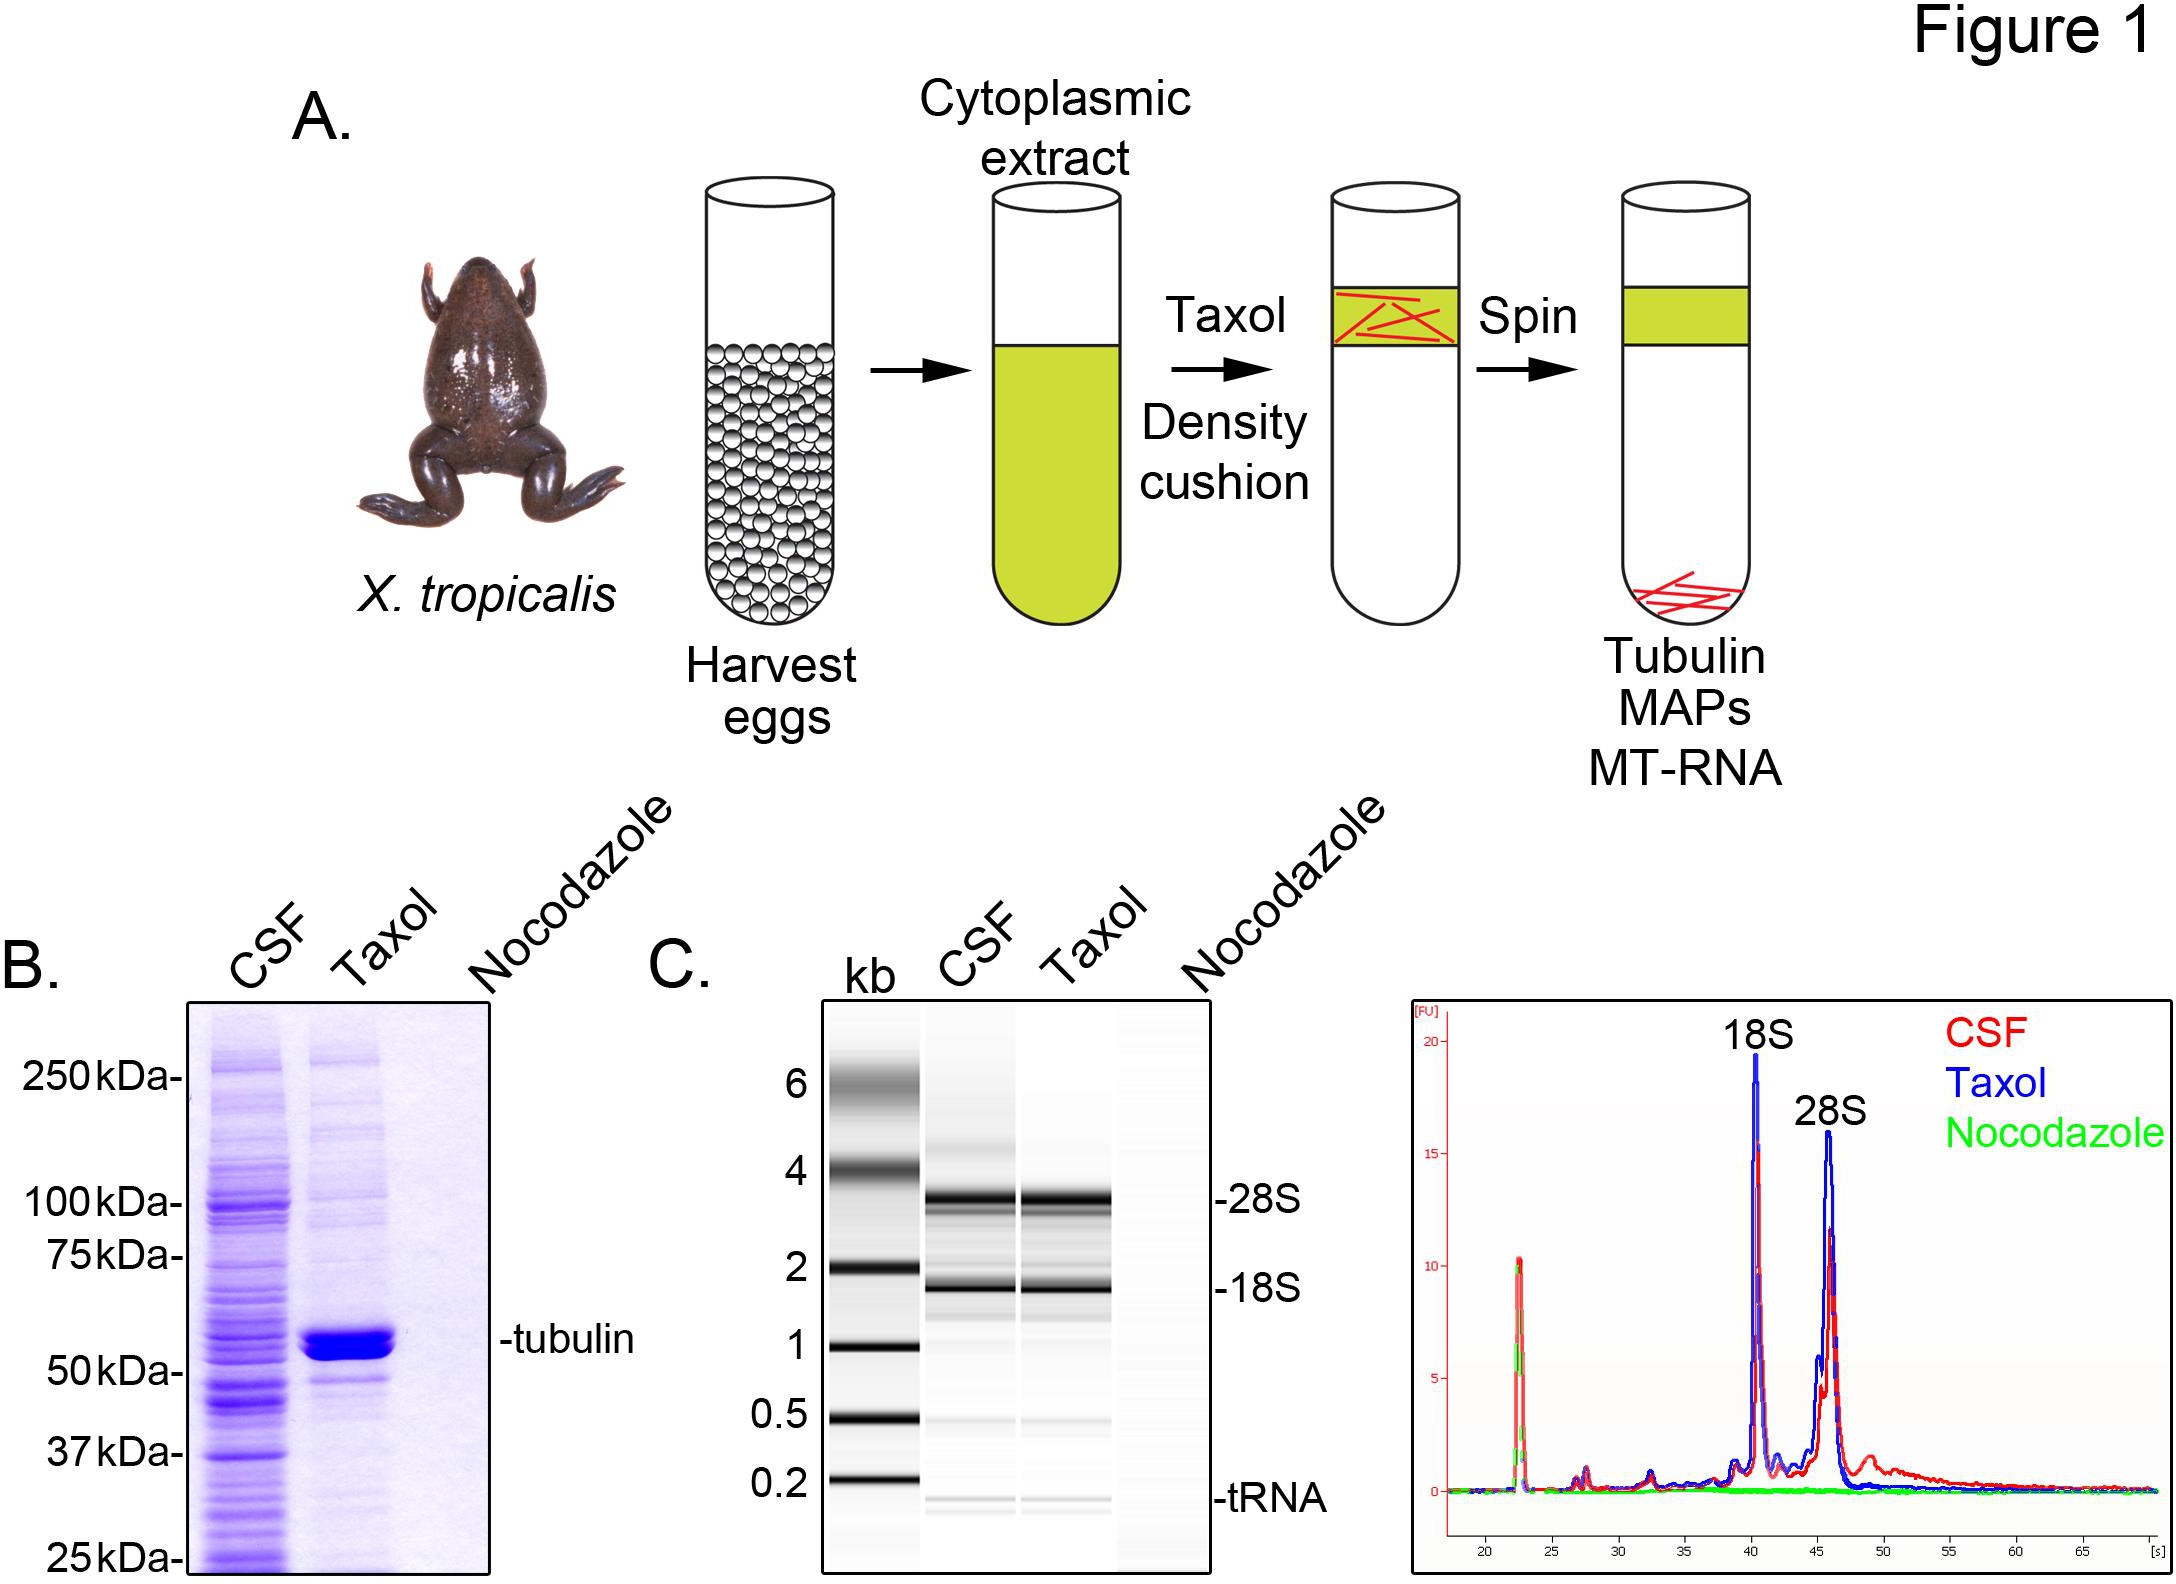
为了鉴定与微管相关的X. tropicalis转录本,我们制备了处于减数第二次分裂中期(CSF)停滞状态的未受精卵的胞质提取物。用紫杉醇处理该提取物可诱导形成稳定的微管,这些微管可通过沉降于甘油垫中进行纯化(图1A)。考马斯亮蓝染色凝胶分析证实,α/β-微管蛋白以紫杉醇依赖的方式发生沉降,并构成这些样品中回收的主要蛋白质组分(图1B)。紫杉醇沉淀物中还存在少量其他蛋白质,而在用微管去聚合药物诺考达唑处理的样品中则不存在,表明紫杉醇组分中的蛋白质特异性地与微管相关(即微管相关蛋白,MAPs)。
使用安捷伦生物分析仪检测所有 X. tropicalis 提取物组分中的总RNA组成(图1C)。CSF提取物和含微管的紫杉醇沉淀中均存在rRNA和tRNA,这与先前在 X. laevis 卵提取物中发现的微管和纺锤体上可发生翻译的结果一致5,21。凝胶电泳图谱的线迹分析显示,含微管的紫杉醇沉淀中mRNA信号明显较低,尤其是在迁移位置高于28S rRNA的区域更为显著,表明部分mRNA与 X. tropicalis 中的微管共沉淀。以此方法分离的RNA适用于使用市售试剂进行RNA-seq实验。

图1. 用于RNA测序的线粒体RNA纯化。 (A) 分离线粒体RNA的纯化方案。从雌性个体中收集卵子 X. tropicalis 青蛙。制备细胞质提取物后,加入紫杉醇以诱导微管聚合。通过甘油垫沉降法纯化微管及微管相关RNA。 (B) 使用所述方案分离的蛋白质的考马斯亮蓝凝胶分析 (A)总脑脊液提取物与在紫杉醇或诺考达唑存在下沉淀的蛋白质对比。 (C) 使用所述方案分离的RNA的Bioanalyzer凝胶分析 (A)脑脊液提取物中分离的 RNA 与在紫杉醇或诺考达唑存在下沉积的 RNA 比较。同时展示凝胶投影图和线迹图。 经Sharp许可转载, 等, (2011). 单击此处以查看大图.
讨论
在本报告中,我们描述了一种制备X. tropicalis19的细胞周期停滞于减数分裂II期(CSF-arrested)卵提取物的简单方法,并利用该提取物研究与微管相关的RNA7。制备X. tropicalis的CSF-arrested卵提取物的基本流程与X. laevis相同,但存在几个关键差异。使用X. tropicalis青蛙时最具挑战性的方面之一是获得足量高质量的卵,以制备出具有与X. laevis卵提取物相当的微管成核或纺锤体组装活性的提取物。为了在防止减数分裂II期细胞周期滑脱的同时实现最佳产卵条件,X. tropicalis的激素注射间隔时间比X. laevis更短,且从第三次hCG注射到开始产卵的时间也显著更短。对于X. laevis,从hCG注射到开始产卵的时间允许卵在缓冲液中过夜产出,操作方便且高效。然而,由于X. tropicalis在hCG注射后到产卵的时间较短,通常需要手动从青蛙体内挤出卵。两种青蛙在制备卵提取物过程中的另一个显著差异在于去胶膜步骤。X. laevis的卵体积较大,通过观察烧杯中卵的间距即可轻松判断胶膜是否已溶解。随着去胶反应的进行,卵会逐渐紧密聚集。然而,X. tropicalis的卵体积小得多,仅凭卵的聚集密度很难准确判断胶膜是否已完全溶解。我们发现,判断胶膜是否溶解的最可靠方法是监测动物极(黑色)和植物极(白色)的方向。当所有植物极均朝向烧杯底部时,表明胶膜已去除充分,可继续进行提取。最后,X. laevis卵提取物可在低温(4–12 °C)下保存,而我们观察到,在制备和实验操作过程中,必须将X. tropicalis卵提取物维持在室温(20–25 °C)以保持其生物化学活性。由于在操作便利性方面的差异,我们更倾向于使用X. laevis青蛙制备卵提取物。然而,对于需要或得益于基因组已测序生物体的实验,X. tropicalis是一个极佳的替代系统。
本报告中描述的方法采用紫杉醇(taxol)作为微管稳定剂来诱导微管聚合。我们选择该方法的原因在于,紫杉醇是一种高效的微管稳定剂,有助于大规模分离纯化的微管。通过比较使用其他微管聚合方法所获得的与微管相关联的蛋白质和RNA,我们所描述的方法有望得到进一步优化。替代方法可包括利用GTP诱导聚合(一种经典技术)22,或使用Ran-GTP作为微管聚合剂以模拟染色质驱动的纺锤体组装所诱导的微管形成23。最后,使用纯化的精子细胞核来诱导微管聚合,可最接近模拟有丝分裂过程中被引发的微管类型(即由中心体、染色质和动粒介导的微管)。这些替代微管成核来源的缺点在于,其成核因子不如紫杉醇易于获得,且在微管成核和稳定方面的效率也不及紫杉醇。因此,这些方法在大规模纯化应用中将更加困难。比较多种不同类型微管成核因子的优势在于,有可能鉴定出特异于每种微管成核途径的蛋白质和/或RNA。
本文所述方法利用了两栖动物的胞质提取物。然而,该方法也可拓展至其他生物体提取系统的应用。已有研究报道,来源于同步化人组织培养细胞的有丝分裂期提取物能够真实再现微管组装的多个方面24。我们已成功利用这些提取物鉴定了来自HeLa细胞的微管相关RNA5。针对多种不同生物体,已有类似的微管纯化方案被报道25,26,但尚未对其中的微管相关RNA进行分析。本文所描述的方法可适用于任何能够产生具有微管成核能力的浓缩胞质提取物的生物体。
最后,尽管本文所述方法主要讨论微管及其相关蛋白和RNA的纯化,但该方法可推广至其他亚细胞结构的研究。虽然目前大多数定位mRNA尚未通过生化方法被鉴定,但近年来DNA和RNA测序技术的进步使该方法成为鉴定定位RNA的一种颇具吸引力的策略。在此方法中,可针对任何感兴趣的亚细胞或胚胎亚结构进行分离或纯化,随后可在全基因组范围内鉴定与其相关的蛋白质和RNA。通过将这些RNA与整个细胞或胚胎的RNA含量进行比较,可识别出富集的定位RNA。该方法可用于完整卵细胞(如动物极与植物极的分离),类似于最初鉴定出首批定位RNA所采用的方法。 非洲爪蟾27), 与肌动蛋白相关的RNA、内质网相关的RNA、线粒体相关的RNA,或任何可被纯化且其结合RNA保持完整的亚细胞结构。基于我们在微管相关RNA方面的研究,我们预测该方法将是发现定位于特定位置并发挥功能的新蛋白的优良手段。此外,鉴定所有定位RNA的位置及其分布范围,将有助于深入理解细胞和胚胎如何利用mRNA定位来调控基因表达。
披露
未声明任何利益冲突。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂 | |||
| Xenopus tropicalis | NASCO | LM00823MX | |
| 人绒毛膜促性腺激素 | Sigma-Aldrich | CG10 | |
| HEPES | Sigma-Aldrich | H4034 | |
| EDTA | Sigma-Aldrich | E5134 | |
| NaCl | Sigma-Aldrich | S3014 | |
| KCl | Sigma-Aldrich | P9541 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| CaCl2 | Sigma-Aldrich | C8106 | |
| 蔗糖 | Sigma-Aldrich | S0389 | |
| NaOH | Sigma-Aldrich | S5881 | |
| EGTA | Sigma-Aldrich | E3889 | |
| 亮抑酶肽 | Sigma-Aldrich | L9783 | |
| 胃蛋白酶抑制剂 | Sigma-Aldrich | P5318 | |
| 抑肽酶 | Sigma-Aldrich | C7268 | |
| 细胞松弛素D | Sigma-Aldrich | C8273 | |
| 明胶,猪皮来源 | Sigma-Aldrich | G1890 | |
| PIPES | Sigma-Aldrich | P6757 | |
| 紫杉醇 | Sigma-Aldrich | T7191 | |
| 诺考达唑 | Sigma-Aldrich | M1404 | |
| Trizol | Invitrogen | 15596-026 | |
| L-半胱氨酸,游离碱基 | USB Corporation | 14030 | |
| 慈鲷湖盐 | Seachem | 47894 | |
| 海水盐 | Seachem | SC7111 | |
| NaHCO3 | Sigma-Aldrich | S6014 | |
| 设备 | |||
| 1 ml 注射器 | BD Biosciences | 309659 | |
| 18号针头 | BD Biosciences | 305195 | |
| 30号针头 | BD Biosciences | 305106 | |
| Rubbermaid 塑料桶 | Amazon | 6306 | |
| Beckman 聚碳酸酯 2 × ½ 英寸超速离心管 | Beckman | 326819 | |
| 15 ml 圆底玻璃离心管 | Fisher Scientific | 45500-15 | |
| 15 ml 管用橡胶适配套管 | Kimble-Chase | 45550-15 | |
| 5 ¾ 英寸玻璃巴斯德吸管 | Fisher Scientific | 13-678-20A | |
| 14 ml 聚丙烯圆底管 | BD Biosciences | 352059 | |
| Sorvall HB-6 转子 | Thermo Scientific | 11860 | |
| Sorvall RC-6 离心机 | Thermo Scientific | 46910 |
参考文献
- Martin, K. C., Ephrussi, A. mRNA localization: gene expression in the spatial dimension. Cell. 136, 719-730 (2009).
- Besse, F., Ephrussi, A. Translational control of localized mRNAs: restricting protein synthesis in space and time. Nat. Rev. Mol. Cell Biol. 9, 971-980 (2008).
- Lawrence, J. B., Singer, R. H. Intracellular localization of messenger RNAs for cytoskeletal proteins. Cell. 45, 407-415 (1986).
- Mingle, L. A., et al. Localization of all seven messenger RNAs for the actin-polymerization nucleator Arp2/3 complex in the protrusions of fibroblasts. J. Cell Sci. 118, 2425-2433 (2005).
- Blower, M. D., Feric, E., Weis, K., Heald, R. Genome-wide analysis demonstrates conserved localization of messenger RNAs to mitotic microtubules. J. Cell Biol. 179, 1365-1373 (2007).
- Eliscovich, C., Peset, I., Vernos, I., Mendez, R. Spindle-localized CPE-mediated translation controls meiotic chromosome segregation. Nat. Cell Biol. 10, 858-865 (2008).
- Sharp, J. A., Plant, J. J., Ohsumi, T. K., Borowsky, M., Blower, M. D. Functional analysis of the microtubule-interacting transcriptome. Mol. Biol Cell. 22, 4312-4323 (2011).
- Lecuyer, E., et al. Global analysis of mRNA localization reveals a prominent role in organizing cellular architecture and function. Cell. 131, 174-187 (2007).
- Mili, S., Moissoglu, K., Macara, I. G. Genome-wide screen reveals APC-associated RNAs enriched in cell protrusions. Nature. 453, 115-119 (2008).
- Holt, C. E., Bullock, S. L. Subcellular mRNA localization in animal cells and why it matters. Science. 326, 1212-1216 (2009).
- Desai, A., Murray, A., Mitchison, T. J., Walczak, C. E. The use of Xenopus egg extracts to study mitotic spindle assembly and function in vitro. Methods Cell Biol. 61, 385-412 (1999).
- Gache, V., Waridel, P., Luche, S., Shevchenko, A., Popov, A. V. Purification and mass spectrometry identification of microtubule-binding proteins from Xenopus egg extracts. Methods Mol. Med. 137, 29-43 (2007).
- Gache, V., et al. Xenopus meiotic microtubule-associated interactome. PLoS One. 5, e9248(2010).
- Cross, M. K., Powers, M. Obtaining eggs from Xenopus laevis females. J. Vis. Exp. (18), e890(2008).
- Cross, M. K., Powers, M. Preparation and fractionation of Xenopus laevis egg extracts. J. Vis. Exp. (18), e891(2008).
- Cross, M., Powers, M. In vitro nuclear assembly using fractionated Xenopus egg extracts. J. Vis. Exp. (19), e908(2008).
- Harland, R. M., Grainger, R. M. Xenopus research: metamorphosed by genetics and genomics. Trends Genet. 27, 507-515 (2011).
- Hellsten, U. The genome of the Western clawed frog Xenopus tropicalis. Science. 328, 633-636 (2010).
- Brown, K. S. Xenopus tropicalis egg extracts provide insight into scaling of the mitotic spindle. J. Cell Biol. 176, 765-770 (2007).
- Godfrey, E. W., Sanders, G. E. Effect of water hardness on oocyte quality and embryo development in the African clawed frog (Xenopus laevis). Comp. Med. 54, 170-175 (2004).
- Groisman, I., et al. CPEB, maskin, and cyclin B1 mRNA at the mitotic apparatus: implications for local translational control of cell division. Cell. 103, 435-447 (2000).
- Budde, P. P., Desai, A., Heald, R. Analysis of microtubule polymerization in vitro and during the cell cycle in Xenopus egg extracts. Methods. 38, 29-34 (2006).
- Kalab, P., Pu, R. T., Dasso, M. The ran GTPase regulates mitotic spindle assembly. Curr. Biol. 9, 481-484 (1999).
- Gaglio, T., Saredi, A., Compton, D. A. NuMA is required for the organization of microtubules into aster-like mitotic arrays. J. Cell Biol. 131, 693-708 (1995).
- Hughes, J. R., et al. A microtubule interactome: complexes with roles in cell cycle and mitosis. PLoS Biol. 6, e98(2008).
- Suprenant, K. A., Tempero, L. B., Hammer, L. E. Association of ribosomes with in vitro assembled microtubules. Cell Motil. Cytoskeleton. 14, 401-415 (1002).
- Rebagliati, M. R., Weeks, D. L., Harvey, R. P., Melton, D. A. Identification and cloning of localized maternal RNAs from Xenopus eggs. Cell. 42, 769-777 (1985).
重印与许可
