本文描述了一种在多种细胞类型中诱导上皮细胞向间充质细胞转化(EMT)的简便方法,并包含了通过免疫细胞化学分析处于EMT状态细胞的方法。
本文内容
摘要
摘要
上皮-间质转化(EMT)在发育过程中的正常形态发生中至关重要。该过程的异常调控已被认为是纤维化以及癌瘤向转移状态进展的关键事件。深入理解EMT所涉及的机制,对于这些疾病状态的早期诊断和临床控制至关重要。体外可靠地诱导EMT是药物发现的有用工具,也可用于识别用于诊断的共通基因表达特征。本文展示了一种在多种细胞类型中诱导EMT的简便方法。同时包括了通过免疫细胞化学对EMT诱导前后细胞进行分析的方法。此外,我们还通过基于抗体的阵列分析以及迁移/侵袭实验验证了该方法的有效性。
引言
上皮-间质转化(EMT)是指极性上皮细胞经历一系列变化,转化为具有高度运动能力的成纤维细胞样间质细胞的过程。该过程部分通过基因表达的改变以及黏附连接的降解来实现,从而增强细胞的迁移和侵袭能力。在生理条件下,EMT在胚胎发育和伤口愈合过程中发挥重要作用。EMT调控失常可导致纤维化以及癌瘤的转移1,2。
上皮细胞表面E-cadherin的减少是细胞经历EMT过程中的一个关键步骤3,4。E-cadherin是一种单次跨膜蛋白,可直接与相邻细胞上的钙黏蛋白相互作用。除了在细胞黏附中的作用外,E-cadherin还通过其胞质尾部与多种调控蛋白(尤其是β-catenin)的相互作用影响细胞信号传导。β-catenin在黏附连接的稳定中发挥重要作用。在经典的Wnt信号通路中,β-catenin从E-cadherin上解离,并转位至细胞核,在Wnt通路中作为下游转录因子发挥作用3,4,5。研究表明,在细胞核内,β-catenin可促进多种EMT相关因子的转录,包括Twist、Slug、纤连蛋白以及多种基质金属蛋白酶3,6。
除了Wnts信号通路外,TGF-β信号通路也被证明在正常发育过程以及疾病状态下对EMT的诱导具有重要作用7,8,9。TGF-β参与了腭部形成以及心脏发育过程中发生的EMT10。此外,TGF-β还被发现与纤维化及癌症向转移阶段的进展相关7。
本文所述方法可在无需进行基因操作的情况下,在多种细胞类型中稳定诱导上皮-间质转化(EMT)。该方法采用由E-cadherin、sFRP-1和Dkk-1阻断抗体以及Wnt-5a和TGF-β1重组蛋白组成的混合试剂。该混合试剂旨在阻断基于E-cadherin的细胞黏附,同时增强Wnt和TGF-β信号通路的活性。高效诱导EMT的能力对于理解该生物学过程及其在治疗中的调控机制至关重要。目前常用的EMT标志物E-cadherin(在EMT中表达下调)和Vimentin(在EMT中表达上调)在某些癌症中可共表达,因此并不能作为潜在转移性细胞的最佳诊断标志物12。重要的是,对经历EMT的多种细胞类型进行分析,有助于建立可用于癌症和纤维化疾病诊断的共通基因表达特征谱11。此外,近期研究表明,EMT可能在肿瘤干细胞的形成过程中发挥作用,提示经历EMT的细胞可用于药物筛选,以发现能够靶向这些细胞的化合物13。
方案
1. 诱导上皮-间质转化(EMT)
- 将培养基在水浴中预热至 37 °C。所用培养基与目标细胞常规培养所用培养基相同。例如,A549 人肺癌细胞系在 Kaighn's F12 培养基中培养,其中添加 10% 胎牛血清和 2 mM 谷氨酰胺。
- 使用解离溶液收集目的细胞(例如 TrypLE Express
- 将细胞重悬于预热的培养基中,置于15 ml锥形管内。
- 将细胞悬液在400 × g下离心5分钟。
- 小心地将上清液倒入废液容器中。
- 将细胞沉淀重悬于预热的培养基中。
- 使用台盼蓝计数活细胞。取少量细胞悬液,用0.4%台盼蓝溶液稀释。取10 μl稀释后的样品滴加至血细胞计数板,计数未染成蓝色的活细胞。根据细胞计数结果确定溶液中的细胞密度。
- 将细胞以0.9–1.0 × 10⁵个/孔的密度接种于经组织培养处理的培养板或培养瓶中4 每平方厘米细胞数2例如,0.5 × 106 在含有1X EMT诱导培养基添加剂的培养基中接种于100 mm培养皿的细胞(每100 mm培养皿使用6 ml培养基)。
- 在37 °C、5% CO₂条件下培养接种的细胞2 培养箱。每天观察细胞形态。
- 铺板后三天,吸除培养基,更换为含1×EMT诱导培养基添加剂的新鲜预温培养基。继续在37 °C、5% CO₂条件下培养。2 培养箱
- 接种后五天,细胞即可用于分析。通过倒置光学显微镜观察细胞形态。
2. 通过免疫细胞化学分析蛋白质表达
- 将12 mm的无菌盖玻片放入含有95%乙醇的培养皿中,以制备用于24孔板的无菌盖玻片。使用针头和弯镊小心地从乙醇中取出盖玻片,并进行火焰灭菌。将灭菌后的盖玻片放入24孔板的一个孔中。对剩余的盖玻片重复此操作。
- 按照第1.1–1.7节所述方法制备细胞悬液。
- 在含有1× EMT诱导培养基添加剂的0.5 ml预热培养基中,以每孔1.6 × 10⁴个细胞的密度接种。
- 按照第1.9–1.11节所述方法培养并换液。
- 接种后第五天,吸除培养基,并在室温下用每孔300 μl的4%多聚甲醛(溶于1×磷酸盐缓冲液(PBS))固定细胞20分钟。
- 移除固定液,用每孔500 μl的1× PBS清洗细胞两次。
- 在室温下,用每孔400 μl的封闭缓冲液(含1%牛血清白蛋白(BSA)、10%正常驴血清和0.3% Triton X-100的1× PBS)孵育细胞1小时。
- 在室温下,用厂家推荐浓度的一抗溶液(溶于每孔400 μl封闭缓冲液)孵育3小时,或在4 °C下过夜孵育。若使用直接偶联荧光染料的一抗,则需在避光条件下孵育。
- 用每孔500 μl含0.1% BSA的1× PBS洗涤细胞三次,每次5分钟。若使用直接偶联荧光染料的一抗,则直接进入步骤2.12。
- 在避光条件下,室温下用厂家推荐浓度的二抗溶液(溶于每孔400 μl含1% BSA的1× PBS)孵育细胞1小时。
- 用每孔500 μl含0.1% BSA的1× PBS洗涤细胞三次,每次5分钟。
- 如需,可用DAPI溶液对细胞核进行复染。
- 用去离子水冲洗细胞,然后将盖玻片正面朝下,用封片剂封固于载玻片上。
结果
本文所述的EMT诱导培养条件为多种细胞类型的EMT诱导提供了可靠的方法。图1和图2展示了4种不同人源细胞系的形态学特征及标志物表达水平:T98G胶质母细胞瘤细胞、HT29结肠腺癌细胞、A549肺癌细胞以及MCF10A乳腺上皮细胞。经EMT诱导培养基添加剂处理的细胞从典型的上皮样形态(图1A - 1D)转变为间质样、纺锤形形态(图1E - 1H)。与未诱导细胞相比,EMT诱导后的细胞聚集更松散,形成的紧密克隆较少。未诱导的MCF10A样本中存在紧密堆积的细胞簇,周围环绕着排列较松散的细胞。这些紧密堆积的细胞簇呈E-钙黏蛋白阳性(图2D),而在使用EMT诱导培养基添加剂处理后消失(图2H)。
EMT 还通过上皮标志物的下调和间充质标志物的上调进行评估。在不同类型细胞中,EMT 诱导后通常可观察到 E-钙黏蛋白表达的下调3,4。图2显示,在大多数未经处理的细胞中可检测到 E-钙黏蛋白的表面表达(图2A - 2D;红色),而 EMT 诱导后该表达消失(图2E - 2H;红色)。其中一种细胞系 T98G 在 EMT 诱导前即表现出极低的基础 E-钙黏蛋白水平,因此无法进行分析。使用 EMT 诱导培养基添加剂诱导后,间充质标志物纤维连接蛋白的上调也清晰可见(图2A - 2D 与 图2E - 2H 对比;绿色)。
通过免疫细胞化学观察到的E-cadherin和纤连蛋白(Fibronectin)表达水平进一步通过全细胞裂解液的蛋白质印迹(western blotting)进行了验证(图3)。蛋白质印迹结果证实了免疫细胞化学所显示的E-cadherin表达下调和纤连蛋白表达上调现象。采用密度测定法对条带进行定量,并以GAPDH为内参进行归一化,以确定EMT诱导后的相对倍数变化。在A549和MCF10A细胞中,E-cadherin水平分别降低了6.4倍和3.4倍。在T98G、A549和MCF10A细胞中,纤连蛋白水平分别升高了4.6倍、4.1倍和2.3倍。尽管蛋白质印迹未显示HT29细胞在EMT诱导后E-cadherin蛋白水平有显著降低,但免疫细胞化学结果显示其细胞表面E-cadherin表达减少(图2B 与 2F 对比),而这种表面表达的变化在全细胞裂解液的蛋白质印迹中无法被区分。
为了进一步评估EMT状态,在EMT诱导前后分析了其他已知的EMT标志物。与先前结果一致,在所有检测的细胞系中,E-钙黏蛋白(E-cadherin)均出现下调,表明EMT已被诱导。此外,在使用EMT诱导培养基添加剂处理后,间充质标志物波形蛋白(Vimentin)和Snail在A549、T98G和MCF10A细胞中均上调(图4)。HT29细胞系无论在有无EMT诱导的情况下均未显示这些间充质标志物的表达(数据未显示),这可能表明这些细胞利用其他通路进行EMT诱导。
尽管TGF-β在某些细胞环境中足以诱导EMT7,8,9,其他细胞类型不会仅因添加 TGF-β 而产生反应14据报道,MCF7人乳腺癌细胞和PANC-1人胰腺癌细胞均不单独响应TGF-β信号通路14以确定这两株细胞是否均可发生EMT 体外,细胞在含有EMT诱导培养基添加剂的条件下培养。仅使用EMT诱导培养基添加剂中所含浓度的重组TGF-β1刺激细胞。这些细胞仍保持上皮细胞形态,表现为紧密排列的细胞集落(数据未显示),且表面E-cadherin水平与对照细胞相似图5C 和 5D 与 图5A 和 5B)。相比之下,用EMT诱导培养基添加剂刺激的细胞,其表面E-cadherin水平显著下降(图5E 和 5F这些细胞还呈现出更明显的间充质样形态,细胞变得不那么紧密,呈更明显的梭形(数据未显示)。这些结果表明,本文所述的EMT诱导方法能够促进通常对TGF-β诱导EMT具有抗性的细胞发生EMT相关的形态学改变及标志物表达变化。
除了标志物表达的变化外,间充质细胞的另一个特征是其迁移和侵袭能力。根据制造商的说明,使用96孔BME细胞侵袭检测试剂盒分析了在有或无EMT诱导培养基添加剂条件下培养的细胞的迁移和侵袭能力。简言之,将细胞接种到含有8.0 μm孔径滤膜插件的96孔板中(每孔50,000个细胞)。48小时后,通过钙黄绿素AM染色检测穿过滤膜的细胞,以评估迁移情况。每个样本均设三个复孔,并重复实验两次,结果一致。一次代表性实验的结果如图6A所示。在A549和PANC-1细胞中,经EMT诱导后,细胞迁移能力均出现统计学显著增强(P值<0.003)。为了评估这些细胞的侵袭能力(即穿过细胞外基质的能力),采用经基底膜提取物包被的滤膜进行相同的检测。如图6B所示,与未处理细胞相比,EMT诱导后的细胞侵袭能力显著增强,差异具有统计学意义(P值<0.001)。
EMT 的强烈诱导有助于分析这些细胞中发生的基因表达变化和信号转导过程。利用经处理和未经处理的细胞裂解液进行基于抗体的阵列分析,是单一样本中分析多种分子表达水平的一种方法。例如,我们使用 Proteome Profiler Human Phospho-MAPK Array Kit 检测了未诱导和 EMT 诱导的 MCF7 和 A549 细胞裂解液中磷酸化 MAPK 家族成员的水平。该阵列由两次独立的 EMT 诱导实验重复进行,结果相似。图7展示了一次阵列的代表性数据。与对照组相比,两种细胞在 EMT 诱导后均表现出 CREB(S133)、ERK1(T202/Y204)和 ERK2(T185/Y187)的磷酸化水平升高。此外,两种细胞类型之间的信号事件也存在差异:A549 细胞中 GSK-3β(S9)磷酸化增加,而 MCF7 细胞中 p70S6K(T421/S424)磷酸化升高。

图1. 使用EMT诱导培养基添加剂刺激后诱导出间充质形态。 (A - D) 四种所示细胞类型在标准培养基中培养5天后呈现的上皮形态,未添加EMT诱导培养基添加剂。(E - H) 四种所示细胞类型在含EMT诱导培养基添加剂的培养基中培养5天后呈现的间充质形态。

图2. EMT诱导细胞中上皮标志物表达下调及间充质标志物表达上调。 采用免疫荧光染色检测上皮标志物E-cadherin(红色)和间充质标志物Fibronectin(绿色)的表达情况。(A - D) 未添加EMT诱导培养基添加剂、培养5天的对照细胞。(E - H) 添加EMT诱导培养基添加剂、培养5天的细胞。所有细胞均用DAPI复染(蓝色)。
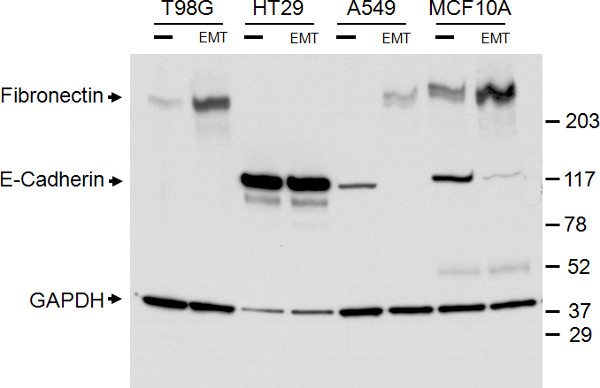
图3. 通过蛋白质印迹分析验证上皮和间充质标志物的表达。 对所示四种细胞类型在含有(EMT)或不含(-)EMT诱导培养基添加剂的条件下处理5天后的全细胞裂解液进行蛋白质印迹分析。左侧所示为E-钙黏蛋白、纤连蛋白以及GAPDH上样对照的条带,右侧所示为蛋白分子量标记。

图 4. EMT 诱导细胞中间质标志物 Vimentin 和 Snail 的上调表达。 采用多色免疫荧光染色法检测上皮标志物 E-cadherin(灰色)以及间质标志物 Vimentin(绿色)和 Snail(红色)的表达情况。(A - C) 未添加 EMT 诱导培养基添加剂、培养 5 天的对照细胞。(D - F) 添加 EMT 诱导培养基添加剂、培养 5 天的细胞。

图5. 在对TGF-β1无反应的细胞中诱导EMT。 (A 和 B) 仅用培养基培养5天的细胞。(C 和 D) 在含有10 ng/ml TGF-β1的培养基中培养5天的细胞。(E 和 F) 在EMT诱导培养基添加剂中培养5天的细胞。所有细胞均进行E-钙黏蛋白表达染色(红色),并用DAPI复染(蓝色)。

图6. 发生EMT的细胞具有增强的迁移和侵袭能力。 A. 在37 °C下孵育48小时后,穿过8 μm孔径滤膜的平均细胞数。B. 在37 °C下孵育48小时后,穿过经基底膜提取物包被的8 μm孔径滤膜的平均细胞数。误差条表示3个孔的標準差。

图7. EMT诱导的基于抗体的阵列表达分析。使用或不使用EMT诱导培养基添加剂培养的A549 (A 和 C) 以及MCF7 (B 和 D) 细胞的裂解物,通过Proteome Profiler Human Phospho-MAPK阵列试剂盒进行阵列分析。在A和B中标记的点随后通过密度测定法进行定量。未诱导与EMT诱导裂解物的比较结果展示于下方相应的柱状图中(C 和 D)。点击此处查看大图。
讨论
以往诱导EMT的方法通常使用TGF-β刺激或基因改造。尽管已有研究表明TGF-β单独作用可在某些细胞类型中诱导EMT,但目前的研究已证实,TGF-β虽为EMT所必需,但在所有细胞类型中均不足以单独诱导EMT6,14。采用基因改造方法诱导EMT耗时且劳动强度大。本文所述方法则联合使用多种因子,包括抗人E-钙黏蛋白抗体、抗人sFRP-1抗体、抗人Dkk-1抗体、重组人Wnt-5a蛋白和重组人TGF-β1,以可靠地诱导EMT。该因子组合旨在阻断以E-钙黏蛋白为基础的细胞黏附——这是诱导EMT的关键步骤4,并通过添加Wnt-5a蛋白以及使用针对Wnt通路抑制因子sFRP-1和Dkk-1的阻断性抗体,增强Wnt信号通路活性。已有研究证明,Wnt与TGF-β信号通路可通过自分泌环路协同作用,诱导并维持间充质细胞状态6。该诱导方法无需基因操作,且效果优于单独使用TGF-β。重要的是,我们能够在某些此前已被证实对单独TGF-β刺激无反应的细胞类型(包括MCF7和PANC-1细胞)中成功观察到EMT的诱导(图5)14。
经EMT诱导培养基添加剂处理的细胞呈现松散且增多的纺锤形形态(图1)。此外,表面E-cadherin表达减少,同时Fibronectin表达增加,这是上皮-间质转化(EMT)的标志性特征(图2 和 3)。与未诱导的对照组相比,EMT诱导细胞中其他间充质标志物(如Vimentin和Snail)也呈上调表达(图4)。迁移和侵袭能力增强是间充质细胞的主要功能特征。在 体外 迁移和侵袭实验显示,经EMT诱导培养基添加剂处理的细胞,其迁移和侵袭能力显著增强(图6).
这种简单的EMT诱导方法可用于EMT信号通路的研究,如图7所示的抗体芯片表达数据所示。可通过比较不同类型细胞在EMT诱导前后的变化,获得与EMT相关的共同表达特征,例如在MCF7和A549细胞经EMT诱导后均观察到磷酸化CREB和ERK1/2水平的升高。CREB在S133位点的磷酸化可促进其与DNA结合,并已被证实位于TGF-β1诱导EMT的下游通路15。ERK1/2的磷酸化同样被证明在TGF-β1诱导的EMT下游发挥作用16。还可揭示不同细胞类型间信号通路的差异,例如A549细胞中GSK-3β磷酸化增加,而MCF7细胞中则表现为p70S6K磷酸化升高。GSK-3β在丝氨酸9位点的磷酸化会降低其活性,而GSK-3β已被证明可抑制促EMT转录因子Snail17。相反,p70S6K可促进Snail的活性,其磷酸化与该蛋白的激活相关18。
总体而言,对上皮-间质转化(EMT)进行简单且可靠的诱导,特别是对那些先前已证明单独使用TGF-β无法响应的细胞,有助于深入理解EMT的生物学机制,识别可用于预后标志物的共表达特征,并推动针对癌症和纤维化疾病的新型治疗手段的开发与评估。
披露
R & D Systems, Inc. 是一家营利性上市公司。
本文的制作和免费访问由 R & D Systems, Inc. 赞助。
致谢
作者谨此感谢 Julia Hatler 和 Martin Ramsden(R & D Systems)在讨论和文稿审阅中提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 目的上皮细胞 | 我们已测试:A431、A549、HT29、T98G、MCF10A、MCF7 和 PANC1 | ||
| EMT诱导培养基添加剂 | R&D Systems | CCM017 | |
| 重组人 TGF-β1 | R&D Systems | 240-B | 使用浓度为10 ng/ml |
| 抗E-钙黏蛋白NL557标记抗体 | R&D Systems | NL648R | 以1:10稀释比例用于免疫细胞化学 |
| 抗E-钙黏蛋白 | R&D Systems | MAB1838 | 使用浓度为0.1 μg/ml 用于 Western 印迹 |
| 抗纤连蛋白 | R&D Systems | MAB1918 | 使用浓度为10 μ用于免疫细胞化学时为 0.5 g/ml;使用浓度为 0.5 μg/ml 用于 Western 印迹 |
| 抗GAPDH | R&D Systems | AF5718 | 使用浓度为0.2 μg/ml 用于 Western 印迹 |
| 山羊抗小鼠NL493二抗 | R&D Systems | NL009 | 免疫细胞化学中以1:200稀释度使用 |
| 驴抗山羊 HRP 二抗 | R&D Systems | HAF109 | 用于 Western 印迹,稀释比例为 1:2000 |
| 山羊抗小鼠 HRP 二抗 | R&D Systems | HAF007 | 用于 Western 印迹,稀释比例为 1:2000 |
| EMT三色免疫细胞化学试剂盒 | R&D Systems | SC026 | 按照制造商说明使用’s 说明。该试剂盒包含针对 E-cadherin、Vimentin 和 Snail 的预标记抗体。 |
| 96孔BME细胞侵袭实验 | R&D Systems | 3455-096-K | 按照制造商的建议使用了该试剂盒。 |
| 人类磷酸化MAPK蛋白组筛选阵列试剂盒 | R&D Systems | ARY002B | 按照制造商的建议使用了该试剂盒19. |
| 封片剂 | R&D Systems | CTS011 | |
| 0.4% 台盼蓝溶液 | Life Technologies | 15350-061 | |
| 1×磷酸盐缓冲液(PBS) | |||
| 95% 乙醇 | |||
| 牛血清白蛋白 | Sigma | A3311 | |
| 正常驴血清 | 杰克逊实验室 | 017-000-121 | |
| Triton-X-100 | 罗氏分子生化公司 | 789-704 | 用1×PBS稀释,配制成10%的储存液 |
| 多聚甲醛 | Sigma | P6148 | 用1×PBS稀释至4%的工作浓度。 |
| DAPI 溶液 | Sigma | D9542 | 用蒸馏水溶解配制14.3 mM的储存液。工作液为储存液用1×PBS按1:5000比例稀释而成。 |
| 精细尖头弯镊 | 赛默飞世尔科技 | 08-875 | |
| 12 mm 盖玻片 | 卡罗来纳生物公司 | 633009 | |
| 脱脂奶粉 | 在 Western blotting 中,以 5% 浓度用于 TBST 的封闭 | ||
| TBST [25 mM Tris,pH 7.4,0.15 M NaCl,0.1% Tween 20] | 用于蛋白质印迹的封闭和洗涤 | ||
| PVDF膜 | 用于蛋白质印迹分析 | ||
| 4-20% SDS-聚丙烯酰胺凝胶 | 用于蛋白质印迹分析 | ||
| ECL底物 | 用于蛋白质印迹分析 | ||
| 15 ml 离心管 | |||
| 培养皿/培养瓶,经组织培养处理 | |||
| 24孔板,组织培养处理 | |||
| 移液器 / 移液器吸头 | |||
| 移液器辅助器 / 移液管 | |||
| 血细胞计数板 | |||
| 37 °C 水浴 | |||
| 37 °C/5%CO₂2 培养箱 | |||
| 离心 | |||
| 倒置光学显微镜 | |||
| 荧光显微镜 |
参考文献
- Kalluri, R., Weinberg, R. A. The basics of epithelial-mesenchymal transition. Journal of Clinical Investigation. 119, 1420-1428 (2009).
- Thiery, J. P. Epithelial-mesenchymal transitions in tumour progression. Nature Reviews Cancer. 2, 442-454 (2002).
- Heuberger, J., Birchmeier, W. Interplay of cadherin-mediated cell adhesion and canonical Wnt signaling. Cold Spring Harbor Perspectives in Biology. 2, 1-23 (2010).
- Onder, T. T. Loss of E-cadherin promotes metastasis via multiple downstream transcriptional pathways. Cancer Research. 68, 3645-3654 (2008).
- Tian, X. E-cadherin/β-catenin complex and the epithelial barrier. Journal of Biomedicine and Biotechnology. 2011, 1-6 (2011).
- Scheel, C. Paracrine and autocrine signals induce and maintain mesenchymal and stem cell states in the breast. Cell. 145, 926-940 (2011).
- Xu, J., Lamouille, S., Derynck, R. TGF-β-induced epithelial to mesenchymal transition. Cell Research. 19, 156-172 (2009).
- Kasai, H. TGF-β1 induces human alveolar epithelial to mesenchymal cell transition. EMT). Respiratory Research. 6, 56-70 (2005).
- Miettinen, P. J., et al. TGF-β induced transdifferentiation of mammary epithelial cells to mesenchymal cells: involvement of type I receptors. Journal of Cell Biology. 127, 2021-2036 (1994).
- Pelton, R. W., et al. Differential expression of genes encoding TGFs β1, β2, and β3 during murine palate formation. Dev. Biol. 141, 456-460 (1990).
- Taube, J. H. Core epithelial-to-mesenchymal transition interactome gene-expression signature is associated with claudin-low and metaplastic breast cancer subtypes. PNAS. 107, 15449-15454 (2010).
- Roussos, E. T., et al. AACR special conference on epithelial-mesenchymal transition and cancer progression and treatment. Cancer Research. 70, 7360-7364 (2010).
- Polyak, K., Weinberg, R. A. Transitions between epithelial and mesenchymal states: acquisition of malignant and stem cell traits. Nature Reviews Cancer. 9, 265-273 (2009).
- Brown, K. A. Induction by transforming growth factor-β1 of epithelial to mesenchymal transition is a rare event in vitro. Breast Cancer Research. 6, 215-231 (2004).
- De Falco, V., et al. CD44 proteolysis increases CREB phosphorylation and sustains proliferation of thyroid cancer cells. Cancer Research. 72, 1449-1458 (2012).
- Xie, L. Activation of the Erk pathway is required for TGF-β1-induced EMT in vitro. Neoplasia. 6, 603-610 (2004).
- Bachelder, R. E., et al. Glycogen synthase kinase-3 is an endogenous inhibitor of Snail transcription: implication for the epithelial-mesenchymal transition. Journal of Cell Biology. 168, 29-33 (2005).
- Pon, Y. L. p70 S6 kinase promotes epithelial to mesenchymal transition through Snail induction in ovarian cancer cells. Cancer Research. 68, 6524-6532 (2008).
- Wegner, G. J., et al. Profiling changes in receptor tyrosine kinase phosphorylation using antibody arrays. J. Vis. Exp. , (2012).
重印与许可
