本文介绍了一种能够以前所未有的通量进行彗星实验检测DNA损伤的平台。该装置可将哺乳动物细胞排列成微阵列,并实现96个样品的并行处理。该方法有助于分析基础水平的DNA损伤、暴露诱导的DNA损伤以及DNA修复动力学。
方法文章
CometChip:一种用于在微阵列化人细胞中高通量检测DNA损伤的96孔平台
* These authors contributed equally
本文内容
摘要
摘要
DNA 损伤剂可促进衰老、疾病和癌症的发生,且广泛存在于环境中,并可作为人体细胞正常代谢产物在细胞内产生。具有讽刺意味的是,在高剂量下,DNA 损伤剂也被用于癌症治疗。因此,量化 DNA 损伤反应的能力在公共卫生、制药和临床领域至关重要。本文描述了一种新型平台,该平台利用微加工技术将细胞固定在微阵列中。“CometChip”基于已被广泛采用的单细胞凝胶电泳检测法(又称“彗星实验”),通过评估 DNA 在电场中穿过基质的迁移程度来估计 DNA 损伤水平。该检测法所测量的损伤类型包括无碱基位点、交联和链断裂。与传统方法中细胞随机分散于琼脂糖中的方式不同,本方法通过重力将细胞捕获至琼脂糖微孔阵列中。该平台还从标准显微镜载玻片大小扩展为 96 孔板格式,实现并行处理。本文详细介绍了利用该芯片评估已知遗传毒性试剂引起的 DNA 损伤及暴露后细胞修复反应的实验方案。通过整合生物学与工程学原理,该方法增强了对人细胞中 DNA 损伤的稳健且灵敏的检测能力,并为遗传毒性测试、药物开发、流行病学研究和临床检测提供了必要的通量支持。
引言
单细胞凝胶电泳(SCGE)检测法(又称彗星检测法)是一种广泛使用的技术,用于定量检测多种类型的DNA损伤,包括碱基损伤、无碱基位点、单链断裂、双链断裂、交联以及对碱敏感的位点。该检测方法的基本原理是,由于DNA发生断裂并失去超螺旋结构,受损DNA比未受损DNA更易于迁移。迁移程度与DNA损伤量成正比,可通过荧光显微镜进行观察。随后对单个彗星形状的DNA图像进行采集,并分析其荧光强度分布,从而获得尾长、尾矩以及尾部DNA百分比等参数,以揭示细胞内DNA损伤的程度1-4。
目前常用的彗星实验方法主要有两种:a)碱性彗星实验和b)中性彗星实验。其中,碱性彗星实验是应用最广泛的形式,它使用高pH缓冲液在电泳前使DNA解旋,从而可检测所有类型的链断裂及碱敏感位点。而中性彗星实验使用中性缓冲液以维持DNA双螺旋结构,仅能检测双链断裂,因此应用较少2,5。对于诱导双链断裂(DSBs)的化学和物理因素,通常会同时产生单链断裂(SSBs),且SSBs的生成水平远高于DSBs(例如,γ射线诱导的SSBs发生频率比DSBs高出一个数量级)。在大多数DNA损伤暴露情况下,DSBs的发生频率远低于其他类型的DNA损伤,因此更难被检测。我们已在先前发表的研究中阐明了这两种方法的检测窗口6,7。
尽管彗星试验已常规用于DNA损伤与修复的基础研究以及遗传毒性测试1,2,8-15,但由于样本间、操作者间及实验室间的差异,该方法被报道存在重复性差的问题。此外,该试验通量较低,部分原因在于图像采集和数据分析过程繁琐耗时。这些局限性共同导致其在大规模研究中的应用接受度相对较低。通过整合工程技术与原理,彗星芯片(CometChip)为传统彗星试验所存在的通量低和结果不一致等问题提供了可行的解决方案6,7。简而言之,制备芯片时,首先采用光刻技术微加工制造模具,形成直径小至单个细胞尺寸的微柱结构。随后利用该模具在熔融琼脂糖上压印,待凝胶固化后形成微孔阵列。目前芯片正在被开发为提供不同尺寸的微孔,以适配多种类型的细胞。加载细胞时,将含细胞的培养基置于芯片上,使细胞在重力作用下自然沉降进入微孔,随后洗去多余细胞。被捕获的细胞被包裹于一层低熔点琼脂糖薄层中,再将一个无底的96孔板夹紧在凝胶表面,从而形成96个大孔,每个大孔的底部表面包含数百个微孔。
本方案描述了使用该芯片进行实验的一般步骤,包括凝胶制备、细胞加载、给药与修复、细胞裂解、电泳以及荧光成像。我们展示了两个使用淋巴母细胞暴露于已知DNA损伤剂的剂量反应实验示例,分别采用该检测方法的碱性和中性版本。此外,还展示了两个修复实验,以说明如何利用该系统评估暴露后的修复反应。
方案
1. 芯片制备
- 从包装中取出芯片凝胶,放入一个单孔矩形板中,凝胶膜面朝下。
- 用 25 ml 1× PBS 清洗凝胶 15 分钟,重复两次。
- 将凝胶置于玻璃板上,并相应地标记凝胶的方向。
- 轻轻将一个倒置的无底 96 孔板压在凝胶上;确保无底孔板的所有孔均位于凝胶区域内。
- 在板的每侧使用 1.5 英寸长尾夹,将凝胶和玻璃板夹紧固定。
- 吸出每个孔中多余的 PBS 缓冲液。
2. 加载细胞
- 制备细胞悬液:
- 对于悬浮细胞系,用培养基稀释细胞悬液,使最终浓度为 105–106 个细胞/ml。
- 对于贴壁细胞系,按照常规消化/胰酶处理步骤操作,将消化下来的细胞用培养基稀释至最终浓度为 105–106 个细胞/ml。若细胞发生聚集,需将细胞悬液通过细胞滤网过滤,以获得单细胞悬液。
- 向 96 孔板的每孔中加入 100 μl 细胞悬液。
- 用封口膜覆盖孔板,防止培养基蒸发。
- 将细胞置于 37 °C 培养箱中孵育至少 30 分钟,使其充分贴附。
- 从培养箱中取出芯片,吸除各孔中的培养基。
- 移除夹子和无底的 96 孔板;用手持住芯片的玻璃板一侧并倾斜,用 1× PBS 轻柔冲洗,以去除琼脂糖表面多余的细胞。
- 使用 4 倍物镜在明场显微镜下检查细胞加载情况。若加载不足,请从步骤 2.1 重新开始。
- 将已加载细胞的芯片放置于水平台面(如实验台)。在芯片上覆盖预先在 37 °C 保温的 1% 低熔点(LMP)琼脂糖凝胶,每张芯片约需 2–3 ml LMP 琼脂糖。
- 先在室温下静置 3 分钟使覆盖层初步凝固,随后转移至 4 °C 冰箱中继续冷却 5 分钟,以完成完全凝胶化。
3. 给药与修复
注意:如需研究基础DNA损伤水平,请跳至第4步。
- 将芯片上的孔(由先前的夹紧操作形成)与新的无底96孔板的孔仔细对齐。将无底96孔板重新压在芯片上,并用长尾夹固定夹紧。
- 向96孔板的每个孔中加入100 μl所需剂量的化学物质;在冰上或4 °C冰箱中进行给药/处理,持续指定的时间。
- 给药结束后,从各孔中吸除化学物质,并用1×PBS冲洗以去除残留化学物。若此处研究直接损伤效应,则继续进行步骤4。
- 若需研究修复动力学,将芯片中的细胞置于37 °C培养基中进行修复,并在特定时间点进行裂解(进入步骤4)。
注意:修复可在芯片上进行,此时保留连接的无底96孔板;或者在移除无底96孔板后,将芯片切割成独立片段进行修复。
4. 裂解
- 进行碱性彗星实验:
- 通过向碱性裂解储存液(2.5 M NaCl、100 mM Na2EDTA、10 mM Tris,pH 10)中加入1% Triton X-100 配制工作用碱性裂解缓冲液。每个芯片大约准备25 ml工作缓冲液。
- 将工作用碱性裂解缓冲液预先冷却至4 °C。
- 将芯片浸入冷却的工作用碱性裂解缓冲液中,在4 °C冰箱中裂解过夜(O/N)。
- 进行中性彗星实验:
- 通过向中性裂解储存液(2.5 M NaCl、100 mM Na2EDTA、10 mM Tris、1% N-月桂酰肌氨酸,pH 9.5)中加入1% Triton X-100 和10% DMSO 配制工作用中性裂解缓冲液。每个芯片大约准备25 ml工作缓冲液。
- 将工作用中性裂解缓冲液预热至43 °C。
- 将芯片浸入温热的工作用中性裂解缓冲液中,在43 °C培养箱中裂解过夜(O/N)。
5. 电泳
- 进行碱性彗星实验:
- 去除裂解缓冲液,并用1×PBS快速冲洗芯片。
- 使用双面胶带将芯片固定在电泳槽中,凝胶膜面朝下。
- 将电泳槽置于4 °C的冷室中。
- 向电泳槽中加入冷的碱性电泳缓冲液(0.3 M NaOH,1 mM Na2EDTA),液面刚好覆盖凝胶即可。
- 碱性解旋40分钟。
- 在冷室中以1 V/cm和300 mA的条件电泳30分钟。调节电泳槽中电泳缓冲液的体积以达到所需的运行电流。
- 进行中性彗星实验:
- 去除裂解缓冲液,并在4 °C条件下用中性电泳缓冲液(2 mM Na2EDTA,90 mM Tris,90 mM硼酸,pH 8.5)冲洗芯片,每次15分钟,共2次。
- 使用双面胶带将芯片固定在电泳槽中,凝胶膜面朝下。
- 将电泳槽置于4 °C的冷室中。
- 向电泳槽中加入冷的中性电泳缓冲液(2 mM Na2EDTA,90 mM Tris,90 mM硼酸,pH 8.5),液面刚好覆盖凝胶即可。
- 让凝胶在冷室中静置60分钟。
- 在冷室中以0.6 V/cm和6 mA的条件电泳60分钟。调节电泳槽中电泳缓冲液的体积以达到所需的运行电流。
6. 荧光成像
- 从冷藏室中取出电泳槽中的芯片。
- 在4 °C冰箱中,用中和缓冲液(0.4 M Tris,pH 7.5)中和凝胶,每次15分钟,共两次。
- 使用选择的荧光DNA染料对芯片进行染色(即,SYBR Gold,溴化乙锭)按照厂家推荐的步骤进行。使用荧光显微镜成像。
7. 数据分析
使用标准彗星图像分析软件(如 Komet 5.5)分析彗星图像。
结果
在本示例中,我们描述了利用 H2O2 诱导氧化损伤后,定量检测人淋巴母细胞系细胞初始 DNA 损伤水平的方法。为评估 H2O2 诱导的碱基损伤和单链断裂,采用碱性彗星实验条件。在加样完成并将细胞包埋于琼脂糖覆盖层后,将一个无底部的 96 孔板压在表面,从而在芯片上形成 96 个独立区域。每个 96 孔均可加入不同类型或浓度的化学物质。本实验中使用了四种不同浓度的 H2O2,并以 1× PBS 作为阴性对照。阵列化彗星的代表性图像如图 1A所示,其中未经处理(顶部)、50 μM(中部)和 100 μM(底部)H2O2 处理的样本显示出不同程度的彗星尾部。彗星图像的分析可使用市售软件进行,通常基于每个彗星尾部的总荧光强度和迁移距离来量化损伤水平。通常每种条件下分析 50 至 100 个彗星,并计算中位数值(尾部 DNA 百分比或尾长)。图 1B 展示了 TK6 淋巴母细胞系在暴露于四种不同浓度 H2O2 后,由彗星实验分析得到的尾部 DNA 百分比剂量反应曲线。独立实验之间结果的一致性表明,该方法在评估细胞经不同水平化学处理后的 DNA 损伤反应方面具有良好的可靠性。
了解样本间的变异情况(例如,于大孔板之间以及同一实验的重复组之间,绘制了样本间和实验间变异性的图表 图2A 和 2B 分别。在每次实验中,96孔芯片的每个孔相当于一个不同的样本,因此孔间差异反映了该装置的样本间变异。在此,将TK6细胞接种于96孔芯片的12个孔中,并以相同剂量的H处理2O2 处理后立即裂解。所有其他实验步骤均平行进行,并绘制每个大孔中至少50个彗星的中位数。 图 2A中位数的平均值为尾部DNA含量77.53%,标准差为3.99%。根据这些数据计算得出,样本间的变异系数为5.2%,显著低于传统检测方法,表明本检测方法的稳健性显著提高6,16为了研究该检测方法的可重复性,我们将TK6细胞暴露于芯片中的 75 μM H2O2 并分析DNA损伤的即时水平。该实验重复了六次,每次实验的数据均被绘制成图 图2B在相同实验条件下,我们获得的结果范围为41.76%至57.87%,如图中灰色柱所示。六次重复实验的平均值为49.57%,平均值的标准误差仅为2.04%。重复实验间变异程度较低,表明在此新型装置上进行的彗星实验具有高度可重复性。
为评估修复动力学,处理后的细胞在新鲜培养基中进行DNA修复。在不同时间点裂解大孔板,可揭示DNA损伤随时间的变化情况。示例如下所示 图3在本实验中,TK6细胞首先被包封在芯片中,随后进行处理 50 μM H2O2,暴露后允许修复长达60分钟。分别在0、20、45和60分钟时间点裂解细胞。不同时间点的代表性彗星图像如下所示 图3A,随时间变化的DNA损伤水平变化绘制成图 图3B. 该数据表明,几乎所有损伤在 H 处理后 45 分钟内均被修复2O2 处理。多种变量可能影响修复速率,包括所使用的细胞系类型和化学试剂。因此,研究人员可对方案进行调整(即,以延长修复时间,满足其研究中的额外需求。在此,我们提供了使用该芯片进行修复实验的另一个示例,其中TK6细胞被暴露于另一种不同的遗传毒性试剂 N-甲基-N’-硝基-N-N-亚硝基胍(MNNG)是一种烷化剂,可诱导产生包括7-甲基鸟嘌呤和3-甲基腺嘌呤在内的碱基损伤。这些损伤可通过自发脱嘌呤或由DNA糖基化酶催化切除而转化为无碱基位点(abasic site)。所产生的无碱基位点可在碱性条件下发生断裂,从而在芯片上被检测到。初始暴露后,DNA损伤显著增加,表现为明显的长尾现象;随着时间推移,细胞通过修复机制恢复完整的DNA结构,尾部长度随之减少。尽管烷化损伤和氧化损伤主要均由碱基切除修复通路进行修复,但二者所产生的损伤数量及参与修复的蛋白质存在差异。这些差异可能导致向无碱基位点转化的速率不同,以及所产生的无碱基位点在修复速率上也有所不同。在 图4, TK6细胞在暴露于0.1、1和 3 µg/ml MNNG处理后的结果如图所示。在本实验中,我们将实验时间延长至暴露后2小时,因为与H相比,MNNG诱导的损伤持续时间更长,且被清除的速度较慢2O2诱导的损伤
在中性条件下分析DNA双链断裂(DSBs)的方法与在碱性条件下分析单链损伤的方案非常相似。为了显示初始损伤水平,将TK6细胞暴露于不同剂量的γ射线辐照(gIR),随后对所得细胞进行裂解,并在中性pH条件下进行电泳(图5A)。值得注意的是,此时彗尾的形态与碱性检测条件下的形态有所不同。在此检测中,要观察到可检测的DNA片段,所需的电离辐射(IR)剂量显著更高(0–100 Gy),远高于在碱性条件下观察损伤所需的剂量。此外,我们发现,在使用中性彗星实验时,尾长是反映DNA损伤程度最敏感的参数7。剂量-反应曲线的分析结果如图5B所示。细胞中DNA双链断裂的修复过程也可通过该方法进行评估,Weingeist et. al.7已对此有所报道。综上所述,中性CometChip为高通量分析DNA双链断裂提供了一种有价值的工具。

图1. H2O2 使用碱性彗星实验检测TK6细胞的剂量反应。 (A未处理的TK6淋巴母细胞(上)和经处理的TK6细胞的阵列式微孔彗星图 50 μM (中)和 100 μM (底部)H2O2 20 分钟 4 °C比例尺为 100 μm. (B) H2O2 TK6细胞在不同浓度H处理下的剂量反应2O2每个数据点均为三次独立实验的平均值,每次实验获取至少50个单个彗星的中位数尾部DNA百分比。误差线表示三次独立实验的均值标准误。 请点击此处以查看此图的放大版本。
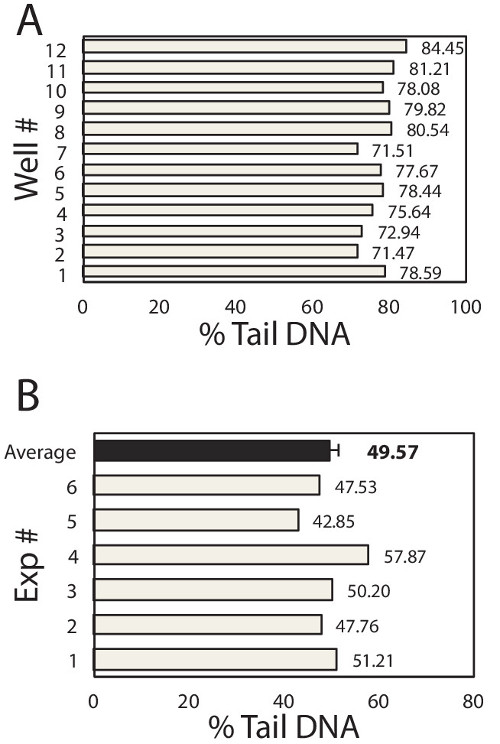
图2. 样本间与实验间变异性 (A样本间差异。将TK6人淋巴母细胞加载至96孔芯片的12个孔中。每个孔均接受相应处理。 100 μl 的 50 μM H2O2 20 分钟 4 °C细胞立即裂解并检测尾DNA百分比。此处显示每孔的数据。每个方框代表每孔至少50个单独彗星的中位数。12孔的平均值为77.53%,标准差为3.99%,变异系数计算为5.2%。B实验间变异。将TK6人淋巴母细胞加载至96孔芯片中,进行暴露处理 100 μl 的 75 μM H2O2 20 分钟 4 °C细胞立即裂解并检测尾部DNA百分比(% Tail DNA)。该实验重复了6次,每次重复的数据以灰色柱状图表示。每个方框代表每次重复实验中至少100个单个彗星图像的尾部DNA百分比中位数。6次重复的平均值为49.57%,以黑色柱状图表示。6次重复的标准差为4.99%,均值的标准误差计算为2.04%,在图中以误差线表示。

图3. TK6淋巴母细胞中H2O2诱导损伤的修复。 (A)修复实验的示意图及代表性彗星图像。TK6细胞经损伤试剂处理后,在37 °C培养基中进行修复,随后裂解。 (B)TK6细胞在4 °C条件下经50 μM H2O2处理20分钟后修复动力学。每个数据点均为三次独立实验的平均值,每次实验获取至少50个单独彗星的尾部DNA中位百分比。误差线表示重复实验所得的均值标准误。 请点击此处查看该图的高清版本。
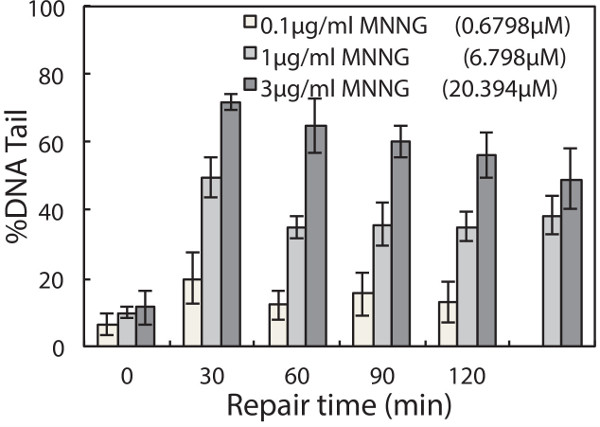
图4. TK6淋巴母细胞中MNNG诱导损伤的修复。 TK6细胞在4 °C下分别用0.1、1和3 µg/ml的MNNG处理30分钟,随后在37 °C培养基中进行修复,暴露后最长修复时间为120分钟。每次独立实验至少分析50个单个彗星图像,获得尾部DNA中位百分比。误差线表示三次独立实验的平均值标准误。
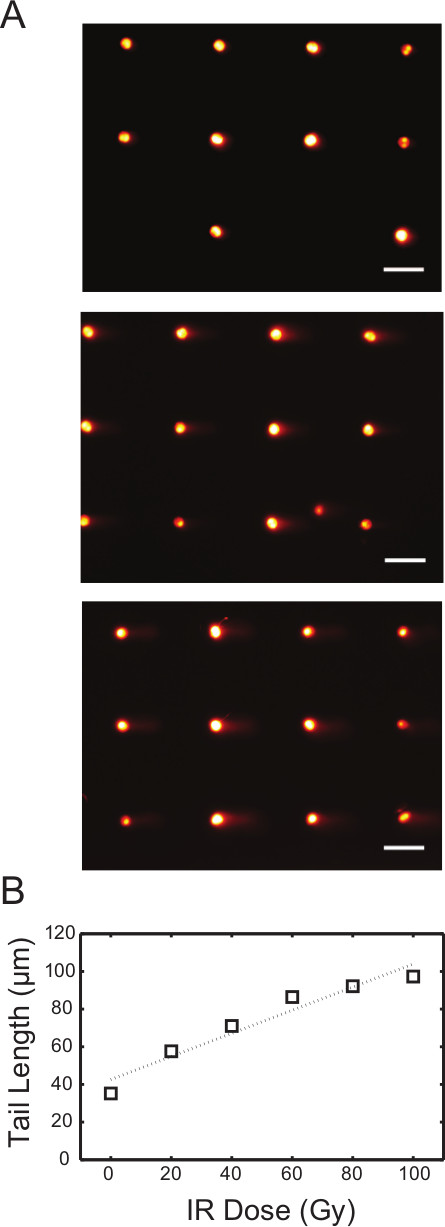
图5. 采用中性彗星实验检测TK6细胞对电离辐射的剂量反应。 (A)未经处理的TK6淋巴母细胞(上)、经40 Gy(中)和80 Gy(下)γ射线照射的TK6细胞的阵列微孔彗星图像。比例尺为100 μm。 (B)TK6细胞在不同剂量γ射线照射下的电离辐射剂量反应。每个数据点代表来自芯片上六个大孔合并的至少300个彗星的中位尾长(μm)。 请点击此处查看该图的放大版本。
讨论
环境中普遍存在的基因毒素以及人体细胞内部产生的基因毒素,不可避免地对细胞DNA造成应激和损伤。事实上,据估计,在稳态下的人类细胞中存在数千个DNA损伤位点18。了解人类DNA损伤的易感性及修复动力学,不仅有助于基础研究,也对药物开发具有重要意义。具有讽刺意味的是,尽管DNA损伤可促进癌症发生,但DNA损伤剂却被大量用于癌症治疗,因此有关DNA损伤与修复的知识对个体化医学具有重要价值。CometChip是一种新型研究装置,利用微加工技术对已有较长历史的DNA损伤检测方法进行了革新。该芯片基于传统彗星试验(comet assay)的相同原理,显著提高了检测通量和实验重复性。本文描述了使用该芯片的方法。为阐明其应用价值和稳健性,我们展示了多个实验结果,包括利用该芯片评估多种不同DNA损伤剂所诱导的损伤,以及用于评价DNA修复能力的结果。综合来看,本文所呈现的结果为该芯片的使用提供了有益信息,并展示了其在DNA损伤与修复研究中的广泛适用性。
本方案中最重要的步骤之一是实现有效的细胞加载。该系统已测试过多种细胞系,包括悬浮细胞和贴壁细胞。加载效率受多种因素影响,如细胞类型、细胞大小、加载浓度和时间。其中,悬浮细胞系(如淋巴母细胞样细胞)最容易操作。细胞悬液的浓度可在每96孔104至106个细胞之间调整,通常加载在15–30分钟内完成。较高的细胞密度有助于提高加载效率,并缩短细胞沉降至微孔所需的时间。
贴壁细胞的上样参数可能与悬浮细胞不同。研究发现,中国仓鼠卵巢(CHO)细胞等细胞系在经胰蛋白酶消化后,其上样效率与悬浮细胞相似,因此可采用类似的上样条件。而其他类型的细胞,例如在悬浮状态下容易形成细胞聚集体的肿瘤细胞,则需要额外的处理步骤。在上样前,将细胞悬液通过单细胞滤器过滤,并在悬浮培养基中添加胰蛋白酶,可抑制细胞簇的形成。最后,在上样时间方面,将贴壁细胞系捕获至微孔中所需的时间可能从20分钟到1小时不等。因此,建议用户在开展后续实验前,先进行预实验以确定最佳的上样条件。上样效率可在明场显微镜下观察评估,或更准确地通过使用DAPI或其他DNA染料对包封的细胞进行染色后,在荧光显微镜下观察确认。
该方法和芯片的一个主要优势在于其多功能性。首先,研究人员不受特定工作细胞浓度的限制,因为过量的细胞会被洗去,而微阵列可确保彗星密度均匀。其次,微孔可制成不同尺寸,以适应不同类型大小的细胞。在单个微孔中捕获多个细胞的情况下,多细胞彗星能够实现自我校准,其结果与单细胞彗星相比具有一致性6,7。将细胞以微阵列方式排布的另一个优点是,所有彗星均位于相同的焦平面上且位置固定,从而减少了因彗星失焦引起的噪声,并有利于自动化成像与分析。CometChip在通量和灵敏度方面的显著提升,使其能够广泛应用于大规模研究。综上所述,该芯片为研究人员、毒理学家、临床医生和流行病学家提供了评估DNA损伤的有力工具。
尽管彗星试验在检测多种DNA损伤方面以其优异的灵敏度而著称,但该试验也存在特异性较低的问题。使用本方案可显著提高试验的可重复性和通量,但并未在特异性方面实现改进。尽管如此,已有报道表明将该试验与其他方法联用可有效提高特异性。其中一个例子是引入纯化的损伤特异性酶。这些酶可将原本无法检测的碱基损伤转化为可检测的链断裂和无碱基位点1,19-21。一个广泛应用的例子是修复内切酶甲酰胺嘧啶-DNA糖基化酶(Fpg),该酶可揭示氧化性DNA修饰19,22。由于酶消化步骤是在细胞裂解后进行的,因此该系统可按照传统琼脂糖载玻片的方式处理,无需对实验方案进行任何修改。虽然此处未详细描述具体操作步骤,但过去已有许多传统彗星试验使用者采用过该方法,相关实验方案可轻易查得。在之前的一项研究中,我们曾利用该方法鉴定出荧光灯照射所诱导的DNA损伤22。
该方法的主要优势在于其高通量特性,使得此前几乎无法实现的研究成为可能。在同一平台上处理96个样本的能力不仅减少了人力和时间消耗,还降低了实验误差,显著提高了实验的可重复性。样本间的变异程度明显低于传统载玻片之间的变异,后者可能比该芯片观察到的变异高出两倍6,7。降低的背景噪声还带来了更高的检测灵敏度,从而能够检测出样本间更细微的差异。由于该装置采用标准的96孔板格式,因此可与常规科研设备和高通量筛选(HTS)技术兼容。假设一项研究需要评估100个样本,而普通研究人员在数天内大约只能处理30张玻璃载玻片。若每个样本需设置三个重复,则完成此类研究大约需要一个月时间,且不可避免地会受到样本间变异的影响。相比之下,使用该芯片处理100个条件(每个条件设三个重复)仅需少数几块芯片,且可在三天内完成。这种通量上的显著提升,为此前难以实现的研究开辟了新的可能。
本文所述方案介绍了进行标准彗星实验的基本步骤,以及使用CometChip平台所需的改进步骤。该实验能够检测固有的DNA损伤水平及随后的修复反应,因此在多种生物学和临床应用中具有重要意义。有关特定化学暴露对基因组影响的信息有助于疾病的预防和治疗。此外,人们也高度关注个体之间DNA损伤敏感性和修复能力的差异23,24。该技术可满足此类大规模研究所需的通量要求。了解个体间的差异对于识别易感人群以及设计个体化的治疗或预防策略至关重要。综上所述,本文介绍的技术提供了一个高通量、客观且定量的DNA损伤分析平台,有望在不久的将来成为标准方法。
披露
CometChip 已根据包含 Wood、Weingeist、Bhatia 和 Engelward 的专利申请,授权给 Trevigen 公司。
致谢
本工作主要由5-UO1-ES016045项目资助,部分由1-R21-ES019498和R44-ES021116项目资助。DMW得到了环境毒理学T32-ES007020培训基金(NIEHS)的支持。设备由环境健康科学中心P30-ES002109提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| UltraPure LMP 琼脂糖(低熔点) | Invitrogen | 16520 | 多家供应商 |
| 杜尔贝科氏磷酸盐缓冲液 (PBS) 1x | Gibco by life technologies | 14190 | 多家供应商 |
| 结晶 NaCl | Macron Chemicals | 7581-06 | 多家供应商 |
| 结晶 Na2EDTA | Macron Chemicals | 4931-04 | 多家供应商,刺激性 |
| 结晶 Tris(碱) | Sigma-Aldrich | T1503 | 多家供应商,刺激性 |
| 结晶 Tris(酸) | J.T.Baker | 4106 | 多家供应商 |
| 结晶 N-月桂酰肌氨酸 | Sigma-Aldrich | L9150 | 多家供应商,吸入高毒,刺激性 |
| Triton X-100 | Sigma-Aldrich | X100 | 多家供应商,摄入有害,刺激性 |
| 二甲基亚砜 (DMSO) | Sigma-Aldrich | D4540 | 多家供应商,易燃液体,靶器官效应 |
| 结晶 NaOH | Macron Chemicals | 7708-06 | 多家供应商,腐蚀性 |
| 盐酸 | VWR | BDH3871 | 多家供应商,腐蚀性 |
| 结晶硼酸 | Sigma-Aldrich | B6768 | 多家供应商,靶器官效应,致畸物,生殖危害 |
| CometChip | Trevigen | 正在开发用于分发,需直接联系 Trevigen 获取所需材料 | |
| 1 孔培养皿 | Thomas Scientific | 73521-420 | |
| 无底 96 孔板 | VWR | 655000-06 | |
| 1.5 英寸文件夹夹具 | Staples | 多家供应商 | |
| 玻璃板 | Tag Hardware | 根据 96 孔板尺寸定制 | |
| Owl 水平电泳系统 | VWR | 27372-131 | 多家供应商 |
| PowerPac Basic 电源供应器 | Bio-Rad | 164-5050 | 多家供应商 |
参考文献
- Collins, A. R. The Comet Assay for DNA Damage and Repair Principles, Applications, and Limitations. Molecular biotechnology. 26 (3), (2004).
- Olive, P. L., Banáth, J. P. The comet assay a method to measure DNA damage in individual cells. Nature. 1 (1), 23-29 (2006).
- Ostling, O., Johanson, K. J. Microelectrophoretic study of radiation induced DNA damages in individual mammalian cells. Biochemical and biophysical research communications. 123 (1), 291-298 (1984).
- Singh, N. P., McCoy, M. T., Tice, R. R., Schneider, E. L. A simple technique for quantitation of low levels of DNA damage in individual cells. Experimental cell research. 175 (1), 184-191 (1988).
- Collins, A. R. The comet assay for DNA damage and repair: principles, applications, and limitations. Molecular biotechnology. 26 (3), 249-261 (2004).
- Wood, D. K., Weingeist, D. M., Bhatia, S. N., Engelward, B. P. Single cell trapping and DNA damage analysis using microwell arrays. Proceedings of the National Academy of Sciences of the United States of America. 107 (22), 10008-10013 (2010).
- Weingeist, D. M., et al. Single-cell microarray enables high-throughput evaluation of DNA double-strand breaks and DNA repair inhibitors. Cell cycle. 12 (6), 907-915 (2013).
- Brendler-Schwaab, S., Hartmann, A., Pfuhler, S., Speit, G. The in vivo comet assay: use and status in genotoxicity testing. Mutagenesis. 20 (4), 245-254 (2005).
- Witte, I., Plappert, U., de Wall, H., Hartmann, A. Genetic toxicity assessment: employing the best science for human safety evaluation part III: the comet assay as an alternative to in vitro clastogenicity tests for early drug candidate selection. Toxicological sciences : an official journal of the Society of Toxicology. 97 (1), 21-26 (2007).
- Valverde, M., Rojas, E. Environmental and occupational biomonitoring using the Comet assay. Mutation research. 681 (1), 93-109 (2009).
- Møller, P. Genotoxicity of environmental agents assessed by the alkaline comet assay. Basic & clinical pharmacology & toxicology. 96, Suppl 1.. 1-42 (2005).
- Dusinska, M., Collins, A. R. The comet assay in human biomonitoring: gene-environment interactions. Mutagenesis. 23 (3), 191-205 (2008).
- Dhawan, A., Bajpayee, M., Parmar, D. Comet assay: a reliable tool for the assessment of DNA damage in different models. Cell biology and toxicology. 25 (1), 5-32 (2009).
- McKenna, D. J., McKeown, S. R., McKelvey-Martin, V. J. Potential use of the comet assay in the clinical management of cancer. Mutagenesis. 23 (3), 183-190 (2008).
- Cadet, J., Douki, T., Ravanat, J. -L. Oxidatively generated damage to the guanine moiety of DNA: mechanistic aspects and formation in cells. Accounts of chemical research. 41 (8), 1075-1083 (2008).
- Forchhammer, L., et al. Variation in the measurement of DNA damage by comet assay measured by the ECVAG† inter-laboratory validation trial. Mutagenesis. 25 (2), 113-123 (2010).
- Olive, P. L., Wlodek, D., Banáth, J. P. DNA double-strand breaks measured in individual cells subjected to gel electrophoresis. Cancer research. 51 (17), 4671-4676 (1991).
- Frelon, S., Douki, T., Ravanat, J. L., Pouget, J. P., Tornabene, C., Cadet, J. High-performance liquid chromatography--tandem mass spectrometry measurement of radiation-induced base damage to isolated and cellular DNA. Chemical research in toxicology. 13 (10), 1002-1010 (2000).
- Georgakilas, A. G., Holt, S. M., Hair, J. M., Loftin, C. W. Measurement of oxidatively-induced clustered DNA lesions using a novel adaptation of single cell gel electrophoresis (comet assay). Current protocols in cell biology. , Suppl Chapter 6, Unit 6.11.. (2010).
- Fortini, P., Raspaglio, G., Falchi, M., Dogliotti, E. Analysis of DNA alkylation damage and repair in mammalian cells by the comet assay. Mutagenesis. 11 (2), 169-175 (1996).
- Collins, A. R., Dusinská, M., Horská, A. Detection of alkylation damage in human lymphocyte DNA with the comet assay. Acta biochimica Polonica. 48 (3), 611-614 (2001).
- Ge, J., et al. Standard fluorescent imaging of live cells is highly genotoxic. Cytometry Part A : the journal of the International Society for Analytical Cytology. 83 (6), 552-560 (2013).
- Trzeciak, A. R., Barnes, J., Evans, M. K. A modified alkaline comet assay for measuring DNA repair capacity in human populations. Radiation research. 169 (1), 110-121 (2008).
- Marcon, F., Andreoli, C., Rossi, S., Verdina, A., Galati, R., Crebelli, R. Assessment of individual sensitivity to ionizing radiation and DNA repair efficiency in a healthy population. Mutation research. 541 (1-2), 1-8 (2003).
重印与许可
