膜运输涉及蛋白质从质膜向细胞内部的转运即 内吞作用)随后被运输至溶酶体进行降解或被运送至质膜进行再循环。本文所述方法旨在研究质膜蛋白的内吞作用及再循环过程。
本文内容
摘要
摘要
膜运输涉及蛋白质从质膜向细胞内部的转运即 内吞作用)随后转运至溶酶体进行降解,或转运至质膜进行再循环。基于细胞的L-谷胱甘肽保护实验可用于研究定位于细胞表面的蛋白受体、通道蛋白、转运蛋白和黏附分子的内吞与再循环过程。内吞实验需在4 ºC条件下,使用含有二硫键和N-羟基琥珀酰亚胺(NHS)酯的细胞膜不通透性生物素标记细胞表面蛋白, 一个膜运输不发生的温度。通过在37 ºC孵育诱导生物素标记的质膜蛋白内吞。随后,温度再次降至4 ºC以终止内吞运输,并用L-谷胱甘肽还原仍停留在质膜上的蛋白所共价连接的生物素中的二硫键。此时,只有被内吞的蛋白仍受到L-谷胱甘肽的保护,因而保持生物素标记。细胞裂解后,利用链霉亲和素琼脂糖分离生物素标记的蛋白,从琼脂糖上洗脱,再通过蛋白质印迹检测目标生物素化蛋白。在回收实验中,细胞经生物素标记后于37 °C孵育,使内吞囊泡负载生物素化蛋白,随后在4 ºC用L-谷胱甘肽还原仍停留在质膜上的蛋白所共价连接的生物素中的二硫键,步骤同内吞实验。接着,细胞再次于37 °C孵育,使来自内吞囊泡的生物素化蛋白回收至质膜。然后将细胞于4 ºC孵育,并用L-谷胱甘肽还原已回收至质膜的蛋白所连接的生物素中的二硫键。未被L-谷胱甘肽还原而保留生物素标记的蛋白,即为未回收至质膜的蛋白。
引言
所有活细胞都通过将货物(如细胞外配体、微生物、营养物质、跨膜蛋白和脂质)从质膜转运至内吞囊泡的方式来处理信息即 内吞作用)。一个称为再循环的相反过程可平衡内吞作用,将大部分被内吞的膜和货物返回至细胞表面。 内吞作用与再循环之间的平衡调控质膜组成,并为细胞提供在时间和空间上解析的信息。内吞作用和再循环是多种细胞功能的主要调控机制,包括营养摄取与代谢、发育、增殖、分化与极性、重编程、迁移、细胞黏附与迁移、胞质分裂以及神经传递1-3内吞和再循环途径具有高度动态性和协调性,可使细胞更新相当于整个细胞膜的物质 质膜 1-5x 每小时
基于细胞的L-谷胱甘肽保护实验可用于研究上皮细胞和非上皮细胞中跨膜蛋白(包括受体、通道、转运蛋白和黏附分子)的内吞作用和再循环过程4-8。我们先前已研究了囊性纤维化跨膜电导调节因子(CFTR)在 人呼吸道上皮细胞和HEK293细胞中的内吞与再循环9-15。本文所述的基于生物素标记的实验方法经过优化,适用于在半透性支持物上极化培养的上皮细胞中的内吞和再循环研究。这些方案可经适当修改,用于在塑料培养皿中培养的上皮细胞或非上皮细胞中蛋白质的内吞与再循环研究。图1 和2展示了在上皮细胞和非上皮细胞中进行内吞和再循环实验的示例。
内吞实验按先前所述方法进行9-15细胞在胶原蛋白包被的半透性生长支持物上进行培养11,14或者,细胞也可在胶原蛋白包被的塑料培养皿中进行培养10,15细胞被迅速冷却至 4 ºC以终止膜运输,并在4℃下标记质膜蛋白 °C与细胞膜不可渗透的生物素。生物素与 ε-赖氨酸残基的氨基,且二硫键为可被巯基裂解的。生物素标记后,细胞在37℃孵育 °C,以诱导蛋白质转运并使内吞囊泡载荷,持续 2.5、5.0、7.5 或 10 分钟。随后,将细胞冷却至 4 °C,与质膜蛋白共价结合的生物素中的二硫键通过L-谷胱甘肽(GSH)还原。在此实验步骤中,只有从质膜内吞进入细胞的蛋白质受到保护而免受GSH作用,因此仍保持生物素化。细胞保持在4 °37℃孵育前生物素化后的C ºC 或 GSH 处理将用于确定时间为零时 CFTR 的生物素化量。剩余细胞置于 4 °37℃孵育前的生物素化处理后的C ºC,但经GSH处理的样本可用于确定二硫键还原的效率。按照上述处理后,裂解细胞,通过链霉亲和素琼脂糖分离生物素化蛋白,将其洗脱至SDS样品缓冲液中,并通过SDS-PAGE分离。利用Western印迹法检测生物素化样品中目标蛋白。在4℃下生物素化蛋白的量 º时间零点的 C(不含 37 ºC 温度下处理后的剩余生物素化蛋白量被视为 100%。经 GSH 处理后在 4 ºC 被视为背景值,需从升温至 37℃ 后仍保持生物素标记的蛋白量中扣除 º在不同时间点测定。蛋白质内吞作用通过减去背景值后计算,表示为在37℃孵育后各时间点生物素标记蛋白质的百分比 º与零时刻存在的生物素化蛋白量相比。
回收实验按先前所述方法进行11,16。细胞培养在胶原蛋白包被的半透性生长支持膜上11。或者,细胞也可培养在胶原蛋白包被的塑料培养皿上13。生物素标记后,将细胞升温至 37 °C,使内吞囊泡负载生物素化蛋白。第一次在 37 ºC 孵育的时间点由目标蛋白内吞信号在线性增加阶段达到最大值时确定。该时间具有蛋白特异性,并可能依赖于细胞类型和细胞培养条件。根据我们的经验,CFTR 的内吞在 5.0 或 7.5 分钟时达到最大值13,14(图 1 和 2)。随后,立即将细胞冷却至 4 °C,并用 GSH 还原连接在质膜 蛋白上的生物素中的二硫键。接下来,细胞可直接裂解以测定内吞的目标蛋白量,或再次升温至 37 °C 并孵育不同时间,使内吞的生物素化目标蛋白回收至质膜。然后再次将细胞冷却至 4 °C,并用 GSH 还原回收至质膜的蛋白上所连生物素的二硫键。目标蛋白的回收率通过第一次和第二次 GSH 处理后生物素化蛋白量的差值来确定。
内吞和循环实验的可行性取决于多个因素。首先,形成单层细胞是先决条件,不能形成单层或以多层方式生长的细胞不适合本论文所述的实验。其次,目标蛋白在细胞表面的丰度以及是否存在可用于蛋白质印迹检测的抗体至关重要。我们建议首先在全细胞裂解液(WCL)中确定该蛋白的稳态丰度。第三,应测试对特定细胞表面蛋白进行生物素标记的能力。生物素可连接到赖氨酸残基上,因此生物素标记的效率部分取决于蛋白胞外域中赖氨酸残基的数量。因此,我们建议筛选蛋白序列,以确定其胞外域中是否存在赖氨酸残基。由于蛋白折叠的影响,并非所有胞外域中的赖氨酸残基对生物素都具有同等可及性。因此,应在稳态条件下进行蛋白生物素标记,随后进行蛋白质印迹分析,以不仅确定目标蛋白在细胞表面的稳态丰度,同时评估基于生物素标记的实验对该目标蛋白的可行性。
本方案经过优化,适用于在气液界面培养于24 mm半透性生长支持物上的人气道上皮细胞CFBE41o-中研究野生型CFTR的内吞和再循环过程9,10,13-15。CFTR定位于顶膜区域;因此,本方案描述了顶膜区域的生物素标记。若需研究定位于基底外侧膜区域的蛋白质的内吞与再循环,则需对基底外侧膜区域进行生物素标记。本文所述内吞实验方案包含6个条件:仅生物素标记(BT = 零时点;样品a);GSH对照(GSH;样品b);以及2.5、5.0、7.5或10分钟的内吞时间点(样品c;表1)。方案中内吞时间点的数量和(或)持续时间可根据需要进行调整。
在确定目的蛋白的内吞作用达到内吞信号线性增加阶段最大值的时间点后,进行再循环实验。该时间点将用于在诱导再循环之前,使内吞囊泡负载目的蛋白。该时间因蛋白而异,并可能因细胞类型和培养条件不同而有所差异15。我们先前已证实,在稳定表达CFTR的人气道上皮细胞CFBE41o-中,CFTR的内吞作用在7.5 min时达到平台期15。相比之下,在稳定表达CFTR的HEK293细胞中,CFTR的内吞作用在5.0 min时达到平台期13。本论文所述的再循环实验方案包含5个条件:仅生物素标记(BT = 时间零点;样品a);GSH对照(GSH;样品b);5.0 min内吞(Endo;样品c);5.0 min内吞后分别进行2.5或5.0 min再循环(Rec;样品d;表2)。实验方案中再循环时间点的数量和/或持续时间可根据需要进行调整。
方案
1. 接种细胞
- 用10% I型胶原预处理24 mm滤膜(在最低必需培养基(MEM)中配制10% I型胶原,将胶原溶液覆盖整个滤膜表面,在室温下紫外灯照射孵育30分钟,随后在37 ºC细胞培养箱中孵育1小时,孵育结束后吸除多余胶原溶液)。
- 配制细胞培养基(MEM用CO2气体饱和20分钟,含10%胎牛血清(FBS)、50 U/ml青霉素、50 U/ml链霉素、2 mM L-谷氨酰胺、0.5 μg/ml嘌呤霉素)。
- 将CFBE41o-细胞分别接种于六片24 mm滤膜上用于内吞和再循环实验,接种密度为1 × 10⁶/滤膜。
- 接种后次日移除顶端培养基,此后仅从基底侧每日换液。
- 实验前24小时使用不含筛选抗生素的培养基进行换液。在接种后6–10天内对CFBE41o-细胞进行实验。
2. 实验前准备(内吞作用与循环实验的通用步骤)
- 在冷室中设置工作台空间。除37 °C孵育步骤外,内吞和再循环实验均应在冷室中进行。含有24 mm滤膜的培养板应直接放置在冷室工作台面上。
- 开启37 °C培养箱。
- 配制500 ml PBS++(Dulbecco's磷酸盐缓冲液(PBS),含1 mM氯化镁和0.1 mM氯化钙),调节pH至8.2,其中250 ml置于37 °C培养箱中预热,另250 ml保存于冷室4 °C备用。
- 在6 孔板 的孔中加入PBS++(pH 8.2,37 °C),并置于37 °C培养箱中保温。
- 在另一块6 孔板的孔中加入PBS++(pH 8.2,4 °C),并置于冷室4 °C保存。
- 配制100 ml PBS++(pH 8.6),冷却至4 °C,并保存于冷室中。
- 在生物素标记步骤前30分钟内,用PBS++(pH 8.2,4 °C)配制含二硫键和NHS酯的生物素溶液,浓度为0.8 mg/ml(生物素溶液的体积应完全覆盖滤膜的整个表面);建议每24 mm滤膜使用1.5 ml。
- 用去离子水配制100 ml GSH缓冲液(含75 mM氯化钠、1 mM氯化镁、0.1 mM氯化钙、50 mM GSH、80 mM氢氧化钠和10%胎牛血清),调节pH至8.6后冷却至4 °C。GSH和氢氧化钠应在实验前立即加入。检查pH并调节至8.6;氢氧化钠可中和羧基并使谷胱甘肽中一半的半胱氨酸残基去质子化。该缓冲体系在半胱氨酸的pKa值(8.6)处具有强缓冲能力4。(再循环实验需配制相同体积的GSH缓冲液)。
- 配制50 ml裂解缓冲液(含25 mM HEPES,pH 8.2,1% (v/v) Triton X-100,10% (v/v)甘油),置于4 °C保存;每50 ml裂解缓冲液中加入蛋白酶抑制剂混合物(Complete protease inhibitor cocktail),混匀后冷却至4 °C;加入蛋白酶抑制剂后需检查pH,因可能出现pH下降。
- 配制含100 mM DTT的Laemmli上样缓冲液。
- 配制1x电泳缓冲液(取100 ml 10x电泳缓冲液与900 ml水混合)。
- 配制1x转膜缓冲液并冷却至4 °C(取100 ml不含十二烷基硫酸钠(SDS)的10x转膜缓冲液,加入200 ml甲醇和700 ml水)。
3. 内吞作用实验
CFTR 极化至顶膜区域;因此,本方案描述了顶膜区域的生物素标记。若需研究极化至基底外侧膜区域蛋白的内吞作用,则需要对基底外侧膜区域进行生物素标记。
工作流程: 细胞表面蛋白在4 ºC下生物素化 → 升温至37 ºC使内吞囊泡载入生物素化蛋白 → 降温至4 ºC以终止内吞运输 → 还原仍位于细胞表面的生物素化蛋白上连接的二硫键 → 细胞裂解 → 分离生物素化(即 内吞蛋白与链霉亲和素琼脂糖结合 → 从链霉亲和素琼脂糖中洗脱生物素标记蛋白 → 蛋白质电泳及蛋白质印迹分析
- 从细胞培养孵育箱中取出含有六个24 mm滤膜的培养板(表1:样品a-c),迅速转移至预冷(4 ºC)且置于冰上的PBS++(pH 8.2)培养板中。
- 加入PBS++使其溢出至顶侧表面,快速覆盖整个滤膜表面。将培养板置于冰上并转移至冷室,放置于实验台面。
- 迅速将培养板倒置,用手固定滤膜防止脱落,以去除PBS++。随后在顶侧和基底侧各加入约2 ml PBS++。
- 用约2 ml冷PBS++(pH 8.2)洗涤滤膜3次,每次2分钟。 每次从一侧(顶侧或基底侧)吸除洗涤液,再向同侧加入新鲜PBS++(pH 8.2)。
- 吸除最后一次洗涤液,在基底侧加入1 ml PBS++(pH 8.2),在顶侧加入1.5 ml生物素缓冲液,避光孵育30分钟。避免缓冲液溢至对侧。
- 从顶侧吸除生物素缓冲液,并用PBS++(pH 8.2)洗涤3次,每次2分钟。
- 另取一个培养板,将其中两个滤膜(表1:样品a和b)暂存其中,在其顶侧和基底侧各加入约2 ml PBS++(pH 8.2),并置于冷室中保存。其余4个滤膜保留在同一培养板中(表1:样品c),在每个滤膜的顶侧和基底侧各加入约2 ml PBS++(pH 8.2)。将该培养板置于冰上,并移至37 ºC孵育箱旁的实验台面。
- 迅速将滤膜从冰上转移至37 ºC孵育箱中已预热的PBS++(pH 8.2)培养板内,分别精确孵育2.5、5.0、7.5或10分钟,确保每个滤膜表面完全被温热的PBS++(pH 8.2)覆盖。
- 在孵育期间,将冰上的培养板中四个孔完全填满冷(4 ºC)PBS++(pH 8.2)。
- 在指定孵育时间结束后,将每个滤膜倒置以排尽温热(37 ºC)的PBS++(pH 8.2),并迅速转移至冰上的培养板中。立即加入冷PBS++(pH 8.2),使其溢出覆盖顶侧表面,快速完全覆盖每个滤膜。
- 将滤膜转移至冰上后,将培养板移至冷室并放置于实验台面。
- 吸除所有滤膜(样品a-c)两侧的PBS++,在基底侧加入1 ml PBS++(pH 8.6)。在滤膜a的顶侧加入1.5 ml PBS++(pH 8.6)(表1:样品a)。
- 使用GSH缓冲液(pH 8.6)还原滤膜b和c(表1:样品b和c)中与顶侧膜蛋白结合的生物素的二硫键。
- 在顶侧加入1.5 ml GSH缓冲液,孵育15分钟,并重复此步骤六次。
- 在基底侧保留1 ml PBS++(pH 8.6)。避免缓冲液溢至基底侧。
- 完成步骤3.15后,用PBS++(pH 8.2)短暂洗涤所有滤膜(表1:样品a、b和c)2次,从顶侧和基底侧吸除洗涤液,将含滤膜的培养板倾斜45°角以排尽残留液体,再次吸除。
- 将培养板平放于实验台面,在每个滤膜的顶侧加入500 μl裂解缓冲液,在冷室中振荡孵育15分钟。
- 用橡胶刮棒刮取细胞,并收集至1.5 ml离心管中。
- 在4 °C下以14,000 × g离心10分钟。
- 将上清液转移至新的1.5 ml离心管中,弃去沉淀。此时上清液称为全细胞裂解液(WCL)。
- 向50 μl WCL(相当于总WCL体积的10%)中加入100 μl含DTT的Laemli样品缓冲液,在37 °C孵育30分钟 (WCL样品)。
- 准备200 μl 50%链霉亲和素琼脂糖分装液,使用连接吸水泵的27 G针头吸除所有洗涤缓冲液:用1 ml PBS洗涤2次,每次洗涤间通过瞬时离心收集珠粒;再用1 ml 裂解缓冲液洗涤一次,以平衡琼脂糖,随后在加入WCL前将琼脂糖吸干。
- 将剩余的WCL与洗涤后的链霉亲和素琼脂糖孵育(用裂解缓冲液补至总体积1.2 ml),在冷室中避光旋转孵育至少2小时或过夜。
- 用1 ml裂解缓冲液洗涤链霉亲和素琼脂糖–生物素化蛋白复合物3次(洗涤过程中裂解缓冲液无需添加Complete蛋白酶抑制剂),每次洗涤间瞬时离心收集琼脂糖珠粒, 最后一次洗涤后将琼脂糖吸干。
- 将链霉亲和素琼脂糖–生物素化蛋白复合物与65 μl含DTT的Laemli样品缓冲液在85 °C孵育5分钟。
- 瞬时离心后收集洗脱的生物素化蛋白复合物。
- 在7.5%凝胶中每孔上样40 μl WCL样品,或全部体积的生物素化(BT)样品。
- 在含SDS的电泳缓冲液中以120 V电压运行凝胶。
- 在不含SDS的转移缓冲液中,以90–95 V电压将蛋白转移至PVDF膜1.5小时(电流需<400 A)。
- 在含5%脱脂奶粉的TBS-T(0.1%)中封闭过夜。使用抗CFTR小鼠单克隆抗体CFF596及HRP标记的山羊抗小鼠二抗同时孵育两张膜。
- 进行化学发光检测。随后使用抗ezrin或抗actin抗体对两张膜重新孵育。
4. 回收实验
实验流程: 在 4 ºC 下对细胞表面蛋白进行生物素标记 → 升温至 37 ºC,使内吞囊泡载入生物素化蛋白 → 降温至 4 ºC,以终止内吞运输 → 还原仍位于细胞表面的蛋白所连接的生物素中二硫键 → 再次升温至 37 °C,使内吞囊泡中的生物素化蛋白回收至细胞表面 → 降温至 4 ºC,以终止内吞运输 → 还原回收至细胞表面的蛋白所连接的生物素中二硫键 → 细胞裂解 → 利用链霉亲和素琼脂糖分离未回收的生物素化蛋白(即 未发生循环的蛋白) → 从链霉亲和素琼脂糖中洗脱生物素化蛋白 → 蛋白质电泳及蛋白质印迹分析。
- 按照内吞实验(第3.1-3.6节)中所述步骤,对五个24 mm滤膜(表2:样品a-d)的顶面蛋白进行生物素标记。
- 在冷室中,将两个滤膜(表2:样品a和b)放入新培养板,向顶面和基底面各加入约2 ml PBS++(pH 8.2),并在冷室中保存。
- 将剩余的3个滤膜保留在一个培养板中(表2:样品c和d),每个滤膜的顶面和基底面均加入约2 ml PBS++(pH 8.2)。将装有滤膜c和d的培养板置于冰上,并移至37 ºC培养箱外的工作台。
- 迅速将滤膜从冰上培养板转移至培养箱中盛有预热PBS++(pH 8.2)的培养板,孵育5.0分钟。
- 在孵育期间,用冷的(4 ºC)PBS++(pH 8.2)填充冰上培养板中的3个孔。
- 在37 ºC孵育5.0 min 后,迅速将滤膜从培养箱转移至冰上培养板。让冷的PBS++(pH 8.2)溢出顶面,快速覆盖每个滤膜的整个表面。
- 将冰上培养板移回冷室,并放置于实验台。
- 吸除滤膜a、b、c和d两面的PBS++(pH 8.2),并向基底面各加入1 ml PBS++(pH 8.6)。
- 将滤膜a和b与滤膜c和d分开处理,向滤膜a和b的顶面各加入1 ml PBS++(pH 8.6)。
- 按照内吞实验中所述步骤(步骤3.13-3.15),还原滤膜b、c和d中仍位于细胞表面的生物素的二硫键。
- 用PBS++(pH 8.2)短暂清洗滤膜b、c和d两次,更换为新鲜PBS++(pH 8.2)。将滤膜d转移至新培养板,置于冰上并移至37 ºC培养箱外的工作台。
- 迅速将滤膜从冰上培养板转移至培养箱中盛有预热PBS++(pH 8.2)的培养板,每个滤膜分别精确孵育2.5或5.0分钟,操作同上文步骤4.4-4.9。
- 在第二次37 ºC孵育后,使用GSH缓冲液还原滤膜d中与顶面膜蛋白结合的生物素的二硫键(操作同4.4节),但此步骤中仅进行三次15 min 的GSH缓冲液孵育。此期间将滤膜a、b和c保留在顶面和基底面均含有PBS++(pH 8.6)的环境中。
- 进行细胞裂解和Western blotting时,遵循内吞实验中所述步骤(步骤3.16-3.31)。
结果
在包被胶原的滤膜上培养的CFBE41o-细胞中研究了CFTR的内吞作用(图 1)。通过使用小鼠单克隆抗体(克隆号596)和抗小鼠辣根过氧化物酶抗体,结合蛋白质印迹检测系统及化学发光法,对生物素标记的CFTR进行可视化检测。使用处于胶片线性动态范围内的曝光条件,通过密度测定法对生物素标记的CFTR进行定量。在扣除背景信号后计算CFTR的内吞率,并以37 ºC复温后各时间点的生物素标记CFTR量相对于零时点的百分比表示(图 1A 和 1B)。CFTR内吞在0–7.5分钟之间呈线性。由于GSH处理效率不足,背景CFTR信号>10%的实验被排除(图 1D)。
在胶原蛋白包被的培养皿中培养的HEK293细胞中研究了CFTR的再循环(图2)。CFTR的内吞作用在0.0至5.0分钟之间呈线性,并在5.0分钟时间点达到最大值(图2A),因此细胞在37 ºC下孵育5.0分钟,以使内吞囊泡负载包括CFTR在内的生物素化蛋白(图2B和2C)。内吞后的CFTR再循环量通过第一次和第二次GSH处理后生物素化CFTR的含量差异进行计算。
表1. 内吞作用检测方法。
| 内吞作用 | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| 样本 | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| 生物素 | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 min | 5.0 min | 7.5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
表2. 回收实验。
| 回收 | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| 样品 | a | b | c | d2.5 | d5.0 |
| 生物素 | + | + | + | + | + |
| 第一次 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 第一次 GSH | (-) | (-) | + | + | + |
| 第二次 37 ºC | (-) | (-) | + | + | + |
| 第二次 GSH | (-) | (-) | (-) | 2.5 min | 5 min |
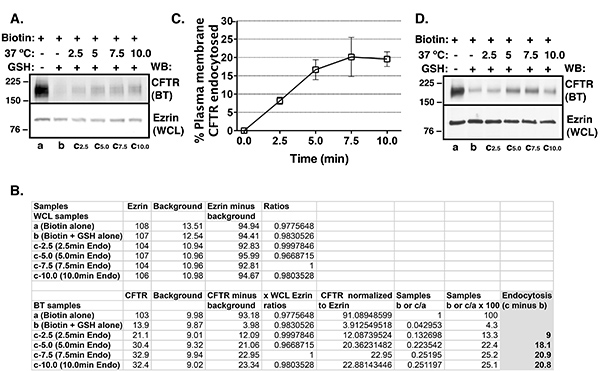
图1. 用于测定CFBE41o-细胞中CFTR内吞作用的内吞实验总结。 细胞培养于胶原包被的滤膜上。代表性Western印迹图(A)、代表性密度测定值(B)及实验汇总(C)显示CFTR内吞作用随时间的变化。采用选择性细胞表面生物素标记结合Western印迹法检测质膜上CFTR的丰度。通过胶片线性动态范围内的曝光,使用密度测定法对蛋白丰度进行定量。在零时刻,生物素标记(BT)的CFTR量被定义为100%(表1:样品a)。在零时刻,经GSH处理后残留的BT-CFTR量被视为CFTR本底信号(样品b;请注意,此本底不同于图1B中从所有样品中扣除的本底)。在纳入分析的实验中,CFTR本底信号为6.7 ± 0.9%(均值 ± S.E.M.)。在37 ºC复温2.5、5.0、7.5或10 min后,从BT-CFTR信号中减去本底CFTR信号(样品c减去样品b)。CFTR内吞作用以扣除本底CFTR后各时间点(2.5、5.0、7.5或10 min)仍保持生物素标记的CFTR百分比表示。CFTR内吞作用在0至7.5 min之间呈线性变化。全细胞裂解液(WCL)中Ezrin的丰度用作上样对照。每组进行4次实验。排除背景CFTR信号>10%的实验,因其GSH处理效率不足(D)。被排除实验中GSH对照组(样品b)的生物素化CFTR量为14.5%。
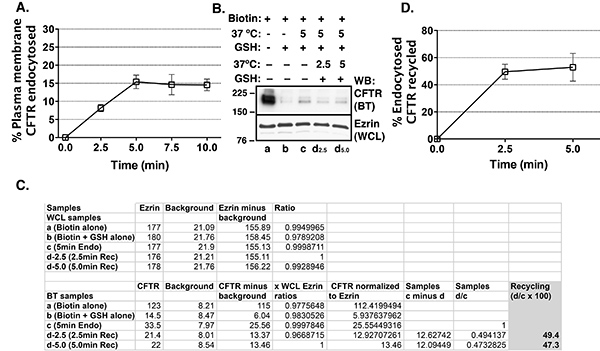
图2. 在稳定表达CFTR的HEK293细胞中进行的内吞和再循环实验总结。 细胞培养于胶原包被的组织培养板中。数据汇总显示CFTR的内吞在0–5分钟内呈线性(A)。因此,在再循环实验中,通过在37 °C温育5分钟,使内吞囊泡负载生物素化(BT)蛋白(包括CFTR)。蛋白丰度通过光密度法进行定量,曝光时间控制在胶片的线性动态范围内。代表性Western印迹(B)、代表性光密度值(C)及实验汇总(D)显示CFTR再循环随时间的变化。在时间零点,BT CFTR的量被定义为100%(表2:样本a)。在时间零点,经GSH处理后残留的BT CFTR量被视为CFTR本底信号(样本b;请注意,此本底不同于图C中从所有样本中扣除的本底)。若实验中CFTR本底信号>10%,则被排除,原因可能是GSH处理效率不足。通过在37 °C孵育5分钟,使内吞囊泡负载包括CFTR在内的BT蛋白,随后进行GSH处理,以切除质膜上残留蛋白的生物素(样本c和d)。在37 °C温育5分钟并经GSH处理后所检测到的BT CFTR量代表已内吞的CFTR(样本c)。在37 °C温育5分钟并完成第一次GSH处理后,细胞再次于37 °C温育2.5或5.0分钟,以允许内吞的蛋白再循环至质膜,随后通过第二次GSH处理去除再循环至质膜的CFTR上的生物素(样本d)。此时,仅未从早期内体再循环至质膜的CFTR仍保持生物素化状态(样本d)。CFTR的再循环量通过计算第一次GSH处理后(样本c)与第二次GSH处理后(2.5和5.0分钟,样本d)的BT CFTR之差得出,并以已内吞CFTR的百分比表示。CFTR的再循环过程迅速,在2.5分钟时达到最大值。全细胞裂解液(WCL)中Ezrin的表达水平用作上样对照。每组3次实验。
讨论
内吞和循环实验的成功取决于在质膜上对CFTR进行高效的生物素标记。生物素必须在使用前立即配制,因为其NHS-酯基团容易发生水解而失去反应活性。此外,生物素标记步骤必须严格控制在4 ºC,以阻断蛋白质的转运过程。如果在生物素标记过程中温度超过4 ºC,可能会发生蛋白质转运,导致CFTR被不同程度地生物素标记。
内吞和循环实验的成功还取决于质膜上生物素标记的CFTR二硫键是否被有效还原。经GSH处理后仍保持生物素标记的CFTR量应小于<时间零点总生物素标记CFTR的10%。若GSH对照样本中生物素标记CFTR的残留量>10%,则该实验应予以排除。图1D 展示了一项“失败”的实验,其中GSH对照组的生物素标记CFTR残留量为14.5%。生物素标记CFTR中二硫键还原不充分,可能继发于实验过程中温度控制不佳。若GSH处理期间温度升至4 ºC以上,可能发生蛋白质转运,导致因非预期的温度升高而内吞的生物素标记CFTR增加,从而提高背景CFTR水平。此外,生物素标记CFTR中二硫键还原不充分也可能由GSH在水溶液中因空气氧化导致半衰期缩短,或因pH值不当所致。如先前研究所确定,GSH在pH 8.6时可保持强缓冲状态4。根据我们的经验,使用GSH缓冲液进行六次15 分钟处理对二硫键的还原效率超过90%,优于一次90分钟的处理。
细胞培养需要特别注意。生物素必须到达完整细胞中目标蛋白表达的质膜区域。我们已采用基于生物素标记的内吞和再循环检测方法,研究表达于顶膜区域的CFTR蛋白的内吞和再循环过程。这些检测方法也可用于研究培养在半透性生长支持物上的细胞中定位于基底外侧膜区域的蛋白质的内吞运输。形成多层结构的上皮细胞不适合此类检测,因为生物素和GSH缓冲液只能到达最上层细胞以检测顶膜蛋白,或仅能到达最下层细胞以检测基底膜蛋白。在塑料表面培养的上皮细胞在检测过程中可能更容易被洗脱。实验过程中细胞的随机脱落将影响实验结果。我们建议在使用塑料培养皿培养细胞的实验中,定期在显微镜下检查单层细胞的完整性。用胶原蛋白包被组织培养皿可增强细胞的贴附性。
应常规检测生物素标记的蛋白质样品是否被细胞内蛋白质污染。若在生物素标记的蛋白质样品中检测到细胞内蛋白质,可能表明在与全细胞裂解液(WCL)孵育后,链霉亲和素琼脂糖-生物素标记蛋白质复合物的洗涤步骤不够充分。因此,第一步应提高洗涤效率。此外,细胞质膜完整性受损的细胞会使生物素进入细胞内,从而标记细胞内蛋白质。可通过针对仅在细胞内区室(如内质网)表达的蛋白质进行Western blot检测,以判断是否存在细胞内蛋白质的生物素标记。或者,也可使用细胞骨架蛋白(如肌动蛋白或Ezrin)来检测生物素标记蛋白质样品中是否混有细胞内蛋白质。细胞骨架蛋白可能与跨膜蛋白形成复合物,因此在生物素标记的蛋白质样品中可能检测到少量此类蛋白。然而,根据我们的经验,生物素标记样品与全细胞裂解液中Ezrin或肌动蛋白的比值<1:1,000,因此这些蛋白适用于基于生物素标记实验中细胞膜完整性的判定。
生物素化反应可用甘氨酸或Tris淬灭,以去除未反应的生物素化试剂,如先前报道所述17。此外,谷胱甘肽(GSH)可用碘乙酰胺进行淬灭6。根据我们的经验,未反应的生物素化试剂和GSH可通过用PBS++轻柔洗涤有效去除,无需使用淬灭试剂。
链霉亲和素的选择 与 应根据具体情况确定使用链霉亲和素琼脂糖还是中性亲和素琼脂糖来分离生物素化蛋白复合物。根据我们的经验,链霉亲和素琼脂糖能够高效分离生物素化蛋白复合物,且非生物素化蛋白的结合极少;而中性亲和素琼脂糖则会出现较高水平的非特异性结合,干扰实验结果(未发表观察)。
披露
作者声明不存在任何竞争性经济利益。
致谢
本研究由美国国立卫生研究院(NIH)资助,项目编号为 R01HL090767、R01HL090767-02S1、P30 DK06010,以及NepCure基金会设立的研究员新方向资助项目(授予 A.S.-U.)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| CFBE41o- 细胞 | 参考文献10,11,13,14,15 | ||
| HEK293 细胞 | 参考文献13 | ||
| 最低必需培养基(MEM) | Gibco | 11095 | |
| L-谷氨酰胺 | Cellgro | 25-005-CL | |
| 青霉素 | Sigma | P0781 | |
| 链霉素 | |||
| 嘌呤霉素 | InvivoGen | ant-pr-1 | |
| PureCol 牛胶原蛋白 溶液 I 型 | Advanced Biomatrix | 5005-B | |
| 培养试剂 | |||
| Dulbecco’s 磷酸盐缓冲液(PBS) | Gibco | 14190 | |
| 氯化钙 | Sigma | C3306 | |
| 氯化镁 | Sigma | M2670 | |
| 氯化钠 | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-生物素 | Pierce | 21331 | |
| 还原型 L-谷胱甘肽(GSH) | Sigma | G6529 | |
| 链霉亲和素-琼脂糖树脂 | Thermo Fisher | 20353 | |
| 氢氧化钠 | Sigma | 224165 | |
| 胎牛血清 | Gemini Bioscience | 100-106 | |
| Milli-Q 水 | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| 吐温 X-100 | Bio Rad | 161-0407 | |
| 甘油 | FisherScientific | G33 | |
| Laemli 样品缓冲液 | BioRad | 161-0737 | |
| 二硫苏糖醇(DTT) | Sigma | 646563 | |
| Complete 蛋白酶 抑制剂混合液 | Roche | 1697498 | |
| 链霉亲和素磁珠 | Thermo Scientific | 20353 | |
| 化学发光试剂 | Perkin Elmer | NEL104001EA | |
| 试剂 | |||
| 脱脂奶粉 | Carnation | N/A | |
| 吐温-20 | BioRad | 170-6539 | |
| Tris 缓冲盐水(TBS) | BioRad | 170-6435 | |
| 牛血清白蛋白(BSA) | Gibco | 15120 | |
| 一抗和二抗 | |||
| 用于 Western 印迹的一抗和二抗 | |||
| 小鼠单克隆抗 CFTR 596 抗体 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| 抗 ezrin 抗体 | |||
| 电泳缓冲液 10x | BioRad | 161-0772 | |
| 转膜缓冲液 10x (不含 SDS) | BioRad | 161-0771 | |
| 甲醇 | Fisher | A4129 | |
| 库尔特计数器 | Beckman Coulter | Z1Coulter Particle Counter | |
| 标准细胞 培养设备 | |||
| 带紫外灯的细胞培养罩 | |||
| 储备培养瓶 | |||
| Transwell 小室-24 mm | Corning | 3412 | |
| 4 cm 细胞培养皿 | |||
| pH 计 | |||
| 15 ml 和 50 ml 锥形管 | |||
| 1.5 ml 离心管 | |||
| 橡胶刮刀 | |||
| 冷藏室 | |||
| 冰桶和冰 | |||
| 27 G 针头 | |||
| 37 ºC 培养箱 | |||
| 温度计 | |||
| 台式离心机 | |||
| 低温离心机 | |||
| 电泳设备 | |||
| 显影仪 | |||
| 胶片 | GE Amersham | 28-9068-36 | |
| PVDF 膜 | Millipore | IPVH00010 | |
| ImageJ 软件 | NIH |
参考文献
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
重印与许可
