低氧性肺血管收缩(HPV)是一种重要的生理现象,通过该机制在肺泡低氧时使肺灌注与通气相匹配。参与 HPV 的主要血管节段是肺泡内小动脉。本文中,我们描述了一种用于分析直径为 20–100 μm 的小鼠肺血管 HPV 的实验方案。
本文内容
摘要
摘要
急性肺泡缺氧会引起肺血管收缩(HPV),也称为 von Euler-Liljestrand 机制,其作用是使肺部的灌注与通气相匹配。迄今为止,该现象的潜在机制尚未完全阐明。对 HPV 起主要贡献的血管节段是肺泡内动脉。这一血管节段负责单个肺泡单位的血液供应,肺泡单位定义为终末细支气管远端的肺组织部分。肺泡内动脉大多位于肺的某些区域,而这些区域通常无法通过一些常用技术进行选择性研究,例如在离体灌注肺中测量肺动脉压,或从离体的近端肺动脉段获取张力记录1,2。利用实时共聚焦激光扫描荧光显微镜对胸膜下血管进行分析时,其应用仅限于直径不超过 50 µm 的血管3。
我们提供一种用于研究小鼠肺内动脉(内径范围为20-100 µm)低氧性肺血管收缩(HPV)的技术。该方法基于对精密切割肺片(PCLS)中横切动脉进行视频形态测量分析。该技术可定量测量小的肺泡内动脉(内径20-40 µm,位于肺泡导管旁的肺泡隔交界处)以及较大的肺泡前动脉(内径40-100 µm,毗邻支气管和细支气管)的血管反应性。与在麻醉和通气小鼠中对胸膜下血管进行实时成像不同,PCLS的视频形态测量分析是在无剪切应力条件下进行的。在我们的实验模型中,当暴露于含1% O2的气体环境时,这两类动脉节段均表现出单相型HPV反应,且在低氧状态下持续30-40分钟后反应逐渐减弱。
引言
在大多数全身血管床中,缺氧会引起血管舒张,而相比之下,缺氧在肺血管系统中则引起血管收缩。这种肺部特异性的对氧张力降低的反应被称为缺氧性肺血管收缩(HPV),其在数秒内发生,并在恢复常氧通气后迅速逆转。尽管HPV现象已被发现60多年,但介导该反应的细胞氧感受器及其引发血管收缩的信号通路仍存在争议。目前相对广泛的共识是,缺氧引发的氧化还原状态改变和活性氧(ROS)变化在HPV以及肺动脉高压的发展中起关键作用(详见Sylvester et al.4 和 Schumacker et al.5的综述)。我们自己的研究数据支持线粒体呼吸链复合体II在HPV中具有核心作用6,7。最近,Wang et al. 提出了一个关于氧感知和HPV的全新概念:根据他们的研究结果,肺泡缺氧由邻近的毛细血管感知,导致内皮细胞膜去极化。该信号通过内皮细胞间的连接蛋白40(connexin 40)缝隙连接传递,进而引起上游小动脉平滑肌细胞的收缩8。
肺部的动脉与气道并行,伴随其分支,直径持续减小,最终向位于肺泡壁内的毛细血管系统供血。这种动脉循环由在解剖和功能上均不同的节段组成。近端传导性动脉的管壁富含弹性纤维,其后为完全肌化的肺内动脉,后者在很大程度上调控肺血管阻力。这些动脉逐步过渡到肌层不完整的节段,最终血管中不再含有平滑肌肌动蛋白免疫反应性细胞。为单个肺腺泡供血的肺泡内动脉属于部分肌化节段6。同样,肺动脉系统在对低氧的反应方面也不具有均一性,而是表现出显著的区域差异9,10。例如,在从大鼠肺组织分离的近端肺动脉中,低氧诱导出双相反应:先出现短暂的快速收缩,随后在未完全舒张的情况下,继以第二相缓慢但持续的收缩11。而在从大鼠肺实质分离的阻力动脉(即肺动脉的第四和第五级分支,外径 <300 μm)中,低氧则引起单相性收缩9。早在1971年,Glazier 和 Murray 就通过测量狗肺在通入低氧气体混合物时毛细血管内红细胞浓度的变化,推断出低氧引起的血管阻力增加主要发生在毛细血管上游12。如今,对麻醉并机械通气小鼠完整肺组织进行的活体显微成像已成为分析肺微血管系统的有力工具13,14。通过切除胸壁上的圆形区域,可使显微镜观察到肺表面,从而分析直径达50 µm的胸膜下肺血管。将该技术与FITC-葡聚糖灌注相结合,Tabuchi et al. 证明,只有直径为30–50 µm的中等大小微动脉对低氧表现出显著反应,该反应可持续60分钟,在30分钟后仅有轻微减弱;相比之下,直径为20–30 µm的小微动脉对低氧的反应则非常微弱3。然而,该技术无法用于分析直径大于50 µm的动脉,因为这些血管位于肺组织更深层的位置。
为了弥补小鼠肺组织中较大和极小肺动脉(如胸膜下血管)分析之间的差距,我们采用了一种由 Martin et al. 描述的用于气道反应性分析的方法15。该方法基于琼脂糖凝胶灌注技术,有助于从这种相对柔软且富有弹性的器官中制备精确切割的肺组织片(PCLS)。在 PCLS 中,可通过视频显微镜直接观察横截面动脉的血管反应性,其内径范围为 20–100 µm。在 PCLS 缺氧孵育过程中施加药物,可分析这些药物对低氧性肺血管收缩(HPV)的影响。尤其重要的是,该技术也可应用于基因工程小鼠。根据其在肺内的位置,我们将动脉分为肺泡前动脉和肺泡内动脉,其内径分别为 20–40 µm 和 40–100 µm。从功能角度看,肺泡内动脉为单个肺腺泡供血,而肺泡前动脉则是其上游的血管节段。通过数码相机记录图像,可对血管反应进行后续定量分析。该 PCLS 模型的一个显著特点是内皮细胞上缺乏剪切应力的作用。相比之下,在灌注血管中,急性 HPV 会导致剪切应力升高,从而诱导诸如一氧化氮(NO)释放等继发性机制16。此外,使用 PCLS 可在无肺外神经或激素影响的情况下测量 HPV。与细胞培养系统(例如源自犬肺动脉平滑肌细胞的培养系统17)相比,PCLS 中血管壁的组织学结构几乎完全保留。
总之,本方案提供了一种有效的方法,用于分析在无剪切应力条件下介导肺内动脉(内径为20-100 µm)低氧性肺血管收缩(HPV)的潜在分子氧感受器和/或细胞信号通路。
方案
1. 气体混合物、设备、仪器和溶液的准备
本部分介绍了该实验方案所需的设备和设置。更多详细信息及制造商信息见附表。
- 获取或配制以下气体混合物:
- 两个装有常氧气体混合物的瓶子,其组成为 21% O2、5.3% CO2、73.7% N2。
- 一个装有低氧气体混合物的瓶子,其组成为 1% O2、5.3% CO2、93.7% N2。
- 准备以下设备:
- 微波炉,用于融化琼脂糖。
- 加热柜,用于清洗肺组织切片中的琼脂糖(见下文)。将一根连接至装有常氧气体混合物瓶的导管插入加热柜中。
- 配备合适刀片的振动切片机,用于将肺组织切成 200 μm 厚的切片。若振动切片机配有制冷装置以冷却切片槽中的缓冲液,则更为有利。
- 安装在倒置显微镜上的灌流式灌注室,用于分析肺内动脉的低氧性肺血管收缩(HPV)。
- 为便于将肺组织切片固定在灌注室底部,将尼龙线连接至铂金环(自制)。将灌注室连接至蠕动泵,并分别调节流速至 0.7 ml/min 和 6 ml/min。
- 组装设备,使实验过程中介质保存在 37 °C 水浴中,并使用 21 G × 4 ¾ 套管以常氧或低氧气体进行鼓泡。此外,使用来自气体瓶的第二根连接管,使常氧/低氧气体混合物可通入灌注室的气相空间。确保该系统的所有管道均密封不漏气。
- 安装在正置倒置显微镜上的 CCD 相机,用于记录所分析动脉的图像。
- 准备以下器械:
- 用于肺组织制备:无菌解剖器械套装,包括粗剪刀和两对镊子、用于打开胸腔的细剪刀、用于在气管上剪孔以便注入琼脂糖的显微剪刀,以及用于结扎气管以防止琼脂糖外流的缝合棉线(约 20 cm)。
- 用于向气道填充琼脂糖:将一个 2 ml 注射器连接至静脉留置针(20 G × 1 ¼)的柔性塑料管上。
- 用于以缓冲液灌注肺组织:将一个 50 ml 注射器固定为缓冲液储液器,位置高于小鼠操作台约 40 cm。
- 用于缓冲液流出:将注射器连接至一根导管,导管末端连接一个 25 G × 1 套管。在导管上使用夹子调节流出速度至约 1 滴/秒(约 0.3–0.4 ml/min)。
- 准备以下缓冲液和培养基:
- 配制 1,000 ml HEPES-Ringer 缓冲液(10 mM HEPES、136.4 mM NaCl、5.6 mM KCl、1 mM MgCl2•6H2O、2.2 mM CaCl2•2H2O、11 mM 葡萄糖,pH 7.4)。将经滤膜(滤膜孔径:0.2 µm)无菌过滤后的缓冲液储存在 4 °C。
- 在开始肺组织分离前约 30 分钟,准备以下溶液:
- 将 1.5% w/v 低熔点琼脂糖溶于 HEPES-Ringer 缓冲液(总体积 10 ml),在微波炉中加热融化,随后在加热柜中冷却至 37 °C。预热用于向肺气道填充琼脂糖的 2 ml 注射器。
- 取 20 ml HEPES-Ringer 缓冲液,加入肝素至终浓度为 250 I.U./ml,并将缓冲液加热至 37 °C。使用前立即加入亚硝基铁氰化钠(sodium nitroprusside)至终浓度为 75 µM。此为用于冲洗肺血管系统血液的灌注缓冲液。
- 将 200 ml HEPES-Ringer 缓冲液置于玻璃烧杯中并置于冰上。该缓冲液用于冷却含琼脂糖的离体肺组织。
- 在玻璃烧杯中加入约 200 ml 添加 1% 青霉素/链霉素的 MEM 培养基,置于加热柜中于 37 °C 保存。用常氧气体混合物对该培养基进行鼓泡。该培养基将用于从肺组织切片中去除琼脂糖。
- 将两瓶添加 1% 青霉素/链霉素的 MEM 培养基在水浴中预热至 37 °C,并分别用常氧和低氧气体混合物鼓泡至少 2 小时,然后开始视频形态测量。每次测量约需 250 ml MEM 培养基。
- 准备以下其他材料:
- 70% 乙醇用于消毒。
- 肝素储备液(25,000 I.U./5 ml),储存于 4 °C(见上文)。
- 一氧化氮供体亚硝基铁氰化钠(Nipruss)储备液:10 mM 溶于 H2O,置于冰上保存(见上文)。
- 血栓素类似物 U46619 储备液:10 µM 溶于乙醇,置于冰上保存。
- 超级胶水。
- 用于琼脂糖填充后结扎气管的缝合棉线。
2. 动物
使用10至25周龄的两种性别的小鼠(例如C57Bl6品系)。HPV也可在基因敲除品系及相应的野生型品系中进行分析。
所有实验均按照美国国立卫生研究院(NIH)关于实验动物护理和使用的指南进行,并获得了当地机构委员会的批准。
3. 小鼠肺组织的分离及精密切割肺片(PCLS)的制备
- 通过颈椎脱位处死小鼠。处死后立即用70%乙醇消毒腹部体表,用粗剪刀从下巴至骨盆沿腹侧中线剪开皮肤。
注:已知吸入性麻醉剂(如异氟烷)会影响血管张力18,19,不要使用挥发性麻醉剂。 - 打开腹腔后,将肠管移至一侧,切断腹腔内较大的血管以放血。用精细剪刀刺穿膈肌,空气进入胸膜腔导致肺脏塌陷。用剪刀将膈肌从下胸口分离。在侧方剪断肋骨和锁骨,以移除胸廓的腹侧部分。
注意:此步骤中必须避免损伤肺组织,否则将无法用琼脂糖充分膨胀肺部!仅使用无菌器械和实验室玻璃器皿。 - 开始肺血管灌注前,于心脏左心室剪开一小孔以排出缓冲液。用温热(37 °C)含肝素和硝普钠的 HEPES-Ringer 缓冲液(灌注缓冲液)填充注射器储液器,并经由右心室缓慢灌注肺血管。
注意:当肺组织颜色发生变化并呈现白色外观时,表明灌注效率良好。此步骤中,务必在灌注缓冲液中加入硝普钠,以防止前小叶动脉从周围组织撕脱。 - 去除气管上的唾液腺、小块肌肉和结缔组织。将气管与周围结缔组织分离,并在食管与气管之间穿入缝合棉线,以备后续结扎。
- 使用显微剪刀在相邻两个气管软骨之间的气管上部剪开一个小孔。随后通过该小孔将静脉留置针的柔软塑料导管插入气管,并用缝合棉线小心固定。缓慢将温热(37 °C)的低熔点琼脂糖注入气道。观察肺部变化:首先右肺开始扩张,随后左肺扩张。当双侧肺均充盈至与正常生理状态相近的体积时,即完成灌注。 体内 情况(约1.2–2.0 ml,具体取决于性别、年龄和体重)。
注意:如果仅有一侧肺扩张,可能是塑料管插入过深,已进入支气管。此时应将塑料管略微拔出。需注意,随着温度逐渐降低,琼脂糖会随之凝固。 - 当肺部充满琼脂糖后,同时拔出塑料管,并用缝合棉线结扎气管以防止琼脂ose外流。随后,在结扎线之上剪断气管,分离肺和心脏。 在组织块上 从胸部
注意:对于初学者,在连接步骤中请求同事协助可能会有所帮助。 - 将器官包转移至冰冻的 HEPES-Ringer 缓冲液中,以凝固琼脂糖。此过程在数分钟内完成。
- 分离各个肺叶,并用超级胶水将其中一个肺叶固定在振动切片机的样品架上。
注意:在切割弹性肺组织时,将一小块香槟软木塞粘在样品夹持器上作为止推垫是有帮助的。根据所用肺叶及其在样品夹持器上的方向,获得的PCLS可能更适合于小血管或大血管的分析。通常我们使用左肺叶和右前肺叶来制备PCLS。为了获得横切的小叶内小动脉,应将右前肺叶的肺门侧粘在夹持器上,并从外周开始切片;为了获得横切的叶前动脉,应将右肺叶的肺门与香槟软木塞对齐。 - 使用装有新剃须刀片的振动切片机将肺叶切成 200 μm 厚的切片(速度:12 = 1.2 mm/sec;频率:100;振幅:1.0)。在装有 4 °C 冷 HEPES-Ringer 缓冲液的振动切片机槽中收集肺切片(PCLS)。
注意:建议但非必需对HEPES-Ringer溶液进行冷却。 - 为去除琼脂糖,将器官切片转移至一个盛有约 200 ml 37 °C 温育 MEM 的玻璃烧杯中。将烧杯放入加热培养箱,箱内插入一根连接有常氧气体混合瓶的导管。用常氧气体对 MEM 进行鼓泡,使肺组织切片在培养基中缓慢移动。约 2 小时后, 的 "琼脂糖噬菌斑" 肺组织中的气腔将被填充,这可以通过切片不再漂浮在培养基表面而是沉降到烧杯底部来识别。
4. 肺切片中肺内动脉的视频形态测量分析
- 用于肺内动脉的视频形态测量分析时,将一个PCLS转移至装有1.2 ml经含氧气体饱和MEM培养基的灌流式灌注室中。用连接在铂金环(外径/内径:14/10 mm)上的尼龙线将PCLS固定在灌注室底部。
- 在显微镜下扫描PCLS,寻找内径在20-100 µm之间的横切动脉。
注意:动脉管腔由扁平的内皮细胞衬覆。周围的平滑肌细胞可在相差显微图像中被识别为 "暗环" 管腔周围(参见相差图像中的 图2相比之下,气道可通过其起始处的假复层柱状上皮进行识别,该上皮在通向胸膜表面的过程中逐渐转变为单层柱状上皮,继而转变为单层立方上皮。
- 每次实验开始时测量内径。
注意:在轻微斜切的血管中,管状结构的真实内径应于管腔最长轴呈90°角的方向测定。内径较大的前小叶动脉 >40 µm 的血管与支气管和细支气管相邻走行。小叶内动脉,内径 <40 µm 位于肺泡隔的褶皱处,邻近肺泡和肺泡管6.
- 每次实验开始时测量内径。
- 实验设计:
- 每次实验开始时 "适应阶段" 其中,用常氧气体饱和的培养基对腔室进行灌注(流速:0.7 ml/min;10 min)。随后检测血管的活性:加入12 µl 10 µM U46619(终浓度0.1 µM;10 min;无流动),分析动脉的收缩功能。
注:在本研究中,当管腔面积减少至少30%时,定义该血管为可评估血管(测量方法见下文)。 - 用常氧气体饱和的培养基(流速:6 ml/min,冲洗10分钟)洗去药物后,在无灌流条件下加入3 µl 10 mM 硝普钠(终浓度25 µM),使动脉扩张(作用10分钟)。
- 再次用通入常氧气体的培养基洗涤10分钟(流速:6 ml/min),随后以0.7 ml/min的流速继续灌注10分钟,以清除药物。
- 通过将PCLS与低氧气体饱和的培养基孵育(流速:0.7 ml/min;40 min)诱导低氧性肺血管收缩。通过额外的管路系统,将低氧气体混合物通入灌注腔的气相空间。
- 用常氧充气培养基灌流20分钟(流速:6 ml/min)以去除低氧培养基。
- 每次实验结束时,向灌注 chamber 中加入 1.2 µl 的 10 µM U46619(终浓度 0.01 µM;20 分钟;无流动),以诱导血管收缩。
注意:此最后一步可确定缺氧反应的变化(例如,在缺氧阶段同时施加药物所诱导的变化,或在来自基因敲除小鼠品系的PCLS中观察到的变化)是否特异性地影响缺氧诱导的收缩,或是否反映了对收缩力的普遍影响。0.01 µM的浓度对应于U46619的EC50值,该值由先前的浓度-收缩关系测定得出(未发表)。 - 使用另一份PCLS,在灌注室气相空间中采用常氧气体混合物,并以常氧气体化的MEM进行对照实验。
- 每次实验开始时 "适应阶段" 其中,用常氧气体饱和的培养基对腔室进行灌注(流速:0.7 ml/min;10 min)。随后检测血管的活性:加入12 µl 10 µM U46619(终浓度0.1 µM;10 min;无流动),分析动脉的收缩功能。
5. 血管反应性分析与图形展示
- 使用合适的软件,在整个实验过程中每隔一分钟拍摄一次动脉横切面的图像。
- 使用合适的软件,通过全屏图像手动描记血管内壁边界,评估管腔面积的变化。
注意:为获得清晰的图表,分析每隔一张的图像已足够。然而,当灌流式灌流室中的某一条件转变为另一条件时,需分析每一张图像。其余图像可作为备份,以防某张照片无法分析。
遗憾的是,由于有时血细胞附着在血管壁上并在测量过程中移动,或血管切面并非完美的横切面而是切向切面,导致仅能通过视觉控制准确定位内壁边界,因此这一耗时的步骤必须手动完成,而无法借助合适的程序自动实现。 - 将实验开始时测得的血管管腔面积定义为100%,并将血管收缩或舒张表示为该值的相对减少或增加。
- 对于每次实验,使用合适的软件将相对管腔面积随时间变化作图。
- 为汇总多个实验结果,将相对管腔面积的均值 ± 均值标准误(SEM)随时间变化作图。
注意:为清晰展示不同物质对缺氧或U46619诱导的肺血管收缩的影响,或基因敲除小鼠品系对缺氧反应的影响,可在图表中省略实验初期用于检测血管活性的阶段。在此情况下,将开始暴露于低氧环境时获得的数值定义为100%。
6. 统计分析
- 使用Kruskal-Wallis检验和Mann-Whitney检验分析实验组之间的差异,以p≤0.05为差异有显著性,p≤0.01为差异高度显著。
注意:有关PCLS的制备和操作使用的更多信息,请参见20,21。
结果
在图1中展示了肺泡前大动脉的低氧性肺血管收缩(HPV)测量结果,而在图2中展示了肺泡内小动脉的测量结果。相差显微图像(图1A和图2A)清楚地表明,可根据血管在肺组织中的位置区分这两类动脉:肺泡前动脉紧邻支气管和细支气管走行(图1A),而肺泡内动脉则位于肺泡隔的交角处,并被肺泡所包绕(图2A)。经过少量练习后,可在相差图像(图1A和图2A)上直接观察到U46619引起管腔面积的变化。然而,低氧性肺血管收缩反应通常并不十分显著,往往只有在对管腔面积变化进行完整评估后才能明确(图1B、1C、2B和2C)。出于教学目的,我们展示了一例表现出异常显著血管收缩的肺泡前动脉。总体而言,HPV可导致管腔面积减少20–30%。
在图2中,展示了小叶内细小动脉在缺氧气体饱和培养基中孵育(有或无50 µM匹那西丁,一种线粒体ATP敏感性钾通道的非选择性开放剂)的记录结果,药物的抑制效应清晰可见。实验的最后部分验证了该药物对低氧性肺血管收缩(HPV)作用的选择性:由血栓素类似物U46619诱导的血管收缩在加入匹那西丁后未发生改变。实际上,暴露于匹那西丁的血管曲线明显低于另外两条曲线,但单独使用U46619引起的管腔面积减少程度是相似的。本例中,曲线之间的差异是由HPV未能完全逆转所致。该图中还包含一条在常氧气体饱和培养基中孵育的血管作为额外对照。在此条件下,管腔面积未见明显变化。
在图3中展示了关于吡那地尔对HPV影响的完整系列测量数据。为比较两组之间的统计学差异,对所示时间点的数据集采用了Kruskal-Wallis检验和Mann-Whitney检验进行分析。在吡那地尔存在下,HPV被明显抑制,而U46619诱导的收缩则保持不变。
或者,可通过比较曲线下面积来识别组间差异,具体方法如 Müller-Redetzky 所述。 等22
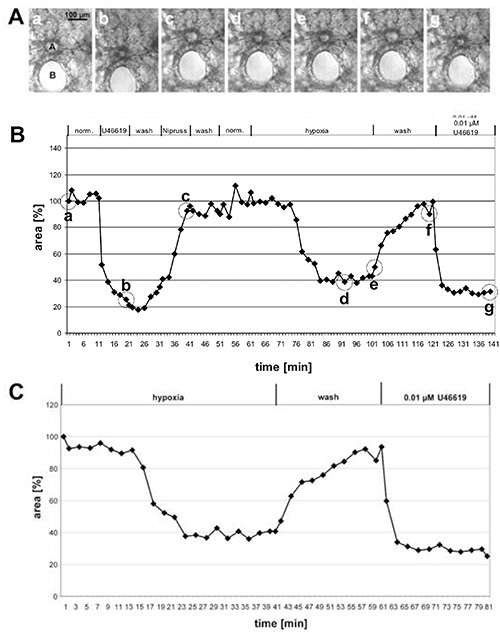
图 1. 大型前小叶动脉 HPV 的测量。(A)横切面的前小叶动脉(a),其走行邻近一支横切的支气管(B)的相差图像。图像拍摄时间点如(B)中圆圈所示:实验开始时(a)、U46619 处理结束时(b)、Nipruss 暴露结束时(c)、在低氧气体饱和培养基中孵育 30 或 40 分钟后(d, e)、用常氧气体饱和培养基洗涤后(f),以及最终再次给予 U46619 后(g)。在图(B)中,管腔面积的变化以时间为横坐标作图,实验开始时的管腔面积定义为 100%,血管收缩/舒张以相对值表示。在此例中,缺氧导致管腔面积减少 60%。(C)为了更清晰地展示缺氧反应,未包含实验初期用于检测血管反应性的阶段,而是将低氧暴露前即刻测得的值设为 100%(参见 图 2)。点击此处查看高清图像。

图 2. 匹那西林(一种线粒体ATP敏感性钾通道非选择性开放剂;mitoKATP)对小肺泡内动脉低氧性肺血管收缩(HPV)的影响。 (A)肺泡内动脉(a)位于肺泡隔的褶皱处。Alv = 肺泡。实验中各处理条件的顺序见图(B)标题所示。缺氧暴露在有或无50 µM匹那西林的条件下进行。对照孵育使用常氧气体平衡的培养基。图(A)中的图像分别在测量开始时(a, a', a")、U46619处理结束时(b, b', b")、Nipruss暴露结束时(c, c', c")、在缺氧或常氧气体平衡培养基中孵育30或40分钟后(d, d', d"; e, e', e")、用常氧气体平衡培养基洗涤后(f, f', f"),以及最后再次应用U46619后(g, g', g")采集。为更清晰地展示对常氧/缺氧/缺氧+匹那西林的反应,将暴露于常氧或缺氧气体平衡培养基前即刻测得的数值设定为100%(C)。 点击此处查看高清图像。

图 3. 吡那地尔对低氧性肺血管收缩(HPV)的抑制作用。 总结并展示了小肺泡内动脉在暴露于低氧气体环境的培养基中(有或无 50 µM 吡那地尔)的记录结果,数据以均值 ± 标准误(SEM)表示。图(A)显示完整的记录曲线,图(B)显示相对于低氧孵育开始时数值的相对变化。在暴露于含吡那地尔的低氧气体培养基的肺切片(PCLS)中,未检测到任何血管反应性。由 U46619 诱导的血管收缩不受该药物影响。括号中的“n”表示用于制备 PCLS 的动脉数量/动物数量。换言之,第一个数字表示所分析的肺组织切片的数量,第二个数字表示提供这些切片的小鼠数量。在指定的时间点,对两组之间的差异进行显著性检验。n.s.:无显著性差异,*:p≤0.05,**:p≤0.01,***:p≤0.001。 点击此处查看高分辨率图像。

图 4. 方法的示意图概述。简言之,小鼠通过颈椎脱位处死。打开胸腔后,用低熔点琼脂糖灌注肺组织,冷却后切成200 µm厚的精确切割肺片(PCLS)。在37 °C去除琼脂糖后,将一片PCLS转移至流通式灌流室中,暴露于常氧培养基或通入1% O2的培养基中。血管反应性通过管腔面积的变化进行记录。点击此处查看高清图像。
讨论
离体通气且灌注的小鼠肺是分析肺血管系统对氧供应变化生理反应的优良模型,可连续测量肺动脉压1。然而,该模型无法识别和分析对缺氧反应最强烈的血管节段。而我们的肺切片(PCLS)视频形态测量分析则具有这一优势,可实现对内径为20-100 µm的单个动脉的低氧性肺血管收缩(HPV)进行测量。PCLS是一种极具吸引力的体外(in vitro)模型,因其结构与来源器官高度相似。与细胞培养系统相比,所有细胞类型均保留在其原始的组织基质构型中。此外,单个肺即可制备大量PCLS,因此至少可在一定程度上通过使用同一只小鼠的肺组织切片来实现实验的标准化。根据Russell和Burch提出的3R原则(在生命科学中减少、优化和替代实验动物)23,这一特点也支持采用PCLS进行研究。
然而,必须注意的是,使用振动切片机切割会造成组织损伤,从而可能影响沿内皮细胞等途径的纵向信号传递,正如Kübler所提出的那样 等.14 已无法实现。
最初,肺切片(PCLS)主要用于生物化学、药理学和毒理学研究,但目前也已用于支气管收缩性、黏膜纤毛功能及血管反应的测定(相关综述见 Sanderson20 和 Davies21)。Held et al. 开展了一项研究,比较了离体灌注与通气小鼠肺模型与 PCLS 模型24。他们通过分析气道和肺血管对多种内源性介质的反应,发现 PCLS 保留了完整肺脏的重要特性。
在PCLS中,低氧条件并非通过气道建立(如完整肺脏那样),而是通过将肺组织切片孵育于充有低氧气体的培养基中来实现。我们已分析了氧分压(pO2) 含1% O₂预通气的培养基2,5.3% CO2,93.7% N2 以及21% O₂2,5.3% CO2,73.7% N2分别使用血气分析仪测定。在将其输入灌注室之前立即测定pO2 低氧气体饱和MEM的氧分压为40 mmHg,而常氧气体饱和培养基的氧分压为160 mmHg6在完整肺脏中,当肺泡氧分压降低时,低氧性肺血管收缩(HPV)被诱导。2 低于 50 mmHg25,这种情况可通过使用低氧气体处理的培养基明显模拟。我们在HPV程度上的数据与采用不同实验方法所得结果高度一致。Yamaguchi 等采用离体大鼠肺组织,结合高灵敏度带图像增强器的相机,通过实时共聚焦激光扫描发光显微镜观察直径为20–30 µm的微血管10他们观察到肺部暴露于低氧环境后,血管直径平均减少了2.7 µm。可以计算出,在本实验系统中测得的管腔面积减少20%约相当于直径减少15%。
在我们的实验中,根据内径大小将动脉分别分类为肺泡前血管和肺泡内血管,其内径范围分别为 40–100 µm 和 20–40 µm。在人体中,肌性动脉向非肌性动脉的转变发生在内径 70–100 µm 的范围内。在小鼠中,平滑肌细胞可存在于外径低至 20 µm 的动脉中26。因此,无法对内径小于 20 µm 的动脉进行分析,因为无法基于相差图像可靠地识别这些血管。另一方面,在肺切片(PCLS)中,内径大于 100 µm 的血管很难找到,且通常在制备过程中被从周围组织中剥离去除。
事实上,已有多种分子被讨论作为分子氧感受器或作为导致低氧性肺血管收缩(HPV)信号级联中的组分(综述见 Sylvester et al.4)。一旦获得合适的基因敲除小鼠,即可利用视频形态测量技术分析肺前小动脉和肺泡内小动脉与野生型动物相比的血管反应性。然而,肺切片(PCLS)也被用于其他研究:Faro et al. 利用其表征出生后肺内皮依赖性舒张功能的发育过程29;而通过每日暴露于烟雾或空气持续2周的豚鼠制备的肺切片,则被用于证明香烟烟雾通过诱导内皮功能障碍对血管反应性产生的影响30。
方案中的关键步骤
在我们的实验中,将动脉分为小叶前动脉(内径为40-100 µm)和小叶内动脉(内径为20-40 µm)。特别是对于需要用于分析较大血管的肺组织切片制备而言,在灌注缓冲液中添加硝普钠至关重要。该药物可防止样本制备过程中血管收缩,从而避免血管从周围组织撕脱,导致血管舒张不完全。而对于用于分析小动脉的肺组织切片制备,灌注缓冲液中是否含有硝普钠则不那么重要,因为小动脉与肺泡隔紧密锚定,不易脱落。
所有实验均应从孵育开始,以检测动脉的反应性。极少数情况下,我们会获得肺组织样本,其中血管对收缩剂或舒张剂均无明显反应。原因尚不明确:可能是注入肺内的琼脂糖体积过大或过小,导致将器官切割成肺切片(PCLS)时操作不理想。另一种可能是,在灌注过程中琼脂糖冷却过快,产生损伤性的剪切应力。若某个单独的肺切片中无法观察到有活性的动脉,则该切片必须弃用,并更换为其他切片。
动脉存活性的判断基于其对U46619的反应。以0.1 µM浓度施加U46619可诱导血管收缩,经过一定时间后,该收缩效应可直接在屏幕上的图像序列中观察到。由于血管反应性存在一定变异,我们通过依次检测药物处理组和仅培养基对照组的肺组织切片中的血管反应,来评估该药物对缺氧性肺血管收缩(HPV)的影响。
单个动脉的高血压病变(HPV)在显微镜下通常难以察觉,平均仅导致管腔面积减少约20-30%。然而,动脉直径的微小变化对血流阻力具有显著影响。根据公式"R = 1/r4"(其中R表示阻力,r表示半径),血流阻力与半径的四次方成反比。举一个例子:一条呈圆形横截面的"理想动脉",其直径为40 µm(r=20 µm),管腔面积约为1,260 µm2。当管腔面积减少20%时,可计算出血管直径减少10.5%,降至35.8 µm(r=17.9 µm)。根据上述公式,该血管的血流阻力将从6.25 × 10⁻⁶增加至9.71 × 10⁻⁶,即增加约55%。若管腔面积减少30%,半径将减少约16%,而血流阻力则会增加约100%。尽管这些计算基于对层流血流和刚性管道状血管形态的假设,属于简化模型,但仍提示了即使血管直径发生轻微变化,也会对血流阻力产生显著影响。
披露
作者无任何利益冲突需要披露。
致谢
本研究由心肺系统卓越集群资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 振动切片机 "Microm HM 650 V" | Microm/Thermo Fisher Scientific, Schwerte, Germany | ||
| 微波炉 | Bosch, Frankfurt, Germany | HMT 702C | |
| 加热恒温箱 | Heraeus/Thermo Fisher Scientific, Schwerte, Germany | ||
| 流通式灌流腔 | Hugo Sachs Elektronik, March, Germany | PCLS-Bath Type: 847 SN:4017 | |
| 配备 4X、10X、20X 和 40X 物镜的正置倒置显微镜 | Leica, Wetzlar, Germany | ||
| CCD 相机 | Stemmer Imaging, Puchheim, Germany | ||
| 蠕动泵 Minipuls 3 | Gilson, Limburg-Offheim, Germany | ||
| 水浴锅 “Universal Wasserbad Isotem 205” | Thermo Fisher Scientific, Schwerte, Germany | 9452450 | |
| 气密管 Tygon R3603-13 Øi: 3/32 英寸,Øa: 5/32 英寸,壁厚:1/32 英寸 | VWR, Darmstadt, Germany | ||
| 各种剪刀和镊子 | |||
| 缝纫棉线 | |||
| 2 ml 注射器 | Braun-Melsungen AG, Melsungen, Germany | ||
| 50 ml 注射器 | Braun-Melsungen AG, Melsungen, Germany | ||
| 静脉留置针的柔性塑料管 “IntrocanR-W”(针头 20 G × 1 ¼ 英寸,1.1 × 32 mm) | Braun-Melsungen AG, Melsungen, Germany | 4254112B | 用于将琼脂糖灌注至肺内 |
| 针头 21 G × 4 ¾ 英寸;0.8 × 120 mm | Braun-Melsungen AG, Melsungen, Germany | 4665643 | 用于培养基通气 |
| 针头编号 17,24 G × 1,0.55 × 25 mm | Terumo, Eschborn, Germany | NN 2425 88DSF18 | 用于肺灌注 |
| 常氧气体混合物(21% O2,5.3% CO2,73.7% N2) | Linde, Hildesheim, Germany | ||
| 低氧气体混合物(1% O2,5.3% CO2,93.7% N2) | Linde, Hildesheim, Germany | ||
| HEPES | Sigma, Deisenhofen, Germany | H 4034 | |
| NaCl | Roth, Karlsruhe, Germany | 3957.1 | |
| KCl | Merck, Darmstadt, Germany | 1.04936.0500 | |
| MgCl2•6H2O | Merck, Darmstadt, Germany | 1.05833.0250 | |
| CaCl2•2H2O | Merck, Darmstadt, Germany | 1.02382.0500 | |
| 葡萄糖 D-(+) | Sigma, Deisenhofen, Germany | G 7021 | |
| 低熔点琼脂糖 | Bio-Rad, Munich, Germany | 161-3111 | |
| 肝素钠 | Ratiopharm, Ulm, Germany | 5120046 | |
| 无酚红最低必需培养基(MEM) | Invitrogen, Darmstadt, Germany | 5120046 | |
| 用于消毒的 70% 乙醇 | Stockmeier Chemie, Dillenburg, Germany | ||
| 强力胶 | UHU, Bühl/Baden, Germany 或超市购买 | ||
| U46619(一种血栓素类似物) | Calbiochem/Merck, Darmstadt, Germany | 538944 | |
| 硝普钠(Nipruss) | Schwarz Pharma, Monheim, Germany | 5332804 | |
| Optimas 6.5 软件 | Stemmer, Puchheim, Germany | ||
| SPSS 19 | AskNet, Karlsruhe, Germany |
参考文献
- Weissmann, N., Akkayagil, E., et al. Basic features of hypoxic pulmonary vasoconstriction in mice. Respir. Physiol. Neurobiol. 139, 191-202 (2004).
- Leach, R. M., Hill, H. M., Snetkov, V. A., Robertson, T. P., Ward, J. P. T. Divergent roles of glycolysis and the mitochondrial electron transport chain in hypoxic pulmonary vasoconstriction of the rat: identity of the hypoxic sensor. J. Physiol. 536, 211-224 (2001).
- Tabuchi, A., Mertens, M., Kuppe, H., Pries, A. R., Kuebler, W. M. Intravital microscopy of the murine pulmonary microcirculation. J. Appl. Physiol. 104 (2), 338-3346 (2008).
- Sylvester, J. T., Shimoda, L. A., Aaronson, P. I., Ward, J. P. Hypoxic pulmonary vasoconstriction. Physiol. Rev. 92 (1), 367-520 (2012).
- Schumacker, P. T. Lung cell hypoxia: role of mitochondrial reactive oxygen species signaling in triggering responses. Proc. Am. Thorac. Soc. 8 (6), 477-4784 (2011).
- Paddenberg, R., König, P., Faulhammer, P., Goldenberg, A., Pfeil, U., Kummer, W. Hypoxic vasoconstriction of partial muscular intra-acinar pulmonary arteries in murine precision cut lung slices. Respir. Res. 29 (7), 93-109 (2006).
- Paddenberg, R., et al. Mitochondrial complex II is essential for hypoxia-induced pulmonary vasoconstriction of intra- but not of pre-acinar arteries. Cardiovasc. Res. 93 (4), 702-710 (2012).
- Wang, L., Yin, J., et al. Hypoxic pulmonary vasoconstriction requires connexin 40-mediated endothelial signal conduction. J. Clin. Invest. 122 (11), 4218-4230 (2012).
- Archer, S. L., Huang, J. M., et al. Differential distribution of electrophysiologically distinct myocytes in conduit and resistance arteries determines their response to nitric oxide and. 78, 431-442 (1996).
- Yamaguchi, K., Suzuki, K., et al. Response of intra-acinar pulmonary microvessels to hypoxia, hypercapnic acidosis, and isocapnic acidosis. Circ. Res. 82, 722-728 (1998).
- Bennie, R. E., Packer, C. S., Powell, D. R., Jin, N., Rhoades, R. A. Biphasic contractile response of pulmonary artery to hypoxia. Am. J. Physiol. 261(2 Pt. 1, 156-163 (1991).
- Glazier, J. B., Murray, J. F. Sites of pulmonary vasomotor reactivity in the dog during alveolar hypoxia and serotonin and histamine infusion). J. Clin. Invest. 50 (12), 2550-2558 (1971).
- Bhattacharya, J., Staub, N. C. Direct measurement of microvascular pressures in the isolated perfused dog lung. Science. 210, 327-328 (1980).
- Kuebler, W. M. Real-time imaging assessment of pulmonary vascular responses. Proc. Am. Thorac. Soc. 8 (6), 458-4565 (2011).
- Martin, C., Uhlig, S., Ullrich, V. Videomicroscopy of methacholine-induced contraction of individual airways in precision-cut lung slices. Eur. Respir. J. 9 (12), 2479-2487 (1996).
- Grimminger, F., Spriestersbach, R., Weissmann, N., Walmrath, D., Seeger, W. Nitric oxide generation and hypoxic vasoconstriction in buffer-perfused rabbit lungs. J. Appl. Physiol. 78, 1509-1515 (1995).
- Ng, L. C., Kyle, B. D., Lennox, A. R., Shen, X. M., Hatton, W. J., Hume, J. R. Cell culture alters Ca2+ entry pathways activated by store-depletion or hypoxia in canine pulmonary arterial smooth muscle cells. Am. J. Physiol. Cell Physiol. 294 (1), 313-323 (2008).
- Fehr, D. M., Larach, D. R., Zangari, K. A., Schuler, H. G. Halothane constricts bovine pulmonary arteries by release of intracellular calcium. J. Pharmacol. Exp. Ther. 277 (2), 706-713 (1996).
- Oshima, Y., Ishibe, Y., Okazaki, N., Sato, T. Isoflurane inhibits endothelium-mediated nitric oxide relaxing pathways in the isolated perfused rabbit lung. Can. J. Anaesth. 44 (10), 1108-1114 (1997).
- Sanderson, M. J. Exploring lung physiology in health and disease with lung slices. Pulm. Pharmacol. Ther. 24 (5), 452-465 (2011).
- Davies, J. Replacing Animal Models: A Practical Guide to Creating and Using Culture-based Biomimetic Alternatives (Google eBook. , John Wiley & Sons. 57-68 (2012).
- Müller-Redetzky, H. C., Kummer, W., et al. Intermedin stabilized endothelial barrier function and attenuated ventilator-induced lung injury in mice). PLoS One. 7 (5), (2012).
- Russell, W. M. S., Burch, R. L. The Principles of Humane Experimental Technique. Universities Federation for Animal Welfare. , Wheathampstaed, UK. (1959).
- Held, H. D., Martin, C., Uhlig, S. Characterization of airway and vascular responses in murine lungs. Br. J. Pharmacol. 126 (5), 1191-1199 (1999).
- Köhler, D., Schönhofer, B., Voshaar, T. Pneumologie: Ein Leitfaden für rationales Handeln in Klinik und Praxis. Thieme Verlag. , 198-19 (2009).
- Will, J. The Pulmonary Circulation. in Health and Disease. Elsevier Science, p49. , (1987).
- Faro, R., Moreno, L., Hislop, A. A., Sturton, G., Mitchell, J. A. Pulmonary endothelium dependent vasodilation emerges after birth in mice. Eur. J. Pharmacol. 567 (3), 240-244 (2007).
- Wright, J. L., Churg, A. Short-term exposure to cigarette smoke induces endothelial dysfunction in small intrapulmonary arteries: analysis using guinea pig precision cut lung slices. J. Appl. Physiol. 104, 1462-1469 (2008).
重印与许可
