采用切开式凡士林间隙法可对表达于Xenopus卵母细胞中的电压门控离子通道进行离子电流和门控电流的低噪声记录,从而高分辨率地研究通道的快速动力学特性。经过少量修改后,电压钳位荧光法可与切开式卵母细胞记录方案相结合。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
切开式卵母细胞石蜡封隔(COVG)电压钳技术可用于分析异源表达离子通道的电生理学和动力学特性。利用切开式装置进行记录特别有助于解析微弱的门控电流、快速的离子电流激活与去激活过程。与双电极电压钳(TEVC)技术相比,其主要优势包括更快的钳制速度、更高的信噪比,以及能够调控细胞内和细胞外环境。
在此,我们采用在非洲爪蟾卵母细胞(Xenopus oocytes)中表达的人心脏钠离子通道(hNaV1.5),演示切开口式记录装置及其操作流程,并介绍为实现电压钳位荧光测量功能所需进行的改进。
使用双电极电压钳(TEVC)技术在接近室温条件下难以完全解析快速激活的离子通道(如hNaV1.5)的特性,因为该方法会对卵母细胞的整个膜进行钳制,导致电压控制困难。然而,在切开式电压钳技术中,仅隔离细胞膜的一小部分即可实现快速钳制,从而精确记录快速动力学过程,同时避免了膜片钳技术中常见的通道功能衰减问题。
结合COVG技术,还可通过电压钳位荧光法进一步检测离子通道的动力学特性及电生理学性质。该方法通过将荧光染料经细胞外施加并与半胱氨酸共价结合、插入基因编码的荧光蛋白,或在目标区域引入非天然氨基酸来追踪蛋白质的运动1。这些额外的数据可通过荧光分子周围微环境的变化,提供有关蛋白质电压依赖性构象重排的动力学信息。
引言
特化的电压钳制技术能够在受控的膜电位下记录离子电流。广泛应用的双电极电压钳(TEVC)和膜片钳技术可提供有关多种离子通道特性的可靠电生理学信息。然而,这两种方法均存在局限性,导致难以获取在非洲爪蟾(Xenopus)卵母细胞等膜系统中快速激活的电压门控钠通道及其他快速激活通道的可靠数据。因此,Bezanilla 和 Stefani 实验室开发了卵母细胞的切口式凡士林间隙电压钳技术(COVG)2。该技术已被广泛应用于记录 Na+、K+ 和 Ca2+ 通道3-8。
在进行COVG记录时,表达异源蛋白的卵母细胞膜被分为三个区域。离子电流数据从卵母细胞的顶部区域记录,该区域周围的浴液被钳制在指令电位,且该电位可轻松快速地改变。中间区域通过与顶部区域保持相同的钳制电位,防止漏电流的干扰9。底部区域则通过皂苷溶液或套管实现卵母细胞的开放(切开)。在底部区域对膜进行化学或手动打开,可控制细胞内电位(该电位被钳制在接地电位),并使细胞内部与下室溶液连通。向下方腔室灌注溶液可调节细胞内环境的性质,而更换上方腔室的溶液则可改变细胞外环境。
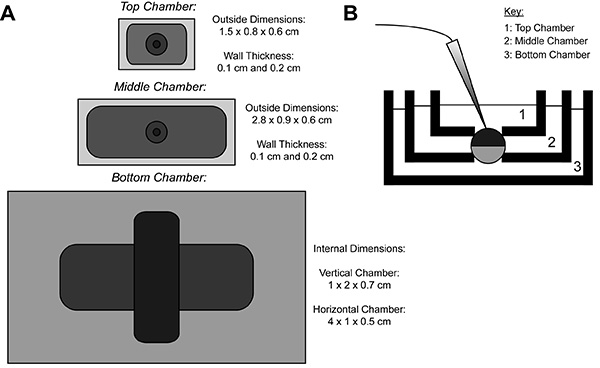
图1. 卵母细胞切开式电压钳装置示意图。(A)三个相互隔离的浴槽自上而下的视图。图中显示了COVG装置中各腔室的尺寸。(B)测试状态下浴槽装置的侧视图。点击此处查看高清图像。
COVG 技术的优点包括低电流噪声(3 kHz 时为 1 nA)、对外部介质离子成分的控制能力、对内部介质进行调节的能力、快速的时间分辨率(电容瞬变衰减的时间常数为 20–100 μsec),以及可持续数小时的稳定记录9。其缺点是需要专用设备,且操作难度较双电极电压钳制(TEVC)更高10。
尽管COVG方法需要高度专业化的设备和复杂的操作步骤,但它能够获取有价值的电生理学数据。这类数据(如具有快速动力学的门控电流和尾电流4)可在避免其他电压钳制方案常见问题(如通道衰减)的情况下被记录。对COVG装置进行轻微改进后,还可兼容温度控制器和电压钳荧光法(VCF)。在COVG系统中整合电压钳荧光元件,可增强数据输出能力,实现在记录电流的同时监测蛋白质构象变化11-13。
访问受限。请登录或开始试用以查看此内容。
方案
1. 初始设备设置
- 将显微操作仪和微电极操纵器放置在隔振系统上(例如 配备周围法拉第笼的气浮台,以防止电和机械噪声。
- 将六个 Ag/AgCl 小球焊接到六英寸长的 24 AWG 导线上。其中一根导线(将连接至 P1)需拼接第二根导线,形成“Y”形。在每根导线的末端焊上放大器附带的镀金 BNC 插针。
- 将焊接在24 AWG导线上的五个Ag/AgCl颗粒连接至浴槽/保护电极头级(Bath/Guard headstage)的P1、P2、CC、GS1和GS2接口。将标记为“I”的Ag/AgCl颗粒连接至“I”头级,并将从P1引出的第二根导线连接至V2头级。
- 根据设备说明书中的指示,将放大器连接到数据采集单元。
- 放置并用环氧树脂固定温度控制器的热敏电阻。将模块热敏电阻穿过金属支架上的一个孔,该孔位于加热/冷却元件正上方的中心位置。在导温底室本体上钻出的一个孔中放置浴槽热敏电阻,位置应非常靠近但不接触溶液,并用环氧树脂固定。
2. 卵母细胞及初步准备
- 记录异源表达的通道(如 hNa)V1.5,合成mRNA(源自hSCN5a)并将其注入 非洲爪蟾 卵母细胞在执行方案4前约4-5天进行操作。对于hSCN5a,于4-5天孵育后可获得峰值表达 19 °C参考 Richards 和 Dempski14 和 Cohen 等15 有关卵母细胞、mRNA 制备和卵母细胞注射的详细说明。
- 在开始方案4之前,对AgCl导线和AgCl颗粒进行氯化处理。具体操作为:将导线的一端和颗粒放入漂白剂中至少20分钟,最长可过夜(O/N)。待颗粒完成氯化后,使用粘合剂将其固定至多通管上。
注意:通过导线施加电流也可用于对导线和银氯化物颗粒进行氯化处理。该技术可加快氯化速度,但需要更多的设备。参见 银丝氯化技术 如需进一步指导16.
3. 琼脂糖凝胶电泳桥的制备
- 通过在中等火焰中加热硼硅酸盐毛细管的一端,制备至少六根琼脂桥。确保毛细管末端位于蓝色火焰的上部。建议多制备几根备用桥,以防原始桥损坏。
- 毛细管加热后,使用镊子将其弯成90°角。应使弯曲处呈平滑弧形,避免形成尖锐拐角,否则可能显著减小玻璃管的内径,增加填充难度并提高桥电阻。
- 在第一个弯折点下方25 mm处,沿相同方向用相同方法制作第二个90°弯折。
注意:只要琼脂桥尺寸保持一致,其具体长度并不关键,但最终长度应适配所使用的实验装置。需注意桥电阻与其长度成正比,应尽量减小。 - 待毛细管冷却后,使用金刚石玻璃切割器将桥的“支脚”修剪至约5 mm。
- 将铂丝插入三根“供电流”桥的毛细管中,以降低琼脂中的电阻,提高性能17。剪除多余铂丝,确保管外无裸露金属。
注意:由于铂成本较高,应从损坏的桥中回收并重复使用铂丝。 - 使用尖细工具(如微量移液器吸头)将铂丝进一步推入毛细管,使铂丝在毛细管两端均比玻璃短1 mm。
- 配制100 ml含1 M NMDG并用1.2 g HEPES缓冲的溶液。使用pH计,并加入MES水合物粉末调节至pH 7.4(约10 g)。达到pH 7.4后,取出pH电极。保留40 ml该溶液作为储备液。
- 加入颗粒状琼脂,配制成2–3%的琼脂混合液。搅拌并加热至琼脂完全溶解且溶液澄清。避免过度加热或煮沸,否则溶液将过于黏稠,导致填充困难。
- 将琼脂溶液转移至新烧杯中,并加入小磁力搅拌子。继续以中等速度加热并搅拌。
- 逐个将琼脂桥支脚朝上放入溶液中。随着时间推移,桥内将自行充满琼脂。也可通过连接小移液器吸头的注射器将琼脂溶液推入桥内进行填充。
- 当桥内无气泡时,从琼脂溶液中取出琼脂桥并置于纸巾上干燥。若桥内残留气泡,可用镊子轻轻震动以促进气泡排出。
注意:含有气泡的已凝固琼脂可通过将桥浸入沸水中完全去除。去除琼脂后,使用真空管线抽除残留水分。随后可重复使用这些桥进行琼脂处理。 - 干燥后去除桥上多余的琼脂。向40 ml储备液中加入60 ml水,并将琼脂桥置于该储存液中保存。
4. 切开式记录装置的制备
- 打开温度控制器的水源,然后打开温度控制器的电源开关。等待浴液温度达到指定温度(19 °C)。
- 使用微电极拉制仪将硼硅酸盐毛细玻璃管拉制成微电极,使其电阻为 0.2–0.5 MΩ。
注意:降低移液管电阻可提高钳制速度。然而,电阻较低的移液管更容易损伤卵母细胞。需通过实验确定每种应用的最佳移液管电阻值。 - 将 0.125 g 干燥皂苷与 50 ml 内液混合,配制皂苷溶液,得到 0.25% 的溶液。轻轻颠倒混匀。
- 在解剖显微镜下,用极细的工具将少量凡士林涂抹在中间室上表面孔洞边缘以及上室下表面边缘。
注意:环形凡士林有助于将卵母细胞固定在孔上方,并促进封接形成。但凡士林过多会困住气泡,阻碍溶液接触卵母细胞表面。 - 向装有 Ag/AgCl 颗粒的歧管槽中加入 3 M KCl 溶液,使溶液不溢出槽外,但完全覆盖颗粒和盐桥末端。清除多余的 KCl 液滴,防止槽间产生不必要的电连接。
- 向底部和中间浴槽室中加入外液。
- 将琼脂盐桥插入 AgCl 颗粒歧管的槽中,使每个桥的一条腿插入一个槽内。盐桥的另一条腿稍后将分别放入对应的腔室(P1、P2、CC 上部;GS1、GS2 中部(保护);I 下部)。确保铂丝盐桥插入 GS2、P2 和 I 槽中。
注意:插入腔室浴液前,确保盐桥已用蒸馏水清洗并完全干燥。 - 打开数据采集系统和计算机。启动记录软件。
5. 切开操作步骤
- 不放置卵母细胞,安装上层和中层卵母细胞室。将上层室偏移滑动,使两层室的孔洞不重叠。用外部溶液填充所有室,并将所有电极放入相应的室中。
注意:安装小室时,不要将上层小室完全压到底。确保两层小室之间仍留有极小的间隙。这种偏心排列可增加小室系统的电阻,从而更好地模拟细胞的存在。该过程称为“平衡电桥”,用于补偿因琼脂桥不均一而可能产生的偏移电位。- 关闭外部指令和两个夹持器。检查放大器上的电流读数。使用小螺丝刀调节浴槽/防护头架背面的P偏移,使电流归零。
- 将放大器上的灌流/保护开关切换至激活状态,并调节GS偏移量以获得零电流。
- 在“激活”和“失活”之间重复,直至两者均接近零< 100 nA。
- 移除上层腔室,使用移液泵将一枚卵母细胞转移至中间的浴槽腔室中。确保卵母细胞位于浴槽中央孔洞的正上方。
注意:进行VCF实验时,在准备卵母细胞的过程中,应将标记的细胞放入样品室,使动物极(颜色较深的一侧)朝上。若不进行VCF实验,则细胞方向无关紧要。 - 使用吸管从底部浴液中移除多余的外部溶液,以在卵母细胞与浴液表面之间形成密封。
- 将上部浴槽室置于卵母细胞上方,使室中的孔洞对准卵母细胞中心。用拇指和中指缓慢向下施加压力,直至浴槽室紧密压在卵母细胞上,从而使仅有小部分膜通过孔洞暴露于上方浴液中。
注意:卵母细胞可能因上室的压力而凸起。切勿对上室施加过大的力量,以免导致卵母细胞破裂。可使用镊子尖端置于上室对角的两个角落,代替手指施加向下的压力。 - 向上下两个浴槽中加入外部溶液,直至接近装满。
- 将琼脂桥的游离端放入每个浴槽的外部溶液中,如图所示。 图2 (桥接放置)。确保每个桥接位于其正确的浴槽位置(I 桥接在底部浴槽,GS1 和 GS2 桥接在中间浴槽,P1、P2 和 CC 桥接在上部浴槽)。将放大器上的浴槽/保护开关切换至激活状态。
注意:确保桥管、桥管井与记录室之间没有3 M KCl连接。此外,桥管应制作成高于记录室溶液的位置。
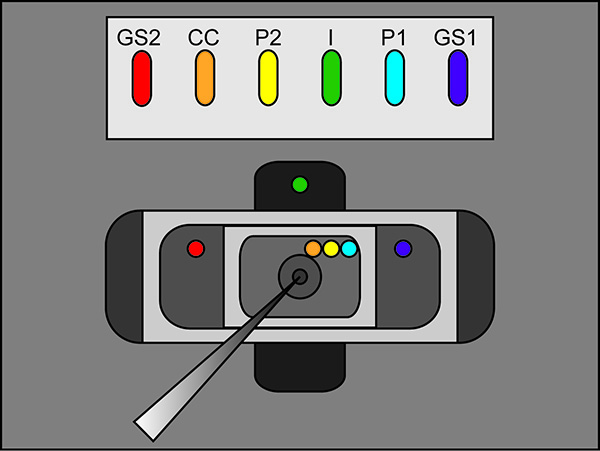
图2. 琼脂桥设置位置示意图 琼脂桥自由端在不同浴槽中的放置位置。 单击此处查看大图. - 在记录软件中启动测试程序。当施加100 mV脉冲时,若脉冲信号在两个峰之间的水平段出现垂直偏移,且偏移量超过100 nA(在浴液/屏蔽电极处于被动状态时对应0.3 MΩ),则应进一步拧紧浴液室盖。参见 图3 理想测试脉冲的示例。
注意:测试程序会发出一个电压脉冲,以检测浴槽盖是否密封足够紧密,以及所有组件是否已正确组装。或者,也可使用放大器的测试功能。
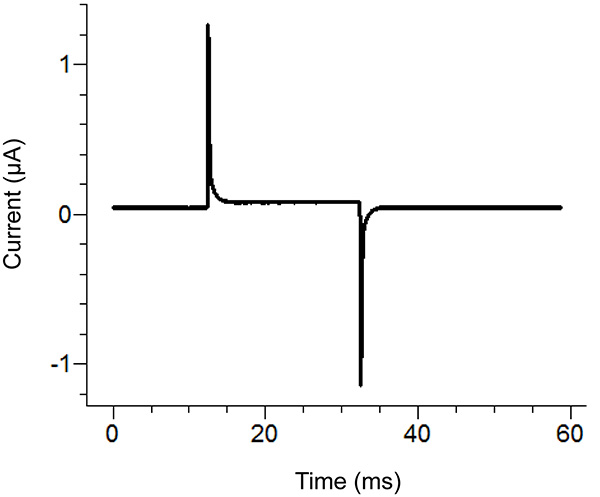
图3. 记录软件中的理想测试脉冲。 测试脉冲的形态应根据所采用的方案与上述脉冲相似。保持电流(中心基线)应接近于零。 单击此处以查看大图. - 移除底部浴槽中的外部溶液,并替换为皂苷溶液。添加皂苷溶液时需小心,避免产生气泡。为确保充分置换,在添加溶液的同时,于底部浴槽的另一端施加吸力。
- 加入皂苷溶液后,观察重复的测试脉冲。如果测试程序的峰值减小或消失,则表明卵母细胞下方存在气泡。此时,应完全移除皂苷溶液,然后重新更换。
注意:使用新鲜的皂苷溶液时,通常在30秒内即可完成透化。如果存在气泡残留,或卵母细胞消化不充分而仍保留滤泡层,则溶液可能难以到达细胞。当电压尖峰的斜率减小(衰减时间常数增加)时,表明卵母细胞已实现透化(细胞膜已打开)。
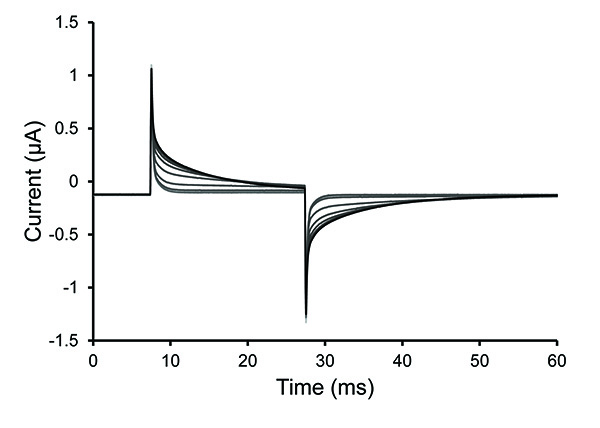
图4. 卵母细胞透化过程中的测试脉冲轨迹。 皂苷溶液(0.25%)加入卵母细胞底部腔室后,测试脉冲方案中选取的电流迹线。迹线中衰减时间常数的增加表明卵母细胞通透性增强。 单击此处以查看大图. - 细胞破膜后,移除皂苷溶液,用胞内液填充浴液,并停止测试程序。
注意:尽管皂苷可通过透化细胞膜使物质进入细胞内部,但下层浴液与卵母细胞胞质之间的离子浓度通过扩散达到平衡是一个非常缓慢的过程,可能需要数十分钟,具体时间取决于实验条件。图5). - 检查灌流槽中是否有过多溶液,以及多孔板孔间是否存在结晶的 KCl,因为这些情况可能导致短路和异常行为。
- 使用改装后的注射器将3 M KCl注入微电极中。用一只手的指头轻轻弹击微电极数次,同时用其余手指固定微电极。
注意:此步骤旨在去除微电极内残留的气泡。 - 将充满KCl的电极安装到显微操作臂上,方法是将导线丝插入敞开的微电极末端。将微电极末端推入导线丝固定座中,并确保电极无松动。拧紧电极固定装置。
注意:确保导线具有均匀的氯化银(AgCl)涂层,以保证电极正常工作。 - 将机械臂摆动至卵母细胞培养皿上方的指定位置,并拧紧夹具以防止机械臂进一步移动。
- 使用操纵杆旋钮将电极缓慢移入浴液中。确保此时未施加测试脉冲,且未激活膜测试功能。
注意:在将电极尖端插入液体之前,电压钳上的 V1-V2 会显示一个正值电压。一旦电极尖端插入液体,电压钳上的电压表读数应变为接近零的数值。对于 VCF 记录,电极需以较浅的角度接近细胞,以便为物镜留出空间。将电极偏心刺入细胞,即靠近分离膜片边缘的位置,也有助于避免物镜与电极发生碰撞。 - 停止继续下移电极。按下 V1 按钮,然后调节 V1 偏移量将 V1 电压降至零,以将电极偏置电位设为零。同样,对 V2 执行相同的调节。此时电位差 V1-V2 应显示为 000 mV。
- 切换回 V1 并开启 Z 测试以测量电极电阻。该数值将逐渐下降并趋近于实际电阻值。目标电阻值应为 0.2–0.5 MΩ。
- 继续将电极向下移动,靠近上部浴液中可见的卵母细胞区域。当微电极非常接近卵母细胞时,观察 V1-V2 读数以判断电极何时进入卵母细胞;当微电极进入细胞时,V1-V2 电压将变为负值。
注意:此时显示的数值为细胞的膜电位,其大小受所表达的通道蛋白及所用溶液的影响。微电极插入过深会损伤细胞膜。 - 在记录软件中打开数据采集协议。
- 打开电压钳的钳制开关,并调节电位以匹配指令电位(例如 通过调节“I”放大器头端上的旋钮,将电压调整至-100 mV。
- 打开电容和电阻补偿开关。
- 在电压钳的“命令”区域打开“测试”开关。使用示波器观察信号。调节信号调理部分的Cm补偿旋钮,以减小示波器上的电容瞬变。避免过度补偿峰形,防止出现额外的反向峰或峰形开始呈现S形弯曲,否则可能在记录中引入伪迹。
- 当电容已手动降低至满意水平后,关闭测试开关。
- 在记录软件中启动数据记录程序。
6. 清理
- 记录完成后,关闭电压钳上的所有开关,包括钳制开关和浴液/屏蔽开关。
- 使用镊子从各个浴槽中取出琼脂桥。
- 取下顶部浴槽,并用抽吸法清除所有浴槽中的溶液和卵母细胞。
- 用去离子水冲洗所有浴槽,然后用真空泵抽吸。重复此步骤 3–5 次。
- 擦去桥上的结晶 KCl,并将桥放入储存液中。只要妥善保存,桥可重复使用数周。
- 从多通管孔中抽吸 KCl 溶液,并用去离子水多次冲洗多通管。
- 关闭所有设备,包括温度控制器和记录软件。
7. 电压钳制荧光法的添加
- 遵循先前发表的 JoVE 方案中第 1 至第 6 节的步骤16 研究膜蛋白的构象动力学 原位 采用位点特异性荧光标记: 点击此处查看页面。
- 按照上述 COVG 方案中的第 4 至 5.22 步,使用设定为 4X 焦距的 VCF 显微镜进行操作。
注意:VCF记录所需的卵母细胞浴槽室比COVG测量所用的更大。(定制VCF浴槽室的尺寸见材料清单。)这种较大的VCF浴槽室必须能够同时容纳物镜、微电极和琼脂桥。此外,为了获得低背景的VCF记录,卵母细胞的动物极(深色一侧)必须朝上放置于浴槽室内。 - 使用水浸40X物镜将卵母细胞的上部调至焦点。
注意:从4X物镜切换到40X物镜时,需确保切开式组件具有特定的几何构型,并需格外小心,避免在降低40X物镜时触碰到电极、盐桥或浴槽。此外,由于顶部防护罩内的体积增大,当40X物镜就位后,应确保顶部防护罩中的灌流液不与中间防护罩相连通。 - 聚焦于暴露的卵母细胞表面边缘的环形区域,使卵母细胞的最顶端略高于焦平面。
注意:可能需要在 x-y 平面进行调整,以使视野主要被膜占据,而非腔室。通过将显微镜置于平移台上,可最方便地实现 x-y 方向的平移。 - 将滤光立方体移入光路,并将光路从目镜切换至检测器(二极管)。
- 打开VCF光源。
- 关闭顶灯、光纤光源照明器及其他光源。
注意:理想情况下,VCF 记录应在完全黑暗的房间内进行。 - 在记录软件中运行荧光检测程序。
访问受限。请登录或开始试用以查看此内容。
结果
图4展示了向卵母细胞底部施加皂苷溶液后,卵母细胞通透性的变化。图5展示了皂苷透化后,细胞内溶液通过扩散进行交换的速率。达到稳态需要20-40分钟2,18。
图6A展示了由记录程序生成的电流轨迹。该图显示了经过P/-8漏电流减除后的离子电流对电压程序(插图)的响应。图中每条轨迹代表不同的施加电压。动力学最慢的轨迹代表钠通道能够开放的最低电位。通常情况下,使用传统方法难以在这些较低电位下维持电压控制,因为内向电流会使膜去极化。这种去极化反过来会激活更多通道,形成正反馈环路。而切开式技术改进的钳制速度使得即使在这些困难的电位下也能实现记录通道所需的电压控制。
图6B 显示了由 图6A 中的记录生成的电流/电压曲线。若未采用上述电压控制,最早电位(约 -60 mV)下的峰值电流将被高估,从而导致无法准确描述电流-电压关系。
访问受限。请登录或开始试用以查看此内容。
讨论
切开式卵母细胞石蜡封隔电压钳技术能够实现数据的快速解析、低噪声、对胞内液和胞外液成分的更好控制,并在相对较长的实验方案中保持稳定的记录19。这些优势使该技术区别于标准的双电极电压钳和膜片钳技术。尽管该技术需要专用设备且操作流程相对复杂,但一旦系统经过优化,极少出现问题。这使得钠离子通道(hNaV1.5)及其他快速激活通道的可重复记录成为可能。
该实验方案中最关键的步骤是将上室放置于卵母细胞上以及使用 V1 电极进行穿刺。细胞与上室孔边缘之间密封的紧密程度对记录质量有重大影响。必须将上室向下压紧细胞,以获得尽可能高的电阻,同时不损伤卵母细胞。此过程将导致卵母细胞隆起并变平,但需要根据经验并结合细胞质量来判断最佳压力,以防止细胞破裂。快速记录要求使用尽可能大的移液管开口,但必须确保在不损伤细胞的前提下能够稳定使用。应特别注意移液管的锥度,其倾斜程度应足够平缓,以避免在插入移液管尖端时显著扩大创口。穿刺操作应缓慢轻柔,一旦出现膜电位读数,应立即停止推进电极。
卵母细胞膜的损伤以及卵母细胞与...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
圣路易斯华盛顿大学心脏分子工程实验室全体成员。科学界面伯勒斯威康基金职业奖 - 1010299(授予 J.S.)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 外部溶液 | 品牌 | 货号 | [终浓度]、重量或体积 |
| N-甲基-D-葡萄糖胺(NMDG) | Sigma-Aldrich | M2004 | 25mM |
| MES 钠盐 | Sigma-Aldrich | M5057 | 90mM |
| HEPES | Research Products International | H75030 | 20mM |
| 氢氧化钙 | Sigma-Aldrich | 239232 | 2mM |
| MES 水合物 | Sigma-Aldrich | M8250 | 可变(调至 pH 7.4) |
| 内部溶液 | |||
| N-甲基-D-葡萄糖胺(NMDG) | Sigma-Aldrich | M2004 | 105mM |
| MES 钠盐 | Sigma-Aldrich | M5057 | 10mM |
| HEPES | Research Products International | H75030 | 20mM |
| 乙二醇双(2-氨基乙基醚)四乙酸(EGTA) | Sigma-Aldrich | E4378 | 2mM |
| MES 水合物 | Sigma-Aldrich | M8250 | 可变(调至 pH 7.4) |
| 去极化溶液 | |||
| KCl | Sigma-Aldrich | 221473 | 110mM |
| 氯化镁 | Sigma-Aldrich | M8266 | 1.5mM |
| 氯化钙 | Caisson | C021 | 0.8mM |
| HEPES | Research Products International | H75030 | 10mM |
| 移液管溶液 | |||
| KCl | Sigma-Aldrich | 221473 | 3M |
| 皂苷溶液 | |||
| 皂苷 | Sigma-Aldrich | 47036 | 0.125g |
| 内部溶液 | 见上文 | 50mL | |
| 琼脂桥溶液 | |||
| N-甲基-D-葡萄糖胺(NMDG) | Sigma-Aldrich | M2004 | 100ml 的 1M 溶液 |
| HEPES | Research Products International | H75030 | 1.2g |
| MES 水合物 | Sigma-Aldrich | M8250 | 可变(调至 pH 7.4) |
| 颗粒状琼脂 | Research Products International | A20250 | 3% |
| NMDG 储存溶液 | |||
| NMDG、HEPES、MES 水合物溶液 | 见上文 | 40ml | |
| 水 | 60ml | ||
| 材料/设备名称 | 公司 | 货号 | 备注/描述 |
| 高性能卵母细胞钳 | Dagan | CA-1B | |
| 数据采集系统 | Axon CNS | Digidata 1440A | |
| 示波器 | Tektronix | TDS 210 | |
| 机架式电源滤波器 | APC | G5 | |
| 加热/冷却浴温控器 | Dagan | HCC-100A | |
| PC | Dell | Optiplex 990 | |
| pCLAMP 10.3 电压钳软件 | Molecular Devices, LLC | pCLAMP10.3 | |
| TMC 振动控制台面平台 | TMC | 64 SERIES | |
| TMC 振动控制气浮台 | TMC | 20 Series | |
| V1/I 电极数据采集器 | Dagan | CA-1B 的组成部分 | |
| MX10L 微操纵器 | Siskiyou | MX10L | |
| 浴槽/屏蔽(I/V)前置放大器(含适当连接器) | Dagan | CA-1B 的组成部分 | |
| 显微镜 | Omano | OM2300S-JW11 | |
| 温控浴槽 | 定制或 Dagan | 定制或 HE-204C | 使用 Cool Polymers(D系列)材料自制的定制腔室。Dagan 也提供预制平台(HE-204C)。 |
| 定制 AgCl 颗粒容器 | 定制 | 定制 | 定制加工 |
| Ag/AgCl 电极颗粒,2.0 mm | Warner | E-206 | |
| 外部卵母细胞浴槽 | 定制或 Dagan | 定制或 CC-1-T-LB | 定制加工或从 Dagan 购买 |
| 内部卵母细胞浴槽 | 定制或 Dagan | 定制或 CC-TG-ND | 定制加工或从 Dagan 购买 |
| 用于琼脂桥和拉制电极的毛细管 | Warner | G150T-4 | |
| 显微镜、微操纵器和浴槽的可旋转支架 | Siskiyou | SD-1280P | |
| Fiber-Lite | Dolan-Jenner | LMI-600 | |
| 普通漂白剂 | Clorox | 470174-764 | |
| 非洲爪蟾卵母细胞(Xenopus laevis Oocytes) | Nasco | LM535M(性成熟雌性) | |
| 90 Na+ 外部溶液 | 参见溶液表 | ||
| 10 Na+ 内部溶液 | 参见溶液表 | ||
| 3 M KCl | 参见溶液表 | ||
| 皂苷 | Sigma-Aldrich | 47036 | |
| NMDG 储存溶液 | 参见溶液表 | ||
| 5mL 移液管 | SciMart | GS-52 | |
| 改良 KCl 电极注射器 | BD | 309659 | 塑料注射器头端熔化以允许向电极内注入溶液。也可购买 WPI 的 Microfil。 |
| 微型真空装置 | 定制 | 定制 | |
| 镊子 | VWR | 63040-458 | |
| 卵母细胞操作工具(移液泵) | VWR | 53502-222 | |
| 去离子水冲洗瓶 | VWR | 16649-911 | |
| 凡士林软膏 | Fisher Scientific | 19-086-291 | |
| 进行 VCF 记录所需的额外材料: | |||
| VCF 显微镜 | Nikon | Eclipse FN1 | |
| Nikon CFI APO 40XW NIR 物镜 | Nikon | N40X-NIR | |
| 用于固定式直立显微镜的 X-Y 平移系统 | Sutter Instruments | MT500-586 | |
| 外部 VCF 卵母细胞浴槽 | 定制 | 定制加工。腔室尺寸为 2.7 × 1.9 × 0.4 cm。 | |
| 内部 VCF 卵母细胞浴槽 | 定制 | 定制加工。腔室尺寸为 1.6 × 1.6 × 0.4 cm。 | |
| 改良型温控浴槽 | 定制 | 使用 Cool Polymers(D系列)材料制成的定制腔室。改良温控器浴槽的水平腔室尺寸为 2.7 × 1.9 × 0.3 cm,垂直腔室尺寸为 1 × 2.5 × 0.5 cm。 |
参考文献
- Kalstrup, T., Blunck, R. Dynamics of internal pore opening in KV channels probed by a fluorescent unnatural amino acid. Proc. Natl. Acad. Sci. U.S.A. 110, 8272-8277 (2013).
- Stefani, E., Bezanilla, F. Cut-open oocyte voltage-clamp technique. Methods Enzymol. 293, 300-318 (1998).
- Muroi, Y., Chanda, B. Local anesthetics disrupt energetic coupling between the voltage-sensing segments of a sodium channel. J. Gen. Physiol. 133, 1-15 (2009).
- Stefani, E., Toro, L., Perozo, E., Bezanilla, F. Gating of Shaker K+ channels: I. Ionic and gating currents. Biophys. J. 66, 996-1010 (1994).
- Wang, S., Liu, S., Morales, M. J., Strauss, H. C., Rasmusson, R. L. A quantitative analysis of the activation and inactivation kinetics of HERG expressed in Xenopus oocytes. J. Physiolt. 502 (Pt 1), 45-60 (1997).
- Neely, A., Garcia-Olivares, J., Voswinkel, S., Horstkott, H., Hidalgo, P. Folding of active calcium channel beta(1b) -subunit by size-exclusion chromatography and its role on channel function. J. Biol. Chem. 279, 21689-21694 (2004).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels I: wild-type skeletal muscle. Na(V)1.4. J. Gen. Physiol. 141, 309-321 (2013).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels II: a periodic paralysis mutation in Na(V)1.4 (L689I). J. Gen. Physiol. 141, 323-334 (2013).
- Taglialatela, M., Toro, L., Stefani, E. Novel voltage clamp to record small, fast currents from ion channels expressed in Xenopus oocytes. Biophys. J. 61, 78-82 (1992).
- Clare, J. J., Trezise, D. J. Expression and analysis of recombinant ion channels : from structural studies to pharmacological screening. , Wiley-VCH. (2006).
- Susan, G. A. Methods in enzymology. 296, Academic Press. 566-578 (1998).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. 3rd edn. , Springer. (2006).
- Cha, A., Bezanilla, F. Characterizing voltage-dependent conformational changes in the Shaker K+ channel with fluorescence. Neuron. 19, 1127-1140 (1997).
- Richards, R., Dempski, R. E. Examining the conformational dynamics of membrane proteins in situ with site-directed fluorescence labeling. J. Vis. Exp. , (2011).
- Cohen, S., Au, S., Pante, N. Microinjection of Xenopus laevis oocytes. J. Vis. Exp. , (2009).
- Techniques for Chloriding Silver Wires. , Available from: http://www.warneronline.com/pdf/whitepapers/chloriding_wire.pdf (1999).
- Raynauld, J. P., Laviolette, J. R. The silver-silver chloride electrode: a possible generator of offset voltages and currents. J. Neurosci. Methods. 19, 249-255 (1987).
- Gagnon, D. G., Bissonnette, P., Lapointe, J. Y. Identification of a disulfide bridge linking the fourth and the seventh extracellular loops of the Na+/glucose cotransporter. J. Gen. Physiol. 127, 145-158 (2006).
- Pantazis, A., Olcese, R. Cut-Open Oocyte Voltage-Clamp Technique. In: Roberts G. (Ed.) Encyclopedia of Biophysics: SpringerReference. Roberts, G. , Springer-Verlag Berlin Heidelberg. New York. (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
