神经元形态发生和迁移是大脑正常发育过程中的关键事件。本文介绍了在培养的小脑颗粒神经元及发育中的小脑中进行遗传学操作的方法,用于评估神经元的形态特征和迁移特性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
大脑中的发育事件,包括神经元形态发生和迁移,是高度有序的过程。体外和体内分析有助于深入表征并鉴定参与这些事件的信号通路。源自发育中小脑的小脑颗粒神经元(CGNs)是一种理想的模型系统,可用于进行形态学分析。本文介绍了一种遗传操控CGNs的方法,并阐述如何研究单个神经元的轴突和树突形成。利用该方法,可将RNA干扰、过表达或小分子处理的效应与对照神经元进行比较。此外,由于啮齿类动物小脑皮层主要在出生后发育,易于操作,是一种方便的体内研究系统。我们还介绍了一种体内电穿孔技术,用于对发育中的小脑进行遗传操控,并描述了后续用于评估神经元形态和迁移的小脑分析方法。
引言
小脑是研究轴突生长和迁移机制的理想系统。自神经科学诞生之初,小脑就一直是解剖学研究的对象1。现代显微镜技术和免疫组织化学方法极大地拓展并完善了 Santiago、Ramon 和 Cajal 所做出的早期发现2-4。小鼠遗传学和分子生物学研究揭示了调控小脑发育的关键生长因子和转录因子,从而加深了人们对不同类型神经元正确连接所需关键事件的理解,其中包括小脑颗粒神经元(CGNs)5-7。
小脑是发育中的后脑菱脑节1的衍生物8. 菱形唇是第四脑室顶的一部分th 脑室区产生小脑颗粒神经元前体细胞,这些细胞将成为成年小脑中最丰富的神经元群体9在向吻侧迁移后,它们定居于小脑原基。在此,颗粒神经元前体细胞通过有丝分裂导致外颗粒层(EGL)显著扩张,这一过程在啮齿类动物中发生于出生后。随后,神经元从外颗粒层开始向内迁移,穿过分子层(ML),经过浦肯野细胞层,最终定居于内颗粒层(IGL)。2在此迁移过程中,它们获得双极形态,两条轴突伸入分子层。随着进一步迁移,胞体逐渐远离轴突,两条突起融合形成一条分叉的T形轴突。10随后,这些轴突发生束化,被称为平行纤维。颗粒神经元在内颗粒层(IGL)定位后,长出树突,形成树突爪,与苔状纤维建立突触连接。为研究发育中小脑的基本过程,可采用联合方法 体外 和 体内 该方法可获得可靠的结果和结论。
颗粒神经元(CGNs)不仅是小脑中数量最多的神经元,也是整个大脑中数量最多的神经元,并且可以培养至高度纯化状态11-13。在体外培养条件下,这一高度均一的神经元群体迅速进入终末分裂状态,并发育出具有明确可辨的轴突和树突的极性形态。培养的CGNs已被证明在研究神经元发育的多个方面极为有用,包括前体细胞增殖、分化、轴突和树突发育、神经元迁移、凋亡以及电生理特性(14-19 及大量其他研究)。通过遗传操作技术的应用,进一步拓展了培养CGNs的实验灵活性,使其能够更深入地揭示上述生物学过程的分子机制。利用低效率的磷酸钙法或脂质体转染法对培养神经元进行转染,随后结合极性标志物的免疫细胞化学染色或软件辅助分析,可便于评估高密度神经元培养体系中单个神经元的形态特征(例如)。通过该方法,可研究目的蛋白在轴突或树突生长过程中的作用20-25,26-28。然而,由于在高密度培养条件下神经元迁移能力极为有限,该培养体系在分析神经元迁移方面应用价值较低,若需研究迁移行为则通常需要采用共培养系统。体外条件下对轴突和树突生长的分析还可结合RNA干扰(i)、过表达或小分子化合物,用于检测信号通路中相互关联的蛋白质功能。
为了确定目标蛋白在轴突和树突生长调控或神经元迁移中的相关性, 体内 电穿孔(IVE)技术可用于发育中小脑皮层的分析。由于啮齿类动物的小脑发育持续至出生后前两周,因此小脑是一个便于进行遗传操作的脑区,可用于研究发育中的轴突和树突、神经元迁移、突触形成以及细胞凋亡。20-24,29,30,26,27,31-34此外,该模型系统还适用于需要完整小脑皮层的其他神经元发育研究,如轴突导向、神经元的连接与网络形成以及神经元-胶质细胞相互作用。综上所述,本方案提供 体外 和 体内 研究神经元形态发生和迁移的互补性技术方法。
访问受限。请登录或开始试用以查看此内容。
方案
颗粒神经元(CGNs)可从小鼠出生后第5天(P5)或大鼠出生后第6天(P6)的幼鼠中制备。我们采用Bilimoria及其同事描述的方案,该方案使用有丝分裂抑制剂来筛选终末分化后的颗粒神经元13。
伦理声明:
所有涉及活体动物的实验均按照德国下萨克森州“消费者保护与食品安全局”批准的动物实验方案进行。
体外 实验:
1. 磷酸钙转染法所用DNA质粒、培养基和缓冲液的制备
- 将质粒DNA溶解于无菌、无内毒素的水中;DMEM(高糖);配制2.5 M CaCl2;配制2x HBSS(将4 g NaCl、0.1775 g KCl、0.095 g Na2HPO4 •7H2O、0.675 g葡萄糖和2.5 g HEPES溶解于250 ml超纯水中,并将pH值调节至7.05、7.08和7.11)。注意:配制2x HBSS溶液时,需测试不同pH值下特定质粒组合的转染效率,以确定最佳结果。
2. 培养神经元的转染
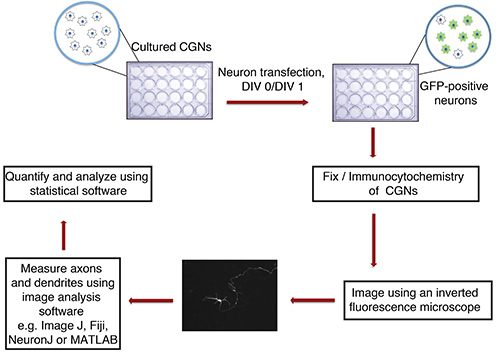
图1. 流程图 体外 轴突和树突生长检测 从P6大鼠幼崽分离的培养颗粒神经元(CGNs),接种于含玻璃盖玻片的24孔板中,在DIV 0或1时用含有荧光转染标记物的DNA沉淀物进行转染例如 GFP)。固定并进行免疫细胞化学染色后,以盲法对神经元进行成像。将图像导入 ImageJ 软件并测量神经突起。随后使用统计学软件对测量数据进行分析。
- 种子CGNs(20 x 106 每24孔板;BME,10% 小牛血清,2 mM 青霉素-链霉素-谷氨酰胺(PSG),25 mM KCl)置于经硝酸清洗并涂有多聚鸟氨酸的12 mm玻璃盖玻片上,放入24孔板中 500 μl 每孔培养基体积。
- 第0天 体外 (DIV) 0(铺板后至少8小时)或DIV 1,收集生长培养基并置于 37 °C用溶液洗涤神经元两次 500 μl 预热的DMEM,并加入 500 μl DMEM
- 将神经元放入培养箱(37 °C,5% CO₂245 分钟
- 准备 40 μl 每个孔的DNA沉淀通过混合以下成分获得:DNA(2-2.5 μg/well,总DNA的10%应为转染标记物 例如 GFP 用于标记转染的神经元),水(加至 18 μl),加入 2 μl 2.5 M CaCl2,充分混匀后加入 20 μl 2x HBSS
- 室温孵育DNA沉淀5分钟。
- 将DNA沉淀物加入每个孔中,在培养箱中孵育神经元18分钟。
- 移除 DMEM/DNA 混合液,并用 PBS 洗涤神经元两次 500 μl 预热的DMEM。
- 将步骤2.2中收集的培养基重新加入神经元中。若神经元培养时间超过3天,在DIV 3时向培养基中添加25 mM葡萄糖以补充碳源。
- 1至5天后,使用GFP抗体对目标神经元进行免疫细胞化学染色。
- 每种条件下,使用荧光显微镜以盲法至少成像30个独立的神经元。
3. 使用 NeuronJ(NIH ImageJ 插件)测量轴突和树突
重要提示:根据图像的放大倍数和分辨率,使用适当的像素:μm比例,以确保图像缩放正确。
- 使用 ImageJ 将图像转换为 8 位:打开图像,选择“图像” -> 类型> 8位> 保存图像。
- 运行 NeuronJ 插件并打开 8 位图像。
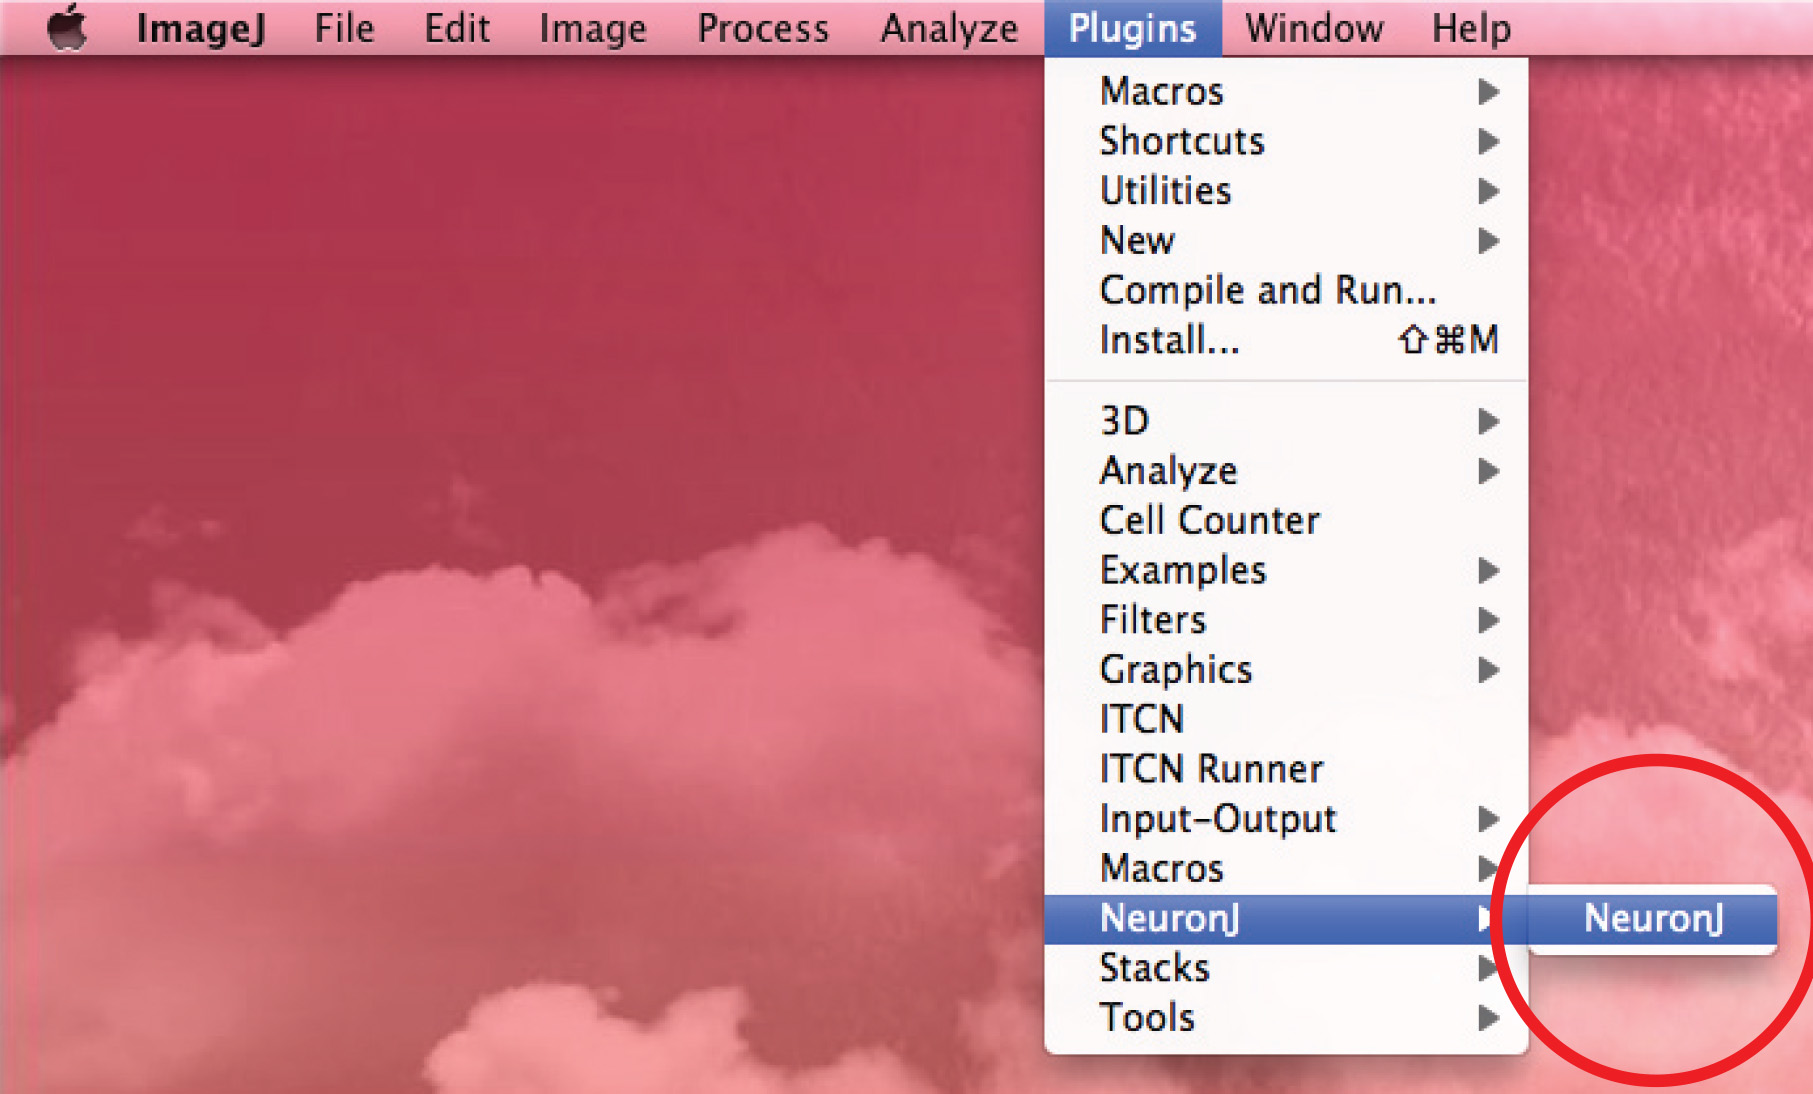
- 使用“添加轨迹”选项追踪轴突:在轴突起始处单击鼠标左键,然后沿轴突走向移动鼠标。若轨迹与轴突形态吻合,则在轴突末端双击鼠标。
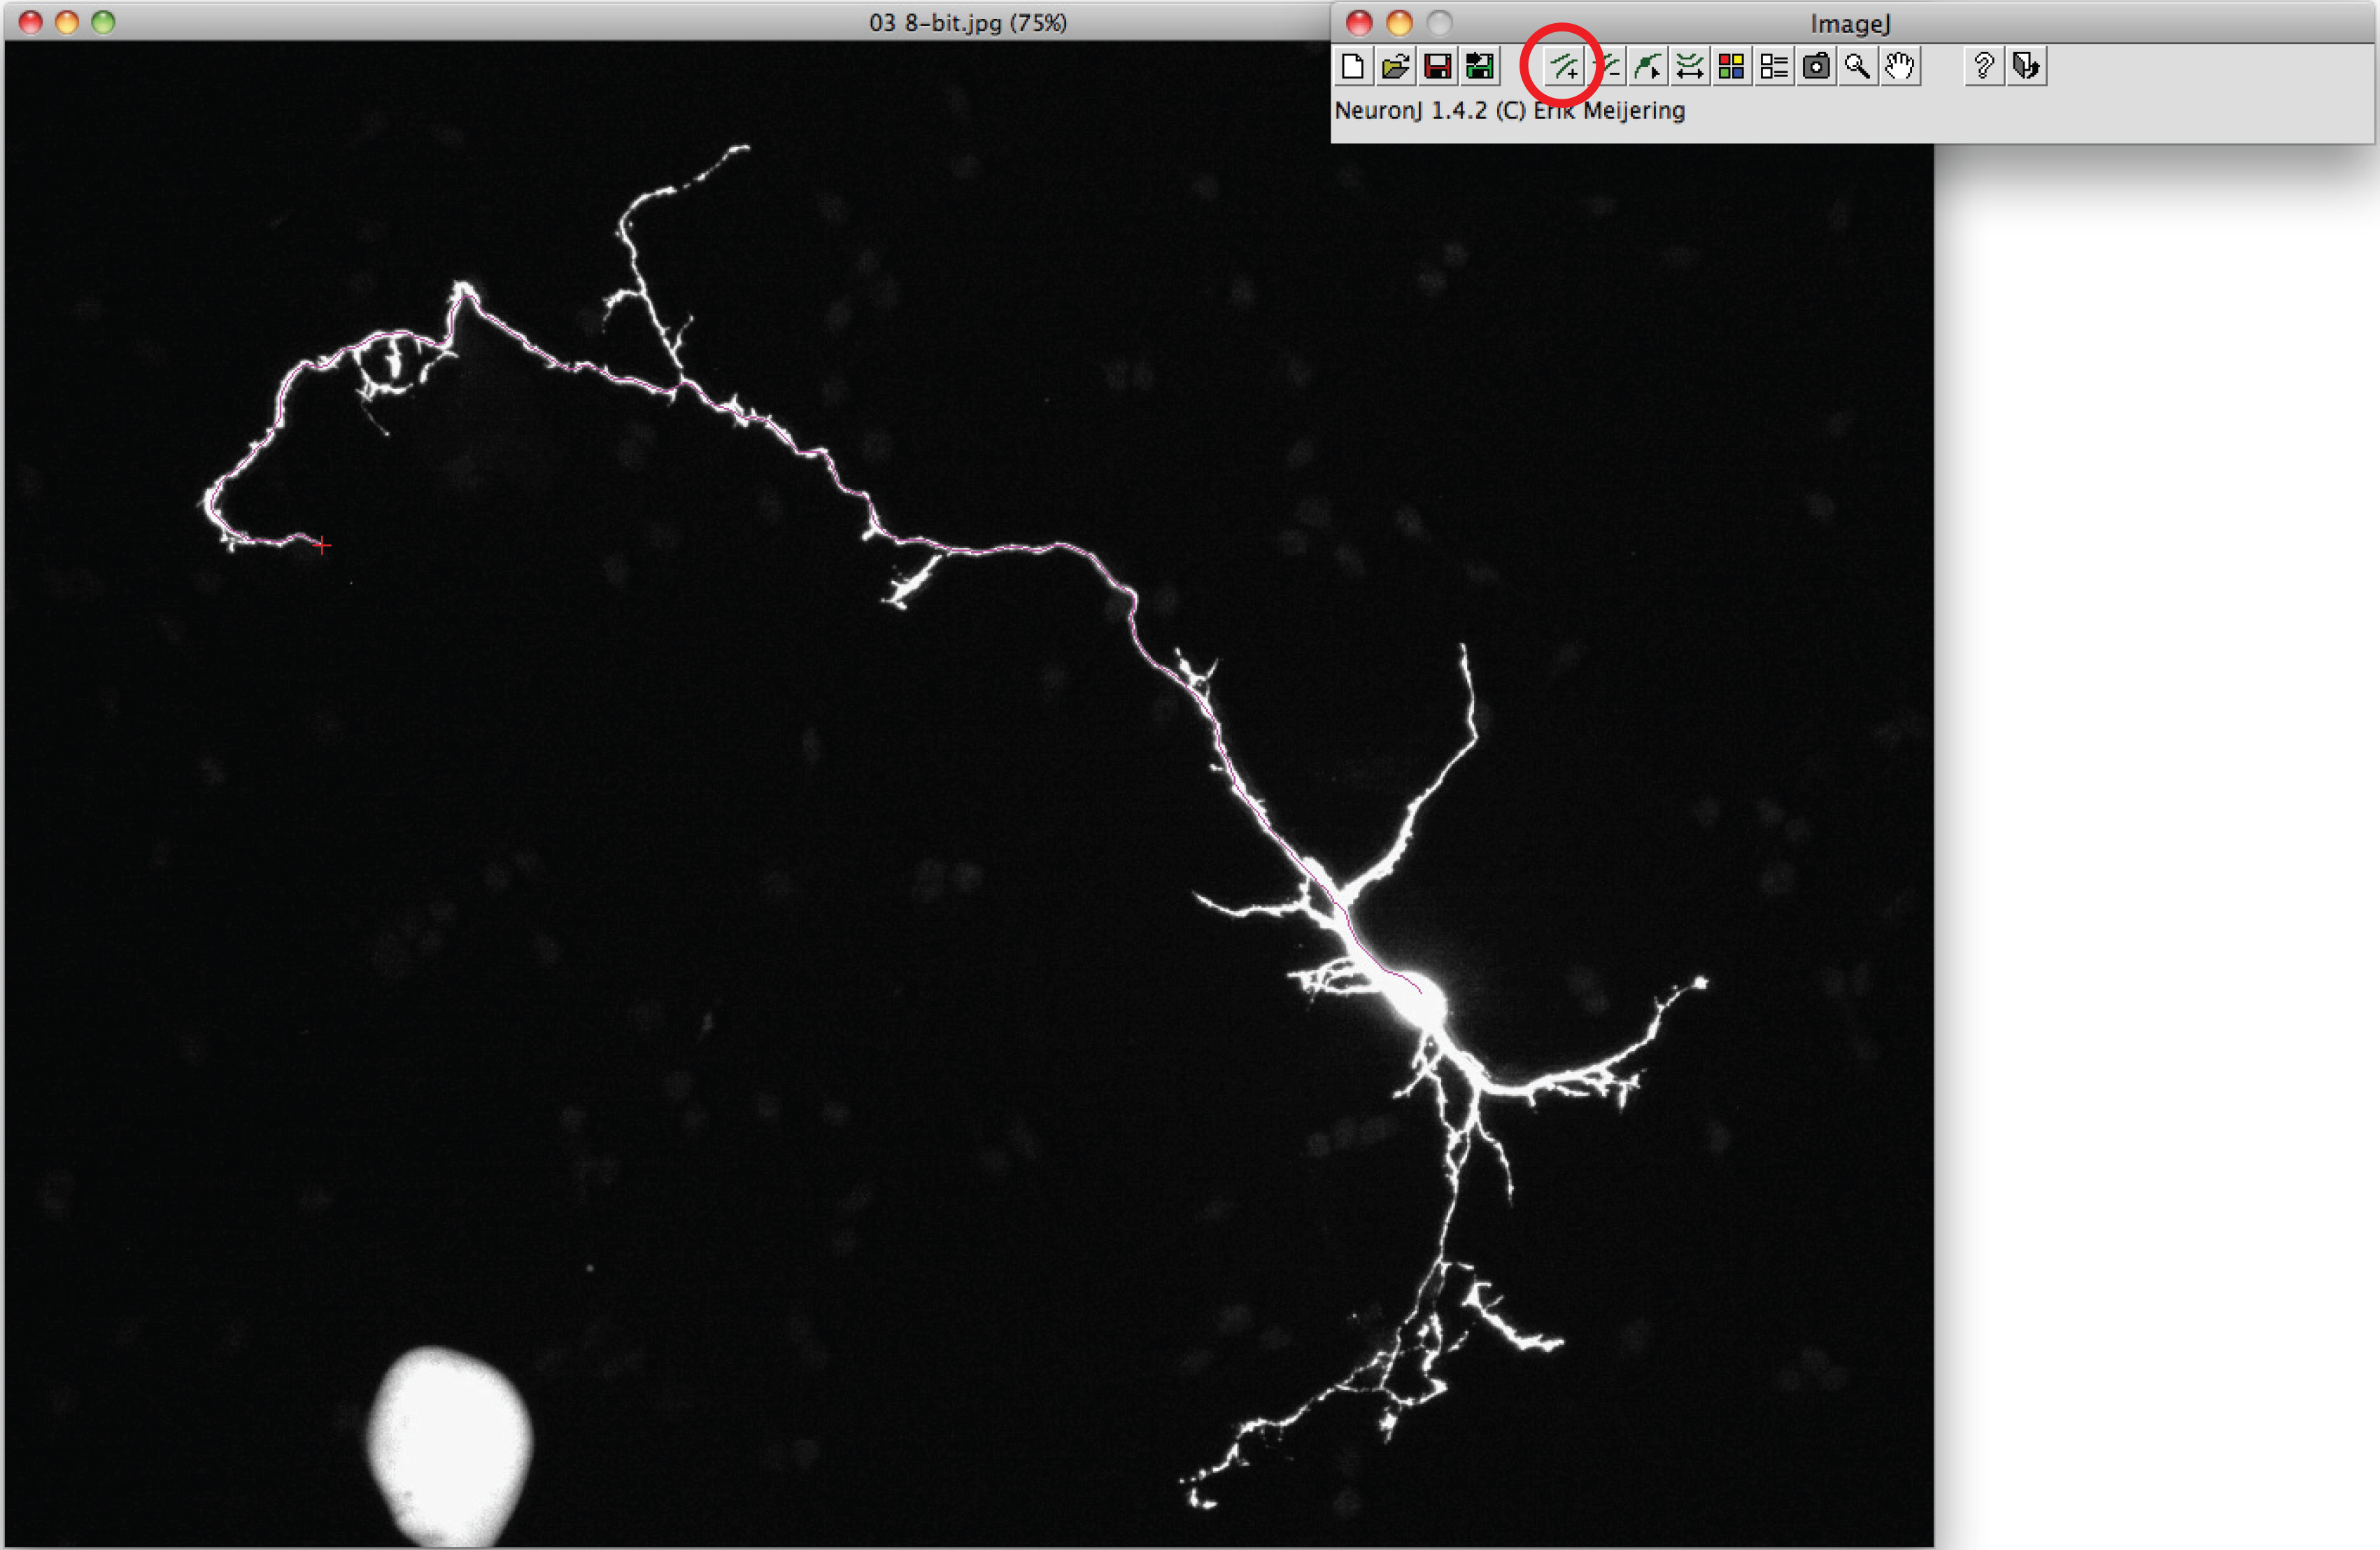
注意:如果建议的轨迹与轴突形态不符,请在轴突上单击一次以固定轨迹,然后在轴突末端双击。 - 单击“测量轨迹”,选择“显示轨迹测量”选项,然后点击“运行”。轴突的测量结果将在新窗口中全部显示。对于树突,选择“显示组测量”选项,然后点击“运行”。
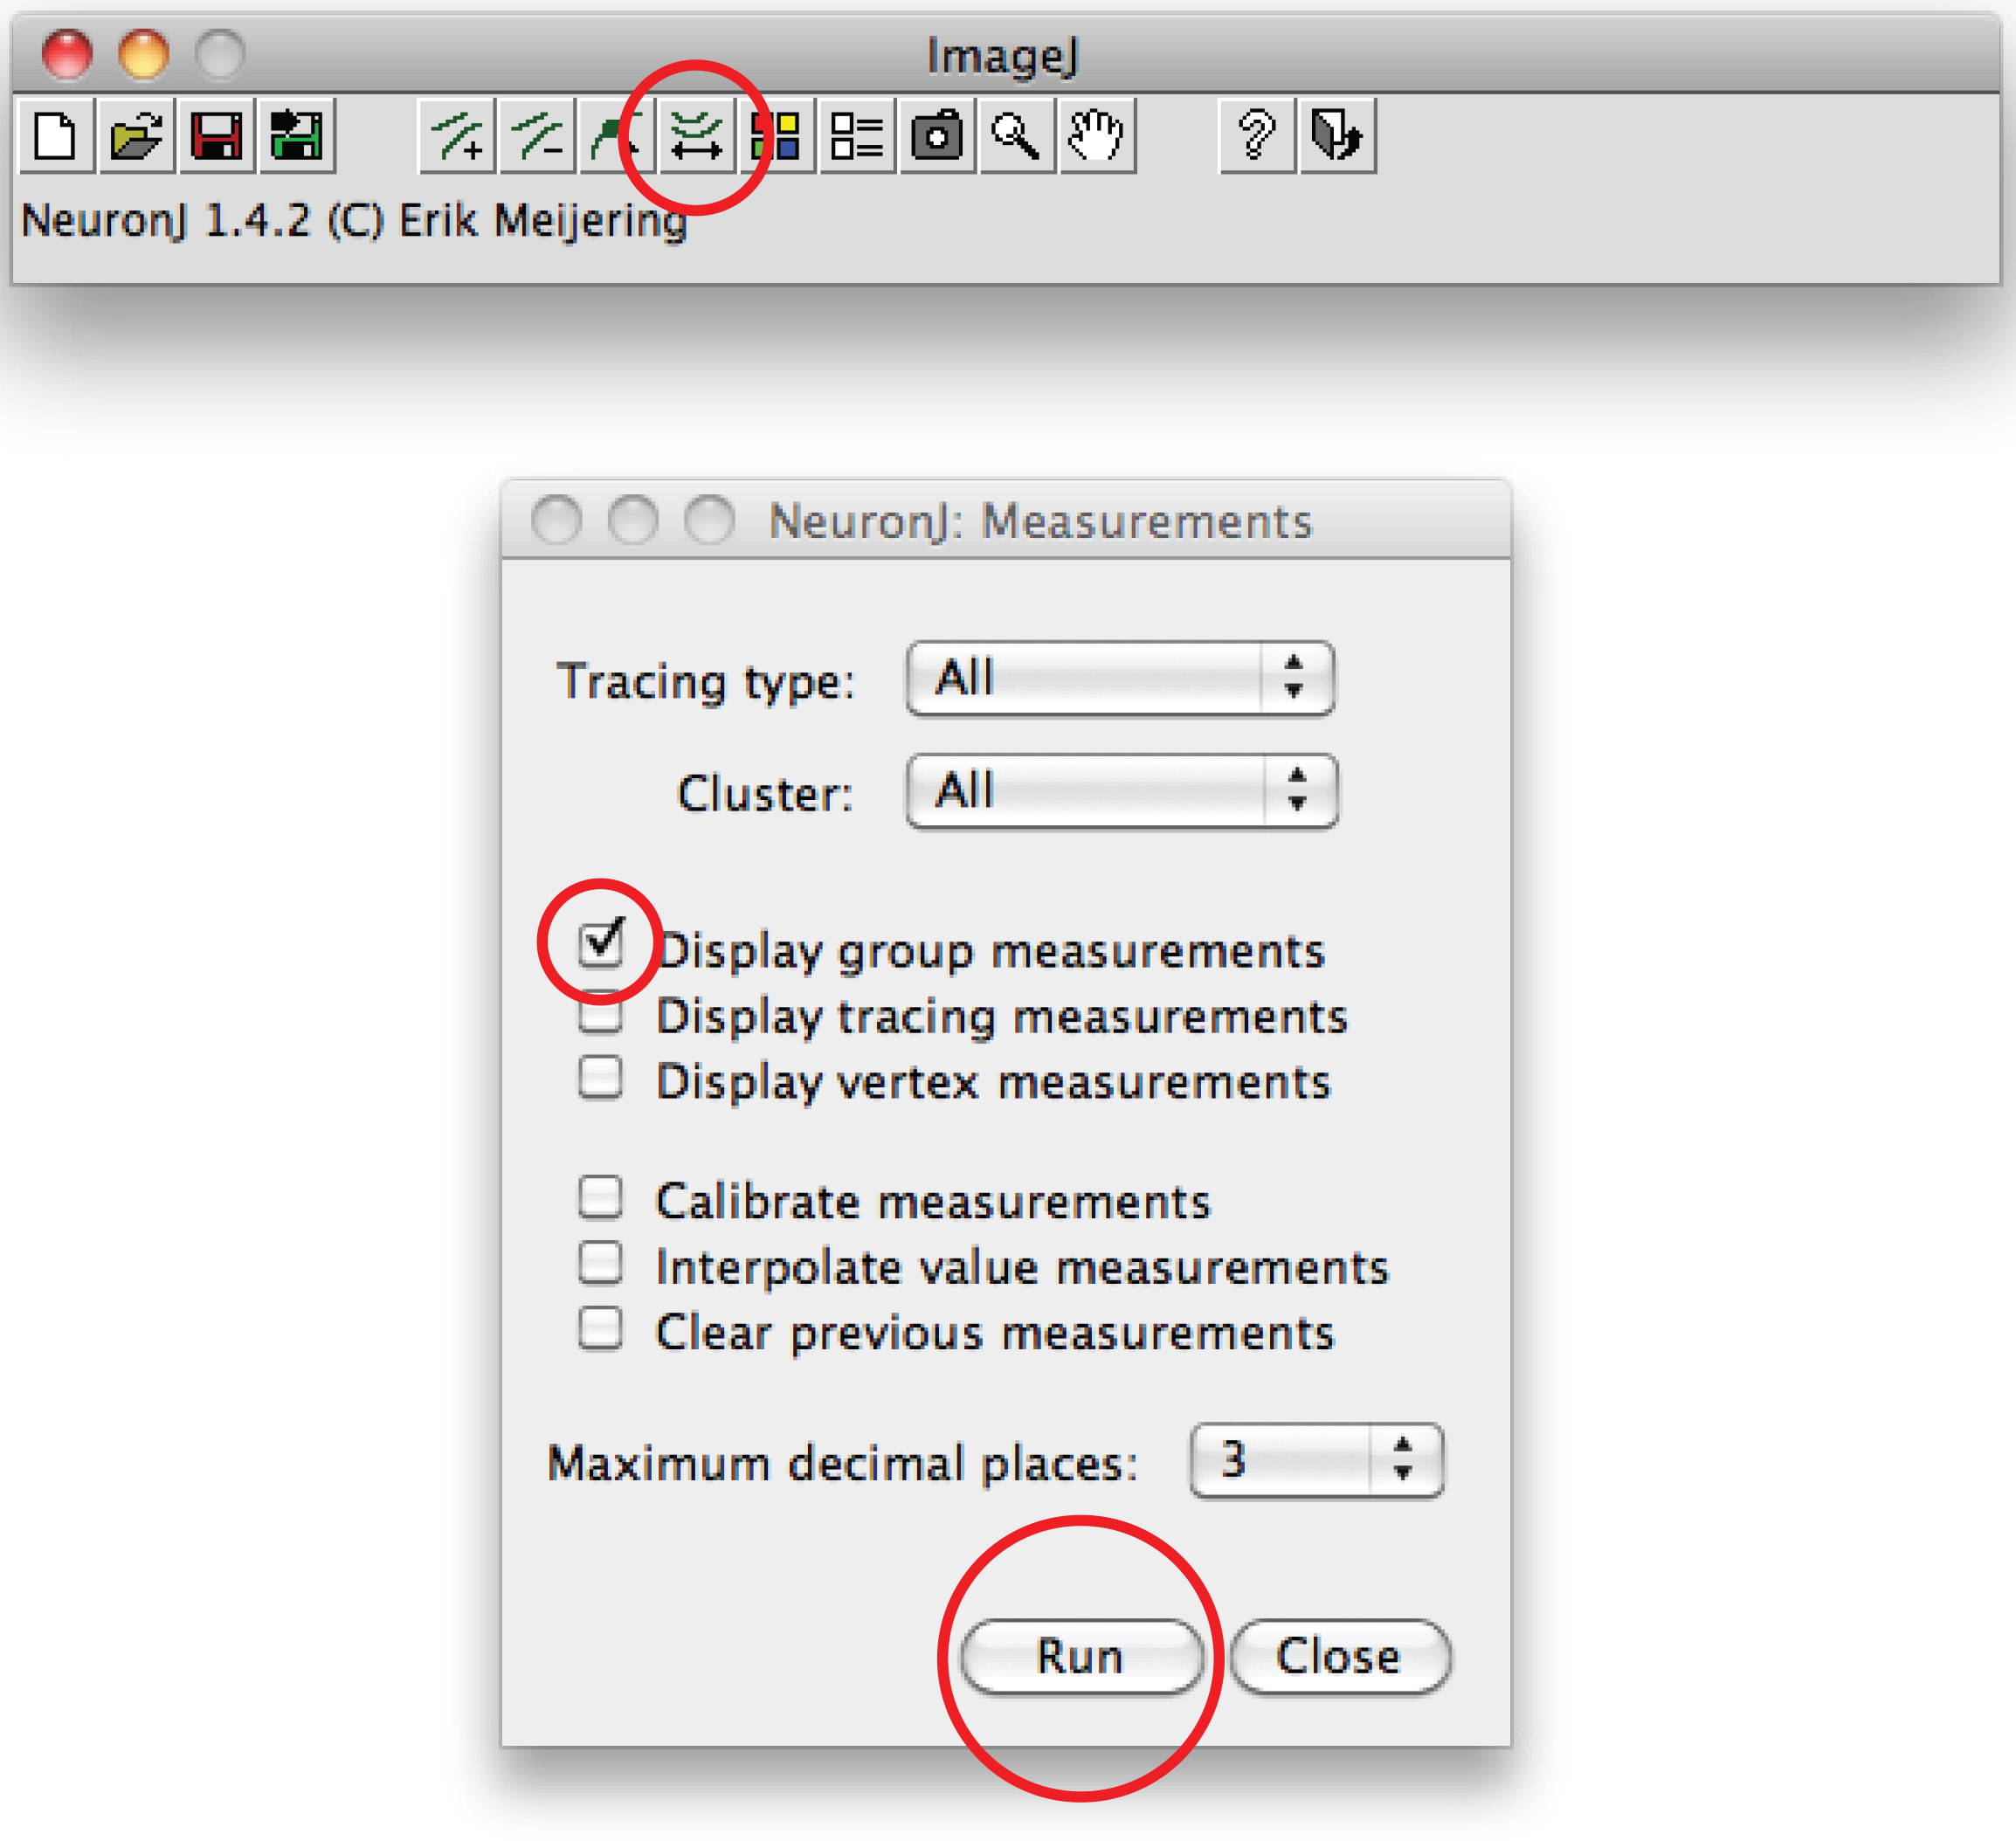
所有树突总长度的测量结果将在新窗口中显示。请将其保存为独立文件,以便在任意电子表格程序中打开。 - 或者,对于手动追踪,可使用 Fiji 软件:右键点击“Straight line”选项,选择“Freehand line”。
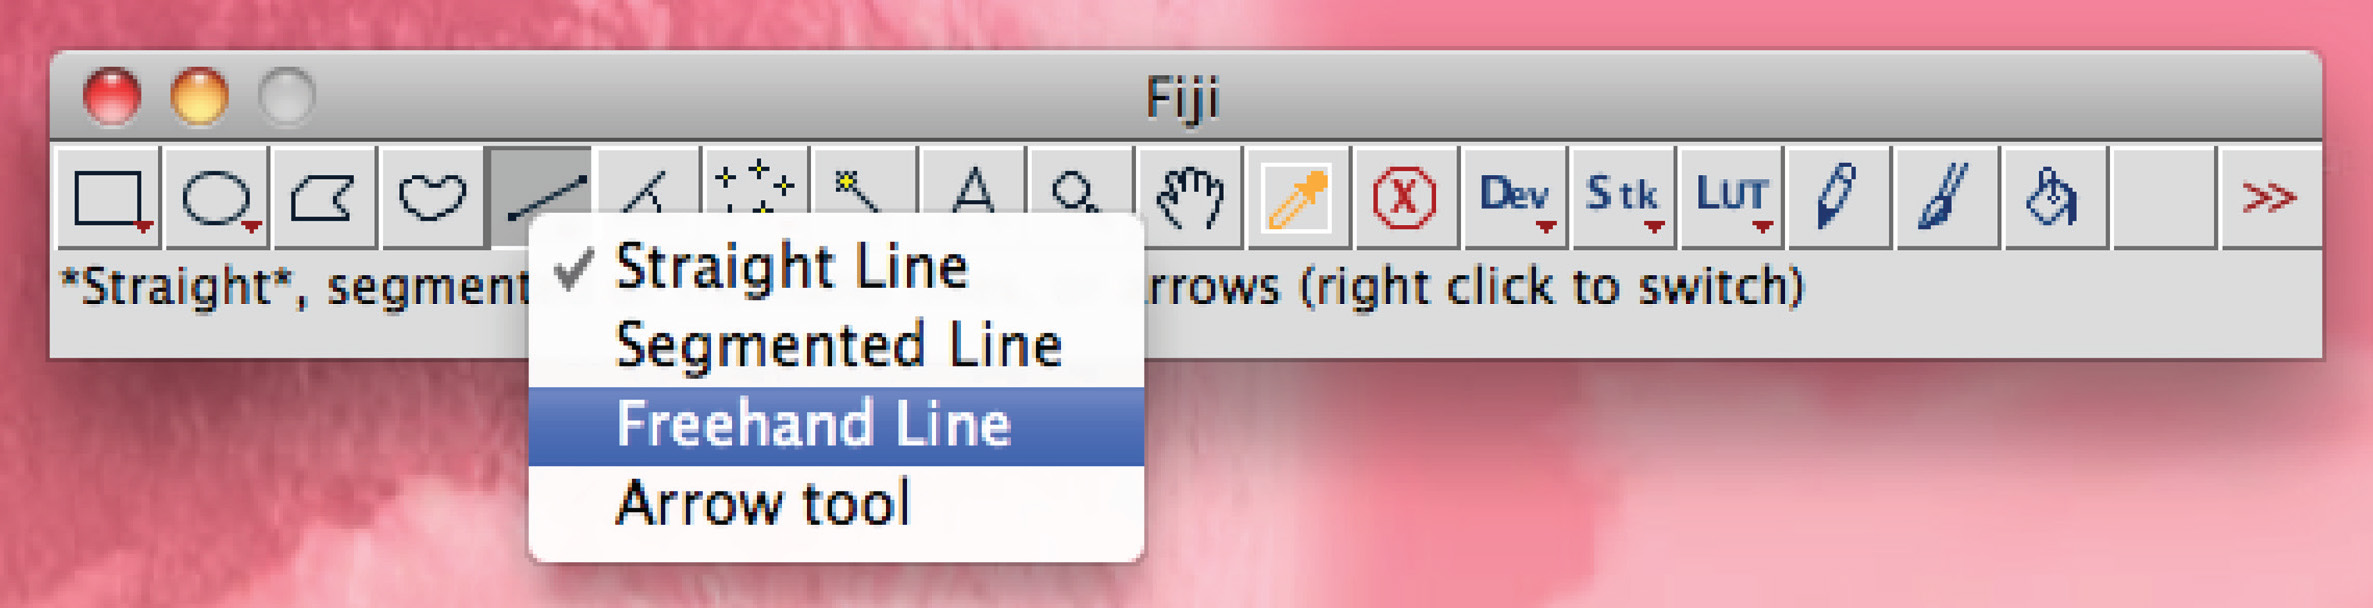
按住鼠标左键并手动描迹过程,按“Ctrl+M”进行测量。 - 计算每种条件下轴突/树突的平均长度,并采用适当的统计学检验方法。
在体 电穿孔
1. 仪器设备与试剂准备
- 需要 30 G 针头、间隔器(1-2 mm)、注射器、死体积减少装置(DVR)、电穿孔仪、镊状电极、加热垫或红外加热灯、鹅颈灯和异氟烷。
- 将 DVR 插入针头,然后将针头连接到注射器,最后将间隔器套在针头末端(图 2)。
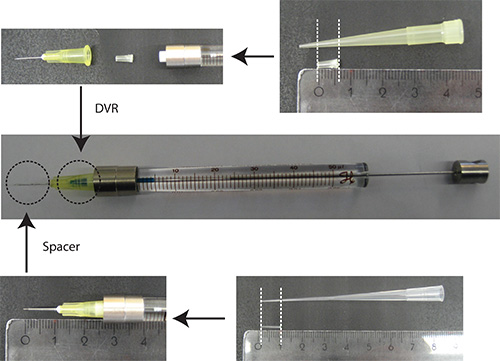
图 2. 针头的准备。 DVR 由 200 μl 移液枪头截取制成,插入针头中以减少死体积。间隔器来源于 200 μl 上样枪头,置于针头末端,用于调节进入小脑的穿刺深度至约 2 mm。标尺单位:cm - 将 DNA 溶解于 PBS/0.03% 快绿溶液中。注意:作为转染标记物,建议使用在神经元特异性启动子(例如 Synapsin)驱动下的荧光蛋白,以便仅对神经元进行可视化。总质粒量中应有 25% 为编码转染标记物的质粒。
- 配制 70% 乙醇。
- 将 OCT 与溶于 PBS 的 30% 蔗糖溶液等体积混合。
- 用 4 μl DNA 溶液(质粒 DNA 浓度为 4 μg/μl,溶于 PBS/0.03% 快绿)填充注射器。
2. 大鼠幼崽的体内电穿孔
体内转染实验流程图:见 图3
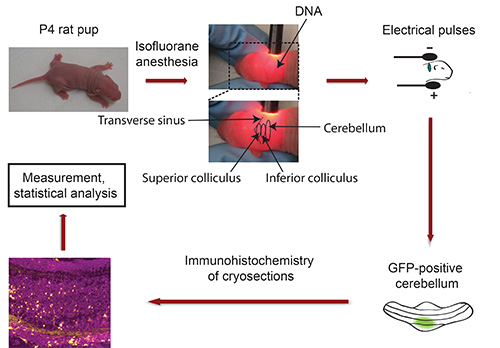
图3. 流程图 体内 电穿孔 P4 大鼠幼崽用异氟烷麻醉,并注射编码荧光转染标记物的质粒 DNA(例如 将GFP注入小脑,随后施加5次电脉冲。5天后,分离出GFP阳性小脑组织,进行切片并实施免疫组织化学染色。使用共聚焦显微镜采集图像,并采用Imaris软件进行分析。数据通过统计学软件进行处理。
- 使用白化品系(Wistar 或 Long Evans)的 P4 大鼠幼崽。
- 用异氟烷在小盒中依次麻醉幼崽(每次一只)例如 P1000 移液器吸头盒)配备 200 μl 用异氟烷(浸湿的棉片)麻醉1-2分钟,直至幼鼠不再活动。注意避免幼鼠直接接触液态异氟烷。密切监控麻醉时间,因为不同个体对麻醉的反应存在差异。
- 用70%乙醇消毒幼鼠头部背面。
- 将幼鼠头部固定于拇指与食指之间,使用鹅颈灯定位白化幼鼠的小脑。横窦清晰分隔中脑(上丘与下丘)与大脑半球皮层。图3)。小脑位于中脑附近,颜色较深。使用永久性记号笔在小脑位置点上一个圆点以作标记。重要提示:保持幼鼠位置固定!注意:若麻醉效果在操作过程中减弱,应在注射DNA前重新暴露幼鼠于异氟烷中。
- 插入针头(图3)并缓慢注射 3 μl 将DNA导入小脑。
- 让DNA溶液扩散30-60秒。
- 将幼鼠头部置于镊形电极之间,使负极接触头部后侧(小脑区域),正极接触头部对侧图3).
- 对幼鼠施加最多5次电脉冲。根据幼鼠体重调整电压,以确保获得良好的电转染效率,同时不损害其存活率。表1).
表1. P4大鼠幼崽的电穿孔实验。重量 电压 脉冲 间隔 8-9 g 160 V 50毫秒 950 毫秒 9-10 g 165 V 50 毫秒 950 毫秒 > 10 g 170 V 50 毫秒 950 毫秒 - 让幼崽在加热垫上或红外灯下恢复。将幼崽放回母鼠身边。重要提示:确保加热源不会造成任何灼伤。
- 电穿孔后5天,将幼鼠置于CO中处死2 随后进行断头处死。
- 使用荧光显微镜分离小脑并筛选出GFP阳性的小脑。
- 在4% PFA中固定小脑,4℃过夜 4 °C,然后在30%蔗糖中孵育 4 °C 直到小脑沉至管底。
- 将小脑组织包埋于OCT/30%蔗糖中并切片 40 μm 使用冷冻切片机进行冠状面切片。注意:以盲法对每个小脑进行切片。
- 使用GFP抗体对脑切片进行免疫组织化学染色。用核染料(DAPI或Hoechst 33258)复染,并确定每只动物中至少200个转染神经元的定位。
- 为进行深入分析,将粒层下区(IGL)分为上下两半,上半部分朝向分子层(ML),下半部分朝向白质,分别计数位于每半区域内的GFP阳性神经元。注意:以盲法对每张切片中的GFP阳性神经元进行计数。
3. 测量树突长度,使用共聚焦显微镜获取切片在x、y、z平面的图像
注意:例如,对于厚度为 40 μm 且 z 步长为 1 μm 的样本,使用 40 张图像。
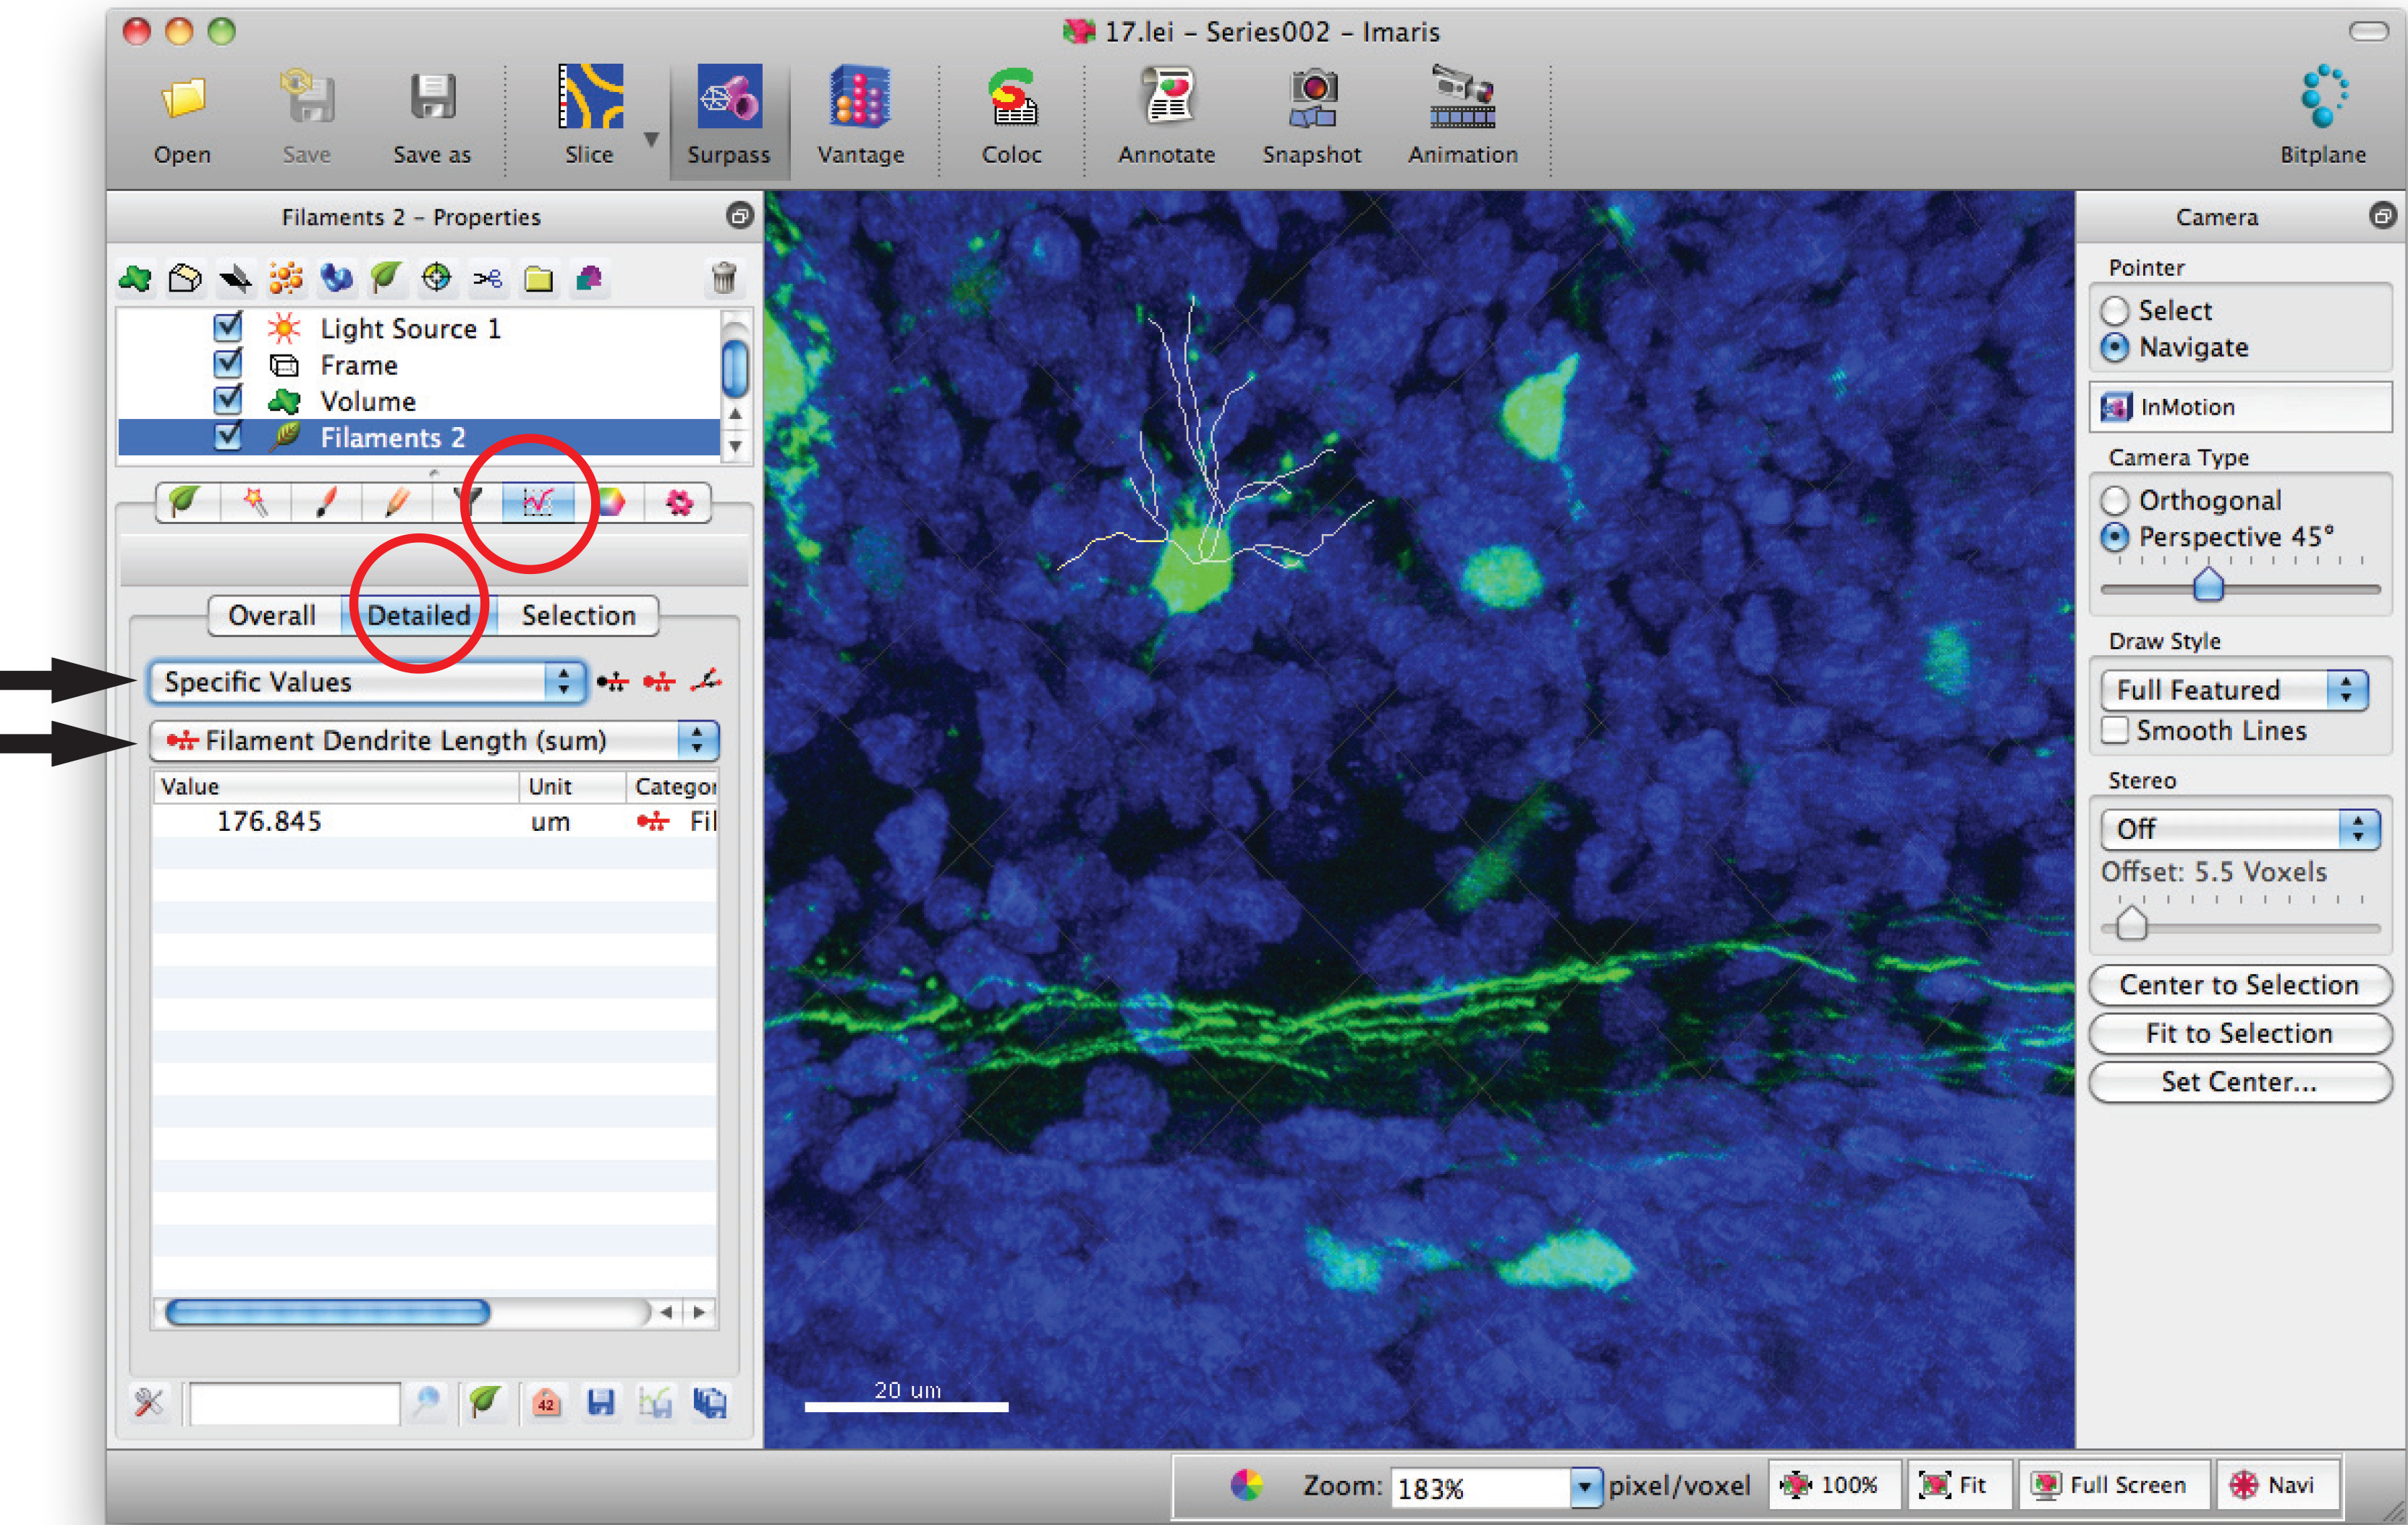
- 在 Imaris 软件中打开图像序列,以生成树突的三维图像。
- 点击“Surpass”模式,以三维方式查看神经元。
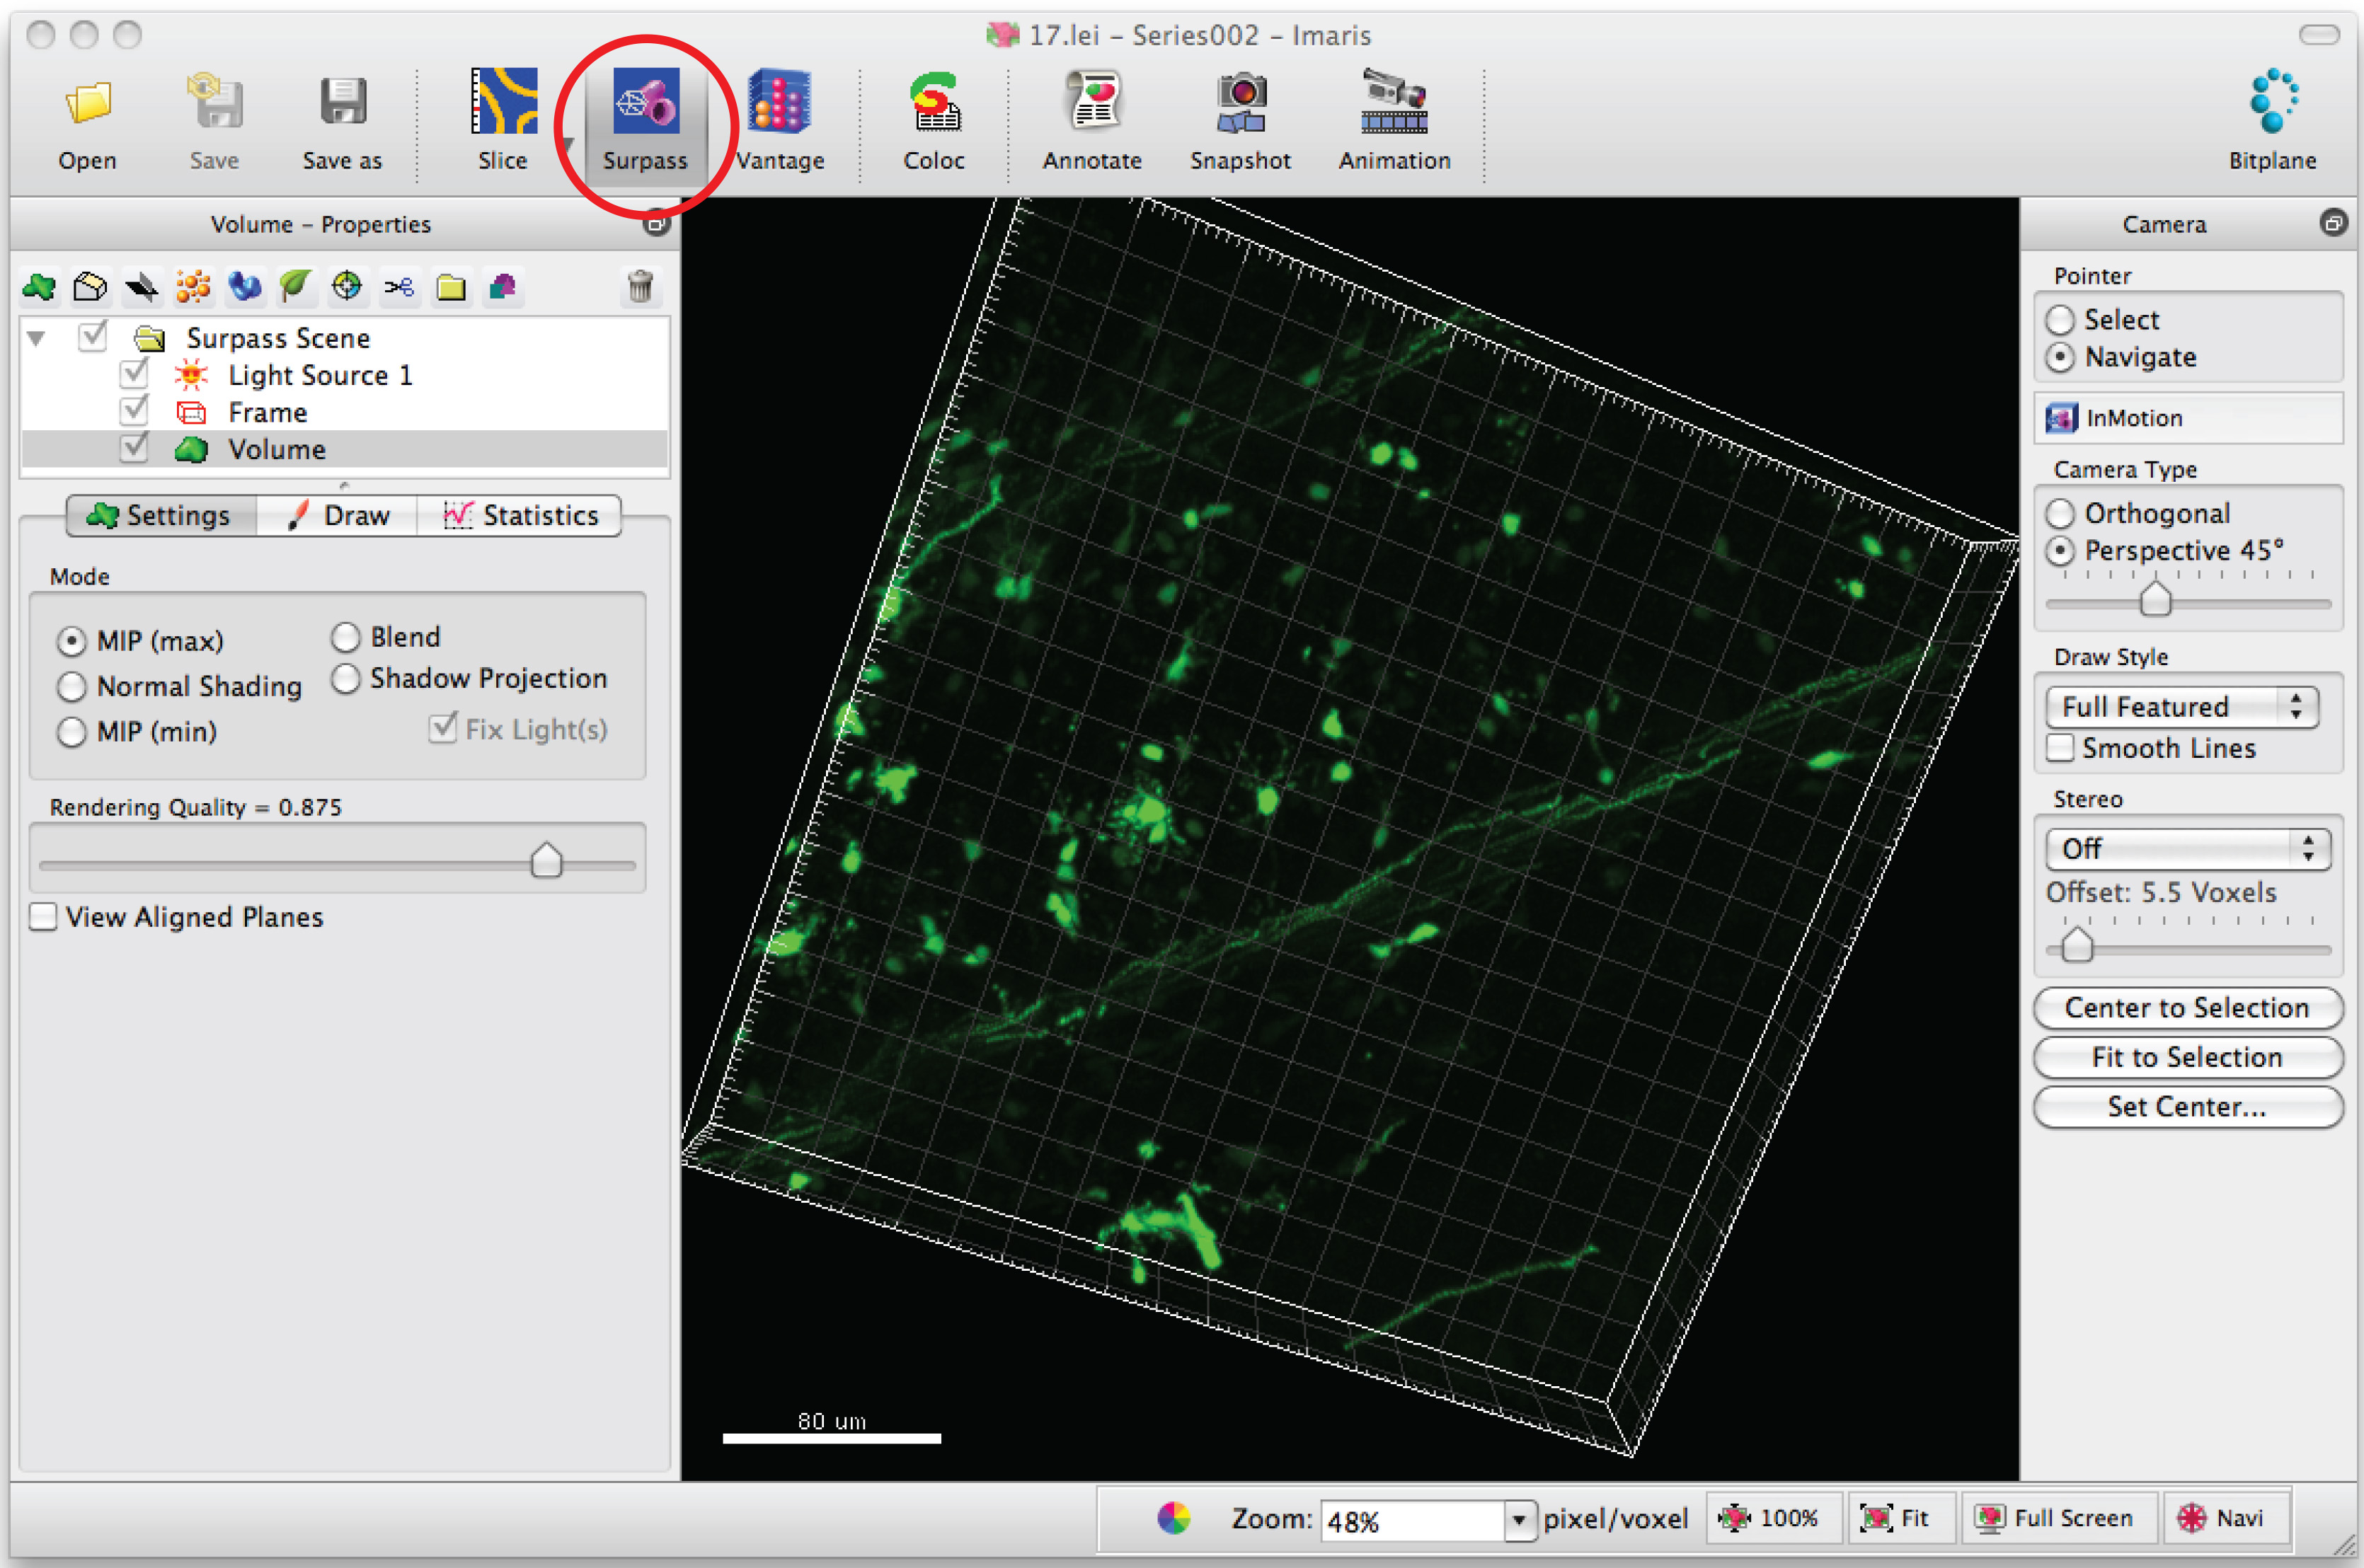
- 选择“Add new filament”,然后点击“Skip automatic creation”,开始半自动追踪。
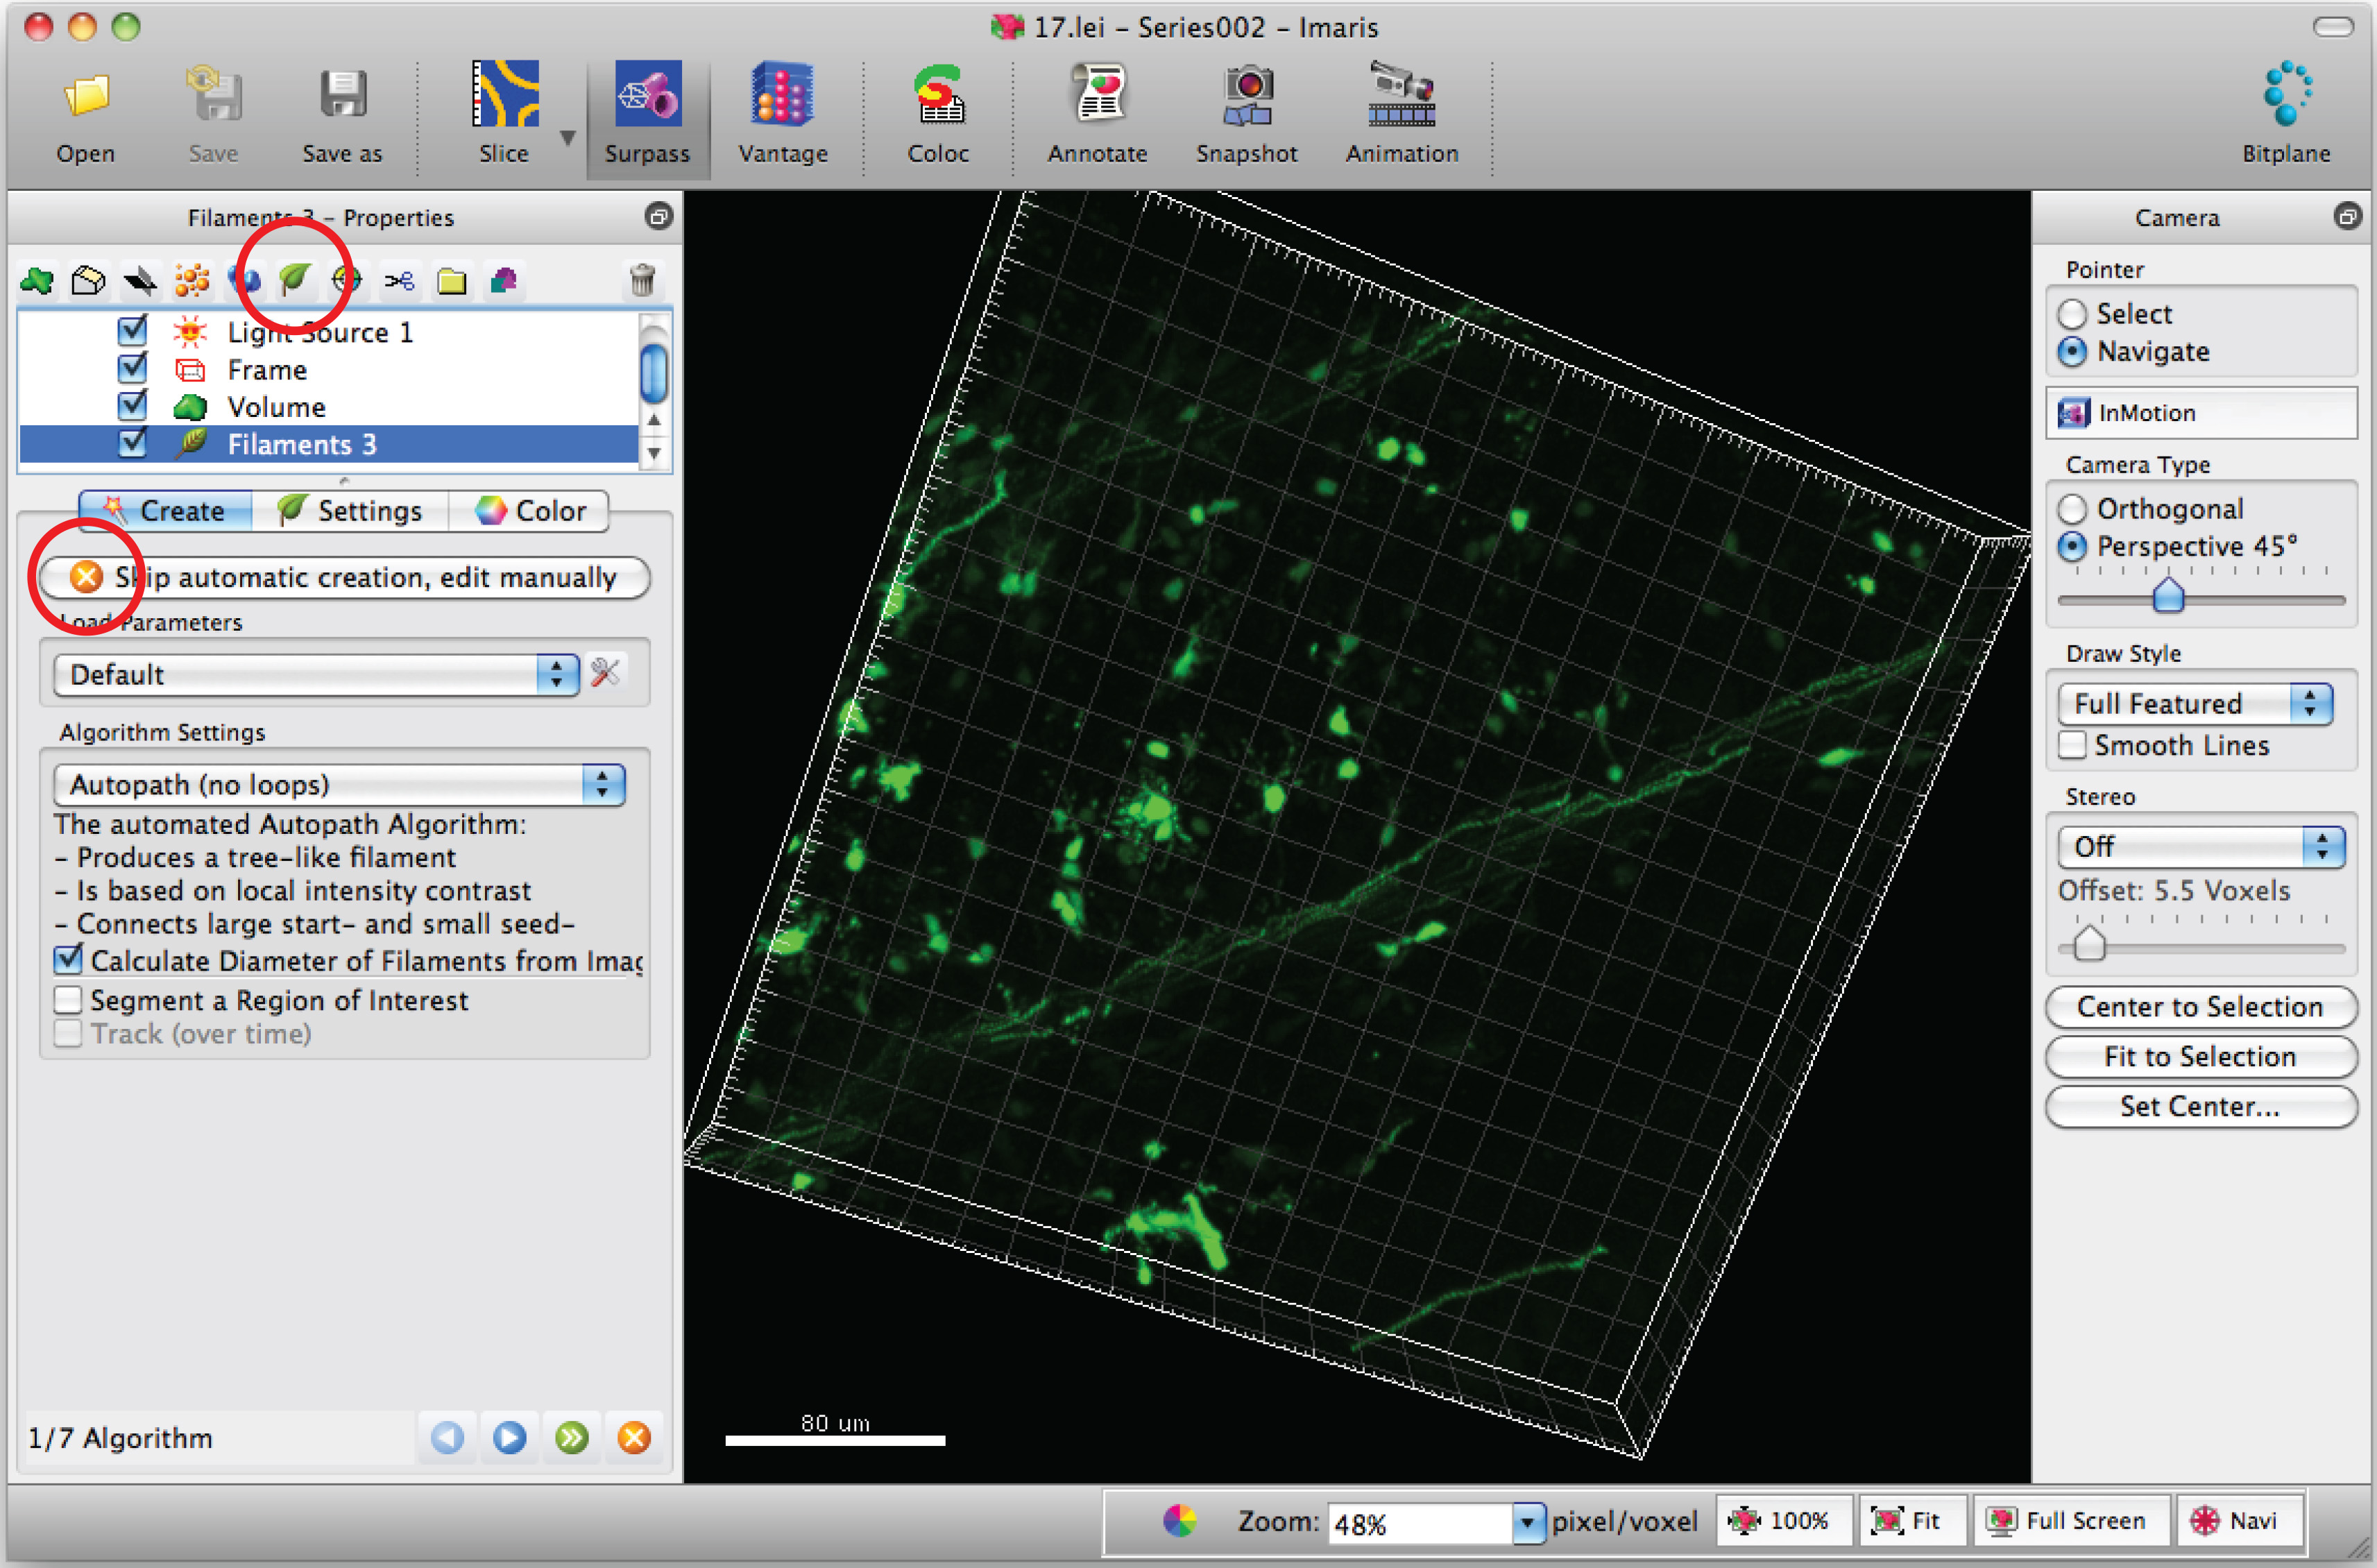
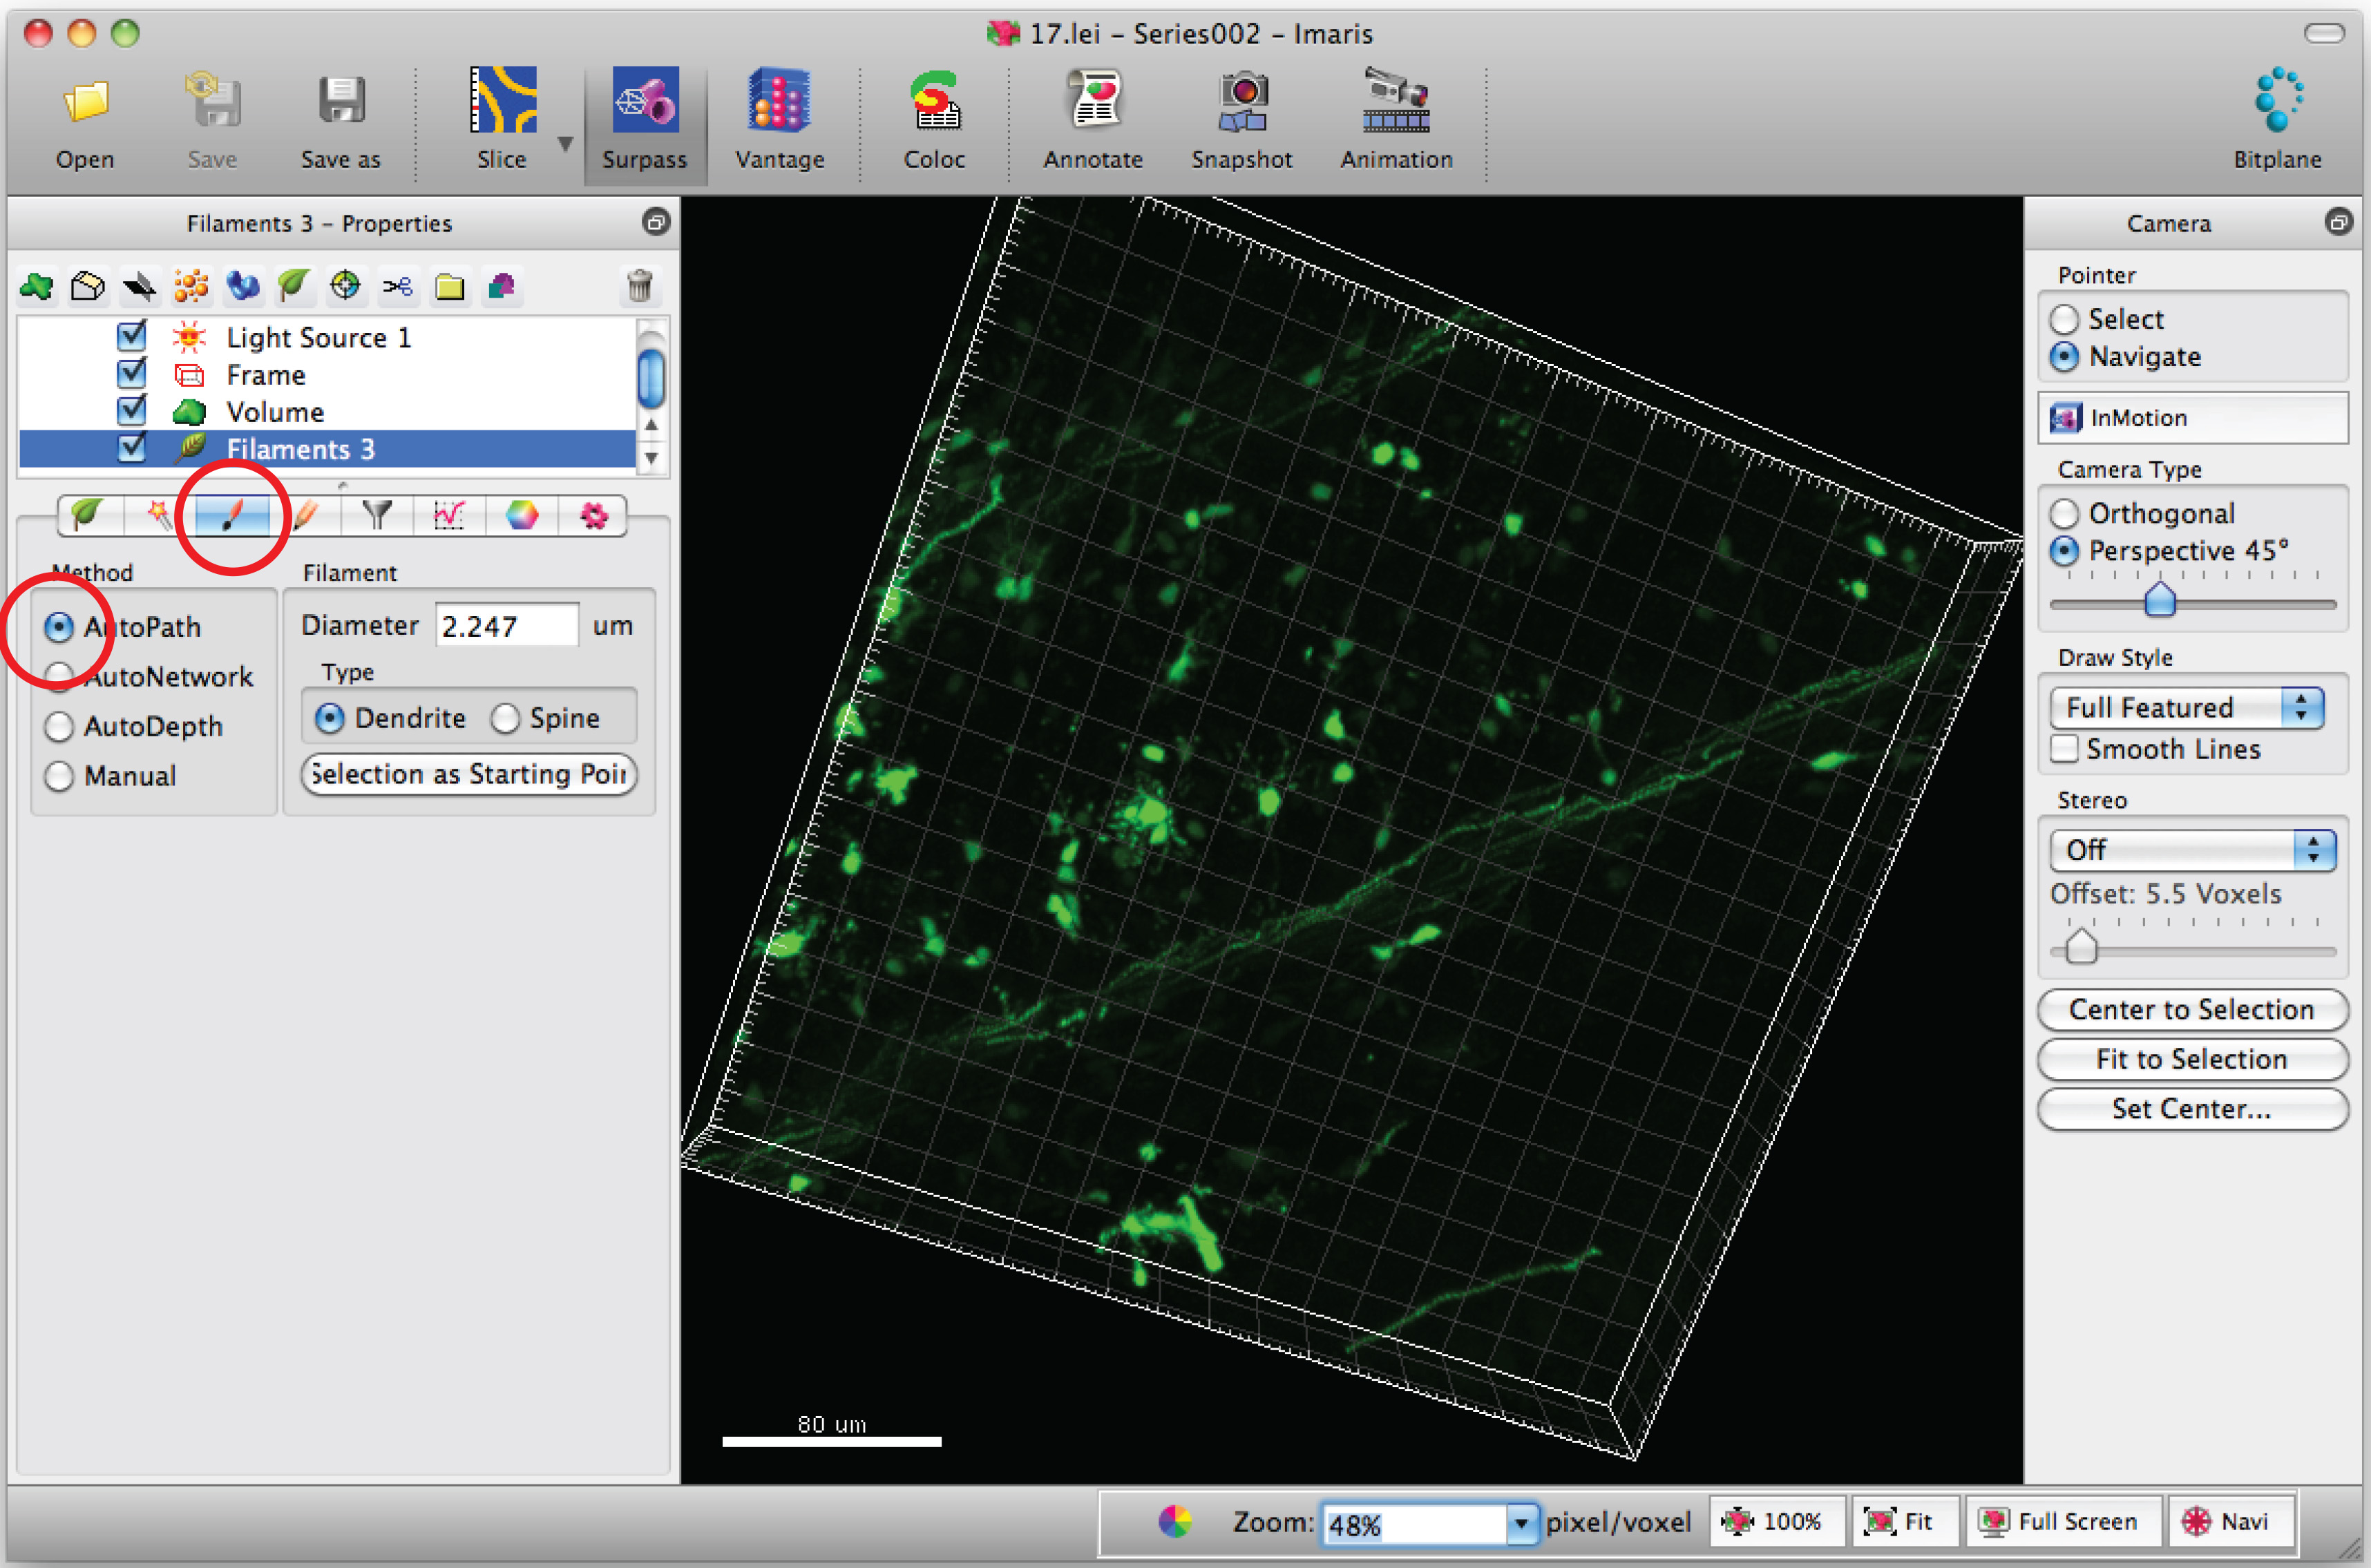
注意:应以盲法方式分析每幅三维图像 - 选择“Draw”选项卡和“AutoPath”。
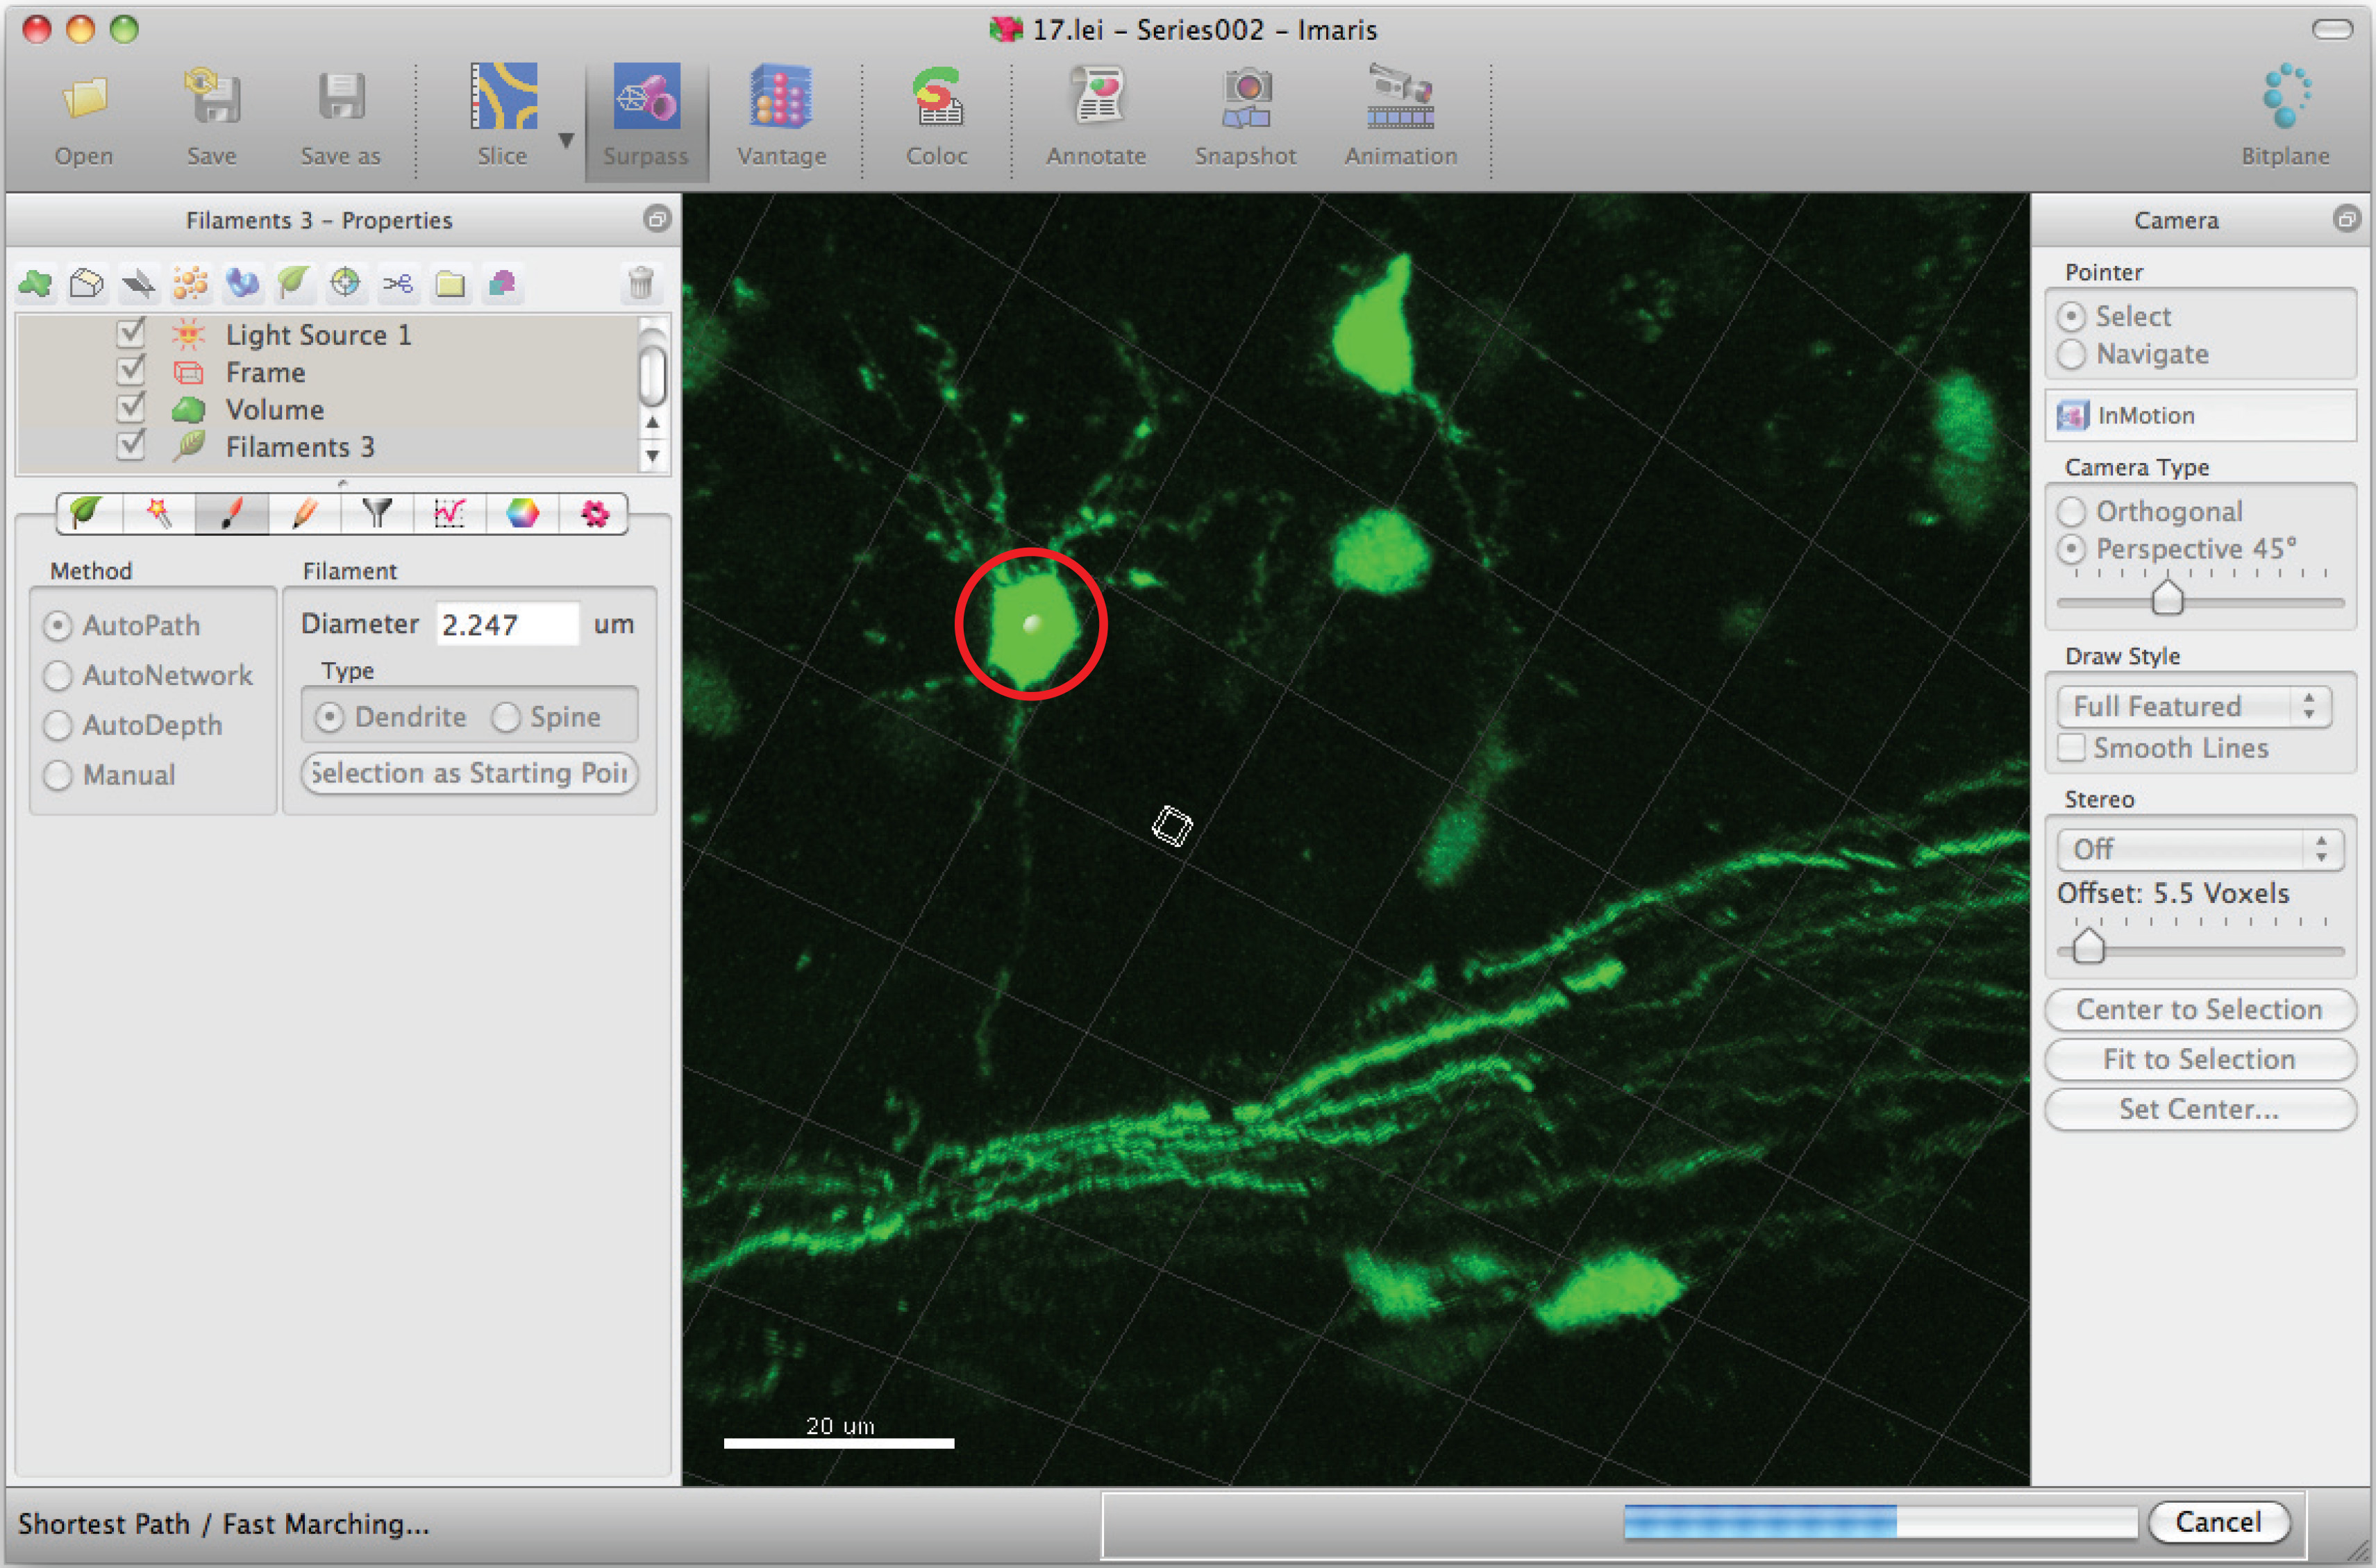
- 将鼠标光标移至细胞体上,按住 Shift 键并单击鼠标右键以选择细胞体。注意:软件自动计算可能需要几分钟时间。
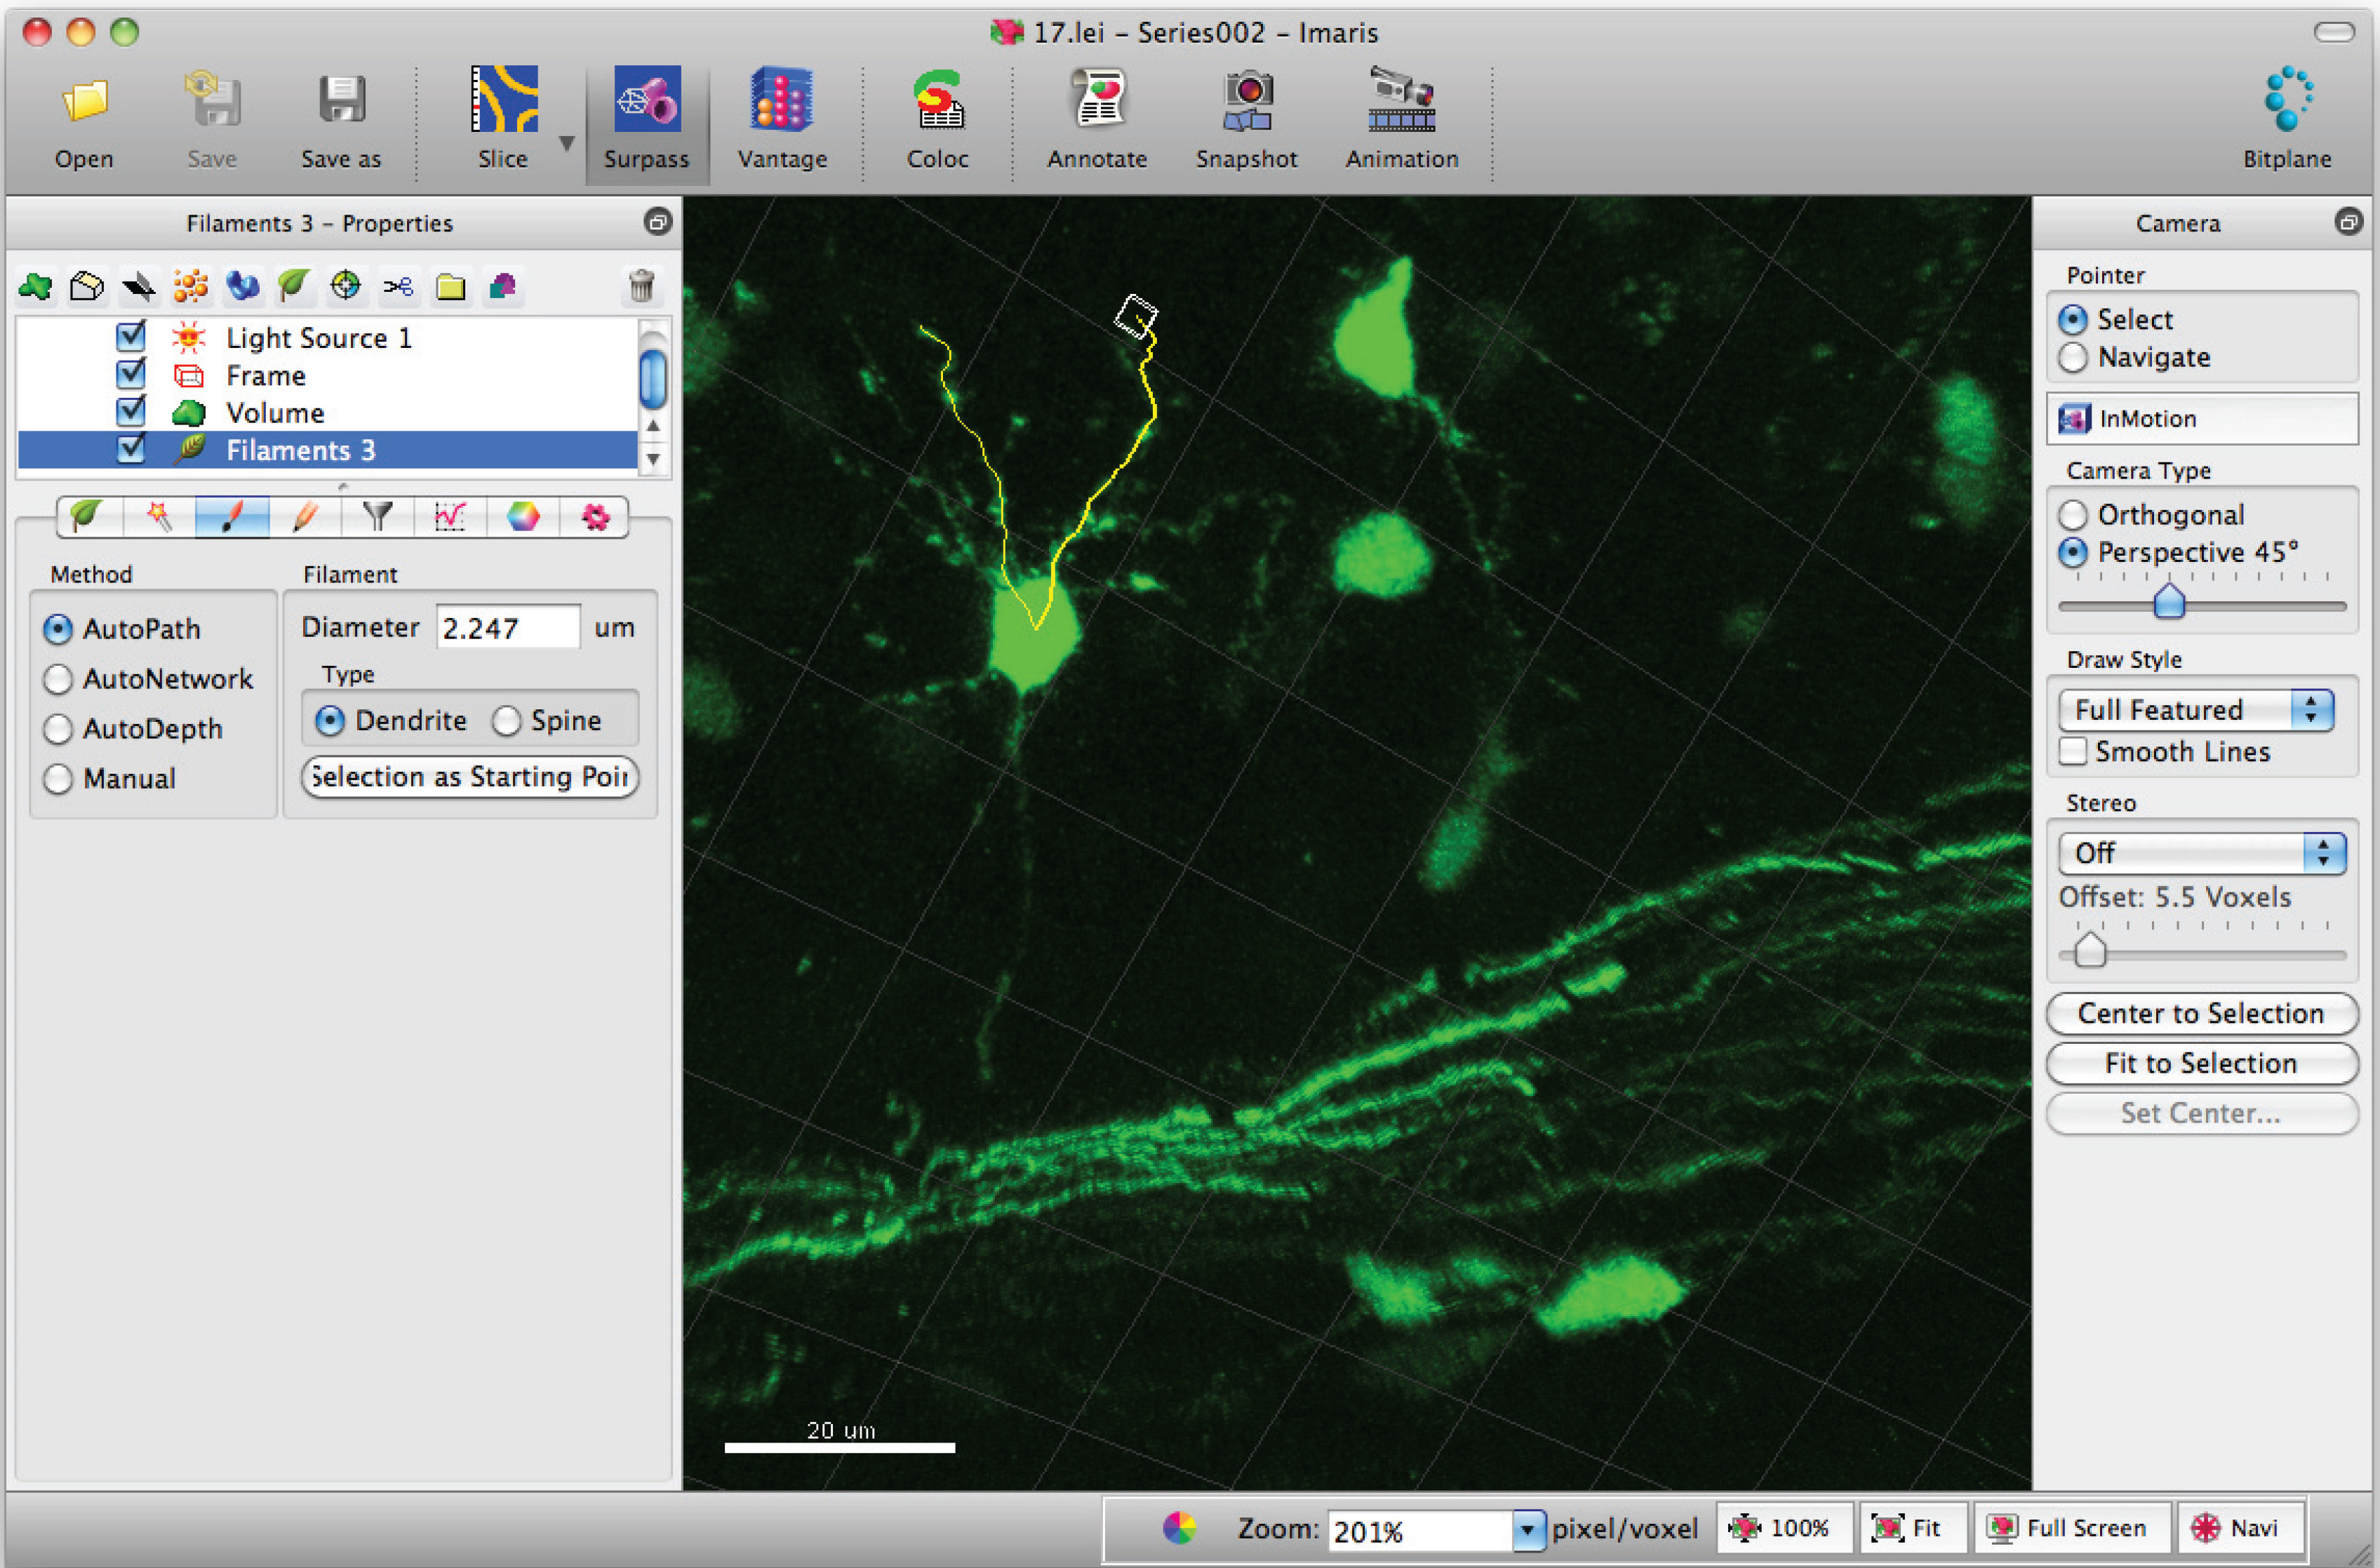
- 使用 Shift 键加鼠标左键单击,向纤维(树突)添加路径。注意:路径可实时可视化。
- 进入纤维统计窗口,点击“Detailed”、“Specific values”和“Filament dendrite length (sum)”,以获取树突总长度的总和。
- 使用适当的统计学方法分析数据。
访问受限。请登录或开始试用以查看此内容。
结果
为了分析不同培养条件下颗粒神经元(CGNs)形态的变化,我们在DIV 0时按照上述方法转染神经元。转染后,将一组神经元置于完全培养基(BME、10% 小牛血清、2 mM PSG、25 mM KCl)中,另一组置于含胰岛素的最低限度培养基中(BME、25 mM 葡萄糖、2 mM PSG、10 μg/ml 胰岛素)。在DIV 1、2和3时,对神经元进行GFP抗体免疫细胞化学染色,随后测量第1组的轴突和树突,以及第2组的轴突。由于完全培养基中含有血清和KCl,分别提供生长因子并模拟神经元活性,因此在所示时间范围内,轴突和树突均迅速发育并生长(图4A)。第2组的轴突生长主要依赖于内在刺激,因此生长程度明显降低。然而,由于缺乏促进树突生长的血清和KCl,树突未能正常发育(图4B)。
访问受限。请登录或开始试用以查看此内容。
讨论
体外和体内方法的优缺点:
小鼠和大鼠培养的颗粒神经元(CGNs)均适用于形态学分析。由于大鼠小脑体积较大,从大鼠幼鼠中获得的CGNs产量比小鼠幼鼠高出3-4倍。除CGNs外,皮层神经元和海马神经元也可用作培养体系。磷酸钙转染法的转染效率较低(0.01–5%),适用于单个神经元形态的分析。也可使用其他脂质体转染方法,但成本过高且无明显优势。对于CGNs等高密度培养体系,应避免使用病毒转染方法,因其转染效率过高,将导致难以区分单个神经元的突起结构。在CGNs中,我们通常发现转染效率与培养天数之间存在相关性 体外培养时间越长的神经元,受转染诱导的应激影响越小,因此转染效率会提高。此外,为了专注于研究轴突生长的内在机制,并排除培养基中血清来源的生长因子的影响,可将小脑颗粒神经元(CGNs)培养在添加胰岛素的存活培养基中。胰岛素是一种廉价的胰岛素样生长因子1(IGF-1)替代物,可促进神经元存活。35从完全培养基更换为含胰岛素培养基的操作必须在DIV 0或DIV 1进行,以防止因血清和KCl撤除引发的细胞凋亡。树突生...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明 不存在相互竞争的经济利益。
致谢
感谢 N. Schwedhelm-Domeyer 提供出色的技术支持,C. Hammer 和 S. Papiol 在统计分析方面提供的帮助。本研究由德国马克斯·普朗克学会、德国研究基金会、哥廷根纳米显微学与脑分子生理学中心(CNMPB)、德国哥廷根以及哥廷根大学 GGNB 青年研究组奖学金资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM | Gibco | 11960-044 | |
| BME | Gibco | 41010-026 | |
| 胰岛素 | Sigma-Aldrich | Si-1-4011 | |
| 聚-L-鸟氨酸 | Sigma-Aldrich | P-2533 | |
| CaCl2 | Appli-Chem | A3652 | |
| 异氟烷 | Actavis Deutschland | ||
| Tissue-Tek OCT | Sakura | ||
| ECM 830 和电穿孔镊电极 | Harvard Apparatus | ||
| 落射荧光显微镜及相机 | Nikon | ||
| SP2 共聚焦显微镜 | Leica | ||
| ImageJ | NIH | ||
| Imaris 7.4.2 | Bitplane, Inc. | ||
| GraphPad Prism | GraphPad Software, Inc. | ||
| MS Excel | Microsoft | ||
| 加样吸头 1-200 µl | Costar | 4853 | |
| 移液器吸头 200 µl | Sarstedt | 70.760.502 | |
| Microlance 3 针头,30 G | BD | 302200 | |
| 50 µl 气密式注射器 1705 | Hamilton | ||
| 玻璃盖玻片 | Thermo Scientific Menzel Glaeser | CB00120RA1 |
参考文献
- Cajal, S. R. Histology of the nervous system of man and vertebrates. , Oxford University Press. (1995).
- Altman, J., Bayer, S. A. Development of the cerebellar system : in relation to its evolution, structure, and functions. , CRC Press. (1997).
- White, J. J., Reeber, S. L., Hawkes, R., Sillitoe, R. V. Wholemount immunohistochemistry for revealing complex brain topography. J. Vis. Exp. , (2012).
- Palay, S. L., Chan-Palay, V. Cerebellar cortex: cytology and organization. , Springer. (1974).
- Hatten, M. E., Alder, J., Zimmerman, K., Heintz, N. Genes involved in cerebellar cell specification and differentiation. Curr. Opin. Neurobiol. 7, 40-47 (1997).
- Hatten, M. E., Heintz, N. Mechanisms of neural patterning and specification in the developing cerebellum. Annu. Rev. Neurosci. 18, 385-408 (1995).
- Sillitoe, R. V., Joyner, A. L. Morphology molecular codes, and circuitry produce the three-dimensional complexity of the cerebellum. Ann. Rev. Dev. Biol. 23, 549-577 (2007).
- Zervas, M., Millet, S., Ahn, S., Joyner, A. L. Cell behaviors and genetic lineages of the mesencephalon and rhombomere 1. Neuron. 43, 345-357 (2004).
- Wingate, R. J. The rhombic lip and early cerebellar development. Curr. Opin. Neurobiol. 11, 82-88 (2001).
- Kawaji, K., Umeshima, H., Eiraku, M., Hirano, T., Kengaku, M. Dual phases of migration of cerebellar granule cells guided by axonal and dendritic leading processes. Mol. Cell Neurosci. 25, 228-240 (2004).
- Hatten, M. E., Gao, W. -Q., Morrison, M. E., Mason, C. A. Cellular and molecular neuroscience. , MIT Press. 419-41 Forthcoming.
- Lee, H. Y., Greene, L. A., Mason, C. A., Manzini, M. C. Isolation and culture of post-natal mouse cerebellar granule neuron progenitor cells and neurons. J. Vis. Exp. , (2009).
- Bilimoria, P. M., Bonni, A. Cultures of cerebellar granule neurons. CSH Protoc. 2008, (2008).
- Rivas, R. J., Hatten, M. E. Motility and cytoskeletal organization of migrating cerebellar granule neurons. J. Neurosci. 15, 981-989 (1995).
- Kuhar, S. G., et al. Changing patterns of gene expression define four stages of cerebellar granule neuron differentiation. Development. 117, 97-104 (1993).
- Baird, D. H., Hatten, M. E., Mason, C. A. Cerebellar target neurons provide a stop signal for afferent neurite extension in vitro. J. Neurosci. 12, 619-634 (1992).
- Segal, R. A., Pomeroy, S. L., Stiles, C. D. Axonal growth and fasciculation linked to differential expression of BDNF and NT3 receptors in developing cerebellar granule cells. J. Neurosci. 15, 4970-4981 (1995).
- Gallo, V., Ciotti, M. T., Coletti, A., Aloisi, F., Levi, G. Selective release of glutamate from cerebellar granule cells differentiating in culture. Proc. Natl. Acad. Sci. U.S.A. 79, 7919-7923 (1982).
- Smith, T. C., Wang, L. Y., Howe, J. R. Distinct kainate receptor phenotypes in immature and mature mouse cerebellar granule cells. Physiol. 517 (1), 51-58 (1999).
- Konishi, Y., Stegmuller, J., Matsuda, T., Bonni, S., Bonni, A. Cdh1-APC controls axonal growth and patterning in the mammalian brain). Science. 303, 1026-1030 (2004).
- Stegmuller, J., Huynh, M. A., Yuan, Z., Konishi, Y., Bonni, A. TGFbeta-Smad2 signaling regulates the Cdh1-APC/SnoN pathway of axonal morphogenesis. J. Neurosci. 28, 1961-1969 (2008).
- Stegmuller, J., et al. Cell-intrinsic regulation of axonal morphogenesis by the Cdh1-APC target SnoN. Neuron. 50, 389-400 (2006).
- Kannan, M., Lee, S. J., Schwedhelm-Domeyer, N., Nakazawa, T., Stegmuller, J. p250GAP is a novel player in the Cdh1-APC/Smurf1 pathway of axon growth regulation. PLoS One. 7, (2012).
- Kannan, M., Lee, S. J., Schwedhelm-Domeyer, N., Stegmuller, J. The E3 ligase Cdh1-anaphase promoting complex operates upstream of the E3 ligase Smurf1 in the control of axon growth. Development. 139, 3600-3612 (2012).
- Gaudilliere, B., Konishi, Y., de la Iglesia, N., Yao, G., Bonni, A. A. CaMKII-NeuroD Signaling Pathway Specifies Dendritic Morphogenesis. Neuron. 41, 229-241 (2004).
- Yang, Y., et al. A Cdc20-APC ubiquitin signaling pathway regulates presynaptic differentiation. Science. 326, 575-578 (2009).
- Litterman, N., et al. An OBSL1-Cul7Fbxw8 ubiquitin ligase signaling mechanism regulates Golgi morphology and dendrite patterning. PLoS Biol. 9, (2011).
- Kim, A. H., et al. A centrosomal Cdc20-APC pathway controls dendrite morphogenesis in postmitotic neurons. Cell. 136, 322-336 (2009).
- Shalizi, A., et al. A calcium-regulated MEF2 sumoylation switch controls postsynaptic differentiation. Science. 311, 1012-1017 (2006).
- Vadhvani, M., Schwedhelm-Domeyer, N., Mukherjee, C., Stegmuller, J. The Centrosomal E3 Ubiquitin Ligase FBXO31-SCF Regulates Neuronal Morphogenesis and Migration. PLoS One. 8, (2013).
- Puram, S. V., et al. A CaMKIIbeta signaling pathway at the centrosome regulates dendrite patterning in the brain. Nat. Neurosci. , (2011).
- Jia, Y., Zhou, J., Tai, Y., Wang, Y. TRPC channels promote cerebellar granule neuron survival. Nat. Neurosci. 10, 559-567 (2007).
- Huynh, M. A., et al. An isoform-specific SnoN1-FOXO1 repressor complex controls neuronal morphogenesis and positioning in the mammalian brain. Neuron. 69, 930-944 (2011).
- de la Torre-Ubieta, L., Bonni, A. Transcriptional regulation of neuronal polarity and morphogenesis in the mammalian brain. Neuron. 72, 22-40 (2011).
- Calissano, P., et al. Recombinant human insulin-like growth factor I exerts a trophic action and confers glutamate sensitivity on glutamate-resistant cerebellar granule cells. Proc. Natl. Acad. Sci. U.S.A. 90, 8752-8756 (1993).
访问受限。请登录或开始试用以查看此内容。
重印与许可
