Streptococcus pneumoniae 是导致重症社区获得性肺炎的主要病原体,全球每年因此死亡人数超过2 00万。通过使用生物发光细菌,在急性小鼠肺炎或菌血症模型中可实时监测与细菌适应性或毒力相关的细菌因子的作用。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
肺炎是发展中国家和发达国家的主要医疗保健问题之一,与较高的发病率和死亡率密切相关。尽管对该疾病的认识不断深入,重症监护病房(ICU)日益普及,强效抗菌药物和有效疫苗也已广泛应用,但其死亡率仍然居高不下1. 肺炎链球菌 是社区获得性肺炎(CAP)的主要病原体,也是人类菌血症最常见的病因之一。该病原体表面表达多种黏附素和毒力因子,参与肺炎及侵袭性肺炎链球菌疾病(IPD)的发生。对这些 体内 细菌适应性或毒力因子的作用对于揭示其机制至关重要 S. pneumoniae 致病机制。目前正利用小鼠肺炎、菌血症和脑膜炎模型,研究肺炎链球菌在感染不同阶段中各因素的影响。本文描述了一种通过成像系统及配套分析软件,实时监测经鼻内或腹腔接种发光细菌后,肺炎链球菌在小鼠体内播散的实验方案。结果显示,可直观观察并评估肺炎链球菌在下呼吸道和血液中的增殖与播散过程。
引言
由病毒或细菌引起的呼吸道感染仍是全球最常见的社区获得性或临床问题之一,导致全球约三分之一的死亡。主要的细菌种类包括 流感嗜血杆菌 和 肺炎链球菌2. 然而,这些细菌种类通常是呼吸道正常菌群的常见组成部分。因此,细菌定植对个体也存在一定的侵袭性疾病风险,具体风险取决于个体的免疫状态或易感因素。无症状定植可进而发展为侵袭性感染。 肺炎链球菌 是社区获得性肺炎(CAP)的主要病原体,也是人类菌血症最常见的病因之一。在健康个体中 S. pneumoniae (肺炎球菌)通常是上呼吸道无症状且无害的定植菌,在此环境中它们不仅会遇到正常菌群中的非致病性细菌,还会遇到诸如 嗜血杆菌属 spp或 金黄色葡萄球菌 以及人类免疫防御系统的第一道防线。携带率在幼儿中最高(37%),在拥挤的托儿所中甚至更高(58%)3-5最年轻的人群和老年人通过气溶胶传播从携带者及鼻咽分泌物中感染肺炎链球菌6属于高风险人群,在美国和许多欧洲国家建议接种一种肺炎球菌结合疫苗(儿童接种PCV10或PCV13,成人接种23价多糖疫苗PPSV23)4PPSV23 覆盖了在美国和欧洲引起约 90% 菌血症型肺炎链球菌疾病的主要血清型,因此可有效预防成人侵袭性肺炎链球菌病(IPD);而结合型肺炎链球菌疫苗(PCV)则覆盖儿童中最常见的血清型。因此,疫苗型(VT)导致的 IPD 减少,但具有高毒力潜力和抗生素耐药性的非疫苗型血清型已相继出现。4,7-12鼻咽部作为储存库,是肺炎链球菌扩散至鼻窦或中耳并引发有害局部感染的起点。更重要的是,肺炎链球菌可直接传播 通过 气道至支气管和肺部,导致危及生命的社区获得性肺炎(CAP)4,13肺部感染常伴随组织和屏障的破坏,从而使病原体扩散至血液并引发侵袭性肺炎球菌病(IPD)。社区获得性肺炎(CAP)和IPD的发生率在免疫功能低下者以及年龄极端人群中最高。4,13导致共生菌转变为高毒力病原体的具体因素仍在争论之中。然而,除宿主易感性的改变外,进化适应伴随而来的毒力增强以及抗生素耐药性的增加,被认为对肺炎链球菌感染具有关键影响。14-16.
该病原体具有多种黏附素,可介导与黏膜上皮细胞的紧密接触。在穿透呼吸道黏液后,肺炎链球菌对宿主细胞的黏附得以促进 通过 表面暴露的黏附素与细胞受体的直接相互作用,以及利用细胞外基质成分或血清蛋白作为桥接分子4,17,18作为多能病原体,肺炎链球菌还具备多种参与逃逸宿主免疫防御机制的因子。此外,它们能够分别适应宿主体内的不同环境,如肺部、血液和脑脊液(CSF)。5,17,19,20.
在肺炎、菌血症或脑膜炎的实验动物模型中,研究细菌因素对发病机制及宿主炎症反应的影响21-25尽管肺炎链球菌是一种人类病原体,但这些模型已被广泛用于解析肺炎链球菌的组织嗜性、毒力机制或候选疫苗的保护效果。近交系小鼠品系的遗传背景决定了其对肺炎链球菌的易感性。研究发现,经鼻腔感染肺炎链球菌的BALB/c小鼠具有抗性,而CBA/Ca和SJL小鼠对肺炎链球菌感染更为易感。22这意味着,与人类相似,遗传背景和宿主防御机制决定了 感染的结果。因此,有必要进一步努力揭示在肺炎球菌感染中不易感小鼠基因组中的抗性位点。这些发现已导致了以下改变 体内 毒力实验方案。如今,研究肺炎链球菌毒力或适应性因子功能缺失的影响时,通常采用高度易感的远交系 CD-1/MF1 小鼠,而非过去常用近交系 BALB/c 小鼠。26-28此外,生物发光肺炎链球菌与光学成像技术的结合,使得感染过程的实时生物发光成像成为可能。在肺炎链球菌中,经过优化的 luxABCDE 基因盒(质粒 pAUL-A Tn4001 勒克斯ABCDE Kmr) 已通过转座子突变技术插入染色体的单一整合位点。利用生物发光的肺炎链球菌可评估毒力或适应性因子缺陷型突变株的减毒程度,以及其在不同解剖部位之间的移位情况。26,28-31.
本文提供了一种在小鼠肺炎或败血症模型中对肺炎链球菌感染进行生物成像的实验方案。通过鼻内或腹腔感染表达生物发光的肺炎链球菌后,可利用光学成像系统对同一只小鼠在不同时间点进行连续监测,从而实时观察细菌的扩增与播散过程。
访问受限。请登录或开始试用以查看此内容。
方案
此处所述的动物感染实验必须严格遵守当地和国际(例如 欧洲实验动物科学联合会(FELASA)关于脊椎动物使用指南与法规。所有实验须经当地伦理委员会及机构动物护理委员会批准。涉及脊椎动物的所有实验 S. pneumoniae 在实验室中,动物感染操作应在II级生物安全柜中进行。
1. 发光肺炎链球菌感染性菌种的制备
- 在Todd-Hewitt肉汤中制备肺炎链球菌的储备培养物,肉汤中添加1% (w/v) 酵母提取物,并含有终浓度为20%的甘油,用于在-80 °C下保存。
- 将少量深冻保存的肺炎链球菌储备培养物划线接种至血琼脂平板,于37 °C、5% CO2条件下培养细菌10小时。血琼脂平板中应含有适当的抗生素(如卡那霉素,150 µg/ml),以维持luxABCDE基因盒转座插入基因组后的筛选。
- 将新鲜菌落转接至新的血琼脂平板,继续培养不超过10小时。
- 用肺炎链球菌接种THY培养基,该培养基添加10% (v/v) 经热灭活(56 °C下30分钟)的胎牛血清(FBS),初始培养的OD600调至0.05–0.07。
- 将肺炎链球菌在37 °C、5% CO2条件下静置培养,直至培养物OD600达到0.35–0.40,此过程通常需要3–4小时。
- 以3,750 × g离心10分钟收集肺炎链球菌,用含0.5% FBS的磷酸盐缓冲液(pH 7.4,PBS)重悬发光菌体。
- 将接种物用PBS/10% FBS调整至所需浓度。感染剂量取决于所用肺炎链球菌菌株及小鼠的遗传背景。对远交系CD-1小鼠经鼻腔感染S. pneumoniae D39lux时,应将感染剂量调整为20 µl悬浮液中含有1 × 10⁷ CFU,并添加90单位透明质酸酶。切勿振荡或涡旋肺炎链球菌,以免诱发自溶。
- 通过将接种物进行10倍系列稀释后涂布于血琼脂平板,在37 °C、5% CO2条件下过夜培养后计数菌落,以验证接种物浓度。
- 使用光学成像系统检测肺炎链球菌接种物的生物发光信号,以确认其发光活性。
2. 通过鼻内和腹腔感染小鼠接种发光肺炎链球菌
- 使用7-10周龄的雌性远交系小鼠建立急性肺炎和败血症模型。这些小鼠的体重应在20-30 g之间。
- 通过腹腔注射氯胺酮和赛拉嗪对小鼠进行麻醉。为体重20 g的小鼠配制混合液,其中含1.0 mg氯胺酮和0.1 mg赛拉嗪,溶于100 µl无菌0.9 % (w/v)氯化钠溶液中。该剂量相当于氯胺酮50 mg/kg体重,赛拉嗪5 mg/kg体重。为确保准确性,注射麻醉剂前应先称量小鼠体重。
- 将混合液注入腹腔,并将动物放回笼中,直至麻醉起效且动物进入麻醉状态。小鼠呼吸将变得非常缓慢且规律。必须确保小鼠完全麻醉,以避免鼻腔接种和吸入细菌悬液时引起打喷嚏,从而导致接种物丢失。可通过轻捏小鼠尾尖来评估麻醉程度;完全麻醉的小鼠应无反应。
- 轻轻抓起一只已麻醉的小鼠,用手指和拇指夹住小鼠,使其鼻部朝上(图1)。
- 使用带有细长吸头的移液器(Gel Loader Tips),将发光肺炎链球菌以多个微小液滴形式滴加至小鼠鼻孔(每侧鼻孔10 µl)26-29。小鼠会不自主地吸入细菌。保持小鼠直立1-2分钟,并观察其是否打喷嚏或保留接种物。
- 通过鼻腔途径感染7-10周龄CD-1小鼠,分别以1 × 10⁷或7.5 × 10⁷菌落形成单位的D39和TIGR4菌株剂量感染,以实时监测感染进程。在无宿主组织吸收的情况下,该系统的检测下限约为1 × 10⁶个发光细菌。
- 通过腹腔注射(I.P.)途径感染小鼠,用于评估肺炎链球菌在败血症小鼠感染模型中的毒力并进行生物成像。使用D39菌株时剂量为5 × 10³ CFU/100 µl,TIGR4菌株为1 × 10⁴ CFU/100 µl。采用腹腔注射途径时,小鼠无需麻醉。
- 用PBS接种对照组小鼠。

图1. CD-1小鼠经鼻腔感染S. pneumoniae。 点击此处查看高清图像。
3. 利用成像系统可视化肺炎链球菌向肺部和血液的播散
使用实时成像技术观察雌性远交CD1小鼠经鼻感染后肺炎链球菌的体内播散 在体 成像系统
- 打开成像系统,并启动预配置计算机上的图像分析软件。
- 成像系统自动初始化,CCD相机通过热电冷却至 90 °C 在激活之前。
- 成像参数设置和 binning 的选择取决于同时检测的小鼠数量以及生物发光信号的强度。用于监测动物生物发光的视野(FOV)是可变的,放大倍数范围对应于从 22.5 cm FOV(用于检测五只小鼠)到 3.9 cm FOV(用于检测单只小鼠或动物局部区域,如胸部或头部)。
- 常规使用1分钟的曝光时间、中等程度的像素合并(binning)以及22.5 cm的视野(FOV,设置D)。首先选择生物发光成像模式,然后设定成像参数。
- 信号的发射可能取决于所用的细菌菌株和小鼠品系,以及小鼠的色素。在使用时需剃除小鼠胸部的毛发 例如 C57BL/6小鼠,在对这些小鼠的肺炎发展进行成像时具有优势。
- 在预先选定的时间间隔对感染小鼠进行成像。在急性肺炎模型中,以不超过8-12小时的时间间隔测量小鼠的生物发光信号。同时通过观察小鼠的外观、行为及体重减轻情况,监测感染小鼠的健康状况。
- 在成像设备的麻醉舱内对小鼠进行麻醉,开始吸入异氟烷与氧气的混合气体,等待小鼠呼吸变得缓慢且规律。
- 将麻醉后的动物放入系统的成像室中,保持小鼠仰卧位。成像室顶部的CCD相机将对小鼠呼吸道进行成像。
- 将动物的鼻子放入管中,使其吸入麻醉剂。
- 异氟烷进入成像室 通过 通过气体管路维持麻醉。
- 按下成像软件中的“Acquire”按钮,以启动腔室顶部的CCD相机并开始生物发光光学成像。此时,密闭腔室内小鼠的照片会立即显示在屏幕上。经过一分钟的测量后,屏幕上将显示生物发光数据与照片的叠加图像。
- 在软件窗口中出现图像叠加后停止麻醉,并将小鼠放回笼中。
- 监测小鼠的恢复情况。
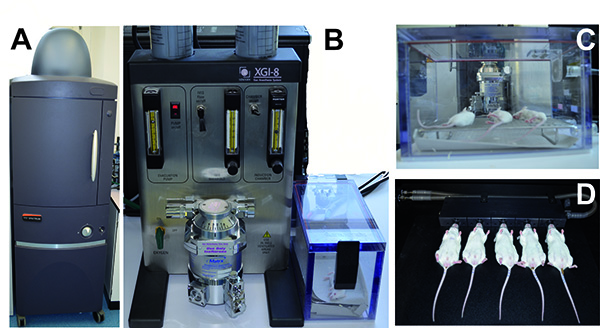
图2. 使用IVIS麻醉系统和IVIS Spectrum系统对感染发光肺炎链球菌的小鼠进行麻醉与监测 AIVIS Spectrum 成像系统 BIVIS 麻醉系统与培养室 C在孵育室内对小鼠进行麻醉。 D小鼠置于IVIS Spectrum成像室内,鼻部吸入麻醉气体。 点击此处查看大图.
4. 感染发光细菌小鼠生物发光的定量与评估 S. pneumoniae
- 通过使用图像分析软件定量总光子发射量(光子/秒),测定小鼠或小鼠选定区域的生物发光强度。
- 使用 Excel 数据表中提供的光子发射值绘制图表。由于分组小鼠之间的数据变异通常较大,因此生成箱线图以显示感染不同肺炎链球菌菌株的小鼠之间的差异。
- 提供每只小鼠的光子数,或以平均辐射通量(光子/秒/平方厘米/球面度)表示结果2选定区域的/sr。
- 在光子模式下,不同样本间感兴趣区域(ROI)的测量数据可进行定量比较 体内 由于以辐射度为单位的测量会自动考虑相机设置,因此可在具有不同相机设置的成像系统之间进行比较例如 积分时间、 binning、光圈值(f/stop)和视场角
访问受限。请登录或开始试用以查看此内容。
结果
甲硫氨酸的获取和摄取对肺炎链球菌在其宿主生态位中维持适应性至关重要32,33。甲硫氨酸ABC转运系统中的脂蛋白由D39菌株中的spd_0151基因(TIGR4: sp_0149)编码,命名为MetQ32。肺炎链球菌还可产生甲硫氨酸生物合成酶(D39:Spd_0510 – Spd_0511;TIGR4:Sp_0585 – Sp_0586,MetE和MetF)。在化学成分明确的培养基中缺乏甲硫氨酸会影响肺炎链球菌的生长,类似地,缺乏甲硫氨酸结合脂蛋白MetQ也会损害甲硫氨酸的摄取32,33。该缺陷可通过添加高浓度甲硫氨酸得以恢复。在小鼠定植实验中,MetQ缺陷型突变株在与同基因野生型菌株共感染实验中未表现出毒力减弱;然而,在败血症和肺炎小鼠模型中,缺乏MetQ会导致肺炎链球菌毒力减弱,这一点通过细菌载量的测定得以证实32。本研究中使用的IVIS Spectrum实时光学生物成像技术,可对单个感染动物在不同时间点的细菌增殖和播散过程进行连续监测。
...
访问受限。请登录或开始试用以查看此内容。
讨论
所有涉及动物的实验均须获得当地主管部门和伦理委员会的批准。在体内感染实验中,需在感染后的不同时间点测定动物各宿主生态位中的细菌载量。在此类实验条件下,必须在从血液、鼻咽部、支气管肺泡灌洗液或肺、脾、脑等器官中分离细菌之前,将动物处死。为计算每个宿主生态位中的细菌数量,并评估细菌因子对毒力的影响,需分离血液或器官组织,随后进行细菌回收并在固体培养基上接种。细菌载量通过菌落形成单位(CFU)计数进行定量。为获得具有统计学意义的数据,每个时间点均需使用一组小鼠,而在某些实验条件下,由于小鼠数量较多,可能导致实验操作困难。
相比之下,实时生物成像方法耗时较少,可对每只细菌感染的小鼠在一段时间内进行多次监测。该成像技术能够在感染后的不同时间点,甚至在较长时间内,实现对动物体内细菌的可视化观察 时间周期。此外,生物发光 使用光学图像分析软件进行测量可进一步实现量化 由感染动物发射的光子。可限定为小鼠的特定区域,也可考虑整个动物。 在 体内 感染实验中,需以8-12小时为间隔对肺炎链球菌感染小鼠进行监测,因为肺炎链球菌在...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
实验室的研究工作得到了德国研究基金会(DFG HA 3125/3-2,DFG HA 3125/4-2)以及德国联邦教育与研究部(BMBF)医学感染基因组学项目(FKZ 0315828A)对SH的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Todd Hewitt 肉汤 | Carl Roth, Karlsruhe, Germany | X936.1 | |
| 酵母提取物 | Carl Roth, Karlsruhe, Germany | 2363.2 | |
| 血琼脂平板 | Oxoid, Wesel, Germany | PB5039A | |
| 卡那霉素 | Carl Roth, Karlsruhe, Germany | T832.2 | |
| 红霉素 | Sigma-Aldrich,Taufkirchen, Germany | E6376 | |
| 胎牛血清(FBS) | PAA Laboratories, Coelbe, Germany | A11-151 | |
| CD-1 小鼠,雌性 | Charles River, Sulzfeld, Germany | CD1SIFE06W08W | 6至8周龄雌性CD-1小鼠 |
| 克他命 500 mg,Curamed 注射液 | Schwabe-Curamed, Karlsruhe, Germany | ||
| 隆朋 2%,注射液 | Bayer Animal Health, Monheim, Germany | ||
| BD Plastipak 1 ml 注射器 | Becton Dickinson, Heidelberg, Germany | 300015 | 带针头的无菌鲁尔锁式注射器 |
| Gel Loader 吸头 | PeqLab | 81-13790 | MµltiFlex 吸头 |
| 透明质酸酶 | Sigma-Aldrich | H3884-100mg | 来源于牛睾丸的IV-S型透明质酸酶 |
| 氧气 | Air Liquide, Düsseldorf, Germany | M1001L50R2A001 | |
| 异氟烷 | Baxter, Unterschleißheim, Germany | ||
| pGEM-T Easy | Promega, Mannheim, Germany | ||
| 寡核苷酸 | Eurofins MWG, Ebersberg, Germany | ||
| Qiaprep Spin Midiprep 试剂盒 | Qiagen, Hilden, Germany | 27104 | |
| PCR DNA 纯化试剂盒 | Qiagen, Hilden, Germany | 28106 | |
| Living Image 4.1 软件 | Caliper Life Sciences/PerkinElmer, Rodgau, Germany | ||
| XGI-8 气体麻醉系统 | Caliper Life Sciences/PerkinElmer, Rodgau, Germany | ||
| IVIS Spectrum 成像系统 | Caliper Life Sciences/PerkinElmer, Rodgau, Germany | ||
| Biophotometer | Eppendorf AG, Hamburg, Germany |
参考文献
- Niederman, M. S., et al. Guidelines for the management of adults with community-acquired pneumonia. Diagnosis, assessment of severity, antimicrobial therapy, and prevention. Am. J. Respir. Crit. Care Med. 163, 1730-1754 (2001).
- WHO, The global burden of disease: 2004 update. World Health Organization. , (2008).
- Bogaert, D., et al. Colonisation by Streptococcus pneumoniae and Staphylococcus aureus in healthy children. Lancet. 363, 1871-1872 (2004).
- Gamez, G., Hammerschmidt, S. Combat pneumococcal infections: adhesins as candidates for protein-based vaccine development. Curr. Drug Targets. 13, 323-337 (2012).
- Mook-Kanamori, B. B., Geldhoff, M., vander Poll, T., Dvan de Beek, D. Pathogenesis and pathophysiology of pneumococcal meningitis. Clin. Microbiol. Rev. 24, 557-591 (2011).
- Musher, D. M. How contagious are common respiratory tract infections. N. Engl. J. Med. 348, 1256-1266 (2003).
- Brueggemann, A. B., Pai, R., Crook, D. W., Beall, B. Vaccine escape recombinants emerge after pneumococcal vaccination in the United States. PLoS Pathog. 3, (2007).
- Munoz-Almagro, C., et al. Emergence of invasive pneumococcal disease caused by nonvaccine serotypes in the era of 7-valent conjugate vaccine. Clin. Infect. Dis. 46, 174-182 (2008).
- Whitney, C. G. Impact of conjugate pneumococcal vaccines. Pediatr. Infect. Dis. J. 24, 729-730 (2005).
- Whitney, C. G., et al. Decline in invasive pneumococcal disease after the introduction of protein-polysaccharide conjugate vaccine. N. Engl. J. Med. 348, 1737-1746 (2003).
- Lynch, J. P. 3rd, Zhanel, G. G. Streptococcus pneumoniae: epidemiology and risk factors, evolution of antimicrobial resistance, and impact of vaccines. Curr. Opin. Pulm. Med. 16, 217-225 (2010).
- Singleton, R. J., et al. Invasive pneumococcal disease caused by nonvaccine serotypes among Alaska native children with high levels of 7-valent pneumococcal conjugate vaccine coverage. JAMA. 297, 1784-1792 (2007).
- Dockrell, D. H., Whyte, M. K., Mitchell, T. J. Pneumococcal pneumonia: mechanisms of infection and resolution. Chest. 142, 482-491 (2012).
- Lieberman, T. D., et al. Parallel bacterial evolution within multiple patients identifies candidate pathogenicity genes. Nat. Genet. 43, 1275-1280 (2011).
- Yang, J., Tauschek, M., Robins-Browne, R. M. Control of bacterial virulence by AraC-like regulators that respond to chemical signals. Trends Microbiol. 19, 128-135 (2011).
- Young, B. C., et al. Evolutionary dynamics of Staphylococcus aureus during progression from carriage to disease. Proc. Natl. Acad. Sci. U.S.A. 109, 4550-4555 (2012).
- Kadioglu, A., Weiser, J. N., Paton, J. C., Andrew, P. W. The role of Streptococcus pneumoniae virulence factors in host respiratory colonization and disease. Nat. Rev. Microbiol. 6, 288-301 (2008).
- Voss, S., Gamez, G., Hammerschmidt, S. Impact of pneumococcal microbial surface components recognizing adhesive matrix molecules on colonization. Mol. Oral Microbiol. 27, 246-256 (2012).
- Koppe, U., Suttorp, N., Opitz, B. Recognition of Streptococcus pneumoniae by the innate immune system. Cell. Microbiol. 14, 460-466 (2012).
- Paterson, G. K., Mitchell, T. J. Innate immunity and the pneumococcus. Microbiology. 152, 285-293 (2006).
- Gerber, J., et al. A mouse model of Streptococcus pneumoniae meningitis mimicking several features of human disease. Acta Neuropathol. 101, 499-508 (2001).
- Gingles, N. A., et al. Role of genetic resistance in invasive pneumococcal infection: identification and study of susceptibility and resistance in inbred mouse strains. Infect. Immun. 69, 426-434 (2001).
- Holmes, A. R., et al. The pavA gene of Streptococcus pneumoniae encodes a fibronectin-binding protein that is essential for virulence. Mol. Microbiol. 41, 1395-1408 (2001).
- Koedel, U., Klein, M., Pfister, H. W. New understandings on the pathophysiology of bacterial meningitis. Curr. Opin. Infect. Dis. 23, 217-223 (2010).
- Medina, E. Murine model of pneumococcal pneumonia. Methods Mol. Biol. 602, 405-410 (2010).
- Hartel, T., et al. Impact of glutamine transporters on pneumococcal fitness under infection-related conditions. Infect. Immun. 79, 44-58 (2011).
- Hermans, P. W., et al. The streptococcal lipoprotein rotamase A (SlrA) is a functional peptidyl-prolyl isomerase involved in pneumococcal colonization. J. Biol. Chem. 281, 968-976 (2006).
- Jensch, I., et al. PavB is a surface-exposed adhesin of Streptococcus pneumoniae contributing to nasopharyngeal colonization and airways infections. Mol. Microbiol. 77, 22-43 (2010).
- Kadioglu, A., et al. Pneumococcal protein PavA is important for nasopharyngeal carriage and development of sepsis. Mol. Oral Microbiol. 25, 50-60 (2010).
- Orihuela, C. J., Gao, G., Francis, K. P., Yu, J., Tuomanen, E. I. Tissue-specific contributions of pneumococcal virulence factors to pathogenesis. J. Infect. Dis. 190, 1661-1669 (2004).
- Francis, K. P., et al. Visualizing pneumococcal infections in the lungs of live mice using bioluminescent Streptococcus pneumoniae transformed with a novel gram-positive lux transposon. Infect. Immun. 69, 3350-3358 (2001).
- Basavanna, S., et al. The effects of methionine acquisition and synthesis on Streptococcus pneumoniae growth and virulence. PLoS One. 8, (2013).
- Hartel, T., et al. Characterization of central carbon metabolism of Streptococcus pneumoniae by isotopologue profiling. J. Biol. Chem. 287, 4260-4274 (2012).
- Hammerschmidt, S., et al. The host immune regulator factor H interacts via two contact sites with the PspC protein of Streptococcus pneumoniae and mediates adhesion to host epithelial cells. J. Immunol. 178, 5848-5858 (2007).
- Voss, S., et al. The choline-binding protein PspC of Streptococcus pneumoniae interacts with the C-terminal heparin-binding domain of vitronectin. J. Biol. Chem. , (2013).
- Cartwright, K. Pneumococcal disease in western Europe: burden of disease, antibiotic resistance and management. Eur. J. Pediatr. 161, 188-195 (2002).
- vander Linden, M., Al-Lahham, A., Nicklas, W., Reinert, R. R. Molecular characterization of pneumococcal isolates from pets and laboratory animals. PLoS One. 4, (2009).
- Brehm,, et al. Sequence of the adenine methylase gene of the Streptococcus faecalis plasmid pAM beta 1. Nucleic Acids Res. 15, 3177 (1987).
访问受限。请登录或开始试用以查看此内容。
重印与许可
