本文介绍了制备囊泡、包封转录与翻译系统以及监测蛋白质生成的简单方法。所获得的无细胞体系可作为构建日益复杂的细胞模拟物的起点。
本文内容
摘要
摘要
随着研究兴趣从单个分子转向分子系统,越来越多的实验室致力于从底层构建能够更好地模拟细胞生命复杂性的类细胞体系。迄今为止,已有多种途径可用于构建具有区室结构的类细胞模型,包括利用油包水乳液、微流控装置以及囊泡等方法。每种现有方法都有其特定的优缺点。例如,油包水乳液具有较高的包封效率,但难以有效模拟活细胞的通透性屏障。本文所述方法的主要优势在于操作简便且成本低廉。通过使用常见的实验设备(如离心蒸发仪和挤出器),可将转录-翻译系统包封于磷脂囊泡内部。反应过程可通过荧光光谱法进行监测。这些实验方案可适用于重组蛋白表达、类细胞体系构建、细胞生命最低需求的探索,或遗传线路的组装。
引言
无细胞 体外 转录-翻译反应以及由合成脂质生成囊泡并非新方法。然而,将二者结合形成细胞模拟物则具有显著更高的挑战性1-6。 E. coli 含有或不含T7 RNA聚合酶的细胞提取物均可作为转录-翻译系统的来源7,8细胞提取物中含有可促进蛋白质表达和折叠的其他细胞组分,因而具有优势。或者,也可使用分别纯化的RNA和蛋白质分子混合物, 即 PURE系统9可用于介导囊泡内蛋白质合成4,10-14PURE 系统可用于构建完全定义的细胞模拟体系,且不受细胞提取物中核酸酶活性的干扰。实际应用中,这意味着所需 DNA 模板量显著减少,从而有利于封装效率较低的实验过程。11尽管使用频率较低,但也可利用真核细胞提取物构建细胞模拟物¹⁵。 迄今为止,已有报道关于可感知环境的基因编码包封级联反应及细胞模拟物16-18.
监测转录-翻译反应最简单的方法是测量基因编码元件的荧光或发光信号。通常使用萤火虫荧光素酶19 或使用GFP,尽管 体外 通常通过放射性标记来测量反应。荧光检测还可用于监测囊泡群体的变化。20,21 通过基于流式细胞术的方法进行检测,从而对生物过程的随机性提供一定见解。这些监测方法已被用于定义一组精简的设计原则和元件库,作为构建的基础,其中包括一系列与...兼容的荧光蛋白 体外 转录-翻译22, 遗传结构对表达的影响22, σ因子的活性16,以及转录终止子的效率23然而,要提高构建可预测系统的能力建设,仍有许多工作需要完成 体外基因编码装置
制备囊泡的方法有多种。最常用的方法依赖于在玻璃表面形成一层薄脂质膜,随后将其重悬于水溶液中24。 如果水溶液中含有转录-翻译系统,例如,所形成的囊泡中将有一部分包含蛋白质合成所需的组分。然而,此类方法的包封效率较低,意味着仅有小部分囊泡具有活性。许多其他替代方法虽然具有显著更高的包封效率,但依赖于将油包水乳液液滴转化为囊泡的过程。尽管这类方法未来可能被广泛采用,但目前仍存在需要专用设备以及所获囊泡膜组成发生改变的问题。25油包水至囊泡转化方法的一个显著优势是能够控制膜的层状结构。本文所述方法基于Yomo实验室所描述的薄脂膜法。11 并进行了轻微修改,包括增加了一步均质化处理。该方法操作简便、成本低廉,可获得结构稳定的囊泡,非常适合用于转录-翻译系统的封装。
方案
1. 准备DNA模板
- 从标准实验室菌株中纯化质粒 E. coli,例如 E. coli DH5a 或 Nova Blue 菌株,使用商品化试剂盒进行纯化。或者,线性 PCR 产物也可使用商品化试剂盒以类似方法纯化。用 H 洗脱 DNA2仅限氧。
- 酚-氯仿抽提DNA溶液26.
- 测定DNA浓度和纯度, 例如 通过紫外吸收或其他合适的方法进行检测。为实现高效的转录-翻译,必须使用高纯度的DNA。
2. 制备薄脂膜
- 称取干燥的脂质粉末并溶于溶剂中。对于1-棕榈酰-2-油酰-sn-甘油-3-磷酸胆碱(POPC),储备液以氯仿为溶剂配制成40 mg/ml的浓度。
注意:有机溶剂必须始终使用玻璃移液管和玻璃瓶操作。换句话说,绝不能使用塑料制品。储备液应储存于密封、耐溶剂的棕色玻璃瓶中,并于 -20 °C 保存,最好在氩气环境下储存。 - 分装 12 μmol POPC(220 μl) 40 mg/ml 储存液)加入至 5 ml 圆底烧瓶
- 使用旋转蒸发仪蒸发溶剂(图1)以形成薄脂膜。
- 用圆形夹具将圆底烧瓶牢固地固定在蒸馏管上,并启动烧瓶的旋转。
- 启动冷凝管中水的循环。由于氯仿在常压下的沸点较低,为61.2 °C,因此无需使用加热浴。
- 通过检查活塞是否打开,确保系统与大气相通。开启真空泵,然后缓慢关闭活塞,使系统逐渐抽真空。
- 在旋转蒸发过程中,脂质薄膜会沉积在圆底烧瓶的瓶壁上,形成肉眼可见的不透明薄膜。继续旋转蒸发0.5–2小时。停止操作时,缓慢释放真空压力,停止旋转,然后取下圆底烧瓶。
3. 脂质重悬与囊泡均质化
- 在圆底烧瓶中,直接向薄脂膜加入 1 ml 18.2 MΩ H2O。以最大速度(约 3,200 rpm)剧烈涡旋振荡溶液,直至脂膜从玻璃壁上脱落,此过程可通过肉眼观察确认。
- 将脂质分散液转移至 2 ml 微量离心管中。
- 架设铁架台以固定带有 5 mm 探头的均质器。在均质器下方放置微量离心管架,以稳固固定脂质分散液。将探头浸入 18.2 MΩ H2O 中并运行数秒,以冲洗均质器的分散元件。
- 将分散元件直接插入脂质分散液中,确保探头不接触微量离心管底部。在功率等级 4 或 14,000 rpm 条件下均质 1 分钟。
4. 囊泡挤出与冻干
- 组装微型挤出器的各个部件(图2),该装置由一个外壳和一个固定螺母组成,固定螺母内包含两个聚四氟乙烯(PTFE)内膜支撑件、两个O形圈和一个聚四氟乙烯轴承。
- 将两个O形圈放入内膜支撑件的凹槽中。预先润湿两个滤膜和一张400 nm的膜。滤膜将被放置在O形圈内的聚四氟乙烯表面,膜则夹在两层滤膜之间。
- 将带有滤膜夹层(膜位于两层滤膜之间)的膜支撑件放入挤出器外壳中,O形圈位于两侧。将聚四氟乙烯轴承放入外壳内,然后安装固定螺母并用手拧紧。
- 冲洗两个注射器,并用18.2 MΩ水填充其中一个。将注射器针头插入挤出器组件两端聚四氟乙烯上的小孔中。针头应能轻松滑入;切勿强行插入。将装有注射器的挤出器固定在挤出器支架中并紧固。
- 通过缓慢推动一个注射器中的水进入另一个注射器,使水穿过挤出器。此过程为一次过膜。重复该操作,共进行三次过膜,确保无泄漏现象。移除装水的注射器,并弃去其中的水。
- 用样品填充一个注射器,连接至挤出器,并按照步骤4.3所述方法缓慢将囊泡溶液推过膜。重复10次 ,共完成11次过膜。随着挤出过程的进行,样品的浑浊度会逐渐降低,推动时阻力减小。然而,若阻力突然下降,通常表明膜已破裂。
- 转移挤出后的囊泡溶液,并将囊泡分装为每份40 μl ,分装至微量离心管中。使用干冰或液氮对每份样品进行速冻。
- 使用离心蒸发仪在30 °C下过夜冻干每份样品。将冻干后的空囊泡储存于-20 °C环境中。
5. 包埋转录-翻译系统
- 混合转录-翻译反应的各组分,并加入20单位的RNase抑制剂。冰上孵育。
- 加入DNA模板。作为对照反应,建议使用250 ng编码mVenus或类似荧光蛋白的质粒,该质粒应位于T7转录启动子和强E. coli核糖体结合位点下游。
- 用无RNase的水将终体积调至25 μl 。
- 用步骤5.3中配制的反应液10 μl 重悬一份冻干囊泡(来自步骤4.6)。短暂涡旋混合液,直至囊泡完全重悬,此过程应少于30秒。
- 将反应体系置于冰上孵育30分钟,使囊泡充分膨胀。
- 将囊泡混合物稀释20倍,终体积为30 μl :取1.5 μl 囊泡加入27.0 μl 含50 mM Tris-HCl、50 mM NaCl、pH 7.4的缓冲液中,并加入1.5 μl 20.2 mg/ml 蛋白酶K。此时也可选择添加DNase和RNase替代蛋白酶K,以降解囊泡外物质。
- 在37 °C下孵育至少2.5小时。
6. 显微镜检查
- 在不同时间点观察囊泡及荧光蛋白的生成进展。囊泡的直径将大于用于囊泡挤出的膜的 400 nm 孔径。
- 通过将一个 20 × 5 mm 的硅胶垫片置于标准显微镜载玻片上,制备样品室。用移液器将 10 μl 囊泡加入样品室中。在样品室上覆盖硅化盖玻片。
- 使用适用于所用荧光蛋白的滤光片组,通过明场和荧光显微镜,结合 63X 油浸或类似物镜观察囊泡。
结果
荧光显微镜结果显示,荧光仅在囊泡内部被观察到,因为囊泡外的物质被酶降解(图3)。对于mVenus的表达,在37 °C孵育1.5小时后即可观察到囊泡内荧光,并在6小时内达到最大荧光强度。最佳温度和孵育时间可能因所使用的具体构建体而异。例如,不同的荧光蛋白在温度依赖性方面的成熟过程差异显著。换句话说,蛋白质产生的观察不仅取决于蛋白质的合成与折叠,还依赖于发色团的形成。通过引入膜蛋白孔道以允许转录和翻译所必需的耗竭组分流入,可整体提高蛋白质合成效率27。
建议在无囊泡的条件下进行类似的转录-翻译反应,以确保所使用的遗传构建体具有功能。该对照反应通过荧光光谱法监测比显微镜更为简便。 图4 显示一个 体外 编码mVenus的构建体的转录-翻译反应。未包封反应的总荧光强度远高于类似的囊泡内反应,这是由于包封效率以及囊泡内总体积远小于囊泡外体积所致(即 稀释效应)
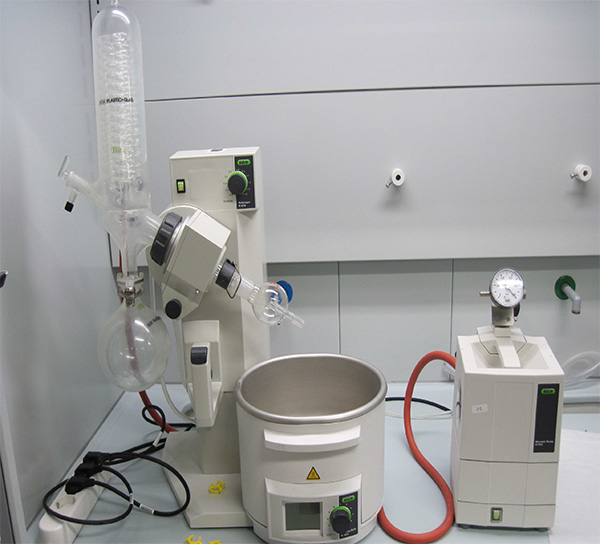
图1. 旋转蒸发仪和真空泵。 点击此处查看大图。
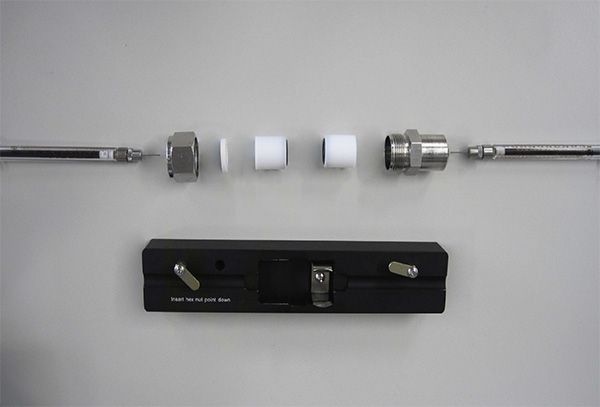
图2. 挤出机的外壳及各部件分别展示。从左至右依次为:注射器、固定螺母、聚四氟乙烯轴承、内部膜支撑结构(黑色O型圈相对放置)、挤出机外壳以及第二个注射器。 点击此处查看高清图像。
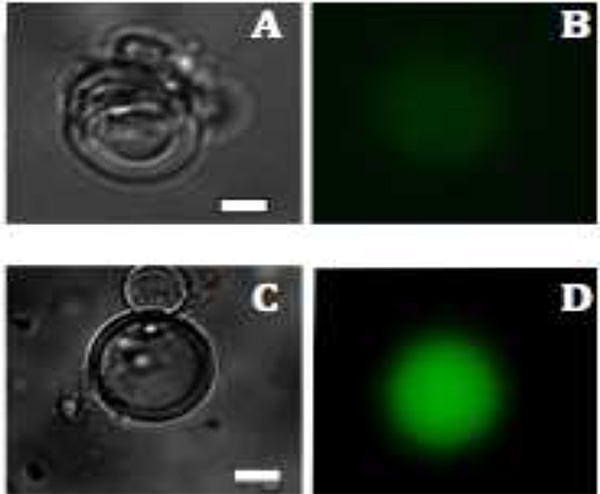
图3. 脂质体中mVenus蛋白生成的荧光图像。A 和 C:多层囊泡在1.5小时和2.5小时后的明场图像。B 和 D:分别在1.5小时和2.5小时后通过荧光(绿色)观察到mVenus的生成。比例尺为20 μm。 点击此处查看高分辨率图像。
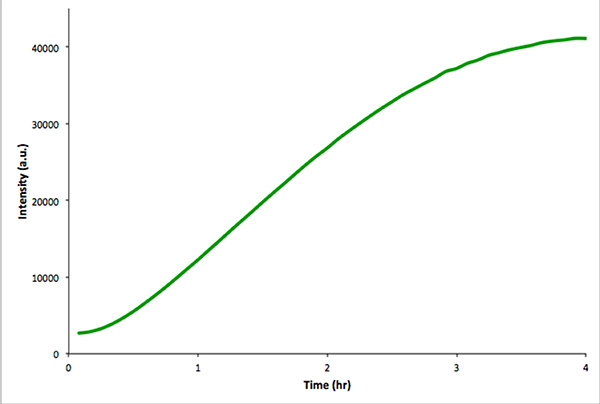
图4. 体外 非包封对照反应 体外 mVenus 的转录与翻译每5分钟测量一次荧光强度,持续4小时。数据由实时PCR仪采集。 单击此处查看大图.
讨论
尽管无细胞合成生物学仍处于起步阶段,但相关进展已为构建日益复杂的类细胞系统奠定了基础。从完全明确的组分中重建转录-翻译系统9 囊泡内部28 在构建环境响应型人工细胞的后续研究中具有重要意义¹⁷,¹⁸。 类似地,人工细胞研究已被用于探究进化过程4,29,30RNA和蛋白质合成的机制细节22,31代谢负荷的影响32,33, 病毒颗粒的组装34重要的是,基于此前的报告及本文所述方案,目前已有足够的知识可在实验室中于囊泡内重建基本的细胞功能。
除了操作简便外,所述的包封程序还具有多种优势。例如,可预先制备大量空的、冻干的囊泡分装样品,并在 -20 °C 下储存以备后续使用。该方案不会使生物分子暴露于有机溶剂、剧烈的温度变化或长时间透析条件下。我们预计,该方法的温和特性将有助于根据需要引入额外组分。此外,我们尚未观察到改变膜的脂质组成对包封效率或转录-翻译效率产生不利影响。因此,理论上可利用更有利于膜蛋白整合、特定形态形成或可视化检测的脂质成分。
该方法的主要局限性在于所获得的囊泡在大小和层状结构上并不均一。对于许多应用而言,这些困难并不会影响数据的解读。然而,如有需要,可引入额外步骤以缩小尺寸分布并减少膜层数量,例如在包封后进行多轮挤出、冻融循环或透析35。 可以肯定的是,未来将开发出能够规避这些问题及其他障碍的更优方法。在出现之前,我们认为本文所述方案非常适合用于构建细胞模拟物。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢Armenise-Harvard基金会、Marie-Curie Trentino COFUND(ACS)、特伦托自治省(Ecomm)以及CIBIO提供的资金支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 快速自旋质粒小提试剂盒 | Qiagen | 27104 | |
| 分光光度计 | NanoDrop 1000 | NDB767ND | |
| POPC | Avanti Polar Lipids | 770557 | 分子量 760 g/mol 相变温度 -2 °C CAS# 26853-31-6 |
| 乙醇 | Sigma Aldrich | 459836 | 无水,>99.5% |
| 酚-氯仿-异戊醇 25:24:1,分子生物学级 | Sigma Aldrich | P3803-100mL | 以 10 mM Tris(pH 8.0)、1 mM EDTA 饱和 |
| 氯仿 | Biotech Grade Fluka | 496189-1L | 含 0.5–1.0% v/v 乙醇作为稳定剂 |
| 棕色琥珀玻璃瓶 | VWR | 89043-518 | 55X 48 mm |
| 旋转蒸发仪 | Buchi Rotovapor R-210/Sigma | Z563846EU-1EA | 配备升降装置和水浴锅,29/32 接口,240 V |
| 模拟涡旋混合器 | VWR | 945300 | 转速 1,000–3,200 rpm |
| 匀浆器 | IKA T10 Basic Ultra-Turbax | 3420000 | |
| 微型挤出器 | Avanti Polar Lipids | 610020 | |
| 挤出器滤膜 | Whatman | 610014 | 排水盘 10 mm |
| 400 nm 聚碳酸酯挤出膜 | Whatman | 61007 | Nuclepore 聚碳酸酯 |
| 真空离心浓缩仪 | Labconco | 7970011 | Centritrap DNA 浓缩器 |
| PURExpress 试剂盒 | New England Biolabs | NRM #E6800S | |
| RNase 抑制剂(40,000 U/ml) | New England Biolabs | #M0307S | |
| 蛋白酶 K(20.2 mg/ml) | Fermentas | #EO0491 | |
| 显微镜 | Zeiss Observer Z1 配备 AxioCam MRm 相机 | ||
| 实时检测 | CFX96 实时荧光定量 PCR 检测系统(Biorad) | ||
| 硅胶密封压片 -Molecular Probe | Life Technologies | P18174 | 耐受温度范围 -25–30 °C |
| 硅化玻璃圆形盖玻片 | Hampton Research | HR3-231 | 直径 = 22 mm |
| ImageJ | NIH |
参考文献
- Forster, A. C., Church, G. M. Towards synthesis of a minimal cell. Mol. Syst. Biol. 2, 1-10 (2006).
- Noireaux, V., Maeda, Y. T., Libchaber, A. Development of an artificial cell, from self-organization to computation and self-reproduction. Proc. Natl. Acad. Sci. U.S.A. 108, 3473-3480 (2011).
- Harris, D. C., Jewett, M. C. Cell-free biology: Exploiting the interface between synthetic biology and synthetic chemistry. Curr. Opin. Biotech. 23, (2012).
- Nishikawa, T., Sunami, T., Matsuura, T., Yomo, T. Directed Evolution of Proteins through In Vitro Protein Synthesis in Liposomes. J. Nucleic Acids. 2012, 1-11 (2012).
- Forlin, M., Lentini, R., Mansy, S. S. Cellular imitations. Curr. Opin. Chem. Biol. 16, 586-592 (2012).
- Chiarabelli, C., Stano, P., Anella, F., Carrara, P., Luisi, P. L. Approaches to chemical synthetic biology. FEBS Lett. 586, 2138-2145 (2012).
- Noireaux, V., Shin, J. Efficient cell-free expression with the endogenous E. Coli RNA polymerase and sigma factor 70. J. Biol. Eng. 4, 1-9 (2010).
- Fujiwara, K., Nomura, S. -iM. Condensation of an Additive-Free Cell Extract to Mimic the Conditions of Live Cells. PLoS ONE. 8, e54155(2013).
- Shimizu, Y., et al. Cell-free translation reconstituted with purified components. Nat. Biotechnol. 19, 751-755 (2001).
- Hosoda, K., et al. Quantitative Study of the Structure of Multilamellar Giant Liposomes As a Container of Protein Synthesis Reaction. Langmuir. 24, 13540-13548 (2008).
- Sunami, T., Matsuura, T., Suzuki, H., Yomo, T. Synthesis of Functional Protiens Within Liposomes. Methods Mol. Biol. 607, 243-256 (2010).
- Murtas, G., Kuruma, Y., Bianchini, P., Diaspro, A., Luisi, P. L. Protein synthesis in liposomes with a minimal set of enzymes. Biochem. Biophys. Res. Commun. 363, 12-17 (2007).
- Pereira de Souza, T., Stano, P., Luisi, P. L. The Minimal Size of Liposome-Based Model Cells Brings about a Remarkably Enhanced Entrapment and Protein Synthesis. ChemBioChem. 10, 1056-1063 (2009).
- Caschera, F., et al. Programmed Vesicle Fusion Triggers Gene Expression. Langmuir. 27, 13082-13090 (2011).
- Noireaux, V., Bar-Ziv, R., Godefroy, J., Salman, H., Libchaber, A. Toward an artificial cell based on gene expression in vesicles. Phys. Biol. 2, P1-P8 (2005).
- Shin, J., Noireaux, V. An E. coli Cell-Free Expression Toolbox: Application to Synthetic Gene Circuits and Artificial Cells. ACS Synth. Biol. 1, 29-41 (2012).
- Kobori, S., Ichihashi, N., Kazuta, Y., Yomo, T. A controllable gene expression system in liposomes that includes a postive feedback loop. Mol. Syst. Biol. 9, 1282-1285 (2013).
- Martini, L., Mansy, S. S. Cell-like Systems with Riboswitch Controlled Gene Expression. Chem. Commun. 47, 10734-10736 (2011).
- Noireaux, V., Bar-Ziv, R., Libchaber, A. Principles of cell-free genetic circuit assembly. Proc. Natl. Acad. Sci. U.S.A. 100, 12672-12677 (2003).
- Sunami, T., et al. Detection of Association and Fusion of Giant Vesicles Using a Fluorescence-Activated Cell Sorter. Langmuir. 26, 15098-15103 (2010).
- Saito, H., et al. Time-Resolved Tracking of a Minimum Gene Expression System Reconstituted in Giant Liposomes. ChemBioChem. 10, 1640-1643 (2009).
- Lentini, R., et al. Fluorescent Proteins and in Vitro Genetic Organization for Cell-Free Synthetic Biology. ACS Synth. Biol. , (2013).
- Du, L., Villarreal, S., Forster, A. C. Multigene Expression In Vivo: Supremacy of Large Versus Small Terminators for T7 RNA Polymerase. Biotechnol. Bioeng. 109, 1043-1050 (2011).
- Trochilin, V. P., Weissig, V. Liposomes: A Practical Approach. , 2nd edn, Oxford University Press. (2003).
- Walde, P., Cosentino, K., Engel, H., Stano, P. Giant vesicles: preparations and applications. ChemBioChem. 11, 848-865 (2010).
- Sambrook, J., Russell, D. W. Molecular Cloning. , 3rd edn, Cold Spring Harbor Laboratory Press. (2001).
- Noireaux, V., Libchaber, A. A vesicle bioreactor as a step toward an artificial cell assembly. Proc. Natl. Acad. Sci. U.S.A. 101, 17669-17674 (2004).
- Yu, W., et al. Synthesis of Functional Protein in Liposome. J. Biosci. Bioeng. 92, 590-593 (2001).
- Caschera, F., et al. Stable vesicles composed of monocarboxylic or dicarboxylic fatty acids and trimethylammonium amphiphiles. Langmuir. 27, 14078-14090 (2011).
- Pereira de Souza, T., Steiniger, F., Stano, P., Fahr, A., Luisi, P. L. Spontaneous crowding of ribosomes and proteins inside vesicles: a possible mechanism for the origin of cell metabolism. ChemBioChem. 12, 2325-2330 (2011).
- Niederholtmeyer, H., Xu, L., Maerkl, S. J. Real-Time mRNA Measurement during an in Vitro Transcription and Translation Reaction Using Binary Probes. ACS Synth. Biol. 10, (2012).
- Stögbauer, T., Windhager, L., Zimmer, R., Rädler, J. Experiment and mathematical modeling of gene expression dynamics in a cell-free system. Integr. Biol. 4, 494-501 (2012).
- Lazzerini-Ospri, L., Stano, P., Luisi, P., Marangoni, R. Characterization of the emergent properties of a synthetic quasi-cellular system. BMC Bioinformatics. 13, 1-10 (2011).
- Shin, J., Jardine, P., Noireaux, V. Genome Replication, Synthesis, and Assembly of the Bacteriophage T7 in a Single Cell-Free Reaction. ACS Synth. Biol. 1, 408-413 (2012).
- Zhu, T. F., Szostak, J. W. Preparation of Large Monodisperse Vesicles. PLoS ONE. 4, 1-4 (2009).
重印与许可
