病毒颗粒附着于表面是通过超分辨率荧光成像或原子力显微镜(AFM)进行单病毒颗粒成像的前提条件。本文展示了一种用于实现病毒颗粒在玻璃表面可控黏附的样品制备方法,适用于原子力显微镜和超分辨率荧光成像。
本文内容
摘要
摘要
病毒颗粒在玻璃表面的固定是单病毒成像中的关键步骤。本文介绍了一种源自单分子成像实验的技术 ,可实现单个病毒颗粒特异性地黏附于玻璃表面。该样品制备方法基于在玻璃表面接枝PLL-g-PEG与PLL-g-PEG-Biotin的混合物,随后添加亲和素层,最终通过生物素化病毒特异性抗体的结合形成病毒锚定位点。我们已在多种实验中应用该技术,包括原子力显微镜(AFM)和超分辨率荧光成像。该样品制备方法可实现病毒颗粒在表面的可控黏附。
引言
基于电荷的非特异性相互作用通常用于原子力显微镜中病毒颗粒的黏附1,2。这些技术在用于具有非常坚硬衣壳的无包膜病毒颗粒时尤其有效3-6。尽管这些方法在固定样品方面非常有效,但它们无法防止蛋白质非特异性地结合到表面。当尝试使用需要将样品与各种抗体孵育的原子力显微镜和超分辨率荧光技术对病毒颗粒成像时,这种非特异性结合可能带来问题。本文概述了一种用于病毒颗粒特异性固定化的样品制备方法。
聚乙二醇(PEG)接枝到聚-L-赖氨酸(PLL)上并吸附于玻璃表面,可有效阻断蛋白质与玻璃之间的静电相互作用7。需要将单个分子固定在玻璃表面的单分子检测技术已利用这一特性,发展出一种基于PEG的单分子固定化方法8-10。该方法还曾用于将网格蛋白笼结构固定在玻璃表面11,以及制备均一的纤连蛋白涂层以控制细胞黏附12。
我们采用了基于PLL-g-PEG在玻璃表面吸附的样品制备方法,该方法源自单分子成像技术,并将其应用于水疱性口炎病毒(VSV)单个病毒颗粒的成像。这些单个病毒颗粒通过原子力显微镜(AFM)进行成像。作为对照,还在功能化微珠上进行了类似的实验。此外,还利用超分辨率荧光显微镜对病毒颗粒进行成像,其中使用Alexa 647标记的VSV-G抗体对单个病毒颗粒包膜进行成像。高分辨率荧光成像通过单分子定位来构建图像13-15。fPALM双平面成像技术可在成像平面内实现20 nm、沿光轴方向50 nm的定位分辨率15,16。 本研究中所呈现的超分辨率荧光图像即采用该双平面技术获得。另一种可获得类似结果的技术是STORM13,17,18。
原子力显微镜(AFM)和超分辨率荧光成像结果均显示,通过本文所述方法固定在玻璃表面的水疱性口炎病毒(VSV)能够特异性地结合于玻璃,且非特异性相互作用最小19。本文提供了用于AFM和超分辨率荧光成像实验的样品制备方案。简而言之:首先将洁净的玻璃盖玻片通过吸附PLL-g-PEG和PLL-g-PEG-biotin的混合物进行功能化修饰。通常,该薄膜的设计可使包被表面含有15–25%的功能化生物素。随后将盖玻片与四聚体亲和素孵育。接着使用生物素化的病毒抗体,为病毒颗粒创建特异性的结合位点。抗体的结合可通过两种方式进行。
第一种方法针对原子力显微镜(AFM)进行了优化,但同样适用于超分辨率荧光成像。在该方法中,链霉亲和素包被的表面在病毒黏附之前先与生物素标记的抗体进行孵育。固定后的病毒颗粒再用Alexa 647标记的抗体处理,以覆盖其包膜,从而实现病毒颗粒的超分辨率荧光成像。
第二种方法是在将病毒吸附到经亲和素处理的表面之前,先在溶液中使用生物素化抗体和Alexa 647标记的抗体对病毒进行处理;该方法适用于对病毒包膜回收率要求较高的超分辨率荧光成像实验。此方法的优势在于可实现病毒表面抗体的均匀包被。可将生物素化抗体与Alexa 647标记的病毒抗体按一定比例混合,以确保病毒能够充分吸附至亲和素处理的表面,同时在病毒包膜外表面维持较高的荧光标记浓度。这些Alexa 647标记的病毒抗体未被生物素化,其过量成分可在后续步骤中通过冲洗去除,从而降低背景噪声。
方案
1. 化学试剂准备
- PLL-g-PEG-生物素和亲和素的制备与保存
- 按照生产商说明,将聚合物 PLL-g-PEG-biotin 溶解于 PBS 缓冲液中,浓度为 1.0 mg/ml。
- 根据盖玻片尺寸分装(参见 表1) 并在 -80 °C 下保存,可保存长达一年。
- 亲和素/中性亲和素的制备与保存
- 根据制造商说明,将未标记的亲和素(Avidin)/中性亲和素(NeutrAvidin)溶解于PBS缓冲液中,浓度为1.0 mg/ml。
- 根据盖玻片尺寸分装(参见 表格 1) 并于 -20 °C 保存,可保存长达 3 年。
- 病毒样品制备:在进行本检测之前,根据实验需求和实验室操作规程制备病毒样品。方法5A请采用步骤1.3.1,方法5B请采用步骤1.3.2。
- 在第二阶段之前提前准备好方法5A的病毒样本。制备后1-2天内使用已准备好的病毒样本,或根据盖玻片大小进行分装(参见 表格 1然后在液氮中快速冷冻,并于 -80 °C 保存,可保存长达一年。解冻后请立即使用。
- 为方法5B准备病毒样本,操作类似于1.3.1。在进行5B前预先解冻病毒分装样本,并置于4 °C保存,时间不超过24小时 在与抗体混合之前。
- 准备实验所需的生物素化抗体。
2. 化学处理前盖玻片的清洗
- 将盖玻片放入适当大小的聚四氟乙烯(Teflon)盖玻片架中,使盖玻片保持垂直方向,并浸入装有经滤膜(0.2 μm)过滤的乙醇(190 proof)的烧杯中。
- 在经滤膜过滤的乙醇(190 proof)中对盖玻片进行超声处理30分钟。
- 从乙醇中取出盖玻片,并用超纯水彻底冲洗。
- 将冲洗后的盖玻片放入另一个洁净的聚四氟乙烯架中,并置于盛有1 M NaOH的烧杯中。
- 在1 M NaOH溶液中对盖玻片进行超声处理30分钟。
- 从NaOH溶液中取出盖玻片,并用超纯水彻底冲洗。
- 用氮气流吹干冲洗后的盖玻片,并将其放入洁净干燥的聚四氟乙烯架中。
- 检查盖玻片表面是否存在可见的薄膜或颗粒残留。若仍存在可见物质,则表明盖玻片未被充分清洗和冲洗。如清洗不彻底,需重复步骤2.1–2.7。
- 使用氧气等离子体对盖玻片清洗2分钟。此步骤为可选,但建议执行。
3. PLL-g-PEG 薄膜层的形成
- 在氮气流(或可选的氧气等离子体)干燥后,立即将一张盖玻片水平放置于无菌培养皿中。用移液器吸取适量解冻的PBS缓冲PLL-g-PEG-生物素溶液,滴加在盖玻片中央(参见 表格 1).
- 采用三明治法,将另一块已清洗的盖玻片置于液体上方。注意,该方法包含将两块盖玻片通过其化学处理面相对放置,以孵育其化学薄膜 "活性表面" 彼此相对,仅由当前的化学层隔开。确保液体量充足,使两张盖玻片之间的空间完全充满液体,但液体不会从盖玻片之间泄漏(参见 表格 1)。该 "活性面" 此后指代在三明治结构中与液体接触的盖玻片表面。
- 将培养皿盖盖在盖玻片三明治上,于室温孵育45-60分钟。
- 取下培养皿盖,用镊子夹起夹心结构,注意避免挤压导致液体过多溢出。用拇指和食指轻轻捏住夹心结构,将两个盖玻片在水平方向上相对反向滑动,随后在不触碰活性表面的情况下将两片盖玻片分开。
- 用移液管将25 ml超纯水在活性面上冲洗2–4次,对两个活性面进行清洗,然后用氮气流吹干盖玻片。务必记录清楚哪一侧盖玻片表面为活性面。
- 立即使用盖玻片,或过夜储存 将有活性的一面朝上,置于无菌培养皿中,并放置在无尘、低湿度的环境中。
4. 亲和素结合增强
- 将经 PLL-g-PEG 处理的盖玻片有活性面朝上放入无菌培养皿中。
- 用移液器将适量已解冻的链霉亲和素缓冲液(按步骤 1.2 制备)滴加至有活性面的中央。
- 采用夹心法,将另一张盖玻片(有活性面朝下)覆盖在液滴上。注意盖玻片的有活性面,确保在孵育过程中有活性面与液体接触(见步骤 3.2)。
- 盖上培养皿盖,室温孵育 25–30 分钟。
- 打开培养皿盖,按照步骤 3.4 所述方法将两张盖玻片分开,注意识别并避免触碰有活性面。
- 用超纯水冲洗两个有活性面:在有活性面上方用移液器滴加 25 ml 超纯水,重复冲洗 2–4 次,然后用氮气流吹干盖玻片。注意识别盖玻片的有活性面。立即用于下一阶段实验。
重要提示:根据实验所涉及的检测类型,样本制备有两种不同的方法。实验人员应进行步骤5A,即在添加任何用于超分辨率成像的额外抗体处理之前,先将病毒固定在玻璃表面。5B描述了一种替代方法,即在将病毒锚定到玻璃表面之前,先在溶液中对病毒进行标记。本文所示的代表性数据是采用方法5A制备的。应根据具体的实验检测类型选择合适的方法。
5A. 活性面抗体连接
- 在第4.6步使用氮气流干燥后,立即将经亲和素处理的盖玻片有活性面朝上放置于无菌培养皿中。
- 用移液器吸取适量在缓冲液中解冻的生物素化抗体,加至活性面中央(参见表 1)。
- 将另一张盖玻片(有活性面朝下)以三明治法覆盖在液体上方。注意盖玻片的有活性面,确保在孵育过程中有活性面与液体接触(参见步骤3.2)。
- 将培养皿盖盖上,覆盖于盖玻片三明治结构上,在室温下孵育45–60分钟。
- 移开培养皿盖,按照步骤3.4所述方法分离两张盖玻片,注意识别并避免触碰有活性面。
- 用PBS冲洗两个有活性面:在有活性面上方用移液器加入25 ml PBS,重复2–4次,不要干燥,立即使用。务必确认哪一面为有活性面。
- 将经抗体处理的盖玻片有活性面朝上置于无菌培养皿中,用移液器吸取适量在缓冲液中解冻的病毒,加至有活性面中央。
- 将另一张盖玻片(有活性面朝下)以三明治法覆盖在液体上方。注意有活性面,确保在孵育过程中有活性面与液体接触(参见步骤3.2)。
- 将培养皿盖盖上,覆盖于盖玻片三明治结构上,在室温下孵育45–60分钟。
- 移开培养皿盖,按照步骤3.4所述方法分离两张盖玻片,注意识别并避免触碰有活性面。
- 用PBS冲洗两个有活性面:在有活性面上方用移液器加入25 ml PBS,重复2–4次。不要干燥盖玻片,应立即将其放入盛有PBS的聚四氟乙烯(Teflon)支架和烧杯中。务必确认哪一面为有活性面。
- 立即使用制备好的样品,或在4 °C下用适当的缓冲液保存最多三天,不会显著损失完整性。
重要提示:若样品将用于原子力显微镜(AFM)检测,则制备已完成,可立即使用或按照步骤5A.20– 5A.21所述方法保存。若样品将用于超分辨率荧光成像检测,则继续进行步骤5A.12– 5A.19所述的抗体标记操作。 - 将两张经病毒处理的盖玻片有活性面朝上置于无菌培养皿中,加入足量的蛋白封闭缓冲液,使液滴体积足以覆盖盖玻片中央95%区域,但不使封闭缓冲液流下(通常为100–200 μl)。在室温下孵育60–90分钟。
- 小心移除封闭缓冲液:依次将盖玻片从培养皿中取出,并将液体倒入废液烧杯中。注意避免掉落盖玻片。
- 用PBS冲洗两个有活性面:在有活性面上方用移液器加入25 ml PBS,重复2–4次,不要干燥,立即使用。务必确认哪一面为有活性面。
- 将一张经封闭缓冲液处理的盖玻片有活性面朝上置于无菌培养皿中,用移液器吸取适量在缓冲液中解冻的荧光标记病毒抗体,加至有活性面中央。
- 将另一张盖玻片(有活性面朝下)以三明治法覆盖在液体上方。注意哪一面为有活性面,确保在孵育过程中有活性面与液体接触(参见步骤3.2)。
- 将培养皿盖盖上,覆盖于盖玻片三明治结构上,在室温下孵育30分钟。
- 移开培养皿盖,按照步骤3.4所述方法分离两张盖玻片,注意识别并避免触碰有活性面。
- 用PBS冲洗两个有活性面:在有活性面上方用移液器加入25 ml PBS,重复2–4次,不要干燥,立即使用。务必确认哪一面为有活性面。
- 不要干燥盖玻片,应将其放入盛有PBS的聚四氟乙烯(Teflon)支架和烧杯中。务必确认哪一面为有活性面。
- 立即使用制备好的样品,或在4 °C下用适当的缓冲液保存最多三天,不会显著损失完整性。
5B. 溶液中抗体攻击
该方法是对超分辨率荧光成像标记策略的一种可选优化。通过采用溶液中孵育的方式,可实现病毒表面更佳的抗体包被效果。
- 根据实验需求按比例混合抗体溶液。例如,将 0.01 mg/ml 生物素化抗体与 0.01 mg/ml 荧光标记抗体以 1:4 的比例混合,可获得良好的结合亲和力,并有利于在超分辨率成像实验中实现良好的包膜回收。
- 分别取等量步骤 (5B.1) 和 (1.3) 中制备的抗体溶液和病毒溶液,通过上下吹打数次轻轻混匀。所得溶液可在 4 °C 保存最多 24 小时,待需要时使用 。
- 完成步骤 4.6 后,将经亲和素处理的盖玻片(活性面向上)放入无菌培养皿中。
- 用移液器吸取适量步骤 5B.2 中制备的含抗体的病毒溶液,滴加至活性面中央。
- 采用夹心法,将另一张盖玻片(活性面向下)覆盖在液体上。注意识别活性面,确保在孵育过程中两张盖玻片的活性面均与液体接触(参见步骤 3.2)。
- 将培养皿盖盖上,室温孵育 45–60 分钟。
- 移去培养皿盖,按照步骤 3.4 所述方法分离两张盖玻片,注意标记并避免触碰活性面。
- 用 PBS 冲洗两个活性面,每次滴加 25 ml PBS,重复冲洗 2–4 次。不要让盖玻片干燥,应立即将其放入盛有 PBS 的聚四氟乙烯架和烧杯中。务必清楚标记哪一侧为活性面。
- 制备好的样品应立即使用,或在 4 °C 保存最多三天,期间不会发生显著的完整性损失。
6. 原子力显微镜材料特性测量
- 打开原子力显微镜(AFM)激光器并启动 AFM 软件。在启动对话框中选择所需检测对应的扫描模式。所有必要的窗口应默认打开;若未打开,请参考用户手册以开启所需窗口。
- 根据所需的测量选择合适的悬臂梁,并按照制造商指南将其插入悬臂梁支架中。针对不同的实验条件和类型,有多种悬臂梁可供选择。实验人员应根据自身需求研究并选择合适的悬臂梁。
- 按照制造商指南将悬臂梁支架插入 AFM 探头头部。
- 如果样品将在液体条件下使用,请从储存缓冲液中取出样品,并进入步骤 6.7。
- 如果样品将在常温(干燥)条件下使用,请从储存缓冲液中取出样品,并通过浸入超纯水烧杯中短暂冲洗。注意:这将在样品表面留下一层薄的水合层,可能对弹簧常数较低的悬臂梁产生毛细吸引力。
- 如果样品将在常温(干燥)条件下使用,请用氮气流轻轻吹干样品。
- 用无尘滤纸轻轻擦干盖玻片背面,注意不要触碰样品的活性表面。
- 将样品放入适当的 AFM 样品台中,然后将样品放置于 AFM 载物台上。
- 如果样品将在液体条件下成像,请用移液器将少量缓冲液滴加到样品中心(约 10 μl)。
- 将 AFM 探头置于样品上方。
- 如果样品处于湿润状态,请确保悬臂梁和 AFM 针尖穿透液体表面层,并且悬臂梁与悬臂梁支架之间无气泡存在。
- 按照制造商建议调整 AFM 激光器与悬臂梁的对准,以获得最佳信号。
- 测量悬臂梁共振频率,并根据实验类型设置扫描频率。
- 将 AFM 针尖下降至样品表面,并优化信号设置。
- 以所选模式执行 20 μm 方形的 AFM 扫描。代表性数据的获取使用了轻敲(AC)模式。通过大致高度识别病毒候选颗粒,通常可在玻璃表面观察到尖锐的突起。
- 选择一个病毒候选颗粒,并将扫描头居中定位在其上方。
- 对选定的病毒进行 250 nm 方形扫描(或适当的超分辨率扫描),以获得其拓扑结构和取向。
- 在病毒上选择一点用于材料特性测量(e.g. 对球形病毒选择其中心点进行杨氏模量测量),并按照制造商说明执行测量。
7. 超分辨率成像方法
- 打开超分辨率成像软件,并根据制造商的指南对软件进行校准。
- 使用荧光微球,按照制造商的说明对超分辨率成像设备进行校准。
- 成像前立即配制样品成像缓冲液:将 50 μl 的 1 M MEA 和 100 μl 的 10x Gloxy 加入 850 μl 的储存缓冲液中混合。实验全程将成像缓冲液置于冰上保存。
- 从储存缓冲液中取出已制备的带样品盖玻片,用超纯水冲洗 5 次(每次通过浸入烧杯中完成)。
- 使用无尘滤纸擦干盖玻片的非活性面,注意不要触碰活性面。
- 将盖玻片插入成像系统的样品 holder 中,并向其中加入 250 μl 成像缓冲液。为保持结果的一致性,建议每 2 小时 更换一次样品上的成像缓冲液。
- 用封口膜覆盖样品 holder,以减少与室内环境的大气相互作用。
- 将样品 holder 放入成像设备中进行成像。
- 根据制造商的说明,调节样品至聚焦状态。
- 根据所采用的超分辨率成像技术对样品进行成像。务必调整成像条件,在优化信号的同时减少光可切换荧光染料的同步激活。
重要提示:成像条件取决于样品特性,并根据实验需求而变化。典型的实验中,Alexa 647 在成像缓冲液中可高效地初始化至其暗态,随后通过施加 405 nm 紫外光进行光激活。通过激发在高密度标记样品中稀疏分布的一小部分 Alexa 647 分子,并以主要受限于收集光子数的精度对每个荧光染料分子进行定位,从而获取图像。该过程由软件反复迭代,直至完成预定数量的采集循环。实验人员应确保该设置与样品中每个荧光染料分子均已被光漂白的状态相对应。 - 成像完成后,按照制造商的说明关闭成像设备。软件可保持开启状态以进行数据分析。
- 数据分析高度依赖于具体实验;但在所有情况下,均应通过半高全宽(full width at half maximum)来识别病毒,并将其与已知病毒尺寸进行比较,同时需考虑荧光标记所增加的额外尺寸。
- 为获得更好的可视化效果,可使用超分辨率成像软件中常见的“等表面渲染”(Isosurface rendering)或“体渲染”(volumetric rendering)选项来观察样品。
结果
利用原子力显微镜进行单个病毒颗粒成像:
上述样品制备方案用于将野生型病毒颗粒锚定在玻璃表面。水疱性口炎病毒(VSV)病毒颗粒呈子弹形,长度为180 nm,直径为80 nm。由于该技术可适用于多种病毒颗粒,本文也以生物素标记的36 nm微珠为例进行了演示。所得原子力显微镜(AFM)实验结果如图1所示。需要注意的是,VSV病毒颗粒的杨氏模量(100 MPa)低于无包膜病毒(GPa级别)。单个VSV病毒颗粒的特定图像是在环境条件下采用硬悬臂梁通过轻敲模式获得的。实验目的是将病毒变形至其内部额外的蛋白质密度在AFM图像中表现为凸起的程度。该方法用于检测病毒空腔内的额外蛋白质密度19。
单个病毒颗粒超分辨率成像:
使用 Alexa 647 标记的 VSV-G 抗体,通过方法 5A 对单个 VSV 病毒颗粒的包膜进行包被,用于超分辨率实验。图 2A 显示了样品的大范围扫描图像,用以展示接合密度以及非特异性结合的低水平。在代表性病毒颗粒上病毒包膜的重建结果如图 2B所示(蓝色等值面)。
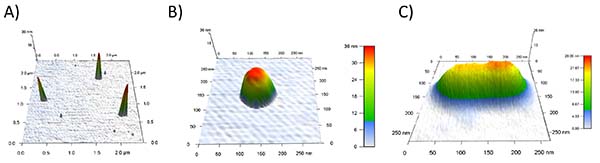
图1. 功能化PEGG表面珠粒与VSV的原子力显微镜成像。 36 nm生物素化珠粒(A,B)和通过生物素化VSVG抗体锚定在表面的VSV病毒颗粒(C)的原子力显微镜扫描图像。AFM在交流空气形貌扫描模式下进行。探针半径<25 nm,测量在力调制和轻敲模式下完成。探针的力常数为3 N/m,共振频率为75 kHz,不确定度为15 kHz。在AFM扫描过程中,珠粒保持其原有高度,而VSV病毒颗粒的杨氏模量显著更小,高度发生明显形变。本图中,病毒颗粒使用刚性悬臂梁在轻敲模式下成像,从而产生较小的xy卷积(用于判断探针与病毒钝端的相对位置),并通过病毒尖端与钝端之间的高度差异来检测病毒钝端额外的蛋白质密度19。
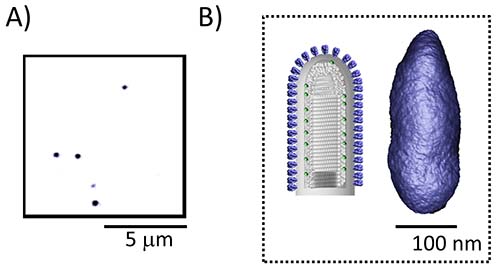
图 2. 在 PEGG 功能化表面上对 VSV 病毒颗粒进行基于荧光的成像。 A) 利用生物素化抗 VSVG 抗体将重组 VSV 病毒颗粒固定在 PEGG 表面,并通过宽场荧光成像。 B) 通过生物素化抗 VSVG 抗体将 VSV 包膜固定在 PEGG 表面,并用 Alexa 647 标记的抗 VSVG 抗体进行标记后获得的高分辨率荧光重建图像(这些图像采用方法 5A 制备)。蓝色表面为二维等值面投影。左侧显示子弹状病毒的模型。
| 盖玻片尺寸 | 液体体积 |
| 40 mm | 65 µl |
| 35 mm | 50 µl |
| 30 mm | 36 µl |
| 25 mm | 25 µl |
| 20 mm | 16 µl |
表1. 根据盖玻片尺寸分配的液体等分量。
讨论
原子力显微镜单个病毒颗粒成像与高分辨率荧光成像可作为冷冻电镜断层扫描的替代方法。每种方法均有其特定优势。例如,原子力显微镜可在野生型病毒颗粒上进行,无需对样本或内部病毒蛋白进行标记。病毒结构的位置信息可通过其对病毒颗粒弹性特性的影响反卷积获得。
单个病毒颗粒的超分辨率成像技术结合新近开发的病毒反向遗传学方法,已成为定位低拷贝数病毒蛋白的一种强大手段20。利用这些反向遗传学方法,可构建并纯化将其蛋白替换为与荧光蛋白融合的重组病毒。尽管超分辨率成像在一定程度上得益于基因标记的特异性,但它需要使用突变病毒。
原子力显微镜(AFM)与超分辨率成像为互补方法,二者采用非常相似的样品制备流程。本文所述方法源自早期的单分子成像实验,可实现单个病毒颗粒的有效锚定,且对病毒颗粒的拓扑结构影响极小。
披露
作者在本文中无竞争性财务利益。
致谢
感谢 Till Böcking 博士提供的原始单分子制备方案。 本研究由美国国家科学基金会资助项目 1121972(SS)支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 玻璃盖玻片(fPALM) | Electron Microscopy Services | 72225-01 | 25 mm 盖玻片 |
| PLL(20)-g[3.5]-PEG(2)/PEG(3.4)-Biotin (20%) | SuSoS | - | 储存液:PBS 中 0.5 mg/ml |
| NeutrAvidin 生物素结合蛋白 | Invitrogen | A2666 | 储存液:PBS 中 0.25 mg/ml |
| Alexa Fluor 647 山羊抗兔 IgG (H+L) | Invitrogen | A21245 | 0.2 M KPO4、0.15 M NaCl、10% 乙二醇、pH 7.2 缓冲液中 1:200 稀释 |
| α-VSV-G | Invitrogen | ab34774 | 0.2 M KPO4、0.15 M NaCl、10% 乙二醇、pH 7.2 缓冲液中 1:200 稀释 |
| Gluox | Sigma | G2133-250KU | 来自黑曲霉的葡萄糖氧化酶第七型 |
| 过氧化氢酶 | Sigma | C40-100mg | 牛肝来源的过氧化氢酶 |
| MEA | Sigma | 30070-10G | 半胱胺(MEA) |
| 储存缓冲液 | 50 mM Tris-HCl (pH 8.0) + 10 mM NaCl + 10% 葡萄糖 | ||
| NTE | 10 mM Tris pH 7.4, 100 mM NaCl, 66 mM EDTA | ||
| Slide-A-Lyzer 微型透析装置 | Thermo Scientific | 10,000 分子量截留 | |
| 显微镜盖玻片:35 CIRCLE #1 | Fisherbrand | 35 CIRCLE #1 |
参考文献
- Pang, H. -B., et al. Virion stiffness regulates immature HIV-1 entry. Retrovirology. 10, 4(2013).
- Kol, N., et al. A Stiffness Switch in Human Immunodeficiency Virus. Biophys. J. 92, 1777-1783 (2007).
- Ortega-Esteban, A., et al. Minimizing tip–sample forces in jumping mode atomic force microscopy in liquid. Ultramicroscopy. 114, 56-61 (2012).
- Ortega-Esteban, A., et al. Monitoring dynamics of human adenovirus disassembly induced by mechanical fatigue. Sci. Rep. 3, (2013).
- Hernando-Pérez, M., et al. Physical Virology: Direct Measurement of Phage. phi29 Stiffness Provides Evidence of Internal Pressure (Small 15/2012). Small. 8, 2365-2365 (2012).
- Carrasco, C., et al. DNA-mediated anisotropic mechanical reinforcement of a virus. Proc. Natl. Acad. Sci. U.S.A. 103, 13706-13711 (2006).
- Sofia, S. J., Premnath, V. V., Merrill, E. W. Poly(ethylene oxide) Grafted to Silicon Surfaces: Grafting Density and Protein Adsorption. Macromolecules. 31, 5059-5070 (1998).
- Visnapuu, M. -L., Duzdevich, D., Greene, E. C. The importance of surfaces in single-molecule bioscience. Mol. Biosyst. 4, 394-403 (2008).
- Elenko, M. P., Szostak, J. W., Van Oijen, A. M. Single-molecule binding experiments on long time scales. Rev. Sci. Instrum. 81, (2010).
- van Oijen, A. M., et al. Single-Molecule Kinetics of λ Exonuclease Reveal Base Dependence and Dynamic Disorder. Science. 301, 1235-1238 (2003).
- Böcking, T., Aguet, F., Harrison, S. C., Kirchhausen, T. Single-molecule analysis of a molecular disassemblase reveals the mechanism of Hsc70-driven clathrin uncoating. Nat. Struct. Mol. Biol. 18, 295-301 (2011).
- Cocucci, E., Aguet, F., Boulant, S., Kirchhausen, T. The First Five Seconds in the Life of a Clathrin-Coated Pit. Cell. 150, 495-507 (2012).
- Rust, M. J., Bates, M., Zhuang, X. W. Sub-diffraction-limit imaging by stochastic optical reconstruction microscopy. 3, 793-795 (2006).
- Betzig, E., et al. Imaging intracellular fluorescent proteins at nanometer resolution. Science. 313, 1642-1645 (2006).
- Hess, S. T., Girirajan, T. P. K., Mason, M. D. Ultra-High Resolution Imaging by Fluorescence Photoactivation Localization Microscopy. Biophys. J. 91, 4258-4272 (2006).
- Juette, M. F., et al. Three-dimensional sub-100 nm resolution fluorescence microscopy of thick samples. Nat. Methods. 5, 527-529 (2008).
- Xu, K., Zhong, G., Zhuang, X. Actin, Spectrin, and Associated Proteins Form a Periodic Cytoskeletal Structure in Axons. Science. 339, 452-456 (2013).
- Huang, B., Wang, W., Bates, M., Zhuang, X. Three-Dimensional Super-Resolution Imaging by Stochastic Optical Reconstruction Microscopy. Science. 319, 810-813 (2008).
- Hodges, J., et al. Asymmetric packaging of polymerases within vesicular stomatitis virus. Biochemical and Biophysical Research Communications. 440, 271-276 (2013).
- Lawson, N. D., Stillman, E. A., Whitt, M. A., Rose, J. K. Recombinant vesicular stomatitis viruses from DNA. Proc. Natl. Acad. Sci. U.S.A. 92, 4477-4481 (1995).
重印与许可
