本文描述了用于单神经元微流控阵列化以及芯片内生物材料涂层等离子体图案化水掩模技术的实验方案。利用极少的细胞输入即可制备高度互连的共培养体系。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
Campenot 小室的微流控实现形式已引起神经科学领域的广泛关注。这些相互连接的共培养平台可用于研究多种问题,涵盖发育与功能神经生物学,以及感染和疾病传播等领域。然而,传统系统需要大量的细胞输入(每个腔室数千个细胞),难以适用于研究丰度较低的细胞类型,例如原代多巴胺能substantia nigra、螺旋神经节以及Drosophilia melanogaster神经元,也不适用于高通量实验。此外,高密度培养会导致细胞在局部高度缠结,仅有少数突起(<10%)能够连接两个培养区域。本文介绍了一套简便的微流控与图案化操作流程,以应对上述挑战:(i)一种微流控单神经元阵列化方法;(ii)一种用于等离子体图案化生物材料涂层的水掩蔽方法,可实现神经元的精确定位并促进腔室间的突起生长。由此构建的简约型神经元共培养体系具有高度的跨腔室连接性(>85%),可用于实现单细胞精度的高通量神经生物学实验。
引言
神经组织具有高度复杂性,由多种不同类型的细胞组成,这些细胞在特定的层次和区域中呈现空间有序排列,并通过细胞间接触以及尤其是轴突和树突的延伸形成可塑性的连接。为了更深入地揭示与疾病、发育及正常功能相关的核心机制,迫切需要新的技术手段以提供更大的实验自由度。坎彭诺特小室1,2 以及最近的微加工实现形式3,4 可用于 离体 具有选择性干扰不同胞体群体及其神经突起生长能力的网络化神经元共培养体系的构建。这些微流控装置已被用于研究化学诱导后的轴突变性与再生过程5,6 或激光轴突切断术6-8tau蛋白病9病毒传播10,11,以及轴突中的 mRNA 定位4.
为了拓展神经生物学家的研究能力,需要通过技术发展来构建简化的神经元共培养体系。这有助于解析神经元网络,从而以单细胞和亚细胞精度对系统进行研究。由于所需细胞数量极少,因此为分析稀有细胞类型提供了可能,包括与帕金森病相关的多巴胺能substantia nigra细胞、耳蜗螺旋神经节细胞、外周神经元以及干细胞。此外,这种细胞用量的节约也符合“3R”倡议的要求。利用这些微流控平台,现在可以开展大规模的毒性筛选或其他需要动物神经元的高通量、数据密集型实验研究。
本文描述了一种微流控装置的制备与使用方案。微流控阵列化技术与一种 原位 一种生物材料图案化方法可用于在使用最少细胞数量的情况下,实现高度互连神经元共培养的定位。微流控阵列化基于差异流方法12–15,其中微结构捕获装置位于流体回路内(示意图及扫描电镜图像如图所示) 图1)。路径 0 → 1 的流体阻力较低(R2 > R1) 用于将神经元运输至微结构孔阵列——即神经突生长通道的入口。当单个细胞占据捕获阱时,会局部阻碍流体流动,使流线偏转,从而将后续细胞捕获至相邻的捕获阱中。当阵列中的捕获阱完全被占据时,流体比例发生切换(R1 > R2)以将流线引导至蛇形路径(0 → 2),从而产生旁路运行模式,用于清除多余的神经元。
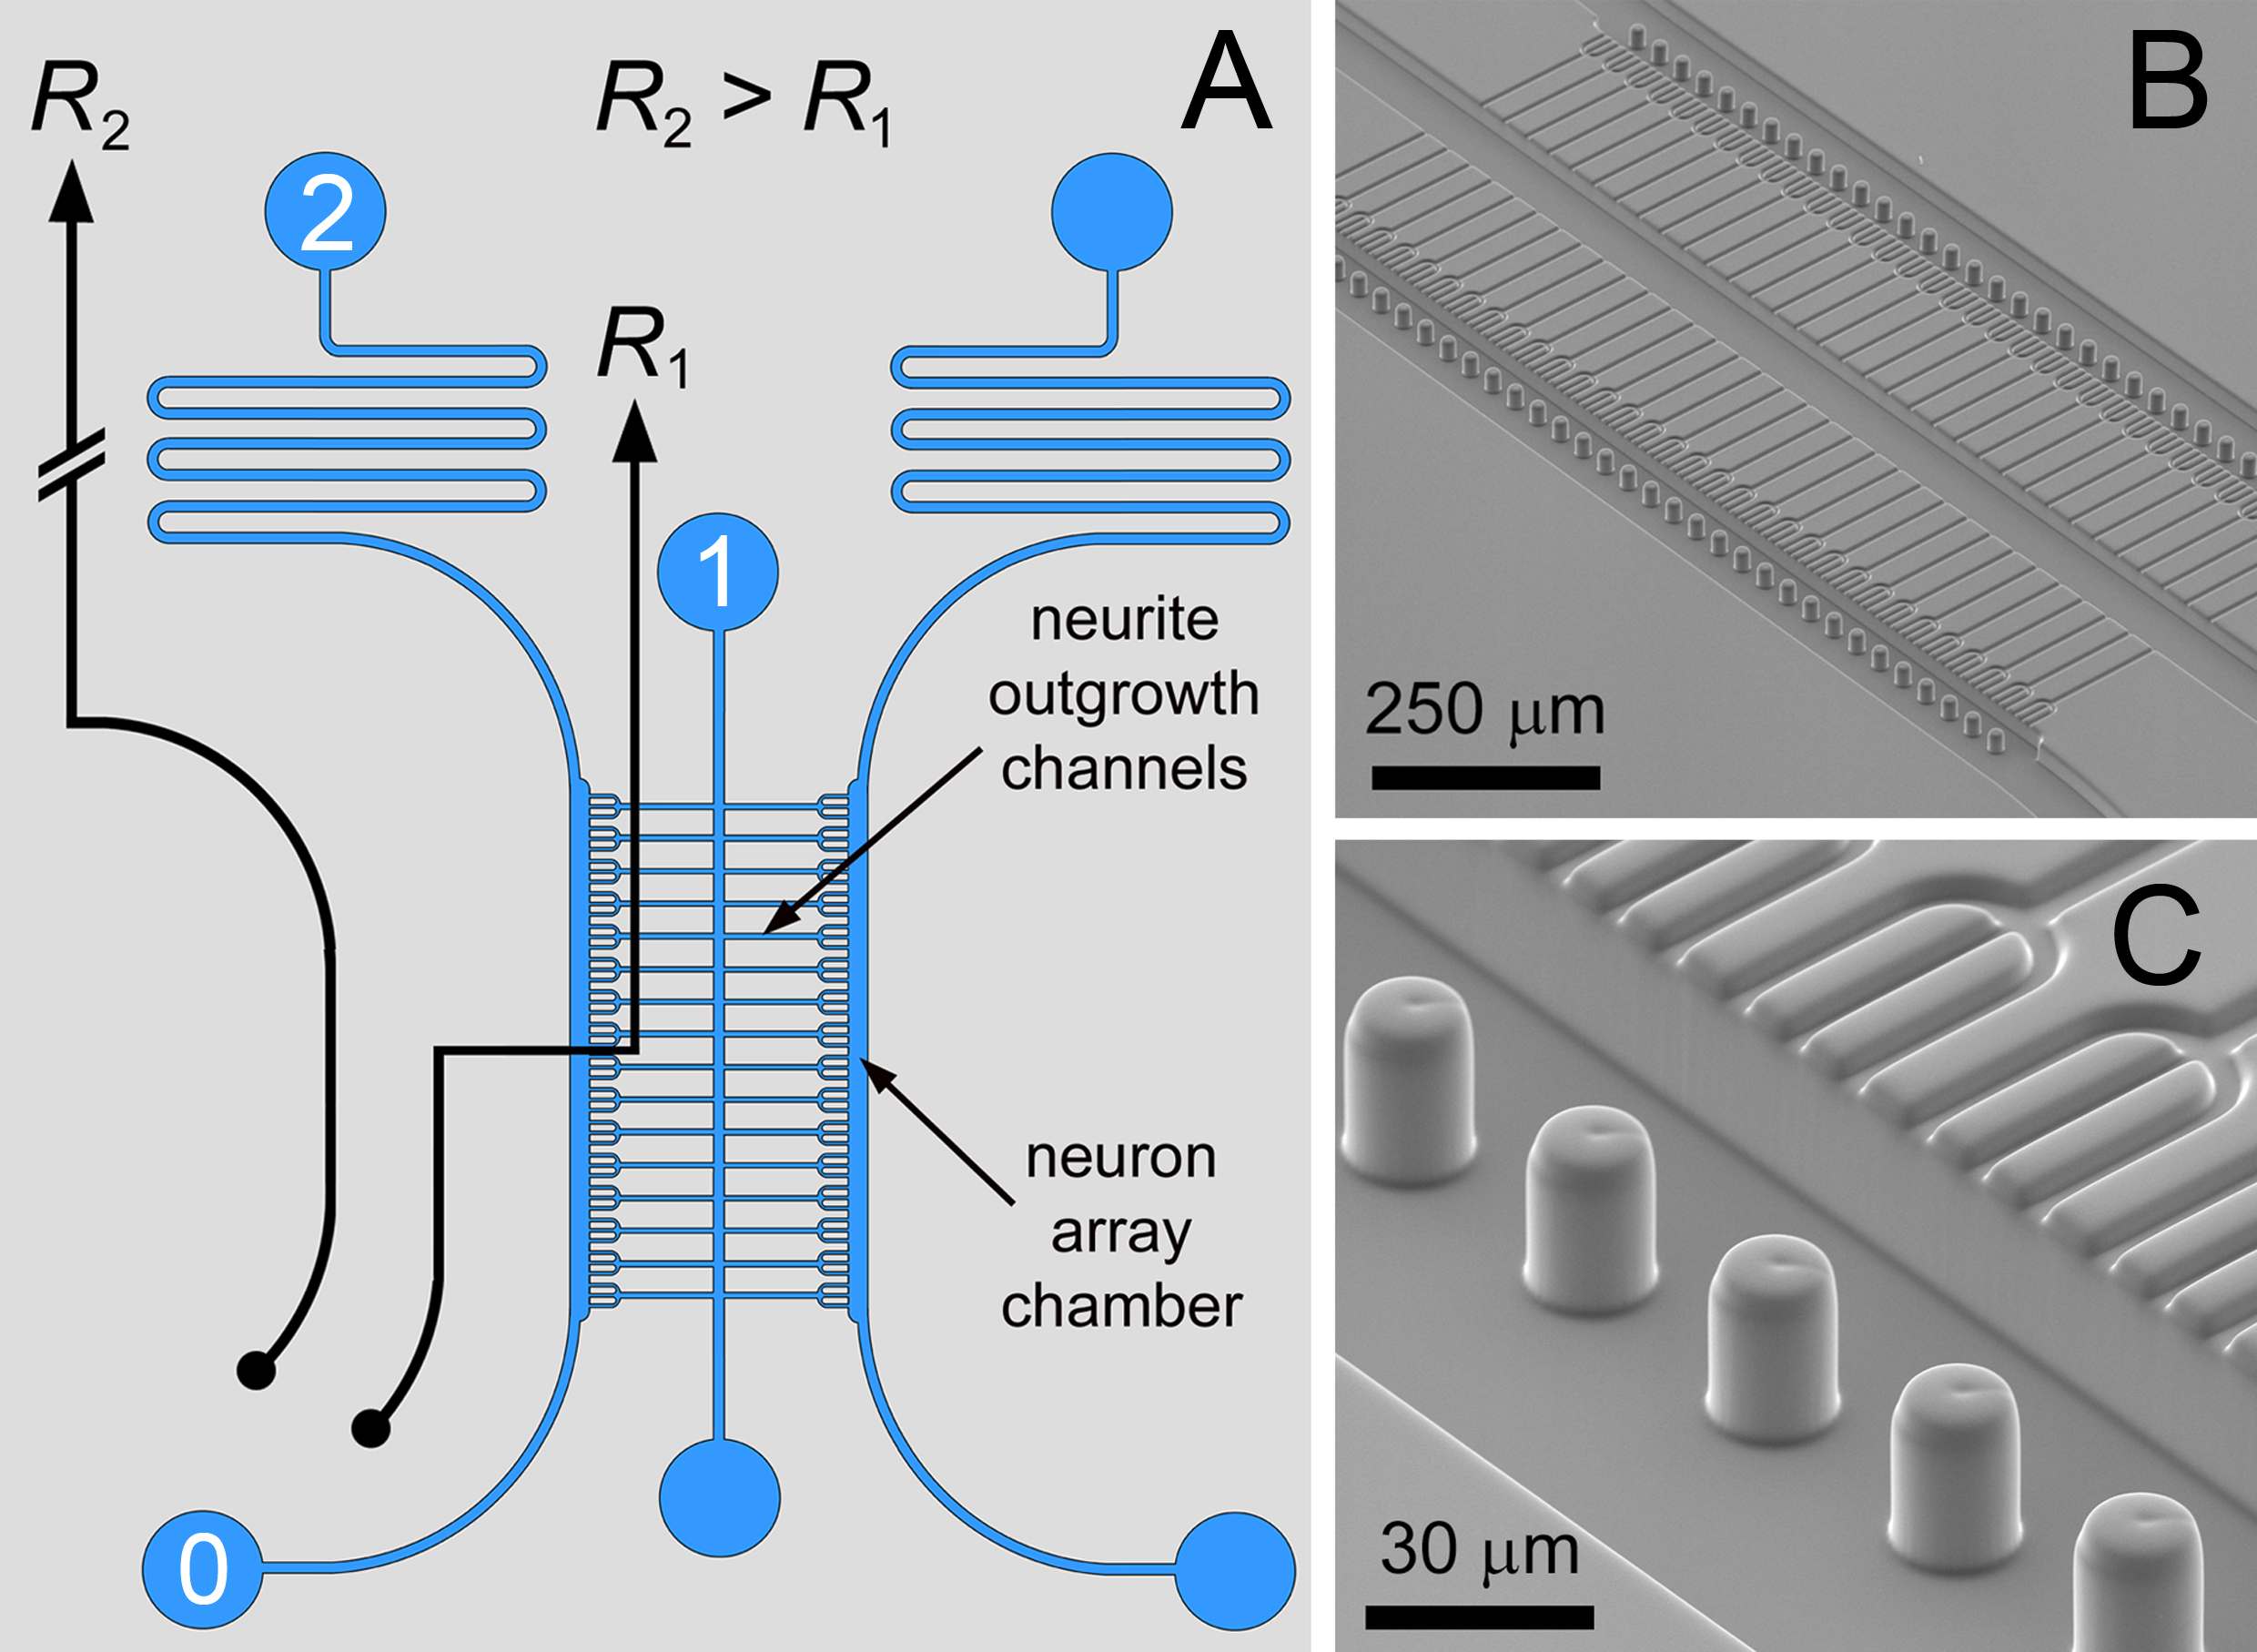
图1.微流控电路。A) 用于单神经元阵列的差分阻力流体回路,两侧培养室通过神经突生长通道相互连接。B,C) 双层分区神经元共培养阵列的扫描电镜图像,显示弯月面钉扎微柱结构。该设计采用三叉形神经元捕获结构,以促进神经突生长的束化。图示及图注经英国皇家化学学会(RSC)许可转载12。点击此处查看高清图像。
在平面基底上制备微图案化神经元网络可轻松实现(参见我们课题组的示例,Frimat 等16 和 Heike 等17)。然而,在PDMS装置内包封生物活性材料图案,并要求这些图案与微流控通道在微米尺度上精确对齐,构成了主要的技术挑战。在第3.1节中,提供了一种芯片内(in-chip)的方案,或 原位, 介绍了生物材料图案的制备方法。这些图案可在长时间培养过程中实现神经元的定位,并促进各隔室之间的神经突起生长。采用弯月面钉扎微结构,将所谓的水掩模与神经元排列位点及神经突延伸通道对齐。水掩模在等离子体处理过程中保护黏附分子涂层,而暴露区域则被降解,从而定义出生物材料图案。此外,还提供了细胞培养以及实现不同共培养隔室选择性处理所必需的流体隔离操作方案。
这些方案旨在利用软光刻的用户友好型原理,实现聚二甲基硅氧烷(PDMS)微流控器件的复制18同样地, 原位 生物材料图案化过程简便,利用蒸发和表面张力现象,仅需一种廉价的手持式等离子体源即可完成。微流控回路可有效编程控制细胞加载及特定腔室的处理,使这些操作简化为将材料加入正确的底部端口并从上方抽吸。该设计旨在使神经生物学家能够在各自实验室中自由地制备和使用微流控装置。
访问受限。请登录或开始试用以查看此内容。
方案
这些方案适用于神经科学家,其概要见图2。因此建议将用于PDMS复制的SU-8模具的微加工外包给商业或机构设施。双层掩模设计可作为补充信息(ZIP格式)在英国皇家化学学会网站上免费获取12。重要的是,第一层SU-8应加工至2.5–3.0 μm深度,第二层应加工至25–30 μm深度。这些是实现有效神经元排列的关键尺寸。3微米的高度限制对于防止神经元在两个区室之间被运输或迁移也至关重要12。
1. PDMS中微流控装置的复制
- 将PDMS预聚物与固化剂(184)按10:1的比例充分混合,并在真空干燥器中对混合物脱气,通常为20分钟。或者,将混合物置于50 ml Falcon管中,采用低速离心处理 离心脱气。
- 将双层微结构SU-8晶圆放置于 80 °C 热板上对齐聚合物框架至晶圆上的每个器件。将PDMS倒入框架中,深度不少于5 mm,并静置 >1 小时,以确保完全热固化。
- 固化后,将晶圆从加热板上取下,并在平坦表面上冷却。
- 佩戴护目镜,使用硬质手术刀从一角(远离SU-8微结构处)开始操作,轻轻撬动框架和PDMS,使其与晶圆分离。
- 从框架上取下PDMS模具,并使用剪刀修剪掉设备上多余的PDMS。这种所谓的毛边通常是在PDMS薄膜在聚合物框架与晶圆表面之间扩散时形成的。
- 剩余的PDMS可涂覆于整个晶圆表面并固化,以在储存期间保护晶圆。在后续器件 molding 前应将其去除,并同时清除表面的任何微粒污染物。
2. 装置组装与连接
- 使用直径为 3 mm 的活检打孔器制备 6 个接口端口。在深色背景表面操作,并在光线良好的条件下进行,确保微结构特征朝上,以利于端口与微流控通道的对齐。
- 检查装置中是否存在颗粒污染物。如有,使用可逆性粘性胶带将其去除。
- 微流控回路通过一层薄的聚二甲基硅氧烷(PDMS)封装,并固定于玻璃盖玻片上:制备方法为将少量 PDMS-固化剂混合物(10:1,601 型号,约 0.5 ml)倒入柔性细菌培养级培养皿底部,轻轻将盖玻片压入 PDMS 层中,置于加热板上热固化数分钟。冷却后立即用手术刀切割并剥离盖玻片-PDMS 双层结构,必要时用剪刀修整边缘。
- 通过等离子体键合将 PDMS 装置与支撑层结合,以实现良好密封:最佳条件因仪器而异。例如,在 0.2 mbar 氧气氛围中,使用 70 W、40 kHz 的等离子体 oven 处理 40 秒,可获得优异的 PDMS–PDMS 键合效果。等离子体处理后,迅速将两部分压合在一起,并静置一分钟以完成完全键合。
- 使用硅胶管(内径 1.6 mm;外径 3.2 mm)连接泵和注射器。
3. 生物材料图案化与微流控操作
原位生物材料图案化、神经元培养和流体处理的实验方案如图2所示。

图2. 微流控操作流程示意图。A)PL 与 PLL-g-PEG 图案化:添加细胞粘附层(例如,PL,绿色),通过蒸发形成取向性水掩模。B) 对暴露的 PL 区域进行大气压空气等离子体处理;使用两个天线针,其中等离子体引入天线以粉红色星号标示。C) 通过抽吸使用 PBS(蓝色)洗涤,以避免 PL 污染等离子体处理区域。D) 通过抽吸递送 PLL-g-PEG(红色),以包覆等离子体处理区域。E) 细胞加样:通过抽吸同时将神经元微流控阵列化至两侧相邻腔室。F) 利用流体静压驱动的灌注方式输送培养基(粉红色)。G) 独立流体处理:通过底部侧边入口抽吸递送测试试剂(黑色),实现外周处理;H) 通过底部中央入口抽吸递送,实现中央处理。该图及图注经英国皇家化学学会(RSC)许可转载12。点击此处查看高清大图。
PDMS微流控通道在等离子体键合后立即表现出高度亲水性(接触角≤5°)。此类表面适用于分化的人源SH-SY5Y类神经元细胞系的黏附与培养。对于原代神经元的ex vivo培养以及神经前体细胞系(如Lund人中脑细胞系(LUHMES))的培养,则需要使用聚阳离子涂层(如多聚赖氨酸(PL)或多聚鸟氨酸(PO))作为静电锚定层。此外,通常还需添加层粘连蛋白或纤连蛋白等黏附蛋白作为整合素相互作用的界面涂层。然而,PL和PO涂层会强烈结合神经元,阻碍神经元在阵列位点的微流控递送,并施加不必要的剪切应力。为解决此问题,需在芯片内进行生物材料图案化,将黏附材料精确定位于捕获位点及轴突延伸微通道区域。这也有助于促进不同腔室间的连接形成,并减少局部缠结。本方案还包括在邻近区域添加聚乙二醇(PEG)材料,以确保在长期培养过程中蛋白质和神经元被限制在目标位置。以下方案详见图3:
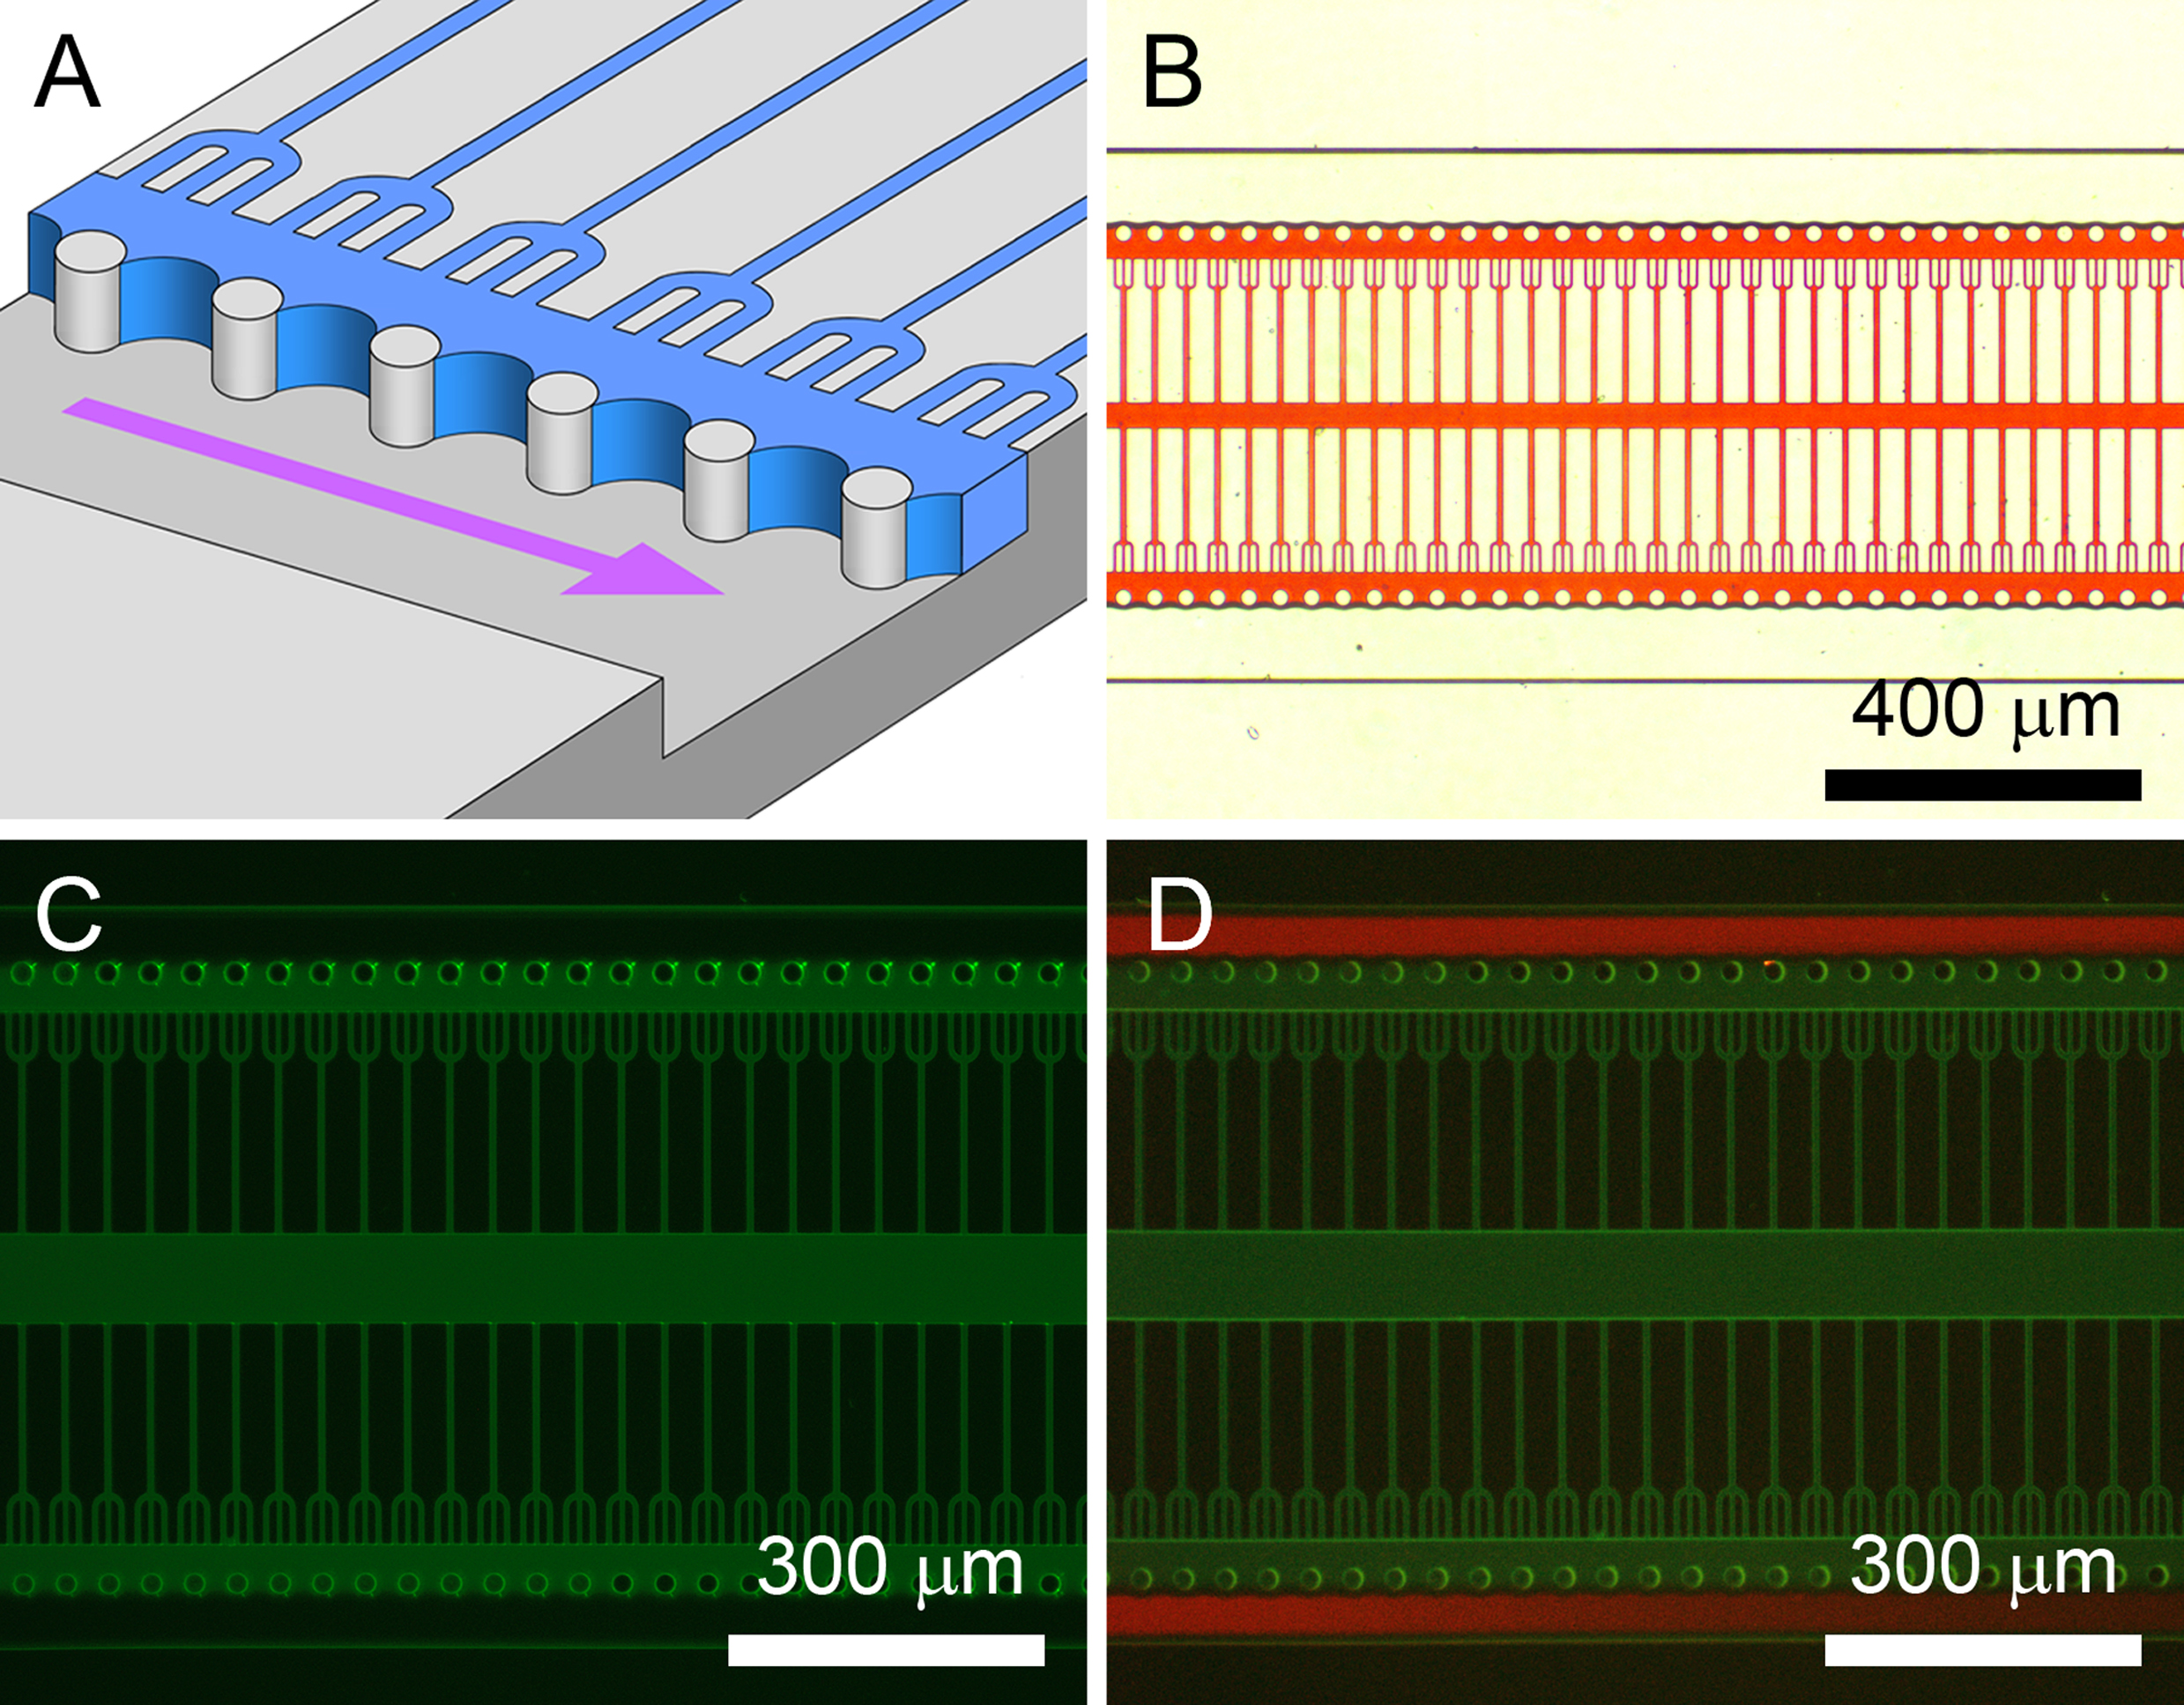
图3. 通过等离子体模板法进行生物材料图案化时的水掩膜技术。A) 水掩膜过程示意图,其中PDMS微柱固定水弯月面位置以实现等离子体模板法。图中忽略了弯月面在垂直平面上的曲率。B) 使用红色染料可视化水掩膜,并通过弯月面钉扎定位。C) 等离子体模板法处理后成像的图案化PL-FITC涂层。D) 在等离子体图案化的PL-FITC涂层上添加抗蛋白吸附和抗细胞黏附的PLL-g-PEG–TRITC。该步骤用于SH-SY5Y细胞的定位,同时也用于为LUHMES细胞图案化额外的纤连蛋白层。本图及图注经英国皇家化学学会(RSC)许可复制12。点击此处查看高清大图。
- 水相屏蔽用于 原位 等离子体掩模技术用于生物材料图案化
- 等离子键合后立即用移液管吸取 0.5 μl PL 或 PO 的体积(100 μg/ml 将1×PBS中的多胺溶液注入底部中央孔口。数秒内,整个微流控通道将通过毛细作用完全充满。静置数分钟,使多胺充分包被亲水性PDMS表面。
- 通过吸液驱动的1x PBS洗涤去除未结合的多胺分子(参见 图2C1 分钟
- 从端口移除所有 PBS,并通过显微镜照射加热装置。这会加快端口中的水分蒸发,从而快速形成水掩膜。水掩膜(如图所示) 图3A 并记录在 图3B约5分钟内建立。
- 通过显微镜检查装置,确保水相掩蔽完全。请注意,阵列位点上游的储液结构已包含在掩膜设计中,以延长水相掩蔽的稳定性(约15分钟)。
- 将不锈钢针插入端口(图2B)。这些用于耦合由常压手持式电晕放电或特斯拉发生器产生的等离子体(例如,工作频率为 2 MHz,信号电压 30 kV19,20 进入空的微流控通道。将等离子体源的尖端指向一根针的尖端附近,对微通道进行等离子体处理,时间不超过1秒。在低光照条件下观察等离子体图案化效果。
- 通过清洗步骤去除水相掩膜。从上方3个端口进行平行吸液。使用4根等长的硅胶管,通过一个四通接头连接至吸液泵,以实现平行吸液。启动吸液的同时,向底部3个端口加入磷酸盐缓冲液(PBS),使PBS流经微流控通道。由此产生PDMS-聚胺材料间的对比(参见 图3C)。抽空微流控回路中的PBS,静置数小时以恢复其天然的疏水状态。这将使聚二甲基硅氧烷(PDMS)完全不允许细胞黏附。
- 如果需要额外的黏附材料(如层粘连蛋白或纤连蛋白),则需执行以下步骤,并在移除水凝胶掩膜后立即进行:用移液器吸取 10 μl 接枝共聚物聚-的体积L-赖氨酸–聚乙二醇(PLL-g-聚乙二醇, 100 μg/ml,加入PBS缓冲液)至两侧下方通道,然后从两侧上方通道吸出,持续2分钟。
- 在不中断液流的情况下,去除多余的PLL-g-通过与PBS缓冲液交换进行PEG化。这会选择性地在非聚胺涂层区域包被PEG基团,从而防止蛋白质吸附和细胞黏附17,21.
- 粘附蛋白(如层粘连蛋白或纤连蛋白)可与多聚胺涂层共定位:移液 10 μl 这些细胞外基质蛋白的体积(通常 10 μg/ml将蛋白溶液加入所有三个底部端口,从顶部三个端口吸液,直至装置充满蛋白溶液,孵育1小时以形成高质量的包被。
- 从底部三个孔中吸去PBS以去除多余的蛋白质。
- 微流控单神经元阵列化
- 用适当的培养基对装置进行预处理。添加 20 μl 将液体加入底部三个端口,并通过上部三个端口并行抽吸,快速用培养基填充微流控回路。使用四通管路连接器,通过等长的硅胶管将上部三个端口连接至抽吸泵。
- 添加 20 μl 单细胞悬液(1 × 10⁶ 细胞/毫升)加入至每个侧边的进样口(0,进 图1).
- 使用带有流量调节器的吸液泵,或用注射器从上方3个端口轻柔吸液。完成神经元排列通常需要1分钟。
- 用移液器收集残留在4个侧翼端口中的过量神经元,用于后续微流控装置中的阵列排布。
- 移除导管,用培养基灌满所有端口,并将装置放入培养箱中。数小时内,细胞将在生物材料图案上完全贴壁。
- 神经元培养、选择性流体处理与免疫染色
- 通过周期性灌注进行换液,利用静水压进样(2 mm 的液柱高度差较为适宜,流速较慢)。
- 或者,将微流控装置浸入培养基中,像常规细胞培养一样定期更换培养基(每2–3天一次)。
- 选择性地对神经元培养区室或中央神经突生长区室进行流体处理的方法如下:分注 20 μl 将待测物质注入目标通道的底部端口,并从正上方的端口进行吸液。对于长时间处理,使用流量调节器降低流速,并根据需要补充待测物质。
- 免疫染色方案因每种分子靶标及其相关试剂而异。为降低剪切力对神经元造成损伤的潜在风险,采用了较慢的流速。这导致灌注系统完全灌注所需时间增加,从而延长了常规操作的时间。利用具有不同液柱高度的灌注口进行静水压灌注(例如 ,使用2 mm的移液器加入试剂。也可使用泵更快速地添加和移除试剂,以缩短实验时间。将抽吸泵连接至上方3个端口,以从底部3个端口吸取试剂。
访问受限。请登录或开始试用以查看此内容。
结果
水掩模利用了表面张力。气液界面处的耐压能力与曲率半径成反比[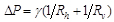 ,因此在微流控尺度下可形成高度稳定的界面。微柱结构能有效固定水掩模的位置。水掩模的形成由微流控端口处的蒸发驱动,并可通过加热加快蒸发速率。利用低倍率(4X - 10X)显微镜照明产生的热量,通常可在≤5分钟内完成水掩模的建立。然而,持续蒸发最终会导致水掩模坍塌。为了将水掩模的寿命延长至约15分钟(满足等离子体光刻的实际需求),已在培养腔室上游设置了18 nl的储液结构。水掩模的形成与坍塌速率可能存在变化,建议间歇性观察以确定适合进行等离子体处理的时间窗口。尽管如此,可同时准备多个装置。
等离子体刻蚀所需时间约为1秒。若处理时间过长,会导致水相掩膜蒸发,从而引起聚胺涂层过度等离子体分解。偶尔因等离子体处理...
访问受限。请登录或开始试用以查看此内容。
讨论
微流控阵列技术是首个能够实现单神经元精确操控以建立简约化培养体系的方法。结合 原位 生物材料图案化方法是一种强大的技术,可将细胞排列模式与微流控结构对齐,这些简约的培养系统具有较高的室间连通性,同时减少了局部缠结。这些特性可用于高效研究室间传递过程,并且通过简单的设计改进,有望实现单根轴突的分离,以便进行可视化和定量分析。例如,在下一代设计中 三叉结构可以被替换为 每个神经元连接一个轴突生长通道,以降低多个轴突形成束状结构的概率。这些功能可显著促进多种神经科学研究应用,包括纳米颗粒毒性研究。24 和锰的传播25,癫痫中的活动同步性,朊病毒等传染性病原体的传播26,阿尔茨海默病中的淀粉样蛋白β(Ab)传播9以及帕金森病中的α-突触核蛋白27.
微流控阵列方法的另一个显著优势在于能够利用稀有神经元亚群进行研究,而非复杂的异质性 培养物。例如,适用于帕金森病研究的多巴胺能
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
作者感谢Ulrich Marggraf(ISAS)在SU-8制备方面的帮助,以及Maria Becker(ISAS)在扫描电镜成像方面的支持。本研究得到了德国研究基金会(DFG WE3737/3-1)、德国联邦教育与研究部资助项目(BMBF 0101-31P6541)以及北莱茵-威斯特法伦州创新、科学与研究部的经费支持。Heike Hardelauf感谢国际莱布尼茨研究生院“系统生物学芯片实验室”提供的经费资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| PDMS Sylgard 184 | Dow Corning | ||
| PDMS Elastosil RT 601 | Wacker | ||
| 盖玻片 | VWR | 630-1590 | 厚度为130-160 mm |
| 3 mm 活检打孔器 | Kai Medical | 小心操作——极其锋利 | |
| Tygon 管 | 费舍尔科技公司 | S-50-HL | 内径1.65 mm;外径3.35 mm |
| 1 ml 注射器(Inkjekt 和 Omnifix) | Braun | 6064204 | |
| 四通管连接器 | VWR 或 费舍尔科技公司 | ||
| 流量调节器 | 哈佛仪器公司 | 722645 | |
| 0.5 mm 针 | 服装裁剪用品部门 | ||
| PLL-g-PEG | SuSoS | PLL(20)-g[3.5]-PEG(5) | 储存稳定性可能存在问题 |
| 聚-D-赖氨酸 | Sigma-Aldrich | P6407 | |
| 聚赖氨酸-FITC | Sigma-Aldrich | P3069 | |
| 聚鸟氨酸 | Sigma-Aldrich | P4957 | |
| 纤连蛋白 | Sigma-Aldrich | F2006 | |
| 层粘连蛋白 | Sigma-Aldrich | L2020 | |
| PBS | Sigma-Aldrich | P4417 | |
| 倒置荧光显微镜 | |||
| 示例负压泵 | KNF Neuberger, Laboport | N811KVP | |
| 手持式电晕放电装置 | Leybold-Heraeus, USA | VP23 | 可能不符合您所在国家的安全标准 |
| 飞秒等离子体炉 | Diener Electronic | ||
| 真空干燥器或离心机 |
参考文献
- Campenot, R. B. Local control of neurite development by nerve growth factor. Proc Natl Acad Sci USA. 74 (10), 4516-4519 (1997).
- Campenot, R. B. Development of sympathetic neurons in compartmentalized cultures. I. Local control of neurite growth by nerve growth factor. Dev Biol. 93 (1), 1-12 (1982).
- Taylor, A. M., et al. Microfluidic multicompartment device for neuroscience research. Langmuir. 19, 1551-1556 (2003).
- Taylor, A. M., et al. A microfluidic culture platform for CNS axonal injury, regeneration and transport. Nat Methods. 2 (8), 559-565 (2005).
- Kilinc, D., et al. Wallerian-like degeneration of central neurons after synchronized and geometrically registered mass axotomy in a three-compartmental microfluidic chip. Neurotox. Res. 19, 149-161 (2011).
- Li, L., et al. Spatiotemporally controlled and multifactor involved assay of neuronal regeneration after chemical injury in an integrated microfluidics. Anal. Chem. 84 (15), 6444-6453 (2012).
- Kim, Y. T., Karthikeyan, K., Chirvi, S., Dave, D. P. Neuro-optical microfluidic platform to study injury and regeneration of single axons. Lab Chip. 9, 2576-2581 (2009).
- Hellman, A. N., et al. Examination of axonal injury and regeneration in micropatterned neuronal culture using pulsed laser microbeam dissection. Lab Chip. 10 (16), 2083-2092 (2010).
- Kunze, A., et al. Co-pathological connected primary neurons in a microfluidic device for Alzheimer studies. Biotechnol. Bioeng. 108 (9), 2241-2245 (2011).
- Liu, W. W., Goodhouse, J., Jeon, N. L., Enquist, L. W. A microfluidic chamber for analysis of neuron-to-cell spread and axonal transport of an alpha-herpesvirus. PLoS One. 3 (6), (2008).
- Markus, A., et al. Varicella-Zoster virus (VZV) infection of neurons derived from human embryonic stem cells: Direct demonstration of axonal infection, transport of VZV, and productive neuronal infection. J. Virol. 85 (13), 6220-6233 (2011).
- Dinh, N. D., et al. Microfluidic construction of minimalistic neuronal co-cultures. Lab Chip. 13 (7), 1402-1412 (2013).
- Tan, W. H., Takeuchi, S. A trap-and-release integrated microfluidic system for dynamic microarray applications. Proc. Natl. Acad. Sci. USA. 104 (4), 1146-1151 (2007).
- Frimat, J. -P., et al. A microfluidic array with cellular valving for single cell co-culture. Lab Chip. 11 (2), 231-237 (2011).
- Di Carlo, D., Aghdam, N., Lee, L. P. Single-cell enzyme concentrations, kinetics, and inhibition analysis using high-density hydrodynamic cell isolation arrays. Anal. Chem. 78 (14), 4925-4930 (2006).
- Frimat, J. P., et al. The network formation assay: A spatially standardized neurite outgrowth analytical display for neurotoxicity screening. Lab Chip. 10, 701-709 (2010).
- Hardelauf, H., et al. High fidelity neuronal networks formed by plasma masking with a bilayer membrane: analysis of neurodegenerative and neuroprotective processes. Lab Chip. 11 (16), 2763-2771 (2011).
- Whitesides, G. M., et al. Soft lithography in biology and biochemistry. Annu. Rev. Biomed. Eng. 3, 335-373 (2001).
- Haubert, K., Drier, T., Beebe, D. PDMS bonding by means of a portable, low-cost corona system. Lab Chip. 6, 1548-1549 (2006).
- Frimat, J. P., et al. Plasma stencilling methods for cell patterning. Anal. Bioanal. Chem. 395 (3), 601-609 (2009).
- Huang, N. P., et al. Poly(L-lysine)-g-poly(ethylene glycol) layers on metal oxide surfaces: surface-analytical characterization and resistance to serum and fibrinogen adsorption. Langmuir. 17, 489-498 (2001).
- Li, N., Folch, A. Integration of topographical and biochemical cues by axons during growth on microfabricated 3-D substrates. Exp. Cell Res. 311 (2), 307-316 (2005).
- Huang, L. R., Cox, E. C., Austin, R. H., Sturm, J. C. Continuous particle separation through deterministic lateral displacement. Science. 304 (5673), 987-990 (2004).
- Yang, Z., et al. A review of nanoparticle functionality and toxicity on the central nervous system. J. R. Soc. Interface. 7, (2010).
- Brenneman, K. A., et al. Direct olfactory transport of inhaled manganese ((MnCl2)-Mn-54) to the rat brain: Toxicokinetic investigations in a unilateral nasal occlusion model. Toxicol. Appl. Pharm. 169 (3), 238-248 (2000).
- Magalães, A. C., et al. Uptake and neuritic transport of scrapie prion protein coincident with infection of neuronal cells. J. Neurosci. 25 (21), 5207-5216 (2005).
- Diogenes, M. J., et al. Extracellular alpha-synuclein oligomers modulate synaptic transmission and impair LTP via NMDA-receptor activation. J Neurosci. 32 (34), 11750-11762 (2012).
- Egger, B., et al. In vitro imaging of primary neural cell culture from Drosophila. Nat. Protoc. 8 (5), 958-965 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
