等温滴定 calorimetry 可测量化学反应中释放或吸收的热流。该方法可用于定量分析酶催化反应。本文概述了仪器设置、实验操作和数据分析的方案,并将其应用于刀豆脲酶催化尿素水解的表征研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
等温滴定 calorimetry(ITC)是一种已有详尽描述的技术,通过测量化学反应过程中释放或吸收的热量,将其作为内在探针来表征几乎所有的化学过程。如今,该技术被广泛应用于测定生物分子结合平衡的热力学参数。此外,ITC 已被证明能够直接测量酶促反应的动力学和热力学参数(kcat, KM, ΔH),尽管这一应用仍尚未得到充分开发。由于在酶催化过程中热量变化会自发产生,ITC 无需对分析体系进行任何修饰或标记,且可在溶液中进行。此外,该方法所需样品量极少。这些特性使 ITC 成为在多种应用中研究酶动力学的一种不可估量、强大而独特的工具,例如药物发现。
本文详细描述了一种基于等温滴定量热法(ITC)的实验方法,用于定量测定酶促反应的动力学和热力学参数。该方法应用于测定刀豆(Canavalia ensiformis)脲酶催化尿素水解反应的kcat和KM值,并计算了该反应的固有摩尔焓变(ΔHint)。所获得的结果与文献中已报道的数据一致,验证了该方法的可靠性。
引言
生化反应的定量测定有助于揭示生命基础的生物学过程。量热法提供了一种无标记的方法,几乎可对溶液中所有化学反应进行定量表征。该技术通过测量反应过程中随时间释放或吸收的热量,实现对反应分子数量的量化,因此是一种通用的检测系统,也是一种极为便捷的定量分析方法。即 结合热力学),以及测量反应速率(即 动力学)。特别是,等温滴定 calorimetry(ITC)已被广泛采用作为表征生物分子平衡热力学的首选方法,涉及蛋白质-配体、蛋白质-蛋白质、蛋白质-金属离子以及蛋白质-DNA 相互作用1-6此外,ITC 能够提供动力学信息,使其成为测量酶催化作用的非常强大的系统,尽管这一应用的潜力仍未被充分认识7-9.
米氏方程10是对酶促反应的定量描述,它提供了反应速率与底物浓度之间的关系,该关系依赖于两个动力学参数:米氏常数(KM)和催化速率常数(kcat)。kcat/KM 的比值被称为酶的催化效率。在实际应用中,测定特定反应的 KM 和 kcat 值,即可对催化过程进行完整的描述。
在典型的酶促反应中(图1),底物(S)与酶(E)结合形成酶-底物(ES)复合物,随后被活化为过渡态(ES*)。该过渡态进一步转化为酶-产物(EP)复合物,最终发生解离。这些步骤可用以下反应式描述。
 (1)
其中,k1 是 ES 复合物形成的速率常数,k-1 是 ES 复合物解离的速率常数,而 kcat 是催化速率常数或转换数。
根据米氏方程10,反应速率可计算如下:
 (2)
其中 KM = (k-1 + kcat)/k1,kcat = vmax/[E],vmax 为所有酶均与底物结合时达到的最大反应速度。
等温滴定微量热仪是本研究中用于表征尿素酶促水解反应的仪器。该仪器由一个绝热屏蔽罩构成,内含两个硬币状的细胞图1)。这些部分通过狭窄的通道管与外部相连。样品池(约 1.4 ml)中加入酶溶液,而参比池通常装入水或分析所用的溶剂。旋转注射器带有长针头和搅拌桨,通常包含 约 将0.3 ml底物溶液加入样品池中。一个热电装置用于测量样品池与参比池之间的温差,并通过“池反馈网络”通过加热或冷却使该温差保持为零。实验过程中,在选定的恒定温度下,将底物注入酶溶液中。当酶促反应发生时,释放或吸收的热量与转化为产物分子的底物分子数量成正比。此外,热流速率与反应速率直接相关。所测得的数据表现为热信号相对于初始基线的偏离图1),表示热功率(μcal/sec仪器向样品池提供的热量,该热量与样品池中随时间发生的热流成正比。

图1. 研究酶促反应的等温滴定量热仪示意图。 将底物(位于注射器中)滴加到酶溶液(位于样品池中)时发生酶促反应,导致量热仪释放的热功率发生变化,以维持样品池与参比池之间温差恒定。点击此处查看高清图像。
总体而言,热量变化(Q)与反应的摩尔焓变(ΔH)以及生成产物的摩尔数(n)成正比,而后者由总体积乘以浓度得到:
 (3)
因此,随时间变化的产物生成量(dP/dt),即反应速率,可通过以下关系式与相同时期内产生的热量(dQ/dt)相关联:
 (4)
根据该方程,要获得米氏动力学曲线,必须测量两个参数:i) 总摩尔焓变 ΔH,以及 ii) 在不同底物浓度下的热流 dQ/dt。通常,这需要通过两个不同的实验来完成:在第一个实验中(方法1,M1),将底物注入酶溶液中,测量底物完全转化所产生的热量;在第二个实验中(方法2,M2),进行多次底物注射,并在不同底物浓度下测量产热速率。这两组数据足以推导出动力学参数 KM 和 kcat
本文介绍了一种利用等温滴定量热法(ITC)测定酶促反应动力学参数的通用实验方案。我们以刀豆(Canavalia ensiformis)脲酶催化的尿素水解反应作为参考体系,应用了该方法。本方法所得结果与文献报道数据具有良好的一致性,表明该方法具有可靠的准确性。
访问受限。请登录或开始试用以查看此内容。
方案
1. 样品制备
- 每次实验运行前,准备 2 ml 酶溶液和 0.5 ml 底物溶液。使用组成完全相同的缓冲液稀释浓缩的酶和底物储备液,以尽量减少底物加入过程中稀释和混合所产生的热量。
- 选择能够有效防止实验过程中 pH 变化的缓冲条件。例如,中性 pH 条件下可使用 20 mM HEPES pH 7。
注意:如果涉及质子交换,必须考虑所用缓冲液的质子化焓,因为它们会影响反应实测的ΔH。还应考虑缓冲液或添加剂分子对被分析体系可能产生的特异性影响。如果酶溶液中包含有机溶剂(例如 DMSO),则必须在底物溶液中加入完全相同的浓度。 - 对于 M1 实验,酶浓度起始范围为 nM 级别(例如 1 nM),底物浓度应至少比酶浓度高三个数量级,并高于 KM。
- 对于 M2 实验,酶浓度起始范围为 pM–nM 级别(例如 15 pM),注射器中的底物浓度为 mM 级别(例如 400 mM)。
注意:在单次注射的 M1 实验中,浓度应足够以确保在实验时间内底物完全转化为产物。因此,酶浓度取决于酶的反应速率:若研究的是低kcat的酶,则需使用较高酶浓度(最高可达 10 µM)。而 M2 实验中所用的酶浓度必须确保每次注入的底物仅被轻微消耗(低于 5%),且酶反应处于稳态。因此,酶效率越高,所需酶浓度越低。实验结束时,样品池中的底物浓度应高于KM。
- 选择能够有效防止实验过程中 pH 变化的缓冲条件。例如,中性 pH 条件下可使用 20 mM HEPES pH 7。
- 使用适当的分析方法(例如 280 nm 处吸光度、比色法、BCA 法11)仔细测定酶和底物的浓度。这是获得热力学和动力学参数准确可靠计算结果的必要步骤。
- 测量溶液的 pH 值,并验证在实验条件下酶溶液与底物溶液之间的 pH 差异最小(±0.05 pH 单位)。
2. 实验操作
注意:M1 和 M2 实验均需采用相同的步骤,这两个实验将依次进行。
- 根据制造商的说明,确认样品池和进样注射器已清洗干净。使用仪器附带的上样注射器吸取蒸馏水,轻轻将针头插入样品池,注入液体后用同一注射器吸出。采用此方法,先用蒸馏水清洗样品池两次,再用缓冲液清洗两次。
- 使用加样注射器将2 ml酶溶液加入样品池中,注意避免产生气泡。缓慢将溶液注入样品池,直至溶液从样品池颈部溢出。产生一股喷射流 约 将0.25 ml溶液注入细胞中,重复两次。此步骤可去除样品池中截留的气泡。
- 将上样注射器的针头置于细胞茎与细胞加样口之间的凸缘处,去除多余的溶液。
- 启动 VP-Viewer 程序,并通过计算机界面将 ITC 仪器平衡至设定温度 3 °C 低于目标实验温度。这是为了避免由于仪器采用被动冷却装置而导致实验前需要过长的平衡时间。
- 用上述相同步骤将蒸馏水加入参比池中。当样品溶液中含有高离子强度或高渗透压的缓冲液时,应使用相同的缓冲液作为参比溶液。
- 将塑料注射器通过一段细硅胶管连接至注样注射器的注液口。将注样针尖插入水中并抽吸,直至液体从顶部注液口溢出,表明注样注射器已充满水。随后将针尖移出水面并吸入空气,排空注样注射器。通过此操作,用缓冲液冲洗注样注射器,并使空气通过整个系统。接着,将注样针插入盛有0.5 ml底物溶液的细管中,小心抽吸并完全充满注样注射器,使少量溶液残留在管底。
- 从计算机界面按下“关闭进样口”。移除硅胶上样管。按下“清洗并重新填充”按钮,使进样注射器排出任何气泡,并将其排回至主体溶液中。重复该步骤两次。
- 移动注射器,在瓶壁侧面擦拭以去除液滴,然后将注射器针头插入样品池中。
- 在计算机上设置适当的运行参数。可输入实验所用的酶和底物浓度。
- 在M1实验中,设置至少两次加样(5-30 µl) 以验证重复性。设置每次注射之间的间隔时间(例如 1,000 秒)足够长,以确保在下一次加样前热信号恢复至基线水平。
- 在M2实验中,设置多个(例如 15 x 5-10 µl)注射。设置注射之间的间隔时间(例如 180 秒,以使系统在每次注射后将热功率稳定至新的基线。
注意:M2 实验中注射之间的时间间隔应足够短,以避免底物发生大量转化,从而确保测量在稳态条件下进行。 - 在M2实验中,使用小体积(例如 2 μl首次注射的数值在后续数据分析中将被舍弃。这是因为初始底物通过注射器针尖扩散以及注射器针头中残留气泡的存在,常常导致数据出现伪影。
- 将参考功率设为20,即反应开始前基线所处的大致水平。然后设定实验所需的酶和底物浓度,并为该实验命名。
- 定义实验温度,通常为 25 °CITC 允许的工作温度范围为 2 °C 和 80 °C实验已准备就绪,按下“开始”按钮以启动实验。
- 实验结束后,根据制造商的说明书清洗样品池和注射器。
- 至少重复实验一到两次,以验证数据的可重复性。
3. 数据分析
- 在分析程序中,点击“Read data”按钮,然后导航至执行的 M2 实验的 .itc 文件所在文件夹。点击“Files of type”旁边的下拉箭头,选择“Enzyme Assay (it?)”。随后点击并打开 M2 实验的 .itc 文件。
- 根据方程 5,通过积分 M1 实验曲线获得反应的ΔH。
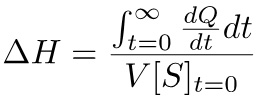 (5)
- 点击“Read data”按钮,选择执行的 M1 实验的 .itc 文件。使用 Origin 软件将曲线划分为多个部分,每个部分包含一个峰,并将每个峰保存为 .opj 文件。打开对应于第一个峰的文件(该峰来源于单次注射 M1 实验热图中基线偏移),对其进行积分,将所得面积值(以 µcal 表示)除以样品池中的终底物浓度(以 µM 表示),再除以样品池体积(以升表示),根据方程 5确定反应的 ΔH。
- 对 M1 实验的第二个峰重复相同操作,并对两次测得的ΔH值取平均。
- 从 M2 实验中测定每次注射后原始基线与新基线之间的差值,从而确定dQ/dt。根据方程 4,利用 M1 实验获得的焓变值将实验数据转换为反应速率,并将数据拟合至米氏方程。
- 在分析程序中,点击“Read data”按钮,选择执行的 M2 实验的 .itc 文件。点击“Files of type”旁边的下拉箭头,选择“Enzyme Assay (it?)”。
- 酶动力学分析对话框将打开,允许从四种模型中选择一种。在窗口中选择“Method 2 - Substrate only”。
- 在ΔH窗口中,输入步骤 4.2 中获得的ΔH值。
- 点击“Concentration”按钮以检查拟合过程中使用的浓度值。点击“Average Time (P)”按钮,对话框将打开,可更改或接受默认值。该值表示仪器在每次注射前用于对功率信号进行平均以确定各底物浓度下功率水平的时间段。点击“确定”确认默认值。
- 点击“Zero Y Axis”按钮,光标将变为十字线,允许双击某一点将其设为 y=0。在第一次注射点之前双击。
- 点击“Calculate Rate”按钮。反应速率将相对于底物浓度作图,底物浓度通过将滴定过程中加入的底物量除以样品池体积(考虑稀释效应)计算得到。此操作生成典型的米氏动力学曲线,可用于拟合获得KM和kcat。
- 若需删除某些数据点,请选择“Truncate Data”按钮。移动数据标记以排除异常数据点,然后双击任一标记或按回车键确认。
- 使用“Fit to model”功能对曲线进行拟合,获得动力学常数。
访问受限。请登录或开始试用以查看此内容。
结果
脲酶(EC 3.5.1.5;尿素氨基水解酶)是一种存在于古菌、细菌、单细胞真核生物和植物中的含镍多亚基酶。该蛋白在有机氮矿化的最后一步发挥作用,催化尿素水解为氨和氨基甲酸酯,后者可自发分解生成第二个氨分子和碳酸氢根(方程式 6)12。
 (6)
该反应导致环境 pH 值整体升高,从而对人类健康和农业产生不利影响13。在植物中,脲酶的主要作用是从精氨酸酶来源的尿素中回收营养氮14。植物脲酶通常是由六个相同亚基组成的同源六聚体 a6,每个亚基的活性位点含有两个 Ni2+ 离子15。其...
访问受限。请登录或开始试用以查看此内容。
讨论
等温滴定量热法(ITC)相较于现有方法在研究酶活性方面的意义
除了经典地用于研究结合平衡外,等温滴定 calorimetry 还提供了一种可靠且快速的方法,通过检测反应热来表征溶液中的酶促反应,无需对系统进行修饰或标记。动力学参数 kcat 和 KM 通常通过一系列时间进程实验获得,其中通过连续或非连续测定法监测产物生成(或底物消耗)。通常,通过特征波长下的光吸收或荧光来测量底物或产物浓度。然而,大多数底物和/或产物在光谱上无活性,因此必须引入发色团或荧光团以追踪反应。或者,可采用偶联测定法,即将催化反应的产物作为另一反应的底物,而该反应具有可检测的产物。然而,这些方法会引入额外的变量,从而降低所测定的 KM 和 kcat 值的准确性。此外,使用传统方法表征小分子配体对酶的抑制作用时,可能会因小分子配体本身具有吸收或荧光特性,干扰光谱测定法的可靠性。其他方法包括停流技术,通过质谱或色谱定量产...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何披露信息。
致谢
感谢 Specialty Fertilizer Products 公司(SFP)为本研究提供了必要的资金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| HEPES | Sigma | H3375 | 溶于水,并用 NaOH 调节 pH |
| TRIZMA-Base | Sigma | T1503 | 溶于水,并用 HCl 调节 pH |
| 磷酸二氢钠 | Riedel-de-Haen | 4270 | 溶于水 |
| 磷酸氢二钠 | Riedel-de-Haen | 30427 | 溶于水 |
| 尿素 | Sigma | U4128 | 在 40 °C 下溶于水 |
| Canavalia ensiformis 脲酶(C-3 型) | Sigma | U0251 | 溶于 20 mM HEPES(pH 7)中,并于 -80 °C 保存 |
| Origin 7.0 上的 VP-ITC | MicroCal (GE Healthcare) | SYS13901 | 仪器 |
| Origin 7.0 上的 VPViewer2000 1.30.00 | MicroCal (GE Healthcare) | 随仪器提供的数据采集软件 |
参考文献
- Leavitt, S., Freire, E. Direct measurement of protein binding energetics by isothermal titration calorimetry. Curr. Opin. Struct. Biol. 11, 560-566 (2001).
- Ladbury, J. E. Application of isothermal titration calorimetry in the biological sciences: things are heating up! BioTechniques. 37, 885-887 (2004).
- Zambelli, B., Bellucci, M., Danielli, A., Scarlato, V., Ciurli, S. The Ni2+ binding properties of Helicobacter pylori NikR. Chem. Commun. , 3649-3651 (2007).
- Zambelli, B., et al. High-affinity Ni2+ binding selectively promotes binding of Helicobacter pylori NikR to its target urease promoter. J. Mol. Biol. 383, 1129-1143 (2008).
- Duff, M. R., Grubbs, J., Howell, E. E. Isothermal titration calorimetry for measuring macromolecule-ligand affinity. J. Vis. Exp. , (2011).
- Ghai, R., Falconer, R. J., Collins, B. M. Applications of isothermal titration calorimetry in pure and applied research--survey of the literature from 2010. J. Mol. Recognit. 25, 32-52 (2012).
- Todd, M. J., Gomez, J. Enzyme kinetics determined using calorimetry: a general assay for enzyme activity. Anal. Biochem. 296, 179-187 (2001).
- Bianconi, M. L. Calorimetry of enzyme-catalyzed reactions. Biophys. Chem. 126, 59-64 (2007).
- Demarse, N. A., Killian, M. C., Hansen, L. D., Quinn, C. F. Determining enzyme kinetics via isothermal titration calorimetry. Methods Mol. Biol. 978, 21-30 (2013).
- Michaelis, L., Menten, M. Die kinetik der invertinwirkung. Biochem. Z. 49, 333-369 (1913).
- Walker, J. Principle and techniques of practical biochemistry. Wilson, K., Walker, J. , Cambridge University Press. 312-356 (2000).
- Ciurli, S. Nickel and its surprising impact in nature. Sigel, A., Sigel, H., Sigel, R. K. O. 2, John Wiley & Sons. 241-278 (2007).
- Zambelli, B., Musiani, F., Benini, S., Ciurli, S. Chemistry of Ni2+ in urease: sensing, trafficking, and catalysis. Acc. Chem. Res. 44, 520-530 (2011).
- Zonia, L. E., Stebbins, N. E., Polacco, J. C. Essential role of urease in germination of nitrogen-limited Arabidopsis thaliana seeds. Plant Physiol. 107, 1097-1103 (1995).
- Follmer, C. Insights into the role and structure of plant ureases. Phytochemistry. 69, 18-28 (2008).
- Sumner, J. B. The isolation and crystallization of the enzyme urease. J. Biol. Chem. 69, 435-441 (1926).
- Krajewska, B. Ureases I. Functional, catalytic and kinetic properties: A review. J. Mol. Cat. B. 59, 9-21 (2009).
- Callahan, B. P., Yuan, Y., Wolfenden, R. The burden borne by urease. J. Am. Chem. Soc. 127, 10828-10829 (2005).
- Krajewska, B., van Eldik, R., Brindell, M. Temperature- and pressure-dependent stopped-flow kinetic studies of jack bean urease. Implications for the catalytic mechanism. J. Biol. Inorg. Chem. 17, 1123-1134 (2012).
- Hausinger, R. P., Karplus, P. A. Handbook of Metalloproteins. Huber, R., Poulos, T., Wieghardt, K. , John Wiley & Sons. 867-879 (2001).
- Goldberg, R., Kishore, N., Lennen, R. Thermodynamic quantities for the ionization reactions of buffers. J. Phys. Chem. Ref. Data. 31, 231-370 (2002).
- Baumann, M. J., et al. Advantages of isothermal titration calorimetry for xylanase kinetics in comparison to chemical-reducing-end assays. Anal. Biochem. 410, 19-26 (2011).
- Noske, R., Cornelius, F., Clarke, R. J. Investigation of the enzymatic activity of the Na+,K+-ATPase via isothermal titration microcalorimetry. Biochim. Biophys. Acta. 1797, 1540-1545 (2010).
- Harmon, K. M., Niemann, C. The competitive inhibition of the urease-catalyzed hydrolysis of urea by phosphate. J. Biol. Chem. 177, 601-605 (1949).
- Benini, S., Rypniewski, W. R., Wilson, K. S., Ciurli, S., Mangani, S. Structure-based rationalization of urease inhibition by phosphate: novel insights into the enzyme mechanism. J. Biol. Inorg. Chem. 6, 778-790 (2001).
- Segel, I. H. Enzyme kinetics: behavior and analysis of rapid equilibrium and steady-state enzyme systems. , Wiley, NY. (1993).
访问受限。请登录或开始试用以查看此内容。
重印与许可
