本实验方案的目的是利用电子顺磁共振(EPR)监测的氧化还原滴定法,鉴定酿酒酵母(Saccharomyces cerevisiae)Nar1蛋白中的不同辅因子。氧化还原滴定法是一种非常可靠的方法,可用于获得酶和蛋白质中不同氧化还原活性辅因子的中点电位。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
通过电子顺磁共振(EPR)监测的氧化还原滴定是一种强大的方法,可用于测定蛋白质中辅因子的中点电位,并鉴定和定量其在可检测氧化还原状态下的辅因子。
该技术与直接电化学(伏安法)方法互为补充,虽然无法提供电子传递速率的信息,但能够确定所研究蛋白质中辅因子的种类及其氧化还原状态。该技术广泛适用于任何含有可被电子顺磁共振(EPR)检测的辅因子的蛋白质。
典型的滴定需要2 ml蛋白溶液,辅因子浓度范围为1-100 µM。通过加入化学还原剂(连二亚硫酸钠)或氧化剂(铁氰化钾)对蛋白进行滴定,以使样品达到特定的电势。将一根铂丝和一根Ag/AgCl参比电极连接至伏特计,用于测量蛋白溶液的电势。使用一组13种不同的氧化还原媒介体,使蛋白中的氧化还原辅因子与电极之间达到平衡。在不同电势下取样,并测定电子顺磁共振谱,该谱图特征性地反映蛋白中不同氧化还原辅因子的状态。通过Nernst方程分析信号强度随样品电势变化的曲线,以确定辅因子的中点电势。
引言
令人瞩目的是,维持地球生命最基本的化学过程——光合作用、固氮作用和呼吸作用——均由含有多种有机和无机氧化还原辅因子的大型蛋白质复合物催化。据估计,所有蛋白质中约有30%含有一种或多种金属辅因子1,2。可通过直接电化学方法(例如,蛋白质膜伏安法)或氧化还原滴定法来鉴定和表征这些氧化还原辅因子。这两种技术在性质和适用性上互为补充。伏安法能够快速测定可与电极表面发生反应的辅因子的中点电位和电子传递动力学3,4。该方法通常适用于细胞色素c或铁氧还蛋白等电子传递蛋白,有时也适用于固定在电极表面的较复杂蛋白质。然而,必须事先充分了解蛋白质中辅因子的性质,因为伏安图谱本身无法提供辅因子身份的直接信息。氧化还原滴定法操作较为繁琐,且需要毫克量级的蛋白质。但该方法不仅能提供辅因子的中点电位信息,还能确定其身份5。此外,在一次滴定实验中可同时监测蛋白质中的多个辅因子。
氧化还原滴定的原理是使具有氧化还原活性的蛋白质或酶发生化学还原或氧化。为了确保辅因子能够与还原剂或氧化剂反应,需使用氧化还原介体。这些氧化还原介体还能与电极发生反应,从而可以测量溶液的电势。介体起到氧化还原缓冲剂的作用,在蛋白质中的辅因子与电极之间建立平衡。当将溶液的电势化学调节至目标值后,取出样品并迅速在液氮中冷冻,以待后续采用光谱技术进行分析。电子顺磁共振(EPR)光谱在此方面尤为有用,因为它可用于定量测定顺磁性金属中心或有机自由基。
氧化还原滴定可以沿两个方向进行:从低到高或从高到低的中点电位。选择取决于所研究辅因子的稳定性。通常建议从低电位开始,逐步加入氧化剂以提高电位。这称为氧化滴定,本文将对此进行描述。本文展示了对酿酒酵母(Saccharomyces cerevisiae)中含铁硫簇蛋白 Nar1 的氧化还原滴定。该蛋白可能作为支架蛋白,参与细胞质铁硫簇生物合成机制(CIA 通路)6,7。
访问受限。请登录或开始试用以查看此内容。
方案
1. 实验装置与溶液的准备
- 配制含有100 mM Tris、250 mM NaCl和10%甘油、pH为8.5的缓冲液。用氩气吹扫缓冲液以去除其中的溶解氧。将缓冲液引入厌氧室中。
- 将缓冲液分为两部分。向其中一部分(缓冲液 A)加入 1 mM DL-二硫苏糖醇(DTT, Mr 154.25 g/mol)和 1 mM L-半胱氨酸。另一部分(缓冲液 B)不含还原剂。
- 制备氧化剂和还原剂溶液。分别配制1 ml的2、20和200 mM铁氰化钾(FIC,Mr 329.26 g/mol)和连二亚硫酸钠(SD,Mr 174.11 g/mol) 溶于厌氧缓冲液B中。
- 按如下步骤制备介体混合液:
- 添加 160 µM 以下每种氧化还原介质和 50 mM NaCl 加入缓冲液 B: N,N,N’,N’四甲基对苯二胺(TMPD, Mr 237.17 g/mol,E’0 +0.276 V),2,6-二氯酚靛酚(DCIP,Mr 290.08 g/mol,E’0 +0.217 V),吩嗪乙硫酸盐(PES,Mr 334.4 g/mol,E’0 +0.055 V),亚甲蓝(Methylene blue (Mr 319.85 g/mol,E’0 +0.011 V),刀豆素(Mr 235.17 g/mol,E’0 -0.051 V),靛蓝二磺酸盐(Mr 466.35 g/mol,E’0 -0.125 V),2-羟基-1,4-萘醌(Mr 174.15 g/mol,E’0 -0.145 V),蒽醌-2-磺酸盐(Mr 328.28 g/mol,E’0 -0.225 V),苯并沙芬宁(Mr 322.8 g/mol,E’0 -0.252 V),番红O(Mr 350.84 g/mol,E’0 -0.280 V),中性红(Mr 288.8 g/mol,E’0 -0.340 V),联苯基二吡啶(Mr 409.4 g/mol,E’0 -0.350 V)和甲基紫精(Mr 257.16 g/mol,E’0 -0.440 V
- 用铝箔包裹瓶子,以保护介体免受光照。
- 制备 10 mg/ml S. cerevisiae Strep-标签标记的 Nar1 蛋白(181 µM,Mr 55.2 kDa)置于缓冲液A中。表达 S. cerevisiae Nar1 在 E. coli 使用pET24A表达载体以Strep标签蛋白的形式表达目标蛋白。在厌氧环境中,采用Strep-Tactin亲和层析介质(IBA)进行蛋白纯化,并使用蛋白纯化系统(如Akta Purifier,GE Healthcare)完成纯化流程。
- 在厌氧环境中准备氧化还原滴定装置,步骤如下:
- 将 Ag/AgCl 参比电极和铂丝电极连接至滴定容器。将两个电极均连接至可测量毫伏(mV)至伏特(V)范围的伏特计。
- 插入一个小型搅拌子。
- 将滴定容器置于磁力搅拌器上方。
- 向滴定容器中加入缓冲液B、介体混合溶液和蛋白质溶液,总体积加至2 ml。 即 最终浓度为 72 µM 蛋白和 38 µM 每种介导物的量。注意:根据蛋白质浓度和所需的介导物浓度,应调整三种溶液的用量。
- 搅拌30分钟,然后打开电压表。
- 准备10根洁净的石英玻璃EPR管,将其放入厌氧室中。
- 填充一个小的(大约 200 ml)液氮杜瓦瓶装液氮。
2. 进行氧化还原滴定
- 等待溶液电位稳定。注:实际操作中,这意味着电位每分钟漂移小于1 mV。
- 记录电压表显示的电位值。
- 抽取第一个样本 200 µl 并注入EPR管中。
- 用橡胶塞盖紧试管,然后将试管从厌氧室中取出。
- 将试管置于液氮中冷冻,操作如下:注意!必须缓慢进行,否则试管会破裂。
- 首先将管子的尖端插入液氮中。
- 等待至能听到嘶嘶声。注意:此过程可能需要长达10秒。
- 缓慢插入剩余的管体,使样品部分完全浸没。
- 加入少量等分试样 1-2 µl 向滴定容器中的溶液加入 2 mM SD 溶液,以将溶液电位降至 -0.6 V。
注意:如果超过 10 µl 必须添加时,换用20 mM溶液。由于很难精确调节至某一特定电位值,因此将伏特计上记录的实际数值记下,并用于绘制滴定曲线。 - 按照步骤2.3-2.5所述方法采集样品。
- 记录电压表显示的实际电压值。
- 加入氧化剂直至电位升高 大约 50 mV。首先加入少量等分试样 1-2 µl 2 mM FIC 溶液。如果超过 10 µl 需添加时,换用20 mM溶液。
- 记录所添加溶液的体积。注意:此步骤对于校正滴定过程中样品的稀释是必要的。
- 按照步骤 2.3–2.5 所述方法采集样品。
- 记录电压表显示的实际电位。
- 重复步骤 2.9 和 2.12,直至覆盖 -0.6 V 到 +0.2 V 的电位范围,并使每支 EPR 管均装满 200 µl.
注意:随着每次取样后溶液体积减少,可能需要调整电极位置,以确保电极与溶液保持良好接触,同时不受搅拌干扰。在最后一次取样后,可能难以准确测量电位,因此该样品的电位测量值可能准确性较低。 - 可选地,将冷冻的EPR样品保存在液氮中,直至进行EPR测量。
3. 使用电子顺磁共振波谱法测量滴定样品并进行数据分析
- 以如下方式记录不同滴定样品的电子顺磁共振(EPR)谱图:
- 使用高真空泵将石英恒温器抽真空至 <10-5 巴
- 打开EPR磁体的水冷系统。开启干燥空气通过EPR腔体的气流。
- 打开电子顺磁共振仪(EPR)的磁体和计算机电源。
- 运行频率校准程序。设置电子顺磁共振(EPR)测量参数。将低温恒温器连接至液氦杜瓦瓶。将谐振腔冷却至9–16 K。
- 将EPR样品放入谐振腔中。记录EPR谱图。
- 鉴定不同的EPR物种,并选用最佳谱图对信号进行定量。通过谱图的双重积分并与10 mM CuSO₄外部铜标准溶液的谱图比较,实现EPR定量分析。4/10 mM HCl/2 M NaClO4.8
- 按下述方法绘制滴定曲线:
- 将感兴趣顺磁性物种特征g值处的EPR信号强度随电势作图。
- 通过使用步骤3.2中的EPR定量结果,将EPR信号幅度标度转换为自旋数/分子标度。
- 根据所加入的氧化剂或还原剂造成的稀释倍数,校正各样品信号强度的幅度。
- 校正 Ag/AgCl 参比电极的中点电位。
注意:Ag/AgCl参比电极(含饱和KCl)相对于标准氢电极(SHE)的中点电位为+0.194 V 25 °C因此,如果电压表上的读数为 大约 -0.6 V,相对于标准氢电极(SHE)的电位为 -0.4 V。
- 将信号拟合到能斯特方程,如下所示:
对于在还原态下呈顺磁性的物种:
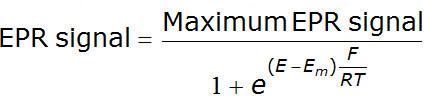
对于在氧化态下具有顺磁性的物种:
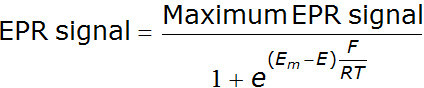
对于在中间态下呈顺磁性的物种:
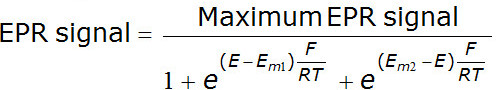
这些方程适用于转移一个电子的氧化还原反应,因此 n = 1。
E = 伏特(V)为单位的电势
Em = 伏特为单位的中点电位
F = 法拉第常数 = 96,480 C·mol-1
R = 气体常数 = 8.314 J·K-1·mol-1
T 开尔文温度
访问受限。请登录或开始试用以查看此内容。
结果
对来自Saccharomyces cerevisiae的含铁硫簇蛋白Nar1进行的氧化还原滴定实验鉴定出三种不同的辅因子:Nar1含有一个[3Fe-4S]簇、一个[4Fe-4S]簇和一个单核铁中心(图1)。这些EPR信号以其g值为特征:[3Fe-4S]+的gz为2.01,gcrossover为2.00(图1B);[4Fe-4S]+的gz为2.02,gy为1.93,gx为1.82(图1C);单核Fe3+的g值为4.3和9.7(图1A)。[4Fe-4S]+簇的EPR信号与先前报道的Nar1结果非常相似6,9。单核铁的EPR信号是典型的菱形高自旋三价铁物种特征(图1A)。
EPR信号的定...
访问受限。请登录或开始试用以查看此内容。
讨论
一系列13种氧化还原介体可在溶液中实现相对于标准氢电极(SHE)从-0.45至+0.3 V范围内的氧化还原平衡(表1 和 图3。远高于或低于这些电位时,所有介体均被完全还原或完全氧化,因而无法再与蛋白质的氧化还原活性中心发生进一步的平衡反应。这一点非常重要,因为在文献中有时仅使用两到三种介体进行氧化还原滴定,导致只能测量较窄的电位范围。 11此类氧化还原滴定只有在氧化还原辅因子的中点电位处于某一范围内时才能得到可靠结果 约 介体中点电位的±50 mV范围内。已测定不同介体中点电位的温度依赖性,并证明氧化还原滴定可在高达80 °C的温度下进行。12 通过添加一层Nujol矿物油可防止滴定溶液蒸发,该矿物油与大多数含蛋白质溶液相容。
溶液和滴定容器的厌氧性非常重要。滴定最好在厌氧手套箱中进行。然而,也可以使用连接至氩气供应的密封滴定容器。EPR 管可通过小段橡胶管连接至氩气/真空多通管路。使用带有 13 cm 长针头的气密注射器,可通过橡胶管将滴定样品注入管...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了荷兰国家研究学校组合催化项目“化学设计控制的催化”(NRSC-Catalysis)研究基金的资助。感谢莱顿大学的 H.Y. Steensma 博士和 G.P.H. van Heusden 博士在S. cerevisiae Nar1 重组表达方面提供的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 参比电极(Ag/AgCl) | Radiometer | ||
| 化学品 | Sigma-Aldrich | ||
| EPR 波谱仪 | Bruker | ||
| N,N,N’,N’-四甲基对苯二胺(TMPD)·(HCl)2 | 637-01-4 | ||
| 2,6-二氯酚靛酚(DCIP)钠盐 | 620-45-1 | ||
| 吩嗪硫酸乙酯(PES) | 10510-77-7 | ||
| 亚甲蓝 | 122965-43-9 | ||
| 试卤灵钠盐 | 34994-50-8 | ||
| 靛红二磺酸钠(靛蓝胭脂红) | 860-22-0 | ||
| 2-羟基-1,4-萘醌 | 83-72-7 | ||
| 蒽醌-2-磺酸钠+ H2O | 153277-35-1 | ||
| 苯基藏红花素 | 81-93-6 | ||
| 藏红花素 O | 477-73-6 | ||
| 中性红 | 553-24-2 | ||
| 苄基紫精 | 1102-19-8 | ||
| 甲基紫精 | 1910-42-5 |
参考文献
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
