分离心脏瓣膜内皮细胞(VECs)的能力对于理解瓣膜发育、维持及疾病机制至关重要。本文描述了利用FACS技术从胚胎期和成年 Tie2-GFP 小鼠中分离VECs的方法,该方法可用于研究VECs在发育和疾病过程中的作用。
本文内容
摘要
摘要
正常的瓣膜结构由多层特化的细胞外基质(ECM)构成,其中散布着瓣膜间质细胞(VICs),并被单层瓣膜内皮细胞(VECs)所包绕。VECs在胚胎发育过程中对瓣膜结构的形成起着至关重要的作用,并且对于维持终生瓣膜的完整性和功能也极为重要。与健康瓣膜瓣叶表面连续的内皮层不同,功能异常的瓣膜常出现VECs的破坏,且这种破坏与促进瓣膜疾病和功能障碍的病理过程密切相关。尽管其具有重要的临床意义,但目前针对VECs在发育和疾病过程中作用的专门研究仍十分有限。从动物模型中分离出VECs将有助于开展细胞特异性的实验研究。虽然已有从大型动物成年模型中分离VECs的报道,但由于其数量稀少、细胞脆弱以及缺乏特异性标记物,目前尚无从胚胎或小型动物成年模型中成功分离VECs的报道。本文中,我们描述了一种新颖的方法,可直接从小鼠胚胎期和成年期的瓣膜组织中分离VECs。利用标记所有内皮细胞表达绿色荧光蛋白(GFP)的Tie2-GFP报告基因模型,我们通过荧光激活细胞分选技术(FACS)成功地从半月瓣和房室瓣区域分离出GFP阳性(及阴性)细胞。分离得到的GFP阳性VECs富集了包括CD31和血管性血友病因子(vWF)在内的内皮细胞标志物,并在体外培养时仍保持内皮细胞的表达特征;而GFP阴性细胞则表现出与VIC表型一致的分子表达谱和细胞形态。该方法实现了对小鼠胚胎期和成年期VECs的分离,使得此前无法实现的针对特定瓣膜细胞群体的分子与功能研究成为可能,将极大促进我们对瓣膜发育及疾病机制的理解。
引言
成熟的瓣膜由三层分层的特殊细胞外基质(ECM)构成,其中散布着瓣膜间质细胞(VICs),并被单层心脏瓣膜内皮细胞(VECs)包裹1。ECM 的作用是提供所有必要的生物力学特性,以承受心动周期中血流动力学力的持续变化。在成体瓣膜中,ECM 的更新受到 VICs 的严格调控,这些细胞在无疾病状态下通常处于静息状态,形态上类似于成纤维细胞。除了 VIC 群体外,心脏瓣膜内皮细胞(VECs)还在瓣叶表面形成连续的内皮层2。尽管我们及其他研究者已阐明了 ECM 和 VICs 在瓣膜结构与功能中的重要性,但 VECs 的作用仍知之甚少。然而,这一相对较小的细胞群体在胚胎期瓣膜形成过程中至关重要,并且在瓣膜疾病中被描述为功能失调。
胚胎中心脏瓣膜的形成始于房室管和流出道区域的部分内皮细胞经历内皮-间充质转化(EMT),并形成称为心内膜垫的隆起结构1,3。这些结构中新转化的间充质细胞随后分化为瓣膜间质细胞(VICs),并形成成熟的瓣膜。EMT完成后,围绕心内膜垫的内皮细胞(称为VEC)形成连续的内皮细胞层,保护成熟瓣膜免受损伤。此外,VEC能够感知血流动力学环境,并已被证明可通过分子机制与下方的VIC进行通讯,以调节细胞外基质(ECM)的稳态1,3。在病变瓣膜中,VEC单层结构被破坏,同时伴随细胞外基质组织异常及生物力学改变4,5。此外,小鼠模型的研究表明,VEC功能障碍是瓣膜疾病的根本原因1,6-9。由于VEC在瓣膜发育、维持及疾病过程中发挥重要作用,全面定义其时间依赖性表型对于推动该领域发展并深入理解疾病机制至关重要。
此前多个实验室已成功从猪和羊模型中分离出心瓣膜内皮细胞(VECs)10-12。由于这些瓣膜体积较大,通过拭子取样和/或酶消化法进行分离,再结合多种不同的分离技术(包括磁珠细胞分选和单细胞克隆扩增),已能有效获得纯化的细胞群体11-13。然而,由于猪和羊基因组注释尚不完整,限制了分子工具的可及性,加之饲养成本较高,这些模型的应用受到一定限制。因此,分离后的猪和羊VECs实验操作也较为受限。小鼠模型因在胚胎和成体中均具备丰富的遗传操作可能性和分子工具而更受青睐,但迄今为止,尚未有在小型动物模型中心瓣膜内皮细胞分离的报道。这可能是因为处理包含少数细胞群体的小组织样本存在技术困难,且目前尚无特异性标记物可明确识别VECs,从而阻碍了基于抗体的分离方法的应用。
本文报道了一种直接分离胚胎期和成年期小鼠心内膜内皮细胞(VECs)的新方法。该方案利用了在所有内皮细胞类型中表达绿色荧光蛋白(GFP)的 Tie2-GFP 转基因小鼠,这类小鼠已被广泛用于内皮细胞群体的研究14。然而,本研究的创新之处在于,首次利用这些小鼠从心脏瓣膜组织中分离内皮细胞。通过精细解剖瓣膜组织,经过连续九轮酶消化处理,再结合荧光激活细胞分选(FACS)技术,可直接获得高纯度的 VECs,并可用于多种实验技术,包括 RNA 提取和细胞培养。
方案
1. 仪器与溶液的准备
- 将解剖工具(用于提取成年心脏的精细组织剪刀和用于解剖瓣膜区域的两把精细镊子)放入带盖器械托盘中,经高压灭菌后进行灭菌处理。在解剖前用70%乙醇(EtOH)喷洒工具。
- 在实验开始前立即配制所有溶液,并通过无菌的0.2 μm滤器过滤以灭菌。溶液使用前需置于冰上保存。
- 无菌解离缓冲液(每份样品共15 ml)。混合1.2 ml IV型胶原酶、300 μl 2.5%胰蛋白酶和150 μl鸡血清,用Hank’s平衡盐溶液(HBSS)定容至15 ml。
- 无菌分选缓冲液(共12 ml)。加入25 μl 0.5 M乙二胺四乙酸(EDTA)和12 μl DNase I(无RNase)。用HBSS定容至12 ml。
- VEC培养基。按照制造商说明(参见材料清单表格),将试剂盒中的分装组分加入500 ml EBM2培养基中配制内皮细胞生长培养基。
- GFP阴性培养基(非内皮细胞培养基)。将445 ml 1× Medium 199、5 ml青霉素/链霉素(pen/strep)(终浓度1%)和50 ml胎牛血清(FBS)(终浓度10%)混合均匀。
2. 成年小鼠和E14.5胚胎瓣膜区域的解剖
- 所有动物实验程序均经 Nationwide Children’s Hospital Research Institute 动物护理与使用委员会(IACUC)批准,并严格遵循其指南执行。
- Tie2-GFP 小鼠购自 Jackson Laboratories(货号 003658)14,在 FVB/N 背景下维持为纯合基因型,以确保所有后代在 Tie2 阳性的内皮细胞中表达 GFP。
- 进行 FACS 分选时,准备一份年龄匹配且不含 GFP 的阴性对照样本(如 C57/Bl6),用于设定 FACS 分选的 GFP 门控参数。注意:本方案及代表性结果基于使用三只四月龄成年小鼠,或一窝胚胎期(E)14.5 天的小鼠。
- 成年小鼠:通过CO2窒息法处死后,立即使用解剖剪轻轻打开胸腔,暴露心脏和肺。暴露后,用镊子夹住大动脉处的心脏并轻轻拉离身体。若肺组织完整,应予以去除,并将心脏置于冷的HBSS溶液中冲洗。去除心室,分离并移除心房,保留房室管“环”结构和主动脉区域完整。沿房室管一侧做一切口,打开“环”结构,暴露瓣膜组织。用镊子轻轻剥离心肌和近端主动脉区域。瓣膜小叶表现为粉红色心肌上方的白色致密组织,需予以识别。轻轻分离房室瓣上的腱索,并尽可能去除残留的心肌组织。操作过程中需注意避免牵拉或刮擦瓣膜小叶,以防内皮细胞脱落。将修整后的瓣膜组织放入含有1 ml HBSS的1.5 ml离心管中,置于冰上保存。注意:精细解剖至关重要,以消除可能污染样本的非瓣膜内皮细胞。
- 胚胎:在观察到交配栓后第14.0天处死雌性小鼠(发现交配栓的早晨记为0.5天)。
- 处死后立即取出子宫(含胚胎),并在冷的HBSS中清洗。从子宫中分离出单个胚胎,去除每个胚胎周围的卵黄囊。取出每个胚胎的心脏,并按步骤2.1操作。(注意:用镊子在胚胎上肢下方轻轻挤压,有助于暴露心脏,便于取出。)
3. 细胞解离及流式细胞术准备
- 使用无菌移液器吸头,从含有瓣膜区域的离心管中移除HBSS。
- 加入1 ml解离缓冲液和4 μl DNase I。
- 在37 °C下旋转孵育管子7分钟。
- 上下吹打3次,然后静置样本15秒。将上清液(含有解离的细胞)收集至15 ml锥形管中。
- 为终止胶原酶反应,向收集管中加入125 μl马血清。将收集管置于冰上保存。
- 重复解离步骤(3.2 - 3.5)九次,以收集九份上清液组分。
- 将分步收集的细胞悬液通过70 μm尼龙滤膜转移至新的收集管中,以去除碎片和细胞团块,确保获得单细胞悬液。
- 在400 g下离心5分钟,使细胞沉淀。
- 用1 ml分选缓冲液重悬细胞沉淀,并置于冰上保存,直至进行流式细胞分选(FACS)。
4. FACS 分选 GFP 阳性的 VECs
- 设置前向散射和侧向散射门以排除碎片并捕获单个细胞;通过双细胞歧视门排除双细胞。记录阴性对照样本,并确定门控设置,以便比较并准确定义Tie2-GFP样本中GFP阳性细胞群体。
- 通过FACS分析GFP阳性细胞,并优化门控设置。
- 分选Tie2-GFP样本,同时收集GFP阳性与GFP阴性细胞。若细胞将用于RNA提取,请直接分选至分选缓冲液中。若需在FACS后培养细胞,则将GFP阳性细胞收集至含有1 ml VEC培养基和1 ml FBS的无菌管中,GFP阴性细胞收集至含1 ml非内皮细胞培养基和1 ml FBS的无菌管中。使用该50%培养基/50%血清组合以提高细胞存活率。分选后立即将细胞置于冰上,直至进行后续分析。
5. FACS 分选后分析
- RNA提取:
- 分选结束后立即对GFP阳性和阴性细胞在1,500 x g离心8分钟。
- 用移液器小心吸取上清液(分选缓冲液)并弃去。
- 将细胞沉淀(按照此处推荐的样本量,沉淀不可见)重悬于200 μl Trizol中。
- 在 -80 °C 冻存,或按照本实验室先前所述方法,采用标准苯酚-氯仿抽提法提取总 mRNA15.
- 使用50-200 ng RNA,按照说明书中的操作步骤,利用Mastermix进行cDNA合成。
- 将cDNA进行定量PCR扩增,使用IDT Primetime qPCR探针检测小鼠内皮细胞标志物(CD31, 血管性血友病因子 (vWF),瓣膜间质细胞标志物(α-平滑肌肌动蛋白 (α-SMA), Periostin (Postn),心肌细胞标志物(Mhc6, Mhc7)和 GAPDH.
- 培养小鼠血管内皮细胞:
- 在FACS分选和细胞收集后(步骤4.3),以300 × g离心5分钟。
- 小心吸取上清液(分选缓冲液 + 培养基)并弃去。
- 将GFP阳性细胞沉淀重悬于1 ml VEC培养基中,GFP阴性沉淀重悬于1 ml非内皮培养基中。
- 将每个样本接种于塑料培养板的一个孔中,培养至融合。GFP阴性细胞约需培养1周达到融合,GFP阳性细胞则需超过2周达到融合(样本来自3只成年小鼠)。每两天更换一次培养基。
- 免疫荧光染色:
- 从细胞中移除培养基,加入4%多聚甲醛(PFA)于室温下固定30分钟。用磷酸盐缓冲液(PBS)洗涤固定后的细胞,每次5分钟,共洗涤三次。
- 从载玻片上移除腔室,于室温下用5%牛血清白蛋白/1x PBS封闭1小时。
- 4 °C 条件下用一抗(CD31,1:1,000 或 α-平滑肌肌动蛋白(α-SMA),1:100)孵育切片过夜。在 PBS 中洗涤 3 次,每次 5 分钟。
- 将二抗(Alexa-Fluor 568 标记的山羊抗大鼠抗体)用 PBS 按 1:400 稀释,加入载玻片,室温孵育 1 小时。用 PBS 漂洗载玻片 3 次,每次 5 分钟。
- 使用含 DAPI 的 Vectashield 封片,于 4°C 孵育 1 小时后再进行观察。
结果
Tie2-GFP 细胞在胚胎和成体心脏瓣膜中与内皮细胞标志物共定位于同一位置。
为了验证Tie2-GFP在胚胎期和成年小鼠血管内皮细胞(VECs)中的特异性表达,我们采用本实验室先前发表的方法16,对E14.5胚胎和3月龄成年Tie2-GFP小鼠的组织切片进行免疫荧光染色,检测GFP与内皮细胞标志物CD31的共定位情况。如图1所示,在成年(图1 B,D,F)和胚胎期(图1 A,C,E)阶段,VECs均共同表达GFP(图1 A,B,E,F)和CD31(图1 C,D,E,F),从而验证了本模型适用于后续的VECs分离实验。
FACS 分析鉴定出从 Tie2-GFP 小鼠分离的胚胎和成体心脏瓣膜中存在明显的 GFP 阳性和 GFP 阴性细胞群体。
采用野生型 C57/Bl6 小鼠设定 GFP 参数,通过 FACS 分析,在胚胎和成年样本中,Tie2-GFP 小鼠的单门控细胞中约有 2% 显示出 GFP 阳性细胞的显著富集(图 2)。根据 图 1 所示的共定位研究,这些细胞被认定为血管内皮细胞(VECs),在成年样本(n = 3)中平均获得 61,800 个总细胞(每样本范围为 39,000–77,000 个细胞),从一窝 E14.5 胚胎中可获得 8,928 个细胞(每窝 8,015–11,000 个细胞)。
PCR 分析证实,在从 Tie2-GFP 小鼠中分离的 GFP 阳性细胞中富集了内皮细胞标志物,而在 GFP 阴性细胞中富集了瓣膜间质细胞标志物。
通过FACS分选后对GFP阳性和阴性细胞群体进行qPCR基因表达分析,结果显示两者具有不同的分子特征。与从Tie2-GFP胚胎和成年个体中分离的GFP阴性细胞群体相比,GFP阳性细胞中内皮细胞标志物CD31和vWF的表达显著富集(图3)。此外,这些细胞群体中肌细胞标志物(Myh6、Myh7)的表达水平极低,表明非内皮细胞的污染极少。相反,从成年Tie2-GFP小鼠和E14.5胚胎中分离的GFP阴性细胞相对于GFP阳性细胞,其瓣膜间质细胞(VIC)标志物α-sma和Periostin(POSTN)的表达更为丰富。由于成年VIC处于静息状态,其活化标志物表达水平较低,因此从E14.5样本中分离的GFP阴性细胞中这些标志物的富集程度高于成年个体。
从 Tie2-GFP 成年小鼠中分离的 GFP 阳性细胞可进行培养 体外.
基于细胞形态和免疫组织化学染色,检测了从成年样本中分离的GFP阳性细胞和GFP阴性细胞的培养能力。根据我们先前描述的方案17,在图4中显示,GFP阳性细胞在培养两周后呈圆形形态(图4A),并共表达GFP和内皮细胞标志物CD31(图4C)。相比之下,非内皮细胞GFP呈阴性,呈现类似间充质细胞的形态(图4B),并在培养九天后表达心瓣膜间质细胞(VIC)标志物α-SMA(图4D)。

图1. Tie2-GFP阳性细胞在胚胎和成体心脏瓣膜中与CD31共定位。免疫荧光显示在E14.5 (A, C, E) 和成体 (B, D, F) 阶段二尖瓣隔叶中,(Tie2-)GFP表达 (A, B) 与内皮细胞标志物CD31 (C, D) 的关联。A、C、E图中高亮显示瓣膜区域。(E, F) 为合并图像。请点击此处查看此图的放大版本。

图2. 可通过FACS鉴定Tie2-GFP阳性的VEC细胞。 与同龄的C57/Bl6对照组(A, C)相比,从Tie2-GFP胚胎(B)和成年小鼠(D)中分离的瓣膜含有明显的GFP阳性细胞群,如绿色所示。GFP阴性事件以红色显示,作为对照收集。(B)和(D)中的数值表示通过FACS分选的总事件中GFP阳性细胞的平均百分比(n = 3)。请点击此处查看该图的放大版本。

图 3. GFP 阳性细胞富集内皮细胞标志物,而 GFP 阴性细胞表达与瓣膜间质细胞相关的基因。 对 E14.5 (A) 和成年 (B) Tie2-GFP 小鼠瓣膜区域分离的 GFP 阳性细胞中内皮细胞标志物(CD31、血管性血友病因子 (vWF))以及成年(Myh6)和胎儿(Myh7)心肌细胞标志物的代表性 qPCR 检测结果。注意内皮细胞标志物的富集以及心肌细胞相关基因的表达水平极低。(C, D) 在 E14.5 (C) 和成年 (D) Tie2-GFP 小鼠中分离的 GFP 阴性细胞中,瓣膜间质细胞标志物 α-sma 和 Postn 的表达倍数变化。请点击此处查看该图的放大版本。
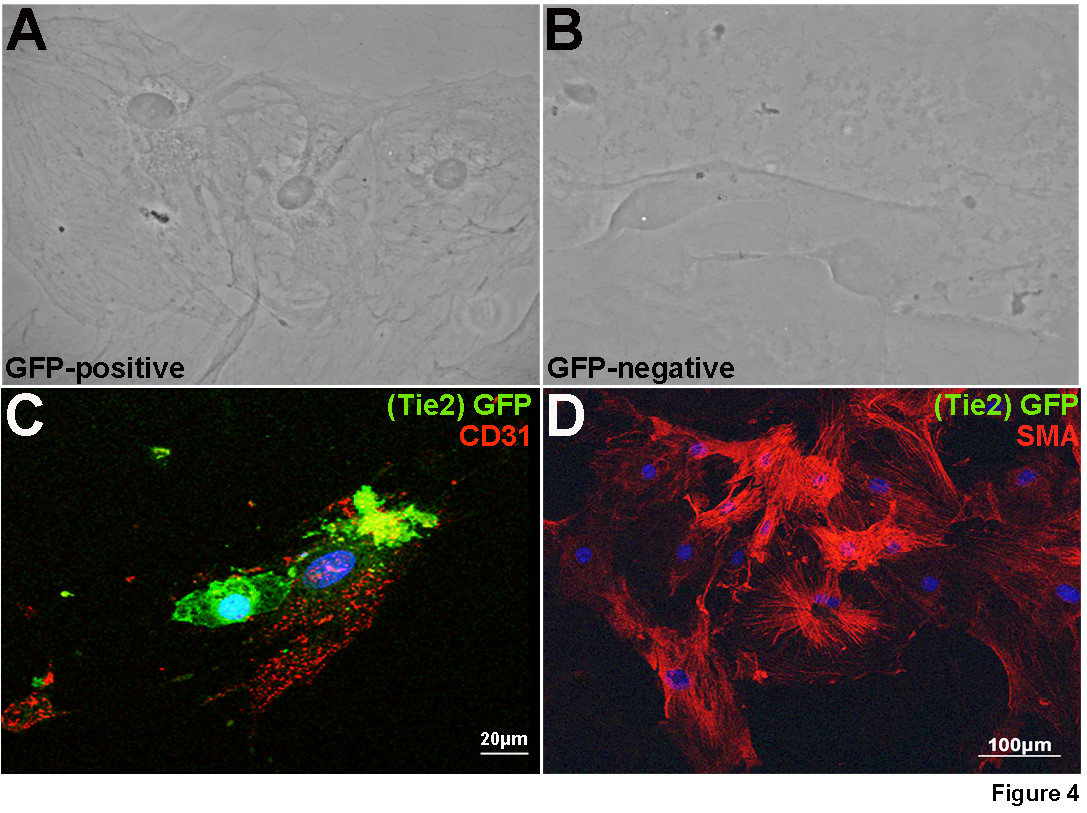
图4. Tie2-GFP阳性细胞维持内皮细胞标志物的表达 体外. 分选后,GFP阳性 (A,C) 阴性 (B,D) 成年小鼠的细胞群体培养至汇合后进行相差显微成像 (A,B) 荧光免疫染色 (C,D)GFP阳性细胞表达CD31(红色) (C) 培养10天后。相比之下,在α-SMA(活化VIC的标志物)染色呈阳性的阴性细胞群体中未检测到GFP表达。 (D).
讨论
本文首次描述了一种从Tie2-GFP小鼠中分离胚胎期和成年期小鼠心瓣膜内皮细胞(VECs)的创新方法。尽管该小鼠品系已被广泛用于内皮细胞群体的分离,但本研究是首次报道对VECs进行选择性分离。由于VECs群体极为脆弱,我们建立了一套严格的实验方案,能够从胚胎期和成年小鼠的心瓣膜中获得单细胞悬液,并分离出GFP阳性(以及GFP阴性)细胞。与早期利用Tie2-GFP小鼠的整个胚胎或器官进行研究的原始文献相比14,我们针对此类稀少且脆弱的内皮细胞群体,优化了胶原酶消化和组织解剖步骤,从而实现了特定细胞群体的有效分离。
此前,血管内皮细胞(VEC)的分离仅在大型动物模型中报道过,而这些模型的遗传学和生物分子工具较为有限。相比之下,小鼠的相关工具已非常成熟,因此能够分离小鼠来源的VEC使得心脏瓣膜研究可采用更广泛的实验设计。该方法的一个显著优势在于,可以从野生型小鼠以及瓣膜疾病和损伤模型小鼠中进行时间特异性的VEC分离。第二个优势是,VEC在解剖后几乎可立即被分离和分析,从而更准确地保留反映体内(in vivo)真实状态的表达模式。此外,该分离方案所获得的细胞数量足以避免细胞培养扩增步骤,因而防止了体外(in vitro)环境可能诱导的表型改变。
尽管本方案具有新颖性和实验优势,但我们认识到仍存在一些局限性。首先,小鼠瓣膜中VEC群体的数量非常少,因此需要多个定时交配的胚胎窝才能获得足够的RNA用于基因表达分析。虽然可以通过使用多对繁殖鼠来克服这一问题,但这可能会影响某些分离后分析工具的应用。这一局限性尤其给建立融合的GFP阳性VEC培养体系带来了挑战,而该体系对于更全面地分析VEC表型(包括分子特征和功能检测)是必需的。因此,我们承认当前方法尚未解决所有困难,但这一领域正是我们努力攻克的方向。
从瓣膜区域分离瓣膜内皮细胞(VECs)的方法存在被心内膜中Tie-GFP阳性但非瓣膜来源的内皮细胞,或心室心肌内血管结构污染的可能性。迄今为止,尚未发现能够将VECs与其他心脏内皮细胞群体进行分子区分的特异性标志物。然而,已鉴定出Nfatc1基因的一个增强子区域,该区域可特异性地标记不发生上皮-间质转化(EMT)的VECs,且不会标记心脏中其他任何内皮细胞群体18。由于已有相应的Cre小鼠模型(Nfatc1enCre),未来的研究可利用该品系的特异性来最大限度降低污染风险。除了非瓣膜来源的Tie2-GFP-阳性细胞外,在瓣叶附着于室间隔及游离壁心肌环形区域的位置,还可能存在心肌细胞的污染。在未展示的数据中,我们最初尝试使用包被抗GFP和抗CD31抗体的磁珠从解剖所得的瓣膜区域分离VECs。尽管该方法能够成功分离内皮细胞,但我们观察到邻近的非内皮细胞类型导致明显的细胞聚集现象,从而使VICs和心肌细胞污染了实验样本。通过采用流式细胞分选(FACS)分析,设定仅收集单细胞悬液,并结合PCR检测心肌细胞特异性基因的表达,已有效避免了这一问题(图3)。尽管我们认为当前的污染程度可视为极低,但其仍是潜在的实验复杂性因素,未来可通过同时选择GFP与内皮细胞特异性表面标志物进行双重筛选加以规避。
通过使用本方案,我们已成功从胚胎和成年小鼠中分离出心内膜细胞(VECs),并举例说明了该方法在GFP阳性与GFP阴性细胞群体中用于RNA提取和细胞培养的具体应用。然而,该方法的应用不仅限于此,还可广泛用于多种分子、细胞及功能研究手段。此外,可将 Tie2-GFP 小鼠品系与多种遗传型小鼠模型进行杂交,从而实现健康状态与疾病状态下VECs群体的比较研究。本项新方法的建立将首次实现对VECs在瓣膜发育与维持过程中作用的集中研究,并可能揭示以往未被重视的内皮依赖性瓣膜疾病的潜在机制。
披露
作者无任何利益冲突披露。
致谢
感谢俄亥俄州立大学综合癌症中心分析流式细胞术核心设施,特别是Katrina Moore,在FACs分析方面的技术支持。此外,我们感谢William Pu博士及其研究团队提供的科学见解。本研究由美国国立卫生研究院(NIH)HL091878(JL)以及Nationwide儿童医院心脏中心资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Alexa Fluor 568 山羊抗大鼠 IgG (H+L) | Life Technologies | A-11077 | |
| 70 μm 尼龙细胞滤网 | BD Falcon | 352350 | |
| 2.5% 胰蛋白酶 | Invitrogen LT | 15090-046 | |
| 牛血清白蛋白 (BSA),第 V 组分,热激处理 | Fisher Scientific | BP1600-100 | |
| CD31 大鼠抗小鼠抗体 | BD Pharmingen | 553370 | |
| 鸡血清 | Invitrogen LT | 16110-082 | |
| 胶原酶 IV | Invitrogen LT | 17104-019 | 根据制造商说明配制 |
| DNase I,无 RNase (10,000 单位) | Roche | 4716728001 | |
| EBM-2 | Lonza | CC3156 | 用于 VEC 培养基 |
| EDTA,0.5 M 溶液 | Hoefer | 03-500-506 | |
| EGM2 SingleQuot,Bulletkit | Lonza | CC-4176 | 用于 VEC 培养基 |
| 胎牛血清 (FBS),热灭活 | Hyclone | SH3007103IH | |
| Hanks 平衡盐溶液 (HBSS) | Life Technologies | 14025-092 | |
| 马血清 | Invitrogen LT | 16050-130 | |
| 杂交炉 | VWR | 230301V | |
| Medium 199 1X | Corning cellgro | 10-060-CV | |
| 16% 电镜级甲醛溶液 | Electron Microscopy Sciences | 15710 | |
| 青霉素/链霉素 (Pen/Strep) | MP-Biomed | ICN1670049 | |
| 带盖无菌 Permanox 腔室载玻片 | Thermo-Scientific | 177429 | |
| 磷酸盐缓冲液 (PBS),1X | Corning cellgro | 21-040-CV | |
| PrimeTime Mini qPCR 检测试剂盒 | Integrated DNA Technologies | Acta2 (αSMA), GAPDH, Myh6, Myh7, POSTN, CD31, vWF | |
| StepOnePlus 实时 PCR 系统 | Applied Biosystems | 4376600 | |
| SuperScript VILO Mastermix | Invitrogen LT | 11755050 | |
| [header] | |||
| Tie2-GFP 小鼠 | Jackson Laboratories | 3658 | |
| #5 11 cm 组织镊 | Dumont | 14096 | |
| Trizol | Ambion | 15596018 | |
| α-SMA 小鼠单克隆抗体 | Sigma-Aldrich | A2547 | |
| 含 DAPI 的 VECTASHIELD HardSet 封片剂 | Vector Laboratories | H-1500 |
参考文献
- Tao, G., Kotick, J. D., Lincoln, J. Heart valve development, maintenance, and disease: the role of endothelial cells. Current topics in developmental biology. 100, 203-232 (2012).
- Lincoln, J., Yutzey, K. E. Molecular and developmental mechanisms of congenital heart valve disease. Birth defects research. Part A, Clinical and molecular teratology. 91, 526-534 (2011).
- Tao, G., Levay, A. K., Gridley, T., Lincoln, J. Mmp15 is a direct target of Snai1 during endothelial to mesenchymal transformation and endocardial cushion development. Developmental biology. 359, 209-221 (2011).
- Weinberg, E. J., Mack, P. J., Schoen, F. J., Garcia-Cardena, G., Kaazempur Mofrad, M. R. Hemodynamic environments from opposing sides of human aortic valve leaflets evoke distinct endothelial phenotypes in vitro. Cardiovasc Eng. 10, 5-11 (2010).
- Hinton, R. B. Jr Extracellular matrix remodeling and organization in developing and diseased aortic valves. Circulation research. 98, 1431-1438 (2006).
- Gould, S. T., Srigunapalan, S., Simmons, C. A., Anseth, K. S. Hemodynamic and cellular response feedback in calcific aortic valve disease. Circulation research. 113, 186-197 (2013).
- Bosse, K., et al. Endothelial nitric oxide signaling regulates Notch1 in aortic valve disease. Journal of molecular and cellular cardiology. 60, 27-35 (2013).
- Laforest, B., Andelfinger, G., Nemer, M. Loss of Gata5 in mice leads to bicuspid aortic valve. The Journal of clinical investigation. 121, 2876-2887 (2011).
- Hofmann, J. J., et al. Endothelial deletion of murine Jag1 leads to valve calcification and congenital heart defects associated with Alagille syndrome. Development. 139, 4449-4460 (2012).
- Wylie-Sears, J., Aikawa, E., Levine, R. A., Yang, J. H., Bischoff, J. Mitral valve endothelial cells with osteogenic differentiation potential. Arteriosclerosis, thrombosis, and vascular biology. 31, 598-607 (2011).
- Gould, R. A., Butcher, J. T. Isolation of valvular endothelial cells. Journal of Visualized Experiments : JoVE. , (2010).
- Butcher, J. T., Penrod, A. M., Garcia, A. J., Nerem, R. M. Unique morphology and focal adhesion development of valvular endothelial cells in static and fluid flow environments. Arteriosclerosis, thrombosis, and vascular biology. 24, 1429-1434 (2004).
- Cheung, W. Y., Young, E. W., Simmons, C. A. Techniques for isolating and purifying porcine aortic valve endothelial cells. The Journal of heart valve disease. 17, 674-681 (2008).
- Motoike, T., et al. Universal GFP reporter for the study of vascular development. Genesis. 28, 75-81 (2000).
- Peacock, J. D., Lu, Y., Koch, M., Kadler, K. E., Lincoln, J. Temporal and spatial expression of collagens during murine atrioventricular heart valve development and maintenance. Developmental dynamics : an official publication of the American Association of Anatomists. 237, 3051-3058 (2008).
- Levay, A. K., et al. Scleraxis is required for cell lineage differentiation and extracellular matrix remodeling during murine heart valve formation in vivo. Circulation research. 103, 948-956 (2008).
- Lincoln, J., Alfieri, C. M., Yutzey, K. E. BMP and FGF regulatory pathways control cell lineage diversification of heart valve precursor cells. Developmental biology. 292, 292-302 (2006).
- Wu, B., et al. Nfatc1 coordinates valve endocardial cell lineage development required for heart valve formation. Circulation research. 109, 183-192 (2011).
重印与许可
