本文介绍了一种改进的发光共振能量转移(LRET)方法,我们在供体和受体荧光基团位点之间引入了蛋白酶切割位点。这一改进使我们能够获得来自目标膜蛋白的特异性LRET信号,从而可在无需蛋白纯化的条件下对膜蛋白进行研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
发光共振能量转移(LRET)是一种强大的技术,可用于测量蛋白质中两个位点之间的距离,测量范围为10-100 Å。通过在不同配体结合条件下测量距离,可轻松评估蛋白质的构象变化。在LRET中,通常使用镧系元素(最常见的是螯合的铽)作为供体荧光探针,其优势包括较长的仅供体发射寿命、可灵活选用多种受体荧光探针,以及能够通过检测敏化受体发射来简便地测量能量转移,且无需担心同时检测到仅供体信号的干扰。本文中,我们描述了一种在完整哺乳动物细胞表面表达并检测膜蛋白的LRET方法。我们在LRET荧光探针对之间引入一个蛋白酶切割位点。在获得原始LRET信号后,通过在该位点进行切割,可特异性去除目标蛋白的LRET信号,从而定量扣除切割后残留的背景信号。该方法可在无需纯化蛋白质的情况下,实现更接近生理状态的测量。
引言
发光共振能量转移(LRET)是著名的荧光共振能量转移(FRET)技术的一种衍生方法1。与FRET类似,LRET可用于测量连接在目标蛋白特定位置上的供体与受体荧光团之间在10–100 Å范围内的距离及距离变化1-3。LRET的原理也与FRET相似:当供体荧光团的发射光谱与受体荧光团的吸收光谱发生重叠时,两个邻近的荧光团之间会发生共振能量转移。该能量转移的效率与两个荧光团之间的距离之间的关系由以下方程决定:
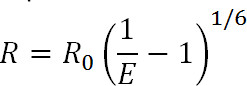 方程 1
其中 R 为两个荧光团之间的距离,E 为能量转移效率,R0 为该荧光团对的福斯特半径(下文将讨论),即能量转移效率达到最大值一半时的距离,i.e.。由该方程可知,转移效率与距离的六次方的倒数成正比1。正是这种与距离六次方倒数的依赖关系,使得在接近FRET配对的R0时,FRET和LRET测量对微小的距离变化具有极高的灵敏度。能够特异性地标记蛋白质或其他大分子上的目标位点,使得研究人员可利用这种灵敏性来监测构象变化。
与使用常规有机染料分子的FRET相比,LRET具有额外的优势。在LRET中,供体荧光基团并非有机染料,而是采用镧系阳离子,通常为Tb3+ 或 Eu3+,被使用1,4-6属于此类别的荧光基团, 例如铽螯合物也具有很高的通用性,可与多种受体荧光染料联用。这种灵活性源于螯合镧系元素的发射光谱包含多个尖锐的发射峰,使得同一种供体荧光染料能够与多种不同的受体荧光染料配合使用。因此,可以在完全避免供体发射光干扰的情况下检测敏化的受体发射信号。5实验者根据两种荧光基团之间的预期距离来选择特定的受体图1 和 表1)。在这些螯合的镧系元素荧光团中,金属离子被一个分子螯合,该分子包含一个天线基团,可增强通常吸收较弱的镧系元素的激发,同时还含有一个生物反应性功能基团,用于将离子连接至大分子上的特定功能基团1,5,6一旦被激发,镧系元素通过释放光子回到基态,其衰减速率在毫秒量级。由于该衰变既不是单重态到单重态的弛豫,也不是三重态到单重态的弛豫,因此所发射的光子不宜称为荧光或磷光,而更准确地应称为发光(luminescence)。1镧系元素发光的长衰减时间对寿命测量大有帮助。随后可通过以下关系式利用寿命测量来确定效率:
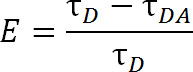 公式 2
其中,E 为能量转移效率,τD 表示未参与能量转移时供体(螯合的镧系元素)的荧光寿命,τDA 表示供体与受体发生能量转移时的荧光寿命。在LRET中,由于铽的寿命远长于有机受体荧光团,τDA 也可通过敏化后受体发射的寿命进行测量。受体的发射具有与其激发源(供体镧系元素)相同的寿命,而受体自身本征荧光寿命对总寿命的贡献相对可忽略。通过测量敏化的受体发射而非供体发射,我们无需确保供体与受体的标记比例严格为1:1。蛋白质可同时标记受体和供体荧光团,尽管会产生标记不均一的群体,但双供体标记的蛋白质不会在受体波长处发射,而双受体标记的蛋白质则不会被激发。此外,无论荧光团连接在哪个半胱氨酸位点,荧光团之间的距离应保持相同,尤其是在使用各向同性的镧系元素作为供体时,因此无需指定特定的位点分别用于连接供体或受体。尽管不均一的标记群体可能影响信号强度,但仍足以被检测到。
设计实验时,荧光团的选择应根据荧光配对的R0值以及预期测量的距离范围来决定。R0值由以下公式定义:
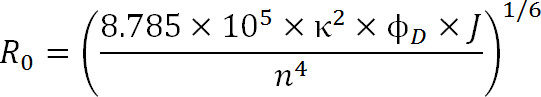 公式 3
其中,R0 是以埃(Å)为单位的 Förster 半径,κ2 是两种染料之间的取向因子(通常假设为 2/3),ϕD 是供体的量子产率,J 是供体发射光谱与受体吸收光谱之间的光谱重叠积分,单位为 M-1cm-1nm4,n 为介质的折射率1。
本实验室对传统的LRET技术进行了一项改进,即在被检测蛋白质的供体和受体标记位点之间引入蛋白酶识别位点。该改进使得该技术可用于未经纯化的体系,例如完整的哺乳动物细胞7。当使用半胱氨酸作为标记位点时,该技术尤其具有优势,因为在使用与半胱氨酸巯基结合的马来酰亚胺偶联染料进行标记过程中,细胞中其他含有半胱氨酸的蛋白质也会被非特异性标记。然而,通过在目标蛋白质上引入蛋白酶切割位点,并在切割前后分别测量荧光寿命,实验者可以定量地从原始信号中减去蛋白酶切割后的背景信号。该减法处理可分离出仅来自目标蛋白质的特异性信号(图2)。利用上述改进方法,LRET可用于测量铽螯合物供体与受体探针在蛋白质上的距离变化,从而在无需纯化蛋白质的条件下,监测其接近生理状态下的构象变化。

图1. 黑色曲线为螯合态铽的吸收和发射光谱,红色曲线为典型受体Alexa 488的光谱。 注意铽螯合物具有多个发射峰,且每个峰的发射范围尖锐而狭窄。这种特性使得铽可与多种受体荧光团联用,并便于在铽无发射的波长范围内检测敏化发射。铽在486 nm处的发射峰与Alexa 488的吸收峰重叠程度良好,从而允许两种荧光团之间发生共振能量转移。选择515 nm波长检测该组合的敏化发射效果极佳,因其位于铽发射峰之间的低谷区,且接近Alexa 488的520 nm发射峰。需注意,尽管检测波长接近受体发射峰较为理想,但并非必需——565 nm仍可有效检测Alexa 488的发射信号,同时避免检测到来自铽的发射。
| 受体荧光染料 | R0 (Å) | 发射波长 (nm) |
| Atto 465 | 36 | 508 |
| Fluorescein | 45 | 515 |
| Alexa 488 | 46 | 515 |
| Alexa 680 | 52 | 700 |
| Alexa 594 | 53 | 630 |
| Alexa 555 | 65 | 565 |
| Cy3 | 65 | 575 |
表1. 使用铽螯合物作为供体时,LRET中常用的受体荧光团列表11。R0 值是在供体和受体连接至AMPA受体的可溶性激动剂结合域时测得的。对于每个新研究体系,理想情况下应重新测定R0值。

图 2. 本文展示的LRET方法概述。(A)AMPA受体是一种膜蛋白,其在配体结合后会发生构象变化。此处以红色圆圈标出的是蛤壳状的配体结合域。(B)当AMPA的配体结合域未与配体结合时,其处于开放构象(左图);当与谷氨酸配体结合后,蛋白质会围绕其配体闭合(右图)。通过在配体结合域(LBD)上的探针位点标记荧光团,可观察到这种构象变化的性质:随着荧光团之间距离的改变,荧光寿命也会相应发生变化。(C)在对完整细胞进行标记时,可能发生目标蛋白以及背景膜蛋白的同时标记(左图)。经过蛋白酶切割后,由于可溶性片段的释放,来自目标蛋白的LRET信号将消失,而背景信号保持不变(右图)。随后可将该背景信号从原始信号中扣除。
访问受限。请登录或开始试用以查看此内容。
方案
1. 构建含有目的蛋白的重组质粒
将表达目标蛋白的基因克隆至合适的载体中。可使用pcDNA系列或pRK5等载体,因为它们非常适合在HEK293和CHO细胞等哺乳动物系统中表达。
2. 选择蛋白质上用荧光染料标记的位点
- 选择能够反映蛋白质内可能发生的构象变化的标记位点。如果可能,利用该蛋白质或同源蛋白质的晶体结构来辅助确定这些位点。若无可用的晶体结构,可使用在线软件预测蛋白质的可能结构,从而获得有关合适位点的信息。
- 选择侧链暴露于表面且可被荧光团接触的残基,以便对蛋白质进行标记。
- 选择对蛋白质功能非关键的残基,例如不参与配体结合的位点。
- 在引入半胱氨酸突变时,优先选择性质相似的位点(如丝氨酸),以尽量减少对蛋白质结构的扰动。
- 选定标记位点后,进行突变以确保蛋白质仅在这些预期位点产生LRET信号。采用标准的定点突变方法,将可能与马来酰亚胺偶联荧光标签结合的非二硫键连接的半胱氨酸突变为其他氨基酸。不要突变参与形成二硫键的半胱氨酸以及埋藏于内部的游离半胱氨酸,因为在蛋白质折叠状态下,这些残基不应与荧光染料发生反应。
- 通过标准的定点突变方法,对目标位点进行点突变以引入半胱氨酸残基。
- 引入一个蛋白酶切割位点,可特异性地将其中一个引入的半胱氨酸从蛋白质上切除。如果蛋白质序列允许,可通过保守突变使引入的半胱氨酸附近包含凝血酶(识别序列LVPRGS)或Xa因子(识别序列IDGR或IEGR)的识别序列,并确保该序列可被蛋白酶接近并切割;否则,可整体插入四肽或六肽序列。选择切割位点时应确保切割后其中一个引入的半胱氨酸能够从蛋白质其余部分解离——在某些情况下,这可能需要在突变的半胱氨酸两侧各设置一个切割位点。
3. 检测蛋白的表达与功能
- 通过蛋白质印迹实验确认突变蛋白的表达。
- 对蛋白进行功能检测,以确保突变对蛋白功能的影响尽可能小,甚至无影响,从而避免研究功能异常蛋白的构象变化。
注意:由于不同蛋白具有不同的功能,因此没有专用于LRET的单一功能检测方法;但一些功能检测的示例包括:酶的活性检测、受体的配体结合检测以及离子通道的电生理学研究。
4. 选择要使用的荧光染料
根据待测距离范围选择荧光团,使该范围处于荧光团对的 R0 值的 0.5–1 倍之间。
注意:这有助于更简便地扣除背景信号,因为背景信号通常具有更长的寿命。例如,若待测距离范围约为 35 Å,则可选用铽螯合物作为供体、Alexa 594 作为受体的荧光团对,因为该对的 R0 为 53 Å(表 1)。
5. 通过瞬时转染所需数量的哺乳动物细胞来表达蛋白
将目标蛋白通过常用的转染试剂瞬时转染至选定的哺乳动物细胞中。通常情况下,每次LRET实验为HEK和CHO细胞系使用四个10 cm培养皿;然而,具体数量可能因蛋白表达水平和稳定性而有所调整, 等等让细胞表达蛋白36-48小时后再进行收获。
6. 标记蛋白质
- 从培养皿中分离细胞。通过用移液器将缓冲液吹打至培养皿底部即可分离HEK细胞。使用细胞刮刀刮下CHO细胞,并用细胞外缓冲液冲洗去除培养基。
- 以1,100 × g离心3分钟收集细胞。在荧光标记后以及后续每次洗涤后,均使用相同的离心条件收集细胞。
- 将细胞重悬于3 ml细胞外缓冲液中,然后按等摩尔比例加入供体和受体荧光染料,使其终浓度达到100–300 nM。在室温下旋转孵育1小时。
- 用细胞外缓冲液洗涤标记后的细胞3–4次,以去除未结合的荧光染料,然后将细胞重悬于细胞外缓冲液中(通常为2 ml),用于LRET测量。
- 作为对照,另取一组细胞仅标记供体荧光染料(铽螯合物),不添加任何受体荧光染料。
注意:完成数据分析需要来自仅含供体实验的数据。这些实验可在同一天或不同天进行。 - 再次进行功能验证,此次使用标记的突变蛋白,因为标记过程可能因标记位点的不同而影响蛋白功能。
注意:这些实验可在同一天或不同天进行。
7. 设置LRET实验
- 将重悬的细胞加入石英比色皿中,体积至少为 1 ml。
- 打开计算机和仪器,相应调整数据采集程序的参数。
- 将激发波长设置为供体荧光团的吸收波长范围(对于铽螯合物,330–340 nm 效果良好)。
- 适当设置发射波长,需注意受体的发射波长取决于所用受体的种类。重要的是,选择一个仅检测受体发射信号的检测波长,避免包含供体发射的串扰信号。例如,当使用 Alexa 555 作为受体时,检测波长应设为 565 nm(见表 1)。对于仅含供体的样品(即蛋白质仅标记供体而未标记受体),应使用 545 nm 波长检测铽螯合物的发射。
- 设置发射检测时长,至少应为预期LRET寿命的三倍,以确保不会遗漏长寿命组分。
- 进行扫描。每个样品至少重复扫描三次,每次扫描包含 99 次累积,以确保结果的一致性。将结果保存为文本文件(*.txt)。
- 为检测蛋白质在不同条件(如配体添加)下的构象变化,改变相应条件后,对同一样品在新条件下再次进行至少三次、每次 99 次累积的扫描。例如,若研究谷氨酸对谷氨酸受体构象的影响,可在第 7.3 步扫描过的同一样品中加入谷氨酸至终浓度 1 mM,然后重新扫描。
- 加入最多五个单位的相应蛋白酶,并持续进行扫描,直至切割完全且连续三次扫描中寿命不再发生变化。通常,切割过程在 2 至 3 小时内完成。例如,若使用 Factor Xa 酶切位点进行蛋白酶切割,则向样品中加入 3 µl Factor Xa,之后每 30 分钟扫描一次,持续 3 小时。
8. 分析获得的数据
- 打开数据分析软件。
- 使用“导入ASCII”功能打开文本文件,加载荧光寿命数据。将所有重复实验数据以及最终的背景测量数据均加载到一个文件中。
- 对每种实验条件下的所有扫描数据进行平均,以获得最终数据。操作方法为:选中包含单次试验数据的列,然后在菜单栏的“数据”菜单下点击“行统计”,以显示各次试验的平均荧光强度、标准差和标准误。
- 以平均值绘制折线图,Y轴为荧光强度,X轴为以微秒为单位的寿命,生成代表受体敏化发射寿命的曲线。将Y轴设置为对数刻度,以便更清晰地展示数据。
- 对背景测量数据重复步骤8.3,对显示重叠(表明完全切割)的最终扫描数据进行平均。
- 将平均背景数据与平均原始数据绘制在同一图表中。操作方法为:在“绘图”菜单下打开“图层控制”对话框,然后将包含背景均值的数据添加至“图层内容”列表中。
- 将平均背景数据与平均原始数据对齐。操作方法为:使用“数学”菜单下的“简单数学”功能,根据需要乘以或除以背景数据,直至背景曲线的尾端与原始数据曲线的尾端重合。
注:在此尾端区域,目标蛋白的寿命信号应已完全衰减;此时对齐的仅为蛋白酶切割前后均存在的背景信号。 - 再次使用“简单数学”功能,从初始的原始LRET信号中减去对齐后的背景信号。
- 将数据拟合为指数衰减模型(单指数或多个指数,具体取决于标记位点和实验设计)。
- 将拟合的起始边界设置在激光脉冲结束之后。所有后续曲线拟合均使用相同的起始点。
- 在“选择拟合函数”对话框中选择指数衰减,以将寿命数据拟合至以下单指数衰减方程:
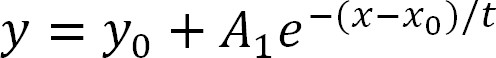 方程 4
其中,y 表示荧光强度,y0 表示系统噪声引起的背景强度,A1 为信号强度,t 为荧光寿命,x 为时间,x0 为时间偏移量。 - 将 x0 固定为 0,启动拟合函数并进行数据拟合。
注:若实验设计仅包含一对标记位点,则所得数据通常可用单指数衰减模型良好拟合8。拟合残差是评估拟合优度以及判断是否需要引入额外衰减寿命的有效方法。
- 利用所获得的寿命数据,通过 Förster 方程(即上方公式1和公式2的重新排列形式)计算荧光团之间的距离:
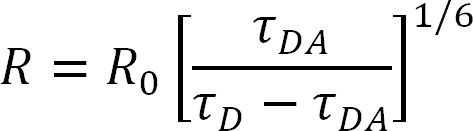 方程 5
注:所有变量定义同上,其中 τDA 为测得的受体敏化发射寿命。关于 R0 和 R 的测量更多细节与示例可参见其他文献7,9,10。 - 至少重复实验和数据分析三次,以确保结果的可重复性。若同一样本的多次测量结果不一致,则需质疑数据的有效性;应增加对照实验或重复次数。使用Gustavus误差分析计算器(由Thomas Huber博士开发)或其他可传播寿命拟合误差的系统,计算测量误差。
访问受限。请登录或开始试用以查看此内容。
结果
镧系元素供体成功进行LRET测量时,其单独供体的寿命应在毫秒时间范围内。对于同时标记了供体和受体的蛋白质,其敏化LRET发射在扣除背景后的寿命将明显更短,处于微秒时间范围。 图3蛋白酶切割会导致寿命增加,且随时间推移应趋于稳定(即 不再发生变化,表明蛋白酶切割已完全完成 图4如果LRET信号仅来自一组位点,则扣除背景后的发射寿命应呈现单指数寿命。
在测量构象变化时,特定的LRET信号应显示出超出测量误差范围的寿命变化图3。测量误差可通过拟合寿命相关误差的传播进行计算。在将数据拟合至方程4所述最少数量的指数衰减函数后,可确定寿命τ。利用方程5,可结合LRET探针对的R0值,使用供体-受体以及仅含供体的寿命,计算在测试条件下两个荧光团之间的距离。将因条件改变而引起距离变化与蛋白质的整体结构和功能相关联,是实验人员接下来的任务。
访问受限。请登录或开始试用以查看此内容。
讨论
LRET 是一种强大的技术,可使科学家测量单个蛋白质内不同结构域之间以及多聚体蛋白质亚基之间的距离。因此,LRET 非常适用于研究蛋白质或其他大分子的构象变化与动态行为。上述实验方案应能使具备适当设备的实验室轻松验证其假设;然而,新手研究者可能会遇到许多常见的错误来源。如果观察到极弱或无 LRET 信号,首先应检查所用波长设置。激发波长应在铽(terbium)的吸收范围(330–340 nm)内。对于仅含供体的测量(即样品仅标记了供体荧光团而未标记受体荧光团),发射波长应位于图1所示的某一个峰处;而对于供体-受体测量,发射波长应与所用受体荧光团相匹配,参见表1。若波长设置正确,则需检查缓冲液的兼容性。某些荧光团可能与特定缓冲液或特定 pH 范围不兼容。接下来,需确保所选氨基酸残基与荧光团之间具有兼容性。如果实验设计完全正确,则问题可能出在荧光团本身或蛋白质上。随着时间推移,荧光团的储备液可能发生降解,导致标记效率不足。最后,应检查蛋白质的表达水平及其功能状态。实验中已引入多种突变,包括引入半胱氨酸、去除天然半胱氨酸,以及至少引入一个蛋白酶切割位点。因此,即使在正常的转染...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了美国国立卫生研究院资助项目 GM094246、美国心脏协会资助项目 11GRNT7890004 以及美国国家科学基金会资助项目 MCB-1110501 的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| LanthaScreen 巯基反应性 Tb 螯合物 | Life Technologies | PV3579 | |
| 受体荧光染料-荧光素-5-马来酰亚胺 | Life Technologies | F-150 | 受体的选择取决于具体实验 |
| 受体荧光染料-Alexa Fluor 488 C5 马来酰亚胺 | Life Technologies | A-10254 | 受体的选择取决于具体实验 |
| 受体荧光染料-Alexa Fluor 555 C2 马来酰亚胺 | Life Technologies | A-20346 | 受体的选择取决于具体实验 |
| 受体荧光染料-Alexa Fluor 594 C5 马来酰亚胺 | Life Technologies | A-10256 | 受体的选择取决于具体实验 |
| 受体荧光染料-Alexa Fluor 680 C2 马来酰亚胺 | Life Technologies | A-20344 | 受体的选择取决于具体实验 |
| QuantaMaster 3-SS | Photon Technology International | 荧光光谱仪应具备脉冲激发功能,并能测量毫秒级的荧光寿命 | |
| FluoreScan 2.0 | Photon Technology International | 文中所使用的数据采集软件,随荧光仪器提供 | |
| Origin 8.6 | OriginLab | Origin 是本实验方案中所使用的数据分析软件,也可使用其他类似的数据分析软件 | |
| 石英比色皿 | Starna Cells, Inc | 3-Q-10 | |
| 搅拌子 | Bel-Art Products | F37119-0007 | 用于比色皿中保持细胞悬浮,可使用任何适配比色皿的搅拌子 |
参考文献
- Selvin, P. R. Principles and biophysical applications of lanthanide-based probes. Annual Review of Biophysics and Biomolecular Structure. 31, 275-302 (2002).
- Stryer, L., Haugland, R. P. Energy transfer: a spectroscopic ruler. Proceedings of the National Academy of Sciences of the United States of America. 58, 719-726 (1967).
- Stryer, L. Fluorescence energy transfer as a spectroscopic ruler. Annual Review of Biochemistry. 47, 819-846 (1978).
- Selvin, P. R., Hearst, J. E. Luminescence energy transfer using a terbium chelate: improvements on fluorescence energy transfer. Proceedings of the National Academy of Sciences of the United States of America. 91, 10024-10028 (1994).
- Chen, J., Selvin, P. R. Thiol-reactive luminescent chelates of terbium and europium. Bioconjugate Chemistry. 10, 311-315 (1999).
- Ge, P., Selvin, P. R. Thiol-reactive luminescent lanthanide chelates: part 2. Bioconjugate Chemistry. 14, 870-876 (2003).
- Gonzalez, J., Rambhadran, A., Du, M., Jayaraman, V. LRET investigations of conformational changes in the ligand binding domain of a functional AMPA receptor. Biochemistry. 47, 10027-10032 (2008).
- Ramaswamy, S. S., Maclean, D. M., Gorfe, A. A., Jayaraman, V. Proton mediated conformational changes in an Acid Sensing Ion Channel. J. Bio. Chem. 288, (2013).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Conformational changes at the agonist binding domain of the N-methyl-D-aspartic acid receptor. The Journal of Biological Chemistry. 286, 16953-16957 (2011).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Subunit arrangement in N-methyl-D-aspartate (NMDA) receptors. The Journal of Biological Chemistry. 285, 15296-15301 (2010).
- Kokko, T., Kokko, L., Soukka, T. Terbium(III) chelate as an efficient donor for multiple-wavelength fluorescent acceptors. Journal of Fluorescence. 19, 159-164 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
标签
