在突触前释放面膜上记录 Ca2+ 电流,对于精确理解 Ca2+ 内流与神经递质释放至关重要。我们介绍一种急性分离七鳃鳗脊髓的方法,可获得具有功能的分离网状脊髓轴突,从而能够直接对单个突触前末梢的释放面膜进行记录。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
突触传递是一个极其迅速的过程。动作电位引发的Ca2+ 通过位于释放面膜上的电压门控钙通道(VGCCs)流入突触前末梢,是囊泡融合和神经递质释放的触发因素。突触传递快速性的关键在于动作电位到达、VGCCs以及神经递质释放机制之间在空间和时间上的同步性。能够直接记录单个突触前末梢释放面膜上的Ca2+ 电流,对于精确理解突触前Ca2+ 与神经递质释放之间的关系至关重要。在大多数实验体系中,无法接触到突触前释放面膜进行电生理记录,因此突触前Ca2+ 内流通常通过成像技术和宏观电流测量来表征——这些技术的时间分辨率不足以清晰观察Ca2+内流过程。直接在单个突触前末梢上对VGCCs进行表征,在中枢突触中一直未能实现,迄今为止仅在鸡睫状神经节的壶腹型突触以及大鼠的壶腹结构中成功完成。我们通过建立一种急性分离的脊髓制备方法,成功解决了这一问题,该制备可获得带有功能性突触前末梢但无突触后结构的分离网状脊髓轴突,来源于八目鳗脊髓中的巨大网状脊髓突触。我们可以对单个突触前末梢进行荧光标记和识别,并靶向其进行记录。利用该制备,我们结合免疫组织化学和电生理学方法,直接在单个突触前末梢的释放面膜上对VGCCs进行了表征。我们首次在中枢突触中直接记录到了单个突触前末梢释放面膜上的Ca2+电流,这是此类记录在中枢突触中的首次实现。
引言
突触传递是一个极其快速且精确的过程。动作电位侵入突触前终末,导致位于释放面膜上的电压门控钙通道(VGCCs)开放,由此引起的突触前Ca2+浓度升高作为囊泡融合和神经递质释放的触发信号1。所有这些步骤均在数百微秒内完成2,因此需要VGCCs与囊泡融合机制之间存在紧密的空间耦合3。突触前Ca2+流主要通过使用Ca2+敏感染料的成像技术进行表征4。通过引入可调节突触前神经元内Ca2+的Ca2+缓冲剂,已被用于间接研究突触前钙离子与神经传递之间的关系3。此外,通过Ca2+解笼释放技术调节突触前游离Ca2+浓度,或记录宏观Ca2+电流,并结合囊泡融合和/或释放的测量方法(如电容测量6或突触后反应2),也被用于探讨相同问题。然而,直接在释放面——即突触前膜中将膜去极化转化为触发突触囊泡融合和神经递质释放的Ca2+电流的特化区域——对Ca2+电流进行表征,对于精确测定突触囊泡融合所需的Ca2+水平至关重要。此外,能够在单个突触前终末直接表征Ca2+电流,并同时精确测量囊泡融合与释放,有助于清晰阐明动作电位时程、突触前Ca2+电流、囊泡融合及释放之间的时间关系。由于突触后树突的紧密贴附,大多数突触前终末的释放面膜无法被触及。这种不可接近性一直是表征VGCCs的主要障碍,因为它阻碍了对单个突触前终末电流的直接测量。迄今为止,在中枢突触中尚无法实现对单个突触前终末突触前Ca2+电流的直接表征,仅在两种壶腹型突触前终末中得以实现:鸡睫状神经节的壶腹型突触7-10和大鼠壶腹终末11,12。在所有其他突触前终末中,包括七鳃鳗脊髓中的巨大网状脊髓突触13,由于无法接触突触前释放面膜,不得不依赖Ca2+成像等间接方法来研究突触前Ca2+流动。
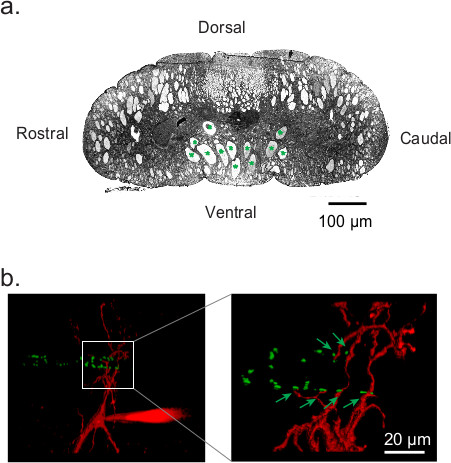
图 1. 七鳃鳗巨大的网状脊髓突触。 (a) 七鳃鳗脊髓横切面,显示背腹方向。网状脊髓轴突以绿色星号标记。 (b) 七鳃鳗脊髓中网状脊髓突触的三维重建图像,显示突触前网状脊髓轴突在途中与突触后神经元形成多个串联式接触(绿色箭头所示)13。突触前终末用 Alexa Fluor 488 肼偶联鬼笔环肽(绿色)标记,而突触后神经元则填充了 Alexa Fluor 568 肼(红色)。
位于脊髓腹侧、沿头尾轴平行排列的七鳃鳗巨大网状脊髓轴突 图1a,可在脊髓腹角神经元上形成多个en passant突触连接14,图1b13。已有研究在完整脊髓中记录到网状脊髓轴突的宏观全细胞 Ca2+ 电流13,15。然而,此前在完整七鳃鳗脊髓中尝试采用贴附式膜片钳技术直接测量网状脊髓轴突的 Ca2+ 电流均未成功13,原因是突触后结构遮挡,无法接触突触前释放面膜 图1b。此前已有研究通过移除突触后神经元11、记录前机械扰动突触12,或结合酶处理与机械分离16,使释放面膜暴露。鉴于脊髓结构的复杂性,识别突触后神经元并进行机械回撤或扰动突触将极为困难。因此,我们决定采用酶处理17结合机械分离的方法。
利用该方法,我们建立了一种七鳃鳗脊髓的急性分离制备技术,可获得具有功能性的突触前末梢且不含任何突触后结构的存活孤立网状脊髓轴突,从而能够无阻碍地接触单个突触前末梢。结合标准的倒置显微镜与荧光成像技术,我们能够识别并靶向定位经荧光标记的单个突触前末梢,使用含有记录液的膜片钳电极,在细胞贴附式电压钳模式下分离并记录 Ca2+ 电流 FIgure 4c 和 Figure 4d。Ca2+ 电流已直接在单个突触前末梢的递质释放面膜上被记录到 Figure 4f。这是突触传递领域的一项重大突破,因为这是首次在中枢突触上实现此类记录。
访问受限。请登录或开始试用以查看此内容。
方案
1. 聚-D-赖氨酸盐酸盐的制备
- 在0.1 M硼酸盐缓冲液(pH 8.5)中配制1 mg/ml的聚-D-赖氨酸氢溴酸盐溶液。
- 分装后于-20 °C保存。
2. 盖玻片的多聚赖氨酸包被
注意:所有清洗和包被步骤均须在层流室中进行。
- 将盖玻片放入含有 1 N 盐酸(HCl)的培养皿中,处理 2 小时。
- 吸除全部 HCl,并用 70% 乙醇(EtOH)冲洗 2–3 次。
- 在 70% EtOH 中静置 1 小时。
- 吸除全部 70% EtOH,并用 100% EtOH 冲洗 2–3 次。
- 在 100% EtOH 中静置 2 小时,然后吸除所有 EtOH。
- 用滤纸吸干,并在空气中干燥数秒钟。
- 将盖玻片置于 1 mg/ml 多聚赖氨酸溶液中过夜。
- 次日用 Millipore 水冲洗盖玻片 4–5 次。
- 将涂有多聚赖氨酸的盖玻片置于洁净培养皿中的玻璃滚轴上,自然晾干。
- 进行免疫组织化学实验时,使用 35 × 10 mm 培养皿盖。制备硅胶(聚二甲基硅氧烷,PDMS)包被的培养皿:将 PDMS(弹性体与固化剂按重量比 10:1 混合)倒入培养皿中,厚度约为 0.3 cm,在 30 °C 下过夜固化。固化后,在 PDMS 上切割出一个 2 cm × 1 cm 的凹槽。按照上述盖玻片的相同步骤,对凹槽进行清洁并涂覆多聚赖氨酸。
- 将涂有多聚赖氨酸的盖玻片和培养皿置于超净工作台内保存,直至使用(最长可保存 2 周,但为获得最佳黏附效果,建议每 3–4 天定期重新制备)。
- 制备用于固定脊髓组织的 PDMS 块,以用于振动切片机。将弹性体 A 和弹性体 B 按 1:1 重量比混合,倒入 100 × 15 mm 培养皿中,在 30 °C 下过夜固化。切取一块矩形 PDMS,使用环氧树脂胶将其粘接到切片底板上。待胶水完全固化以固定 PDMS 后,从表面切去多个薄层,以获得一个平整的表面,用于固定组织。
3. 急性分离七鳃鳗脊髓以获得分离的网状脊髓轴突
- 使用三卡因甲磺酸盐(MS-222;100 mg/L)麻醉七鳃鳗幼体或成体(Petromyzon marinus)。将麻醉剂加入盛有七鳃鳗的带盖塑料杯的水中,以进行麻醉处理。
- 在冰冷(4 °C)的任氏液中进行断头操作,任氏液成分为(单位:mM):130 NaCl、2.1 KCl、2.6 CaCl2、1.8 MgCl2、4 HEPES、4 dextrose(pH 7.6,渗透压 270 mOsm),并去除体壁肌肉以暴露脊髓背侧表面。
- 使用精细镊子去除脊髓背侧表面的原始软膜。此阶段不要去除腹侧的原始软膜。
- 将脊髓切成约1 cm长的节段。
- 使用精细昆虫针将一段脊髓固定在振动切片机腔室内的PDMS衬底切片基板上(见2.12),背侧朝上,腔室内盛有冰冻(4 °C)任氏液。
- 用刀片沿头尾轴方向切去脊髓背柱的中央部分,保留头端和尾端完整的背柱组织作为解离过程中的操作手柄(图2a 和 图2b)。使用允许切片的最慢速度设置,并调整切割深度,仅去除背柱组织,避免损伤下方的网状脊髓轴突柱(图2b)。
- 将切好的脊髓组织段在室温下孵育45分钟,孵育液为含1 mg/ml蛋白酶(来自灰色链霉菌,Type XIV)和1 mg/ml胶原酶(来自产气荚膜梭菌,Type IA)的任氏液混合酶液(改良自El Manira & Bussières, 1997 17)。
- 使用精细镊子将经酶处理的脊髓组织段固定于内衬PDMS的培养皿中,培养皿内含冷(4 °C)任氏液。
- 用精细镊子去除腹侧的原始软膜。
- 用手术刀片在已切开的背侧部分中点处切断脊髓的侧束,保留脊髓内网状脊髓轴突的中央柱完整(图2d)。
- 在物镜上滴加一滴浸油。
- 将多聚赖氨酸包被的盖玻片(图3a,上部,红色矩形)插入记录室的槽中(图3),并在所有边缘(图3a中红色与蓝色矩形之间的空隙)涂抹真空脂以帮助密封。将顶部旋紧固定。将记录室置于记录装置的嵌入槽中。
- 使用巴斯德移液管向记录室中加入任氏液。
- 将装有防冻液的压力瓶的出液管连接至热电冷却装置的进液管,再将热电冷却装置的出液管连接至外层冷却套的进液端,其出液端连接至储液瓶(图3b)。
- 每次将一段脊髓放入记录室中,使用特氟龙包被的镊子轻轻分离脊髓组织,始终保持其沿盖玻片移动,直至轴突被分离出来(图2e 和 图2f)。
- 通过热电冷却装置,将加压的防冻液(氮气注入瓶中推动液体)经外层冷却套循环,使记录室内的溶液温度降至10 °C(图3b)。
- 轴突解离后,在10 °C条件下恢复1小时。
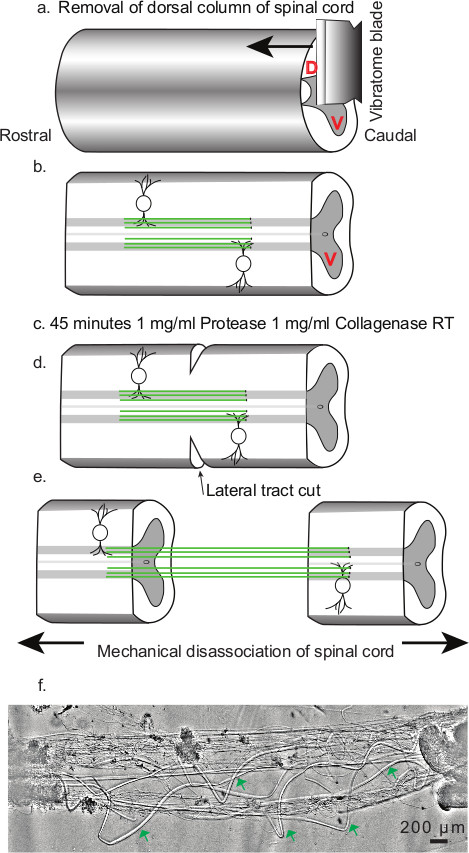
图2. 分离网状脊髓轴突的解离方案示意图。 (a) 背柱的去除。箭头指示组织切片方向。背角以字母 D 标记(红色字体),腹角则以字母 V 标记(红色字体)。(b) 脊髓中央区域的背柱已被去除,暴露出网状脊髓轴突(绿色线条)。切片过程后仍保持完整的腹角以字母 V 标记(红色字体)。(c) 使用蛋白酶和胶原酶混合液(1 mg/ml)处理 45 分钟。(d) 脊髓外侧束的切割;指示外侧切口的位置、方向和范围。(e) 脊髓的机械性解离。箭头指示解离过程中镊子的位置及分离力的方向。(f) 解离后网状脊髓轴突制备的代表性示例。绿色箭头标记了急性解离的网状脊髓轴突区域,无任何突触后结构。
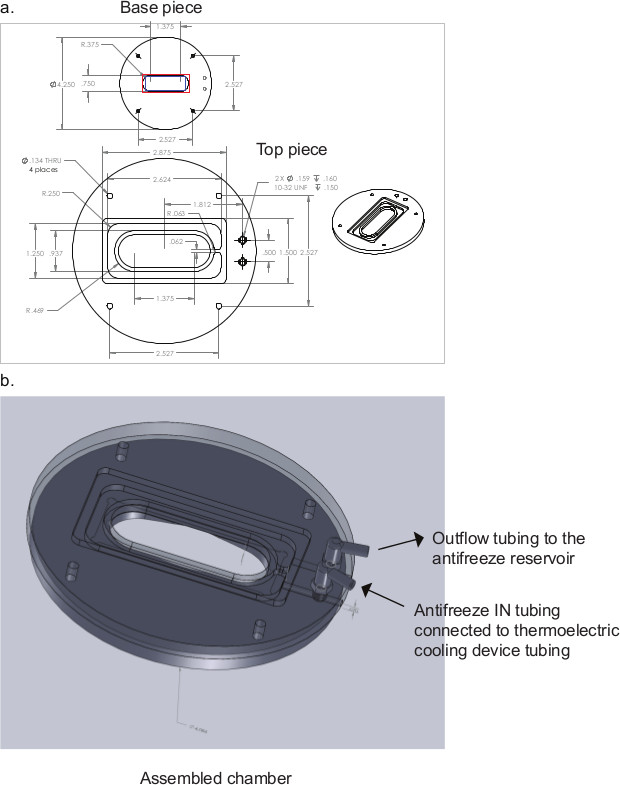
图 3. 电生理实验用记录室示意图。 所示尺寸单位为英寸。底座部件示意图 (a) 中的红色矩形表示盖玻片在底座凹槽中的位置。(a) 中红色矩形与蓝色矩形之间的区域为涂抹高真空润滑脂的位置。(b) 为组装完成的记录室。
4. 使用 FM 1-43 标记和鉴定突触前终末
- 通过在高 K+ 去极化期间的突触胞吐-内吞过程中将 FM 1-43 掺入囊泡,标记突触前末梢。用含 5 µM FM 1-43 的 5 ml Ringer 溶液(含 30 mM KCl)灌流样本。
- 用含 1 mg/ml Advasep-7 的 5 ml Ringer 溶液灌流样本,以去除过量的 FM 染料18。
- 用 Ringer 溶液灌流样本 15 分钟,以洗去残留染料及 Advasep。
- 在倒置荧光显微镜上,结合数字 CCD 相机和图像采集软件 Micromanager,使用标准荧光成像方案,通过 100 X 油镜(NA 1.25)进行成像。
- 识别荧光标记的突触前末梢,用于记录靶点 图 4c 和 图 4d。
5. 分离的网状脊髓轴突的免疫组织化学
- 用无二价离子(Ca2+ 和 Mg2+)的任氏液填充培养皿插件(方案第 2.10 节)。
- 使用 P-87 微电极拉制仪制备膜片钳电极。用膜片钳电极(外径 1.5 mm 的玻璃管)吸取少量缝合胶,并通过连接在吸管末端的硅胶管(内径 0.89 mm)施加负压,将胶滴加至聚赖氨酸插件的一端。
- 按照方案第 3 节所述相同程序进行解离(见图 2)。将脊髓一端置于缝合胶上,用镊子轻轻按压,使其牢固粘附于表面。在插件另一端再滴加一滴缝合胶,轻轻拉伸脊髓直至轴突解离,并将游离的脊髓末端轻柔地拖过缝合胶以实现粘附。用镊子轻轻按压固定位置。
- 通过灌流将无二价离子任氏液更换为常规任氏液。
- 解离后,在 10 °C 下恢复轴突 20 分钟。
- 用 4% 多聚甲醛(PFA){溶于磷酸盐缓冲液(PBS,(mM) NaCl 137,KCl 2.7,Na2HPO4 10,KH2PO4 1.8,pH 7.4)}固定解离的轴突,持续 20 分钟。使用前通过 0.2 µM 注射器滤器过滤 PFA 溶液。
- 通过灌流 0.1 M 甘氨酸(溶于 PBS)10 分钟,洗去 PFA。
- 在 0.1% Triton-X(溶于 PBS)中孵育 10 分钟。
- 通过灌流 PBS 洗涤 20 分钟。
- 用 5% 脱脂牛奶(溶于 PBS)在 4 °C 下封闭 6 小时。
- 加入目标电压门控钙通道(VGCC)的一抗(按 1:200 比例稀释于 PBS 中),在 4 °C 下孵育 20 小时。
- 通过灌流 PBS 洗涤 20 分钟。
- 用 5% 脱脂牛奶(溶于 PBS)在 4 °C 下再封闭 10 分钟。
- 加入二抗(按 1:400 比例稀释于 PBS 中),在避光条件下于 4 °C 孵育 2 小时。
- 通过灌流 PBS 洗涤 20 分钟。
- 用 1% 牛血清白蛋白(溶于 PBS)封闭 20 分钟。
- 加入 Alexa Fluor 488 标记的鬼笔环肽(工作浓度为 5 单位/µl;储备液为 200 单位/ml 溶于甲醇)。
- 通过灌流 PBS 洗涤 20 分钟。
- 使用共聚焦显微镜配备的 100X 水浸物镜进行成像。
6. 电生理记录
- 使用P-87型微电极拉制仪制备铝硅酸盐玻璃膜片电极(电极电阻为2-5 MΩ)。设计膜片电极时,应使其尖端直径完全覆盖整个突触前终末的直径。
- 通过将膜片电极在50-60 psi压力下浸入PDMS23中进行聚二甲基硅氧烷(PDMS)包被(将一段内径为0.89 mm的硅胶管连接至氮气钢瓶,并接入膜片电极后端),然后使用热风枪干燥。或者,在复式显微镜下手动对电极进行PDMS包被,尽可能靠近尖端处涂抹涂层。
- 使用微电极抛光仪(microforge)进行火焰抛光(采用安装在复式显微镜载物台上的自制铂丝加热装置)。
- 通过荧光显微镜识别显示出标记的突触前终末的孤立轴突。
- 使用注射器将记录液(用于分离Ca2+电流;以10 mM CaCl2或90 mM BaCl2作为电荷载体,HEPES缓冲至pH 7.6,渗透压为270 mOsm)注入膜片电极中。
- 将膜片电极插入电极夹持器,并使用电动操纵器MP225将其定位至浴槽上方。轻柔地将膜片电极 lowered 放入浴液中,并对准荧光识别出的突触前终末表面。
- 缓慢推进膜片电极直至与细胞膜接触。此时,通过连接在电极夹持器上的吸管施加轻柔的口吸,形成吉欧姆(gigaohm)密封。
- 为实现记录单通道Ca2+电流所需的极低背景噪声水平,使用配备冷却前置放大器的Axopatch 200B放大器进行记录。以20-50 kHz采样频率采集数据,并使用5 kHz贝塞尔滤波器进行滤波。使用Axograph X软件进行数据采集。
- 采用标准阶跃刺激方案,以10 mV为增量进行刺激。在阶跃刺激方案之前加入预脉冲,以确保Ca2+通道的最大激活。在阶跃方案中加入10 mV的漏电流校正脉冲,用于后续分析中扣除漏电流。
访问受限。请登录或开始试用以查看此内容。
结果
该解离方案可获得健康且功能完整的分离性网状脊髓轴突,其不含突触后投射图2f,但仍保留功能性的突触前终末,能够进行诱发的突触小泡胞吐和内吞作用图4c和图4d。在光学显微镜下可清晰辨认分离的网状脊髓轴突区域,该区域无其他神经元突起干扰,从而可无阻碍地接触网状脊髓轴突膜图2f。轴突在解离后仍保持结构完整性。采用全细胞膜片钳技术对分离轴突进行记录,并灌注Alexa Fluor 488 肼。染料在轴突内均匀分布,且未观察到染料从轴突泄漏图4a。
访问受限。请登录或开始试用以查看此内容。
讨论
我们的解离方案具有重要意义,能够获得孤立的网状脊髓轴突,这些轴突不含突触后投射图2f,但仍保留功能性的突触前终末图4c 和图4d。由于不存在突触后结构与突触前终末相对,因此可直接记录单个突触前终末的突触前释放面膜,这在此前的中枢突触中无法实现,仅在两种杯状突触前终末中成功实现:鸡睫状神经节的杯状突触7-10和大鼠的杯状终末11,12。通过使用FM 1-43标记再循环囊泡簇,可识别出在电镜水平上已被证实具有简单单活性区的单个突触前终末21,并可对其进行靶向记录图4c 和图4d。可在单个突触前终末的释放面膜上记录到Ca2+电流图4f。直接从单个突触前终末的释放面膜记录Ca2+电流具有重要意义,因为这是首次在中枢突触上实现此类记录。该制备方法的生理相关性体现在轴突在解离后仍保持功能,使得所记录的突触前终末具有与完整...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性财务利益或其他利益冲突。
致谢
本工作获得了美国国立神经疾病与卒中研究所(NINDS)RO1NS52699 和 MH84874 项目对 SA 的资助。
我们感谢伊利诺伊大学芝加哥分校生物科学系的 Dave Featherstone 博士为我们提供了免疫组织化学实验中使用的缝合胶。感谢 Michael Alpert 对本文手稿的评论和校对。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 µm 注射器滤膜 | EMD Millipore | SLGV004SL | |
| 22 x 60 mm 盖玻片 | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 标记的山羊抗兔二抗 | Invitrogen/Life Technologies | A21070 | |
| 防冻液 | Prestone | ||
| 硼酸 | Sigma-Aldrich | B7660 | |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | |
| 明场光源 | Dolan-Jenner | Fiberlite 180 | |
| 氯化钙 | Sigma Aldrich | C4901 | |
| 来自溶组织梭菌的 I 型胶原酶 | Sigma-Aldrich | C9891 | |
| 盖玻片 | Fisher-Scientific | 12-545-J | |
| 右旋糖 | Sigma-Aldrich | D9559 | |
| 数字 CCD 相机 | Hamamatsu | C8484-03G01 | |
| 解剖精细镊子 | Fine Science Tools | 91150-20 | |
| 解剖镊子 | Fine Science Tools | 11251-20 | |
| 解剖显微镜 | Leica Biosystems | Leica MZ 12 | |
| 解剖剪刀 | Fine Science Tools | 15025-10 | |
| 精细解剖剪刀 | Fine Science Tools | 91500-09 | |
| 超精细解剖剪刀 | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| 甘氨酸 | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| 高真空润滑脂 | Dow-Corning | ||
| 盐酸 | Fisherbrand | SA-56-500 | |
| 浸油 | Fisher-Scientific | M2000 | |
| 工业级氮气罐 | Praxair | UN1066 | |
| 昆虫针 | Fine Science Tools | 26002-10 | |
| 液体缝合胶 | Braun Veterinary Cair Division | 8V0305 | 本实验所用缝合胶由其他实验室提供,目前已停产。我们已从 Aesculap(Ts1050071FP)采购 Histoacryl 缝合胶用于后续实验 |
| 氯化镁 | Sigma-Aldrich | M2670 | |
| 甲醇 | Sigma-Aldrich | 154903 | |
| 脱脂干奶粉 | Cell Signaling Technology | 9999S | |
| P-87 微量移液器拉制仪 | Sutter Instruments | ||
| 多聚甲醛 | Sigma-Aldrich | P6148 | |
| 灌流泵 | Cole-Palmer | Masterflex C/L | |
| 培养皿 100 x 15 mm | Fisher-Scientific | 875712 | |
| 培养皿 35 x 10 mm | Fisher-scientific | 875712 | |
| 聚-D-赖氨酸氢溴酸盐 | Sigma-Aldrich | P1024 | 分子量 > 300,000 |
| 氯化钾 | Sigma-Aldrich | P9333 | |
| 磷酸二氢钾 | Sigma-Aldrich | P5379 | |
| 一抗 R 型钙通道抗体 | Alomone Labs | ACC-006 | |
| 来自灰色链霉菌的蛋白酶 XIV 型 | Sigma-Aldrich | P5147 | |
| 手术刀片 | World Precision Instruments | 500240 | |
| Schott Duran 加压瓶 | Fisher-Scientific | 09-841-006 | |
| 用于涂抹胶水的硅胶管 | Cole-Palmer | 07625-26 | |
| 切片底板 | Leica Biosystems | 14046327404 | |
| 切片室 | Leica Biosystems | 14046230132 | |
| 氯化钠 | Sigma-Aldrich | S7653 | |
| 氢氧化钠 | S8045 | ||
| 磷酸氢二钠 | Sigma-Aldrich | S9763 | |
| 四硼酸钠 | Sigma-Aldrich | B3545 | |
| Sylgard 160 硅胶弹性体试剂盒 | Dow Corning | SYLGARD® 160 | 制备方法:按重量比 10:1 混合弹性体 A 和弹性体 B |
| Sylgard 184 硅胶弹性体试剂盒 | Dow Corning | SYLGARD® 184 | 制备方法:按重量比 10:1 混合弹性体与固化剂 |
| 聚四氟乙烯涂层镊子 | Fine Science Tools | 11626-11 | |
| 三卡因甲磺酸盐 | Sigma-Aldrich | A5040 | |
| 振动切片机刀片 | World Precision Instruments | BLADES | |
| 氙灯 | Nikon |
参考文献
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
访问受限。请登录或开始试用以查看此内容。
重印与许可
