将一只8天大的小鼠的神经视网膜置于4%明胶块上。通过振动切片机分离出200 µm厚的光感受器层后,经机械和酶消化法解离光感受器细胞,用于接种培养。该光感受器层可用于分子生物学、生物化学分析或移植实验。
本文内容
摘要
摘要
视网膜是中枢神经系统的一部分,具有高度有序的分层结构:从接受光线的方向来看,最远端为与视网膜色素上皮相接触的光感受器层(包括视杆细胞和视锥细胞),而最靠近内侧的是节细胞层。这种分层结构使得可通过振动切片机对光感受器层进行分离。将出生8天小鼠的神经视网膜解剖后,光感受器层面朝下平铺于20%明胶切片上,并用4%明胶包埋。使用振动切片机和双刃剃须刀片切去100 µm厚的内层视网膜,该切片包含节细胞层及以内层为主的双极细胞等。随后弃去15 µm的中间切片,再收集200 µm厚的外层视网膜组织,其中含有光感受器。通过37 °C加热去除明胶后,将外层组织碎片置于500 µl任氏液中,加入2单位活化木瓜蛋白酶,在37 °C孵育20分钟。反应通过添加500 µl含10%胎牛血清(FCS)的DMEM培养基终止,随后加入25单位DNA酶I,在室温下离心,多次洗涤以去除血清,最后将细胞重悬于500 µl DMEM培养基中,并以1 x 10⁵ 细胞/厘米²2细胞培养至第5天 体外 并通过活/死细胞检测评估其活力。实验过程中首先通过显微镜观察确定培养物的纯度,随后将细胞接种并固定于组织学载玻片上,使用兔多克隆抗SAG抗体(一种光感受器标记物)和小鼠单克隆抗RHO抗体(视杆细胞特异性标记物)进行分析,以验证纯度。此外,光感受器层(含97%视杆细胞)也可用于基因或蛋白质表达分析以及移植实验。
引言
视网膜是中枢神经系统的重要组成部分,在脊椎动物中具有保守的结构。神经视网膜的神经元呈层状排列,其中距离入射光线最远的一层为光感受器层,该层在眼球后部与视网膜色素上皮(RPE)紧密接触。视杆细胞和视锥细胞是光敏细胞,依赖对光敏感的视蛋白分子来捕获光子。这些分子被包裹在细胞结构的盘膜中,该结构位于光感受器的外段,朝向RPE方向1。这一结构在光感受器变性疾病的早期通常最先受到影响,且每天以约10%的速率更新。所谓的内层包含大多数其他神经元,用于处理来自光感受器的信号,包括双极细胞、无长突细胞、水平细胞以及神经节细胞。后者及其轴突共同构成视神经。这种层状结构高度保守,以至于当无长突细胞出现在内丛状层以外时,生物学家将其称为“移位的无长突细胞”2。神经元层分布在放射状排列的穆勒胶质细胞支架之中。双极细胞连接光感受器与神经节细胞,位于外丛状层与内丛状层之间。神经节细胞与双极细胞共同形成内丛状层。无长突细胞作为联络神经元,位于内丛状层中的双极细胞与神经节细胞之间。外丛状层则含有水平细胞。中枢神经系统中这种独特的神经元层排列结构,使得通过使用振动切片机对平铺固定的视网膜进行切片,即可实现光感受器层与内细胞层的分离。
最初,该技术用于从rd1小鼠眼中分离感光细胞,以进行移植。rd1小鼠是人类视网膜色素变性(RP)的动物模型3。rd1小鼠在Pde6b基因上携带隐性突变,该基因编码视杆细胞特异性的磷酸二酯酶β亚基。该基因的隐性突变在人类中也会导致视网膜色素变性4。在视杆细胞发生退化后,患者会丧失夜视能力;令人意外的是,不表达该突变基因的视锥细胞随后也发生退化。由于视锥细胞负责色觉和视觉敏锐度,患者会逐渐失明,目前尚未开发出有效的治疗方法。通过将野生型小鼠的感光细胞层移植到宿主小鼠体内,可延缓其视锥细胞的退化过程3,5。然而,在视杆-视锥退化模型中,移植无法替代已丢失的视杆细胞,因为视杆细胞与双极细胞之间的突触连接仅能在视网膜发育的特定阶段形成,这一阶段以Nrl基因表达的启动为标志6。感光细胞层通过手术被植入无视杆细胞的rd1视网膜的视网膜下腔,位于RPE与外层视网膜之间,此处仅存3%的原始感光细胞,即视锥细胞。术后两周,接受正常感光细胞层移植的动物中,40%的视锥细胞得以存活;相比之下,接受正常内层视网膜细胞移植或假手术的动物中,视锥细胞存活率较低。存活视锥细胞的分布覆盖了突变视网膜整个表面,并集中在移植物所在区域,这一拓扑特征表明其保护作用源于一种可扩散的分子7。
接下来,我们采用共培养系统以及条件培养基,验证了杆状细胞通过分泌一种蛋白质来发挥保护作用这一事实。8,9我们假设该蛋白将由视杆细胞持续且特异性地表达,且在疾病第一阶段视杆细胞的死亡会通过非细胞自主性方式导致保护性信号的丧失,进而引发继发性视锥细胞退变。10由于灵长类动物的中心视力依赖视锥细胞介导,这种假定的蛋白质将成为视网膜色素变性(RP)治疗中极为重要的工具。理论上,保护RP患者的视锥细胞可防止全球约150万患者失明11我们采用高内涵筛选方法和富集视锥细胞的培养模型,从视网膜cDNA文库中鉴定出一个编码杆状细胞来源的视锥细胞存活因子(RdCVF)的cDNA12RdCVF 是剪接产物 NXNL1 基因,有趣的是,该基因与编码参与氧化还原稳态的硫氧还蛋白的基因同源13该基因的第二种剪接产物RdCVFL是一种酶,可保护其靶标TAU蛋白免受氧化损伤。14RdCVF的给药可防止隐性及显性视网膜色素变性(RP)模型中视锥细胞的继发性退变及其视觉功能的丧失12,15这展示了这种创新治疗策略的两个重要方面16首先,它可以在大多数视网膜色素变性(RP)病例中以不依赖基因的方式应用。其次,与竞争性因子CNTF不同,RdCVF的存活作用与视觉功能的维持相关。17功能效应的缺失可能解释了向视网膜色素变性(RP)患者给予睫状神经营养因子(CNTF)未能产生临床获益的原因18RdCVF 很可能是介导视杆细胞与视锥细胞之间重要的存活信号之一,因为视锥细胞的挽救 体外 通过RdCVF免疫耗竭被抑制12此外,杆状细胞来源的视锥细胞存活基因的破坏会导致感光细胞功能障碍以及对氧化应激的易感性增加19.
光感受器层的使用是发现RdCVF以及一种参与神经退行性疾病的新氧化还原信号的起点20。本文描述了从光感受器层分离和培养细胞以表征RdCVF活性的实验方案。光感受器在体外培养中可维持5至7天21。该技术也可用于研究光感受器特异性基因的表达。
方案
注意:该实验程序已获得巴黎皮埃尔与玛丽·居里大学达尔文伦理委员会批准(编号:Ce5/2009/048)
1. 凝胶溶液、仪器、振动切片机、培养基和培养板的准备
- 至少在实验前一天配制20%的明胶溶液。
- 在生物安全柜中,向含有 CO 的 500 ml 瓶中加入 500 µl 庆大霉素 [10 mg/ml]2 独立培养基(CO2-i).
- 在另一个烧杯中,加入 20 ml 的 CO2-I(来自 步骤 1.1.1在加热块上于95 °C条件下持续搅拌加热15分钟。观察到溶液颜色变为黄色,表明溶液已准备好用于后续实验。
- 称取 4 g 明胶,逐渐加入上述制备的溶液中(步骤 1.1.2在95 °C下加强搅拌并加热45分钟,直至形成黄色溶液。将明胶溶液在通风橱中冷却约5分钟。
- 将4 ml明胶溶液倒入35 mm直径的培养皿中,避免引入气泡。在21 °C条件下静置30分钟。用塑料薄膜覆盖培养皿,并将培养皿倒置。可选步骤:使用前可在4 °C保存最多2个月。
- 制备4%的明胶溶液。
- 在通风橱中,加入 25 ml CO2在无菌塑料容器中加入-i培养基,置于加热块上于42 °C加热。将培养基从加热块上取下,逐渐加入1 g明胶并搅拌。迅速将容器放回加热块(42 °C),并在整个过程中保持温热。
- 设置振动切片机装置:
- 取出置于4 °C保存的含20%明胶溶液的培养皿。用手术刀将明胶切下。翻转明胶切片,用一滴超级胶将其粘附在振动切片机的黑色支撑盘上。
- 将剃须刀片折成两半,取其中一半插入振动切片机的固定夹座中。将黑色支撑圆盘安装到振动切片机装置上。将右侧的黑色旋钮打开。将固定夹座固定在振动切片机的头部。加入足量的 CO2-i 培养基加入振动切片机储液槽中,以浸没明胶块。
- 打开振动切片机,将明胶块切成三个100 µm的切片。保留明胶块以供后续使用。
- 准备 40 ml 培养基:
- 在超净工作台中配制含10%胎牛血清(FCS)的杜氏改良伊格尔培养基(DMEM)。使用pH 7.4的磷酸盐缓冲液(PBS)配制1 mg/ml的聚-D-赖氨酸溶液。
- 在96孔板中,加入2 µg/cm²的2 用多聚-D-赖氨酸包被孔板底部。将培养板置于37 °C、5% CO₂条件下孵育45分钟。2 培养箱中孵育。孵育结束后,移除 PBS,每孔加入 200 µl DMEM,再次置于 37 °C、5% CO₂ 培养箱中2 使用前置于培养箱中。
2. 整个视网膜的解剖
- 处死小鼠并去眼球:
- 根据欧盟指令2010/63的规定,通过颈椎脱位法处死小鼠。使用弯头剪刀剪下头部,并在用消毒剂对眼睛进行消毒后,将其置于直径为100 mm的培养皿中。
- 使用弯头镊子小心切断视神经以摘除眼球,随后将两只眼球放入含有无菌CO2-i培养基、温度为21 °C的35 mm培养皿中。
- 分离视网膜:
- 使用18 G针头在角膜缘处刺一个小孔,以便将剪刀插入眼球内部。将直头剪刀插入小孔,沿虹膜下方的眼球壁全周小心剪开巩膜,以去除睫状体。
- 移除角膜和晶状体,保留带有与巩膜相连视网膜的后房部分。用两把精细镊子小心去除后房内部的玻璃体,避免损伤视网膜。在视网膜/巩膜上做四个放射状切口,以便展平视网膜。
- 将眼球翻转,像剥橙子一样剥离组织。将视网膜从巩膜和视网膜色素上皮(RPE)上分离。使用精细弯头剪刀,小心地将仍附着于视神经处的视网膜分离下来。
- 用两把精细镊子从视网膜周边向中心方向,清除残留的玻璃体。确保完全去除所有玻璃体,以便视网膜能够充分展平。
- 剪去塑料移液管的尖端,用该移液管将视网膜转移至盛有CO2-i培养基的直径为35 mm的培养皿中。
3. 将平铺的视网膜密封到明胶块上
- 从振动切片机罐中移除 20 - 30 ml 的 CO2-i 培养基(此时明胶块已游离),以便对平铺的视网膜进行封固。
- 使用塑料移液管将视网膜转移至载玻片上,在转移至明胶切片前滴加一滴 CO2-i 培养基,使感光细胞面朝下贴附于明胶切片上。
- 通过移液器在视网膜与明胶块之间的一侧轻轻注入预热的 4% 明胶溶液,同时从另一侧挤出温热的明胶,从而将视网膜固定于明胶块上。
- 用巴斯德移液管吸除多余的 4% 明胶。静置 10 分钟,使组织完全密封。随后加入 CO2-i 培养基,完全浸没明胶块和刀片。
4. 视网膜切片
注意:此步骤对于获得不含其他视网膜细胞的感光细胞层至关重要(图1)。
- 从明胶块顶部开始,连续切取100 µm厚的切片以暴露视网膜。随后切取内层100–120 µm厚的切片。根据具体应用需求,该内层可弃去或保存于液氮中。在切取内层或感光细胞层时,务必保持振动切片机的速度非常缓慢(设定为1或2)。
- 对视网膜进行15 µm厚的中间切片,对应于内层与外层视网膜的交界区域。将此切片置于显微镜下观察。若未见血管,则表明已到达外层视网膜。
- 将外层视网膜(即感光细胞层)连同明胶一起切取200 µm厚的组织,并转移至直径35 mm、盛有3 ml CO2-i培养基的培养皿中。在获取所有视网膜的感光细胞层切片前,始终将其置于冰上保存。
5. 解离感光细胞
- 取出含有感光细胞层的培养皿,放入37 °C培养箱中孵育10分钟。
- 用镊子轻轻将感光细胞层从明胶上分离,并转移至盛有3 ml任氏液的新培养皿中。对每一份感光细胞层样本重复此步骤(5.2)。
- 在5 ml聚丙烯无菌管中加入2单位木瓜蛋白酶和25 µl活化液(1.1 mM EDTA;5.5 mM L-半胱氨酸;60 µM β-巯基乙醇),于含5% CO2的培养箱中37 °C孵育30分钟。木瓜蛋白酶的活化需在37 °C下完成。在此孵育期间,将感光细胞层切成约2 mm2大小的组织块(不宜过小),并将这些组织块转移至5 ml离心管中。
- 用1.5 ml任氏液对视网膜清洗两次,随后通过重力沉降法沉淀组织。移除管中残留的所有任氏液。
- 向含有活化木瓜蛋白酶的管中加入475 µl任氏液并混匀,然后将此溶液加入含有视网膜组织的管中。
- 将含有视网膜的离心管置于含5% CO2的培养箱中37 °C孵育20分钟。加入1 ml含10%胎牛血清(FCS)的DMEM培养基以终止反应。加入25 U脱氧核糖核酸酶I(DNAse I)以消化死亡细胞释放的DNA。使用1 ml移液枪小心吹打混悬细胞。在室温下以50 × g离心6分钟。
- 弃去上清液以去除血清残留,向细胞沉淀中加入含补充成分的DMEM培养基(见特定试剂与设备表格),并用1 ml移液枪小心重悬细胞。在室温下以50 × g离心6分钟。重复此步骤(5.7)一次。
6 培养感光细胞
- 采用此技术,PN8小鼠的光感受器层含有约100万至150万个细胞。将光感受器细胞以1 × 10⁵ 个细胞/cm2 的密度接种于培养板中,加入培养基,在37 °C、5% CO2 培养箱中培养5天。第5天时,根据抗体供应商提供的方法进行免疫化学和蛋白质印迹分析。
注意:终止培养及初步检测的步骤见参考文献21。
结果
除了移植之外,感光细胞层还可用于通过接种细胞建立感光细胞培养以研究细胞信号传导12,22。此外,它们也被用于研究基因表达和昼夜节律23,24。我们采用出生后第8天的野生型小鼠的感光细胞层,在无胎牛血清(FCS)条件下制备感光细胞培养,并将细胞在37 °C、5% CO2的培养箱中维持培养5天(图1E)。随后,使用4%多聚甲醛固定细胞,并根据抗体供应商提供的方法进行免疫细胞化学分析,所用抗体包括小鼠单克隆抗RHO抗体(1:250,Millipore Mab5316)或兔多克隆抗SAG抗体(1:200,由Igal Gery和David Hicks惠赠)。我们同时使用了抗RHO和抗SAG抗体(尽管抗SAG可标记视锥和视杆细胞),原因是抗SAG是比抗RHO更早出现的标记物。抗RHO抗体阳性的细胞比例低于抗SAG抗体阳性的细胞比例(图2)。这一现象可能解释为:SAG(视杆细胞阻抑蛋白)在视锥细胞中也有表达,而视锥细胞在分离的细胞层中约占感光细胞的3%;或者另一种可能是,在出生后视网膜成熟过程中,SAG的表达早于RHO25,26。
光感受器层还用于监测35日龄动物的野生型视网膜和脑组织中光感受器特异性表达的基因。RNA通过CsCl超速离心法27制备,并与小鼠DNA芯片阵列进行杂交。视紫红质(Rho)、S-抑制蛋白(Sag)和视锥转导蛋白(Gnat2)的信使RNA在视网膜中的表达明显高于脑组织(图3A)。这些基因在光感受器层(PR)中的表达较整个视网膜更为显著,而整个视网膜包含内层视网膜组织,表明这些基因确由光感受器表达。与Rho和Sag相比,Gnat2的相对表达水平表明其由分离得到的光感受器层中所含的视锥细胞表达。Rcvrn(recoverin)在光感受器层中的表达较整个视网膜有所增加(图3B)。
还利用光感受器层通过蛋白质印迹法检测RHO和GNAT2的表达,检测方法依据抗体供应商提供的方案,并与内层视网膜进行比较(图4)。注意在出生后第35天的rd1小鼠全视网膜及视网膜中,RHO和GNAT228(分别为视杆细胞和视锥细胞的标志物)均未表达。
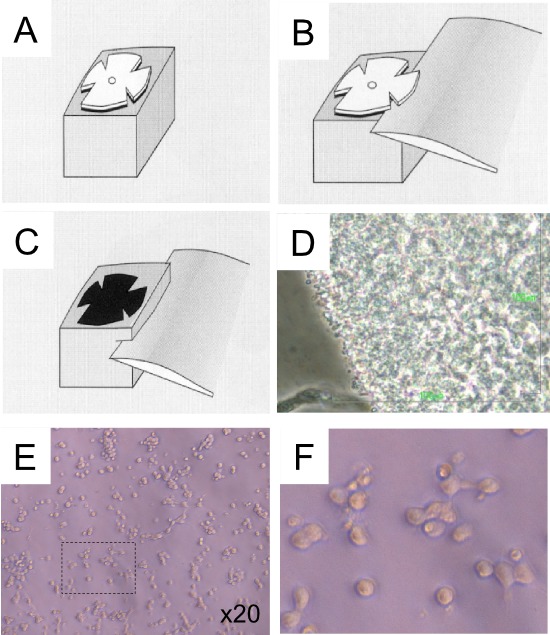
图1. 小鼠视网膜振动切片的示意图。(A) 将感光细胞面向下的平铺视网膜安装在明胶切片上。(B) 使用振动切片机对内层视网膜进行切片。(C) 添加明胶后对外层视网膜进行切片。(D) 在分离感光细胞层后,控制视网膜片段边缘处感光细胞的存在情况。绿色荧光所用的比例尺基于白光显微镜。感光细胞位于图像边缘处。(E) 培养5天后的感光细胞。(F) E图的更高倍数放大图像。
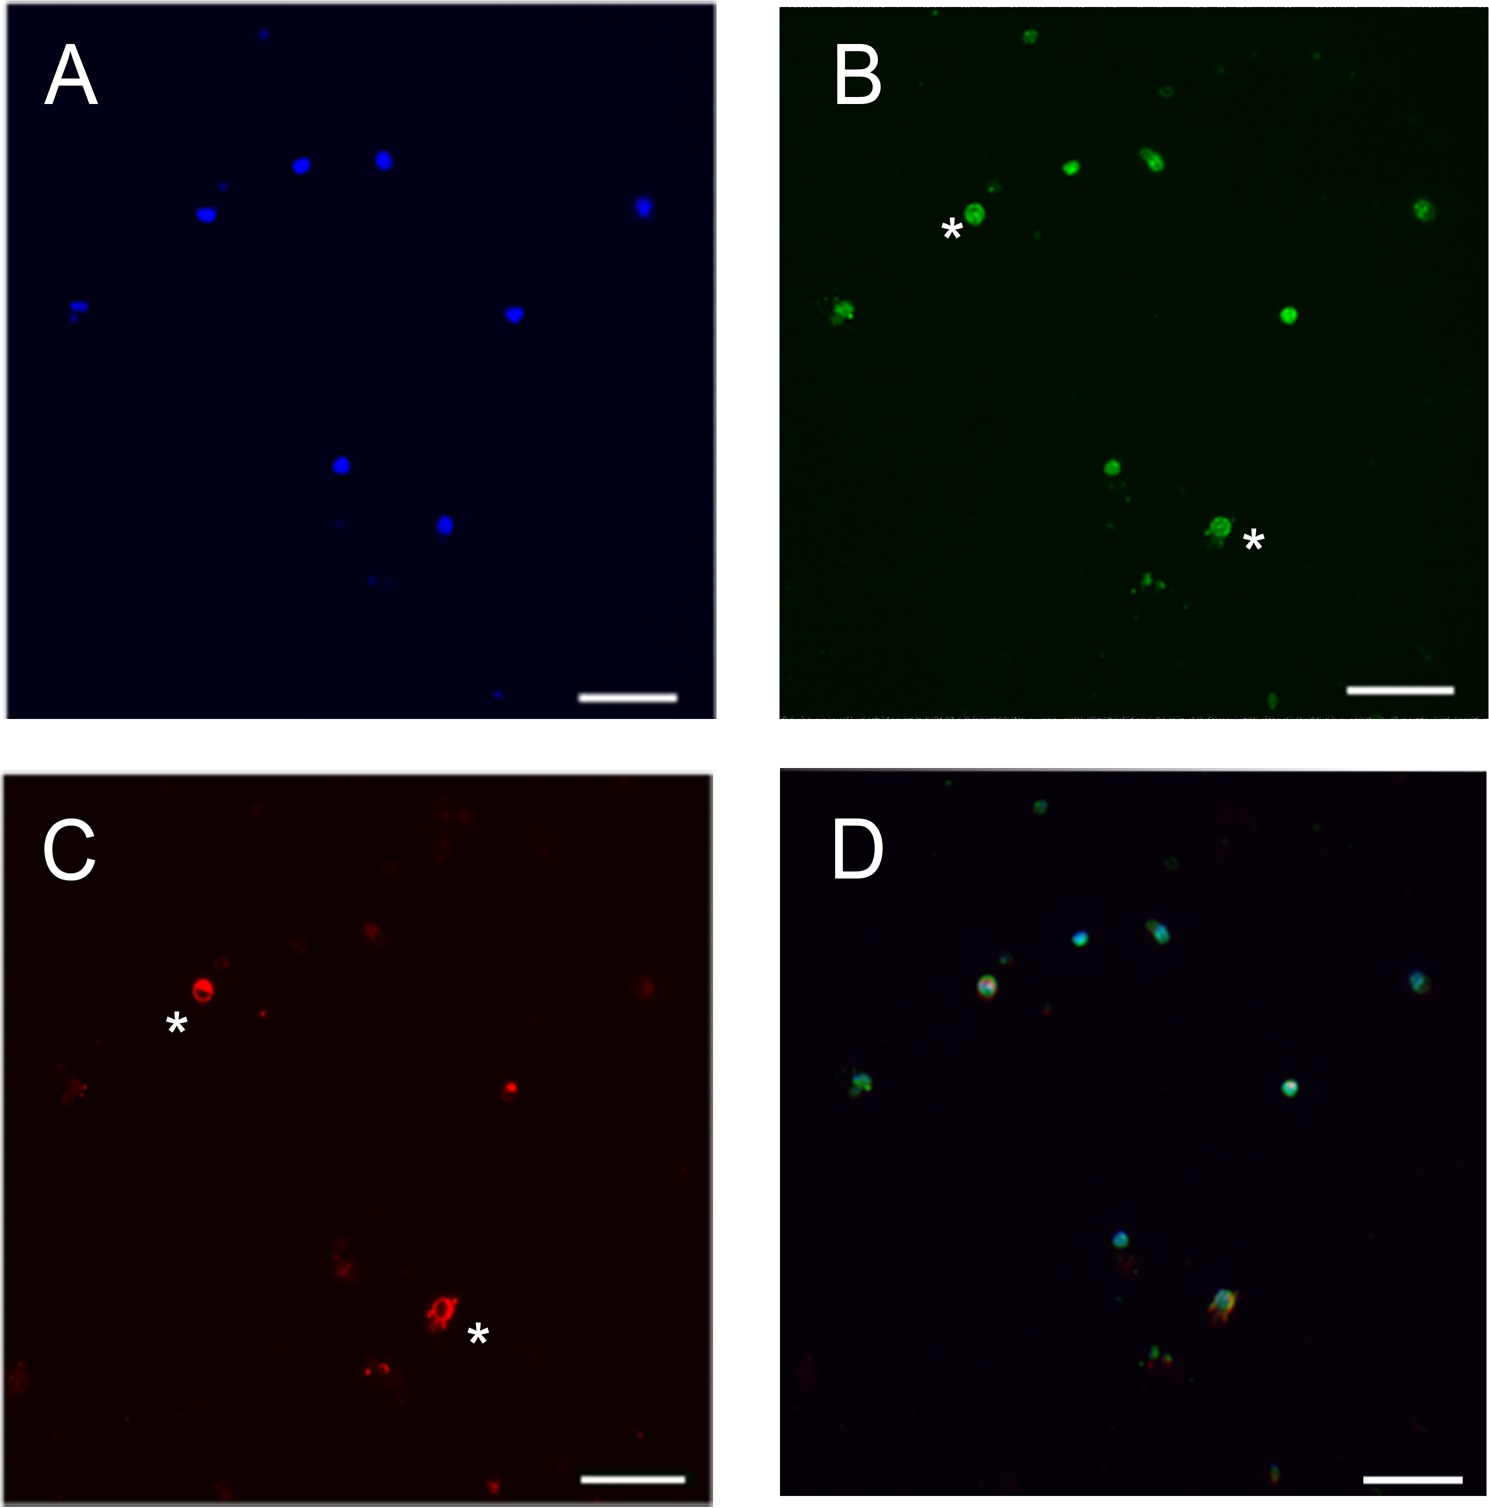
图 2. 小鼠感光细胞培养中 RHO 与 SAG 的差异表达。(A) 细胞核染色(蓝色),(B) SAG 染色(绿色),(C) RHO 染色(红色)。(D) 合并图像。由于 SAG 染色的表达早于 RHO 染色,仅有两个细胞同时标记了 SAG 与 RHO(见 *)。比例尺:23 µm。 请点击此处查看该图的放大版本。
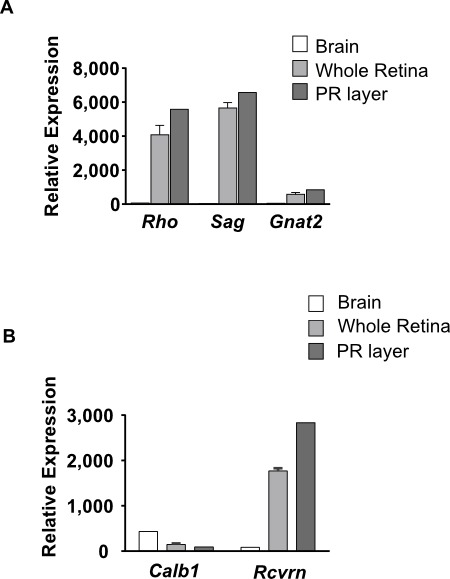
图3. 35日龄野生型动物脑组织与全视网膜及光感受器中三个基因表达水平的比较。(A) 视紫红质 (Rho)、S-阻遏蛋白 (Sag) 和视锥转导素 (Gnat2)。(B) 钙结合蛋白 (Calb1) 和视网膜恢复蛋白 (Rcvrn)。数据以相对表达量表示。相对表达量是通过知识数据库 KBaSS (http://kbass.institut-vision.org/KBaSS/) 中提供的鲁棒多阵列平均法(Robust Multi-array Average, RMA)软件对芯片数据进行标准化处理后获得的表达值。

图 4. 出生后第 35 天野生型小鼠视网膜外层中 RHO 和 GNAT2 的表达。 在内层视网膜以及出生后第 35 天 rd1 小鼠视网膜中,这两种蛋白均无表达。ACTB,β-肌动蛋白。 请点击此处查看该图的放大版本。
讨论
视网膜是生物学中的一个模式器官。对视网膜的研究促成了生物学领域的6项重大发现。它催生了首个肿瘤抑制基因RB1的发现。通过与sevenless基因的下游信号分子Son of sevenless的相互作用,揭示了受体酪氨酸激酶与MAP激酶之间的分子联系。它参与了PAX6的发现,这是首个控制器官形态发生的主控基因。它处于补体因子H(CFH)与年龄相关性黄斑变性(AMD)遗传关联研究的核心,CFH是首个通过全基因组关联分析(GWAS)鉴定出的疾病易感基因。最后,视网膜研究促成了针对莱伯先天性黑蒙症的首例成功基因治疗,这是人类遗传性疾病中首个成功的矫正性基因治疗临床试验。该器官的结构在大多数脊椎动物物种中高度保守。其结构易于操作和研究 在体 很早就促进了针对中枢神经系统这一重要组成部分的功能基因组学研究。
本文展示了如何通过振动切片机切片将视网膜的感光细胞层与内层分离。这一步骤对于获得纯化的感光细胞培养物至关重要。我们的解剖方案极大降低了视网膜色素上皮(RPE)细胞污染的可能性。
其中一个主要挑战是必须将视网膜展平,以便正确切分内层和外层视网膜。视网膜切片最适合于直径较小的视网膜,例如啮齿类动物的视网膜,而这种直径限制了当前可用材料下该技术的应用。
在开始具有生物学意义的实验之前,建议先在视网膜样品上进行练习。我们通过培养的光感受器细胞获得的代表性结果来说明该方法,并利用这些材料进行mRNA和蛋白质的表达研究。表达研究也可选择性地在通过激光捕获显微切割获得的组织切片上进行,但培养实验最好采用振动切片机进行切片。我们本可以采用激光显微切割技术并结合完全不同的策略。然而,若要使用显微切割装置收集光感受器层用于培养,则必须避免使用固定剂,这将显著增加当前方法的复杂性。
我们正在开发一种实验方案,旨在研究视网膜色素变性模型中光感受器变性过程中,振动切片上基因和蛋白质表达的动力学。我们认为,该方案的详细描述将对视网膜生物学领域的研究人员具有重要参考价值,尤其有助于蛋白质组学和代谢组学研究。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Igal Gery 和 David Hicks 提供抗 SAG 抗体,感谢 Ram Fridlich 审阅手稿。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 胞苷5′-二磷酸胆碱* | Sigma-Aldrich | C0256 | 4.7 µM 胞苷 5′-二磷酸胆碱 |
| 胞苷5′-二磷酸乙醇胺* | Sigma-Aldrich | C0456 | 2.7 µM 胞苷 5′-二磷酸乙醇胺 |
| 亚油酸ïc酸/牛血清白蛋白(BSA)* | Sigma-Aldrich | L8384 | 100 µg/ml 亚油酸ï抗坏血酸/牛血清白蛋白(BSA) |
| 三碘-L-甲状腺原氨酸* | Sigma-Aldrich | T6397 | 0.03 µ三碘-L-甲状腺原氨酸 |
| 96孔板 | Greiner bio-one | 655-095 | |
| 双目显微镜 | Leica | MZ-75 | |
| CO2 独立(CO2-i) | Life Technologies | 18045054 | |
| DMEM | Life Technologies | 41966029 | |
| 镊子 n°5 杜蒙特 | 仿生学 | 11254-20 | |
| A型猪皮明胶 | Sigma-Aldrich | G2500 | |
| GeneChip | Affymetrix | U74v2 | |
| 庆大霉素溶液 | Life Technologies | 15710049 | |
| 氢化可的松* | Sigma-Aldrich | H0888 | 0.55 µM 氢化可的松 |
| 胰岛素*(I) | Sigma-Aldrich | I1884(ITS) | 0.86 µM 胰岛素 (I) |
| 木瓜蛋白酶 | Worthington-biochem | WOLS03124 | |
| 聚-D-赖氨酸 | Sigma-Aldrich | P-6407 | |
| 孕酮* | Sigma-Aldrich | P7556 | 2.0 µM 孕酮 |
| 前列腺素* | Sigma-Aldrich | P5172 | 0.28 µM 前列腺素 |
| 腐胺* | Sigma-Aldrich | P5780 | 182 µM 亚精胺 |
| 手术刀 Albion | EMS | 72000 | |
| 剪刀 | 莫里亚 | 15396-00 | |
| 丙酮酸钠* | Sigma-Aldrich | S8636 | 1 mM 溶液焦磷酸钠 |
| 亚硒酸钠*(S) | Sigma-Aldrich | I1884(ITS) | 0.29 µM Na2SeO3 (S) |
| 牛磺酸* | Sigma-Aldrich | T8691 | 3 mM 牛磺酸 |
| 转铁蛋白*(T) | Sigma-Aldrich | I1884(ITS) | 0.07 µM 转铁蛋白(T) |
| 振动切片机装置 | Leica | VT1000-S | |
| * 补充剂 |
参考文献
- The Organization of the Retina and Visual System. Webvision. Kolb, H., Nelson, R., Fernandez, E., Jones, B. , (2014).
- Perez De Sevilla Muller, L., Shelley, J., Weiler, R. Displaced amacrine cells of the mouse retina. J Comp Neurol. 505 (2), 177-189 (2007).
- Mohand-Said, S., et al. Photoreceptor transplants increase host cone survival in the retinal degeneration (rd) mouse. Ophthalmic Res. 29 (5), 290-297 (1997).
- Daiger, S., Sullivan, L., Bowne, S. RetNet, the Retinal Information Network. , The University of Texas Health Science Center. Houston, TX. Available from: https://sph.uth.edu/retnet (2014).
- Mohand-Said, S., Hicks, D., Dreyfus, H., Sahel, J. A. Selective transplantation of rods delays cone loss in a retinitis pigmentosa model. Arch Ophthalmol. 118 (6), 807-811 (2000).
- MacLaren, R. E., et al. Retinal repair by transplantation of photoreceptor precursors. Nature. 444 (7116), 203-207 (2006).
- Yang, Y., et al. Transplantation of photoreceptor and total neural retina preserves cone function in P23H rhodopsin transgenic rat. PLoS One. 5 (10), (2010).
- Mohand-Said, S., et al. Normal retina releases a diffusible factor stimulating cone survival in the retinal degeneration mouse. Proc Natl Acad Sci USA. 95 (14), 8357-8362 (1998).
- Fintz, A. C., et al. Partial characterization of retina-derived cone neuroprotection in two culture models of photoreceptor degeneration. Invest Ophthalmol Vis Sci. 44 (2), 818-825 (2003).
- Cronin, T., Leveillard, T., Sahel, J. A. Retinal degenerations: from cell signaling to cell therapy; pre-clinical and clinical issues. Curr Gene Ther. 7 (2), 121-129 (2007).
- Wright, A. F. A searchlight through the fog. Nat Genet. 17 (2), 132-134 (1997).
- Leveillard, T., et al. Identification and characterization of rod-derived cone viability factor. Nat Genet. 36 (7), 755-759 (2004).
- Lillig, C. H., Holmgren, A. Thioredoxin and related molecules--from biology to health and disease. Antioxid Redox Signal. 9 (1), 25-47 (2007).
- Fridlich, R., et al. The thioredoxin-like protein rod-derived cone viability factor (RdCVFL) interacts with TAU and inhibits its phosphorylation in the retina. Mol Cell Proteomics. 8 (6), 1206-1218 (2009).
- Yang, Y., et al. Functional cone rescue by RdCVF protein in a dominant model of retinitis pigmentosa. Mol Ther. 17 (5), 787-795 (2009).
- Bennett, J. Strategies for delivery of rod-derived cone viability factor. Retina. 25 (8 Suppl), S47(2005).
- Komaromy, A. M., et al. Transient photoreceptor deconstruction by CNTF enhances rAAV-mediated cone functional rescue in late stage CNGB3-achromatopsia. Mol Ther. 21 (6), 1131-1141 (2013).
- Birch, D. G., Weleber, R. G., Duncan, J. L., Jaffe, G. J., Tao, W. Randomized trial of ciliary neurotrophic factor delivered by encapsulated cell intraocular implants for retinitis pigmentosa. Am J Ophthalmol. 156 (2), 283-292 (2013).
- Cronin, T., et al. The disruption of the rod-derived cone viability gene leads to photoreceptor dysfunction and susceptibility to oxidative stress. Cell Death Differ. 17 (7), 1199-1210 (2010).
- Leveillard, T., Sahel, J. A. Rod-derived cone viability factor for treating blinding diseases: from clinic to redox signaling. Sci Transl Med. 2 (26), 26ps16(2010).
- Fontaine, V., Hicks, D., Dreyfus, H. Changes in ganglioside composition of photoreceptors during postnatal maturation of the rat retina. Glycobiology. 8 (2), 183-190 (1998).
- Fontaine, V., Kinkl, N., Sahel, J., Dreyfus, H., Hicks, D. Survival of purified rat photoreceptors in vitro is stimulated directly by fibroblast growth factor-2. J Neurosci. 18 (23), 9662-9672 (1998).
- Reichman, S., et al. The homeobox gene CHX10/VSX2 regulates RdCVF promoter activity in the inner retina. Hum Mol Genet. 19 (2), 250-261 (2010).
- Sandu, C., Hicks, D., Felder-Schmittbuhl, M. P. Rat photoreceptor circadian oscillator strongly relies on lighting conditions. Eur J Neurosci. 34 (3), 507-516 (2011).
- Dorrell, M. I., Aguilar, E., Weber, C., Friedlander, M. Global gene expression analysis of the developing postnatal mouse retina. Invest Ophthalmol Vis Sci. 45 (3), 1009-1019 (2004).
- Brooks, M. J., Rajasimha, H. K., Roger, J. E., Swaroop, A. Next-generation sequencing facilitates quantitative analysis of wild-type and Nrl(-/-) retinal transcriptomes. Mol Vis. 17, 3034-3054 (2011).
- Delyfer, M. N., et al. Transcriptomic analysis of human retinal surgical specimens using jouRNAI. J Vis Exp. (78), (2013).
- Ying, S., et al. A CAT reporter construct containing 277bp GNAT2 promoter and 214bp IRBP enhancer is specifically expressed by cone photoreceptor cells in transgenic mice. Curr Eye Res. 17 (8), 777-782 (1998).
重印与许可
