空斑试验是病毒定量的金标准,通过在宿主细胞单层上使用包埋覆盖物来测定病毒滴度。尽管传统上已使用多种半固体覆盖物,本文中我们展示了针对多种病毒科,将半固体覆盖物与一种新型的液态微晶纤维素在空斑实验技术上的比较。
本文内容
摘要
摘要
空斑实验至今仍是通过计数细胞培养中的独立空斑(感染单位和细胞死亡区域)来直接定量感染性病毒颗粒及抗病毒物质的最准确方法之一。本文演示了如何进行基本的空斑实验,并说明了不同覆盖层及技术操作对空斑形成与产量的影响。通常使用固体或半固体覆盖基质(如琼脂糖或羧甲基纤维素)来限制病毒扩散,防止病毒通过液体培养基无差别传播感染。固定化的覆盖层使细胞感染局限于邻近的单层细胞,从而形成可计数的独立病灶,并进一步发展为空斑。为克服传统覆盖层固有的操作困难,一种新型液体覆盖层——含有微晶纤维素和羧甲基纤维素钠的液体体系——正被越来越多地用于替代标准空斑实验中的传统覆盖物。液体覆盖空斑实验可直接在标准的6孔或12孔板中进行,操作方式与传统技术一致,且无需特殊设备。由于其液态特性,便于加样和去除,因此微孔板格式也可作为大规模病毒滴定的快速、准确且高通量的替代方案。使用无需加热的黏性液体聚合物有助于简化实验流程,节省试剂和培养箱空间,并在传统实验室或高等级生物安全实验室中提高操作安全性,因为无需加热试剂或使用玻璃器皿。对于某些对热敏感的病毒,液体覆盖层可能比传统 覆盖层更敏感。
引言
准确分离和定量具有活性的病毒样本一直是病毒学研究中持续追求的目标。直到1952年空斑实验(plaque assay)的出现,才首次建立了对动物病毒滴度进行定性和定量计算的方法1,2。该技术最初借鉴并改良自噬菌体实验,后者此前已被用于植物生物学中测定噬菌体原液的滴度1,2。尽管此后已陆续发展并改进了其他病毒定量方法,例如免疫测定、荧光和透射电子显微镜、可调电阻脉冲传感(TRPS)、流式细胞术、重组报告系统以及定量反转录聚合酶链式反应(qRT-PCR),但这些方法均无法识别和定量具有复制能力的病毒颗粒1,3。尽管技术与方法的不断进步持续推动着该领域的发展,空斑实验仍被视为测定感染性裂解型病毒浓度的金标准1,4。
在噬斑实验中,将已知浓度范围(通常为5-100个病毒粒子)经连续稀释的裂解性病毒接种于汇合的宿主细胞单层上。感染后的细胞单层需覆盖一种固定化的 覆盖培养基,以防止病毒在增殖过程中通过液体培养基的机械流动或对流作用无差别扩散。传统上使用琼脂糖、 甲基纤维素或羧甲基纤维素(CMC)等固体或半固体覆盖物,但随着新型液体覆盖物(如Avicel5–7)的发展,液体覆盖物正成为一种越来越有吸引力的替代方案。与传统覆盖物相比,采用液体覆盖物的噬斑实验具有多项优势:覆盖物可在室温下添加,操作和去除均显著更简便。由于液体覆盖物无需预热,因此对温度敏感且不耐热的病毒也可能更易于形成噬斑。
在初次感染并加入固定覆盖物后,随着病毒感染和复制被限制在周围的单层细胞内,将开始出现单个噬斑,即细胞死亡区域。感染细胞将继续进行复制-裂解-再感染的循环,进一步扩散感染,从而形成越来越清晰且独立的噬斑。根据所用病毒的生长动力学和宿主细胞类型的不同,通常在2至14天内可观察到可见的噬斑。随后可通过标准明场显微镜对细胞单层中的噬斑进行计数,或者更常见的是,使用中性红或结晶紫对样本进行固定和复染,以便肉眼快速识别噬斑。目前有多种多样的噬斑复染方法可供选择,每种方法都有其特定的优势与局限性。结晶紫通常在收集样本时加入,且在固定并去除覆盖物之后使用,可提供快速而清晰的复染效果,在存在混合形态噬斑的情况下仍能有效识别非常微小的噬斑。中性红的优势在于可早期加入并持续与覆盖层接触,从而实现对噬斑形成过程的实时动态监测,这在研究未知病毒或其复制动力学时尤为有用。然而我们发现,使用中性红染色时,其染色对比度通常不够明显。3-(4,5-二甲基噻唑-2-基)-2,5-二苯基四氮唑溴盐(MTT)则具备多项优势:这种黄色染料可将活细胞染成深蓝色,因此可在不移除覆盖物的情况下直接计数病毒噬斑,这一点与中性红类似。MTT在活细胞与死细胞之间产生的高对比度还允许在感染后更早的时间点检测到微小噬斑,尽管长期保存样本仍需去除覆盖物8。由于结晶紫可简单地用水和酒精配制成溶液,且对混合形态噬斑具有高度敏感性,因此在本实验方案中,鉴于我们使用的是多种特征明确的病毒家族,我们选择结晶紫作为首选且简化的复染剂。
固定并染色感染的细胞单层后,通过计数噬斑来测定病毒储备液的滴度,单位为每毫升噬斑形成单位(pfu)。连续稀释之间应观察到对数级下降,根据培养皿大小,计数的噬斑数量应在5-100之间,并以阴性对照作为参考。在比较样本重复时,统计学上每计数100个噬斑,样本间差异约为10%3。使用噬斑测定法测定病毒滴度的优势在于其能够定量样本中具有感染能力的病毒颗粒的实际数量。由于多个病毒粒子可能共同感染一个细胞,因此在噬斑滴定过程中采用“单位”(units)而非“病毒粒子”(virions)这一术语1,2。
在不同生长条件及不同病毒种类之间,噬斑形态可能表现出显著差异。应记录噬斑的大小、清晰度、边缘轮廓及分布情况,因为这些特征可为相关病毒的生长特性及毒力因子提供有价值的信息。
基本的噬斑检测原理也可通过多种方式进行调整和改进,例如应用于 焦点形成检测(FFA)。FFA不依赖细胞裂解和对比染色来检测噬斑的形成,而是采用免疫染色技术,通过标记的抗体直接检测细胞内的病毒蛋白。FFA具有更高的灵敏度、感染后更短的孵育时间,最重要的是能够对非裂解性病毒进行定量,这些都是其显著优势。尽管FFA被广泛使用,但与传统噬斑检测相比,其关键限制因素在于需要合适的抗体,并且只能针对病毒蛋白亚基进行检测,而无法检测具有感染性的完整病毒颗粒4.
在本研究中,我们将讨论范围限定于经典的噬菌斑实验,描述传统固态和半固态覆盖物(琼脂糖和羧甲基纤维素)的使用方法,以及新型液态微晶纤维素覆盖物的应用。
方案
1. 细胞与试剂的准备
- 检测前一天,将与该病毒相适应的宿主细胞接种于培养板中(表1 90%–100% 汇合度时
- 配制10%甲醛的dH₂O固定液2O. 示例:将 5.56 ml 的 36% 甲醛储备液与 14.44 ml 蒸馏水混合2O (dH2O
注意:使用甲醛时应采取适当的安全操作规范并确保通风良好。 - 配制结晶紫染液:将1%结晶紫(CV)溶于20%乙醇和去离子水(dH₂O)中2O.
- 制备2倍浓度的斑块培养基(根据细胞类型确定,浓度为2倍;参见 表 2)。使用滤器过滤 0.2 µm 如有试剂非无菌,需进行过滤。
- 固定化覆盖层的制备(表3)
- 对于液体覆盖层,将Avicel用dH₂O配制成2.4%的无菌溶液2O. 为防止结块,将粉末缓慢加入含有水的烧瓶中,烧瓶内用磁力搅拌子在室温(RT)下快速搅拌,缓慢倒入Avicel,并在室温下快速搅拌。当溶液变得过于黏稠以致磁力搅拌子无法均匀混合时,改用摇床震荡混合 >30分钟,剧烈振荡以确保均匀匀浆。
注意:储备液可配制为较低浓度,但溶液可能出现分层,需重新混匀以确保均一性。羧甲基纤维素(Avicel)工作液的使用浓度范围为0.6–3%。 - 匀浆后,将溶液高压灭菌,并密封于室温保存。
- 对于琼脂糖和羧甲基纤维素(CMC)覆盖物,用dH₂O配制储备液22% 羧甲基纤维素钠(CMC)或 0.6% 琼脂糖溶液。使用搅拌子混匀,经高压灭菌或微波加热使其完全溶解。
- 对于液体覆盖层,将Avicel用dH₂O配制成2.4%的无菌溶液2O. 为防止结块,将粉末缓慢加入含有水的烧瓶中,烧瓶内用磁力搅拌子在室温(RT)下快速搅拌,缓慢倒入Avicel,并在室温下快速搅拌。当溶液变得过于黏稠以致磁力搅拌子无法均匀混合时,改用摇床震荡混合 >30分钟,剧烈振荡以确保均匀匀浆。
2. 稀释与感染
- 接种后的第二天,在开始实验前目视检查细胞的融合度和存活率。确保细胞形态正常,并形成约90%融合的单层细胞。
- 对感染性样品进行10倍系列稀释。使用适用于病毒增殖的细胞培养基作为稀释液(表2)。根据待测病毒的预期滴度调整所需稀释倍数,并始终设置未感染的对照样品,以独立确认细胞存活率并辅助噬斑识别。
- 从系列稀释液中取样,接种细胞并感染45分钟至1小时(表1)。使用足量的接种物覆盖细胞表面,同时尽可能减少体积,以最大化病毒与单层细胞的接触(表4)。每隔20分钟轻轻摇动培养板,确保接种物分布均匀,并防止单层细胞干燥。
- 感染完成后,直接向孔中的接种物上覆盖适量的固定化培养基(表2),使用2倍浓度噬斑培养基与所选固定化覆盖物(CMC、琼脂糖或Avicel)按1:1比例混合。轻轻摇动以混匀。
- 对于液体覆盖层,将预热的2倍浓度噬斑培养基与室温储存的1.2–2.4% Avicel原液按1:1比例混合,制备成终浓度为0.6–1.2%的Avicel工作覆盖液。
- 对于琼脂糖覆盖层,使用预热的2倍浓度噬斑培养基与加热后的0.6%琼脂糖储备液按1:1比例混合,置于56 °C水浴中平衡温度30分钟,最终获得0.3%的琼脂糖覆盖浓度。
- 对于CMC覆盖层,配制2%的储备溶液,并参照琼脂糖覆盖层的方法进行处理。
- 将覆盖层加入单层细胞时,始终将热的琼脂糖或CMC置于56 °C水浴中平衡温度,以防止损伤细胞单层。确保溶液温热但不烫手,避免细胞死亡及病毒滴度降低。大多数琼脂糖覆盖液在低于42 °C时开始凝固,操作时应迅速进行,或分批少量配制,以防处理过程中提前凝固。
- 加入覆盖层后,将培养板置于培养箱中孵育,以形成清晰可计数的独立噬斑。噬斑形成时间因所分析病毒种类而异,通常需要2–14天(表1)。
注意:液体覆盖层的培养板一旦放入培养箱后,不得移动。孵育期间的任何移动均会导致噬斑拖尾或模糊。琼脂糖和CMC覆盖层为半固体,可在孵育期间定期移动或在光学显微镜下观察,以监测噬斑发育情况。
3. 细胞固定与染色
- 为固定细胞,倒出或吸除Avicel覆盖层,并使用10%甲醛溶液固定细胞30分钟至过夜(<6 孔板每孔 1 ml
- 对于琼脂糖或羧甲基纤维素,直接将甲醛溶液加入覆盖层中,作用1小时至过夜。
注意:样本可在固定液中长期保存,前提是固定液不发生蒸发和干涸,否则可能导致单层细胞结构变形。
- 对于琼脂糖或羧甲基纤维素,直接将甲醛溶液加入覆盖层中,作用1小时至过夜。
- 固定后、染色前,弃去甲醛,并用流水或刮勺手动移除琼脂糖和羧甲基纤维素(CMC)的半固体胶塞。染色前,用水冲洗Avicel噬斑,以去除残留的覆盖物/固定剂。
- 染色时,用少量结晶紫溶液覆盖细胞,孵育约15分钟。必要时轻轻摇动培养板,以确保染色均匀。
- 轻轻用水洗去结晶紫染色液。固定、染色并干燥后,可将噬斑长期保存以供后续分析。
4. 确定病毒滴度
- 对每个孔中的噬斑进行计数,并对同一稀释度的技术重复孔取平均值。对于较大的板型,应舍弃噬斑数量少于5个或多于100个的孔。注意记录噬斑的大小和形态。阴性对照应呈现均匀的单层细胞,可作为参考对照。
- 通过取某一稀释度下噬斑的平均数量与总稀释倍数的倒数,计算原始样品的病毒滴度。

注意:以 1 x 10⁻⁷ 稀释度的两个重复为例,若分别计数到 30 和 32 个噬斑 [31(平均值)/10-7 (稀释度)× 0.4 ml(接种量)],则滴度为 7.75 x 10⁸ pfu/ml。
结果
空斑实验能够准确测定病毒滴度,依赖于多个因素:合适的宿主细胞选择、适宜的培养基和细胞与病毒存活所需的生长条件、病毒增殖的固定化,以及准确确定病毒孵育时间,以确保有足够的时间形成清晰且可计数的空斑。
本研究选取了三个代表性病毒科的病毒,以展示不同样本类型在覆盖物选择、孵育时间以及空斑形态上的差异。委内瑞拉马脑炎病毒(VEEV)作为一种(+)ssRNA病毒模型被选中,该病毒可引起马类和人类的严重疾病,代表披膜病毒科(Togaviridae)。中国台湾株流感B病毒是一种主要感染人类的分段(-)ssRNA病毒,代表正黏病毒科(Orthomyxoviridae)。裂谷热病毒(RVFV)是一种主要感染节肢动物、反刍动物和人类的(-)ssRNA虫媒病毒,被选为代表布尼亚病毒科(Bunyaviridae)的代表病毒。
对于裂谷热病毒(RVFV)(图1),病毒滴度的测定采用重组减毒活疫苗MP12株的储备液,在12孔板中分别使用羧甲基纤维素(CMC)、琼脂糖或Avicel覆盖层,并在感染后72小时(hpi)平行培养。图A展示了稀释度从10-4至10-7的代表性孔板结果。使用CMC和琼脂糖覆盖层形成的噬斑较小、透明且界限清晰,呈明确的圆形边缘。而液体覆盖层产生的噬斑数量略多、体积较大,但边界较不清晰。图B比较了不同覆盖层条件下的病毒滴度,结果显示三种覆盖层的检测性能相当。
为了在MP12的覆盖物之间获得更清晰的视觉比较,并通过更大的样本量来确定实验的可重复性,还以三份重复的方式试验了6孔板(图2)。在6孔板体系中,使用羧甲基纤维素(CMC)覆盖物形成的噬斑小于琼脂糖或液体覆盖物,而后两者的噬斑大小相近。尽管三种覆盖物之间的病毒滴度相似(D图),但由于琼脂糖和液体覆盖物中形成的噬斑更大,更易于计数。
与RVFV相比,VEEV在不同覆盖物中的滴度及蚀斑形态表现出显著差异(图3A)。在12孔板体系中,羧甲基纤维素(CMC)覆盖物形成的蚀斑形态清晰、界限分明,但牺牲了蚀斑大小和检测灵敏度(图B)。与CMC不同,琼脂糖和液体覆盖物产生的蚀斑明显更大,表明对病毒的抑制作用较低,且对VEEV复制的检测灵敏度更高。这一结果此前已在Juarez et al.4发表的论文中通过单独比较琼脂糖与CMC得到证实。尽管琼脂糖和液体覆盖物产生的蚀斑大于CMC,但其边界模糊,难以在12孔板体系中准确计数,其中液体覆盖物导致的边界扩散最为严重。当在6孔板中进行蚀斑实验时(图4),更大的6孔板体系避免了在12孔板中因蚀斑过大而难以区分的问题,琼脂糖和液体覆盖物在蚀斑清晰度和灵敏度方面均优于CMC覆盖物(图4D)。
与RVFV或VEEV相比,流感病毒在蚀斑实验中带来了一些独特的挑战,例如需要外源性蛋白酶。过去已有充分文献记载,流感病毒对不同覆盖物选择具有敏感性,即使仅使用不同品牌的琼脂糖,也会观察到显著差异。9.
有趣的是,对于流感B型中国台湾株,使用CMC作为覆盖物会产生明显更小的蚀斑,难以计数且结果难以可靠判读(图5A)。而使用琼脂糖覆盖物可获得最佳的蚀斑效果(图C),背景染色较深(可能是由于单层细胞活力更高),与液体覆盖物相比(图B),蚀斑更清晰、轮廓更分明。
与琼脂糖和羧甲基纤维素(CMC)等固体和半固体覆盖物相比,液体聚合物具有明显的优势,主要体现在其易于施加和去除。半固体覆盖物需要加热,且在操作和去除过程中可能出现凝固问题。为了充分利用这些优势,并评估Avicel在RVFV研究中高通量应用的可行性,试验采用了96孔板体系,并测试了不同浓度的覆盖物(图6)。针对RVFV MP-12病毒,Avicel的终浓度分别设置为0.6%和1.2%,每个条件设四个重复。覆盖物的施加和去除过程简便,各重复之间以及不同浓度之间均未观察到明显差异,显示出高度的可重复性。在结果判读时,蚀斑清晰可辨,肉眼即可准确计数,证明了液体覆盖物在RVFV研究中高通量应用的可行性。

图1: 利用12孔板进行的裂谷热病毒(RVFV)蚀斑覆盖层比较。 将Vero细胞以每孔2.5 × 10⁵ 个接种于12孔板中,并使用相同系列稀释起始样品的MP12病毒液200 µl进行感染。感染后,分别加入1.5 ml含0.3%琼脂糖、0.6% Avicel或1% CMC(终浓度)的覆盖层,以直接比较不同覆盖层的效果,如A图所示。B图展示了蚀斑计数结果及病毒滴度测定。

图 2: 利用6孔板进行的裂谷热病毒(RVFV)蚀斑覆盖层比较。 将Vero细胞以每孔5 × 10⁵ 个接种于6孔板中,并使用相同系列稀释的MP12起始样品以400 µl感染。分别覆盖3 ml含0.3%琼脂糖、0.6% Avicel或1% CMC的覆盖层,以直接比较不同覆盖层的效果,如A、B和C图所示。另设独立实验,操作完全同A-C图所述,蚀斑计数及滴度测定结果见D图(N = 3)。
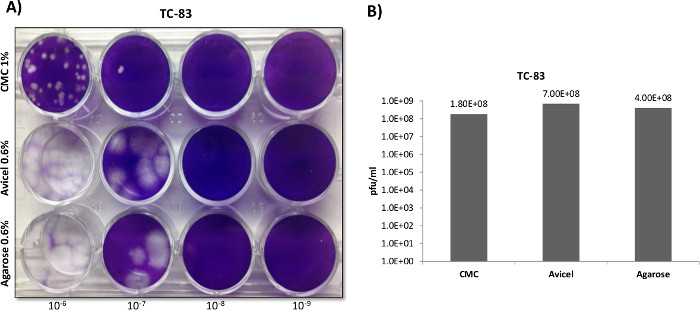
图 3: 利用 12 孔板进行的委内瑞拉马脑炎病毒(VEEV)斑块覆盖层比较。 将细胞以每孔 2.5 × 10⁵ 个的密度接种于 12 孔板中,并使用相同系列稀释的委内瑞拉马脑炎病毒 TC-83 疫苗株起始样品 200 µl 进行感染。感染后,分别覆盖 1.5 ml 的 0.3% 琼脂糖、0.6% Avicel 或 1% 羧甲基纤维素(CMC)覆盖层,以直接比较不同覆盖层的效果,如 A 图所示。斑块计数及滴度测定结果见 B 图。

图4: V利用6孔板进行EEV蚀斑覆盖比较 Veros 以 5 x 10⁵ 6孔板中的细胞并进行感染 400 µl 使用相同系列稀释的VEEV TC-83起始样品进行感染。感染后,分别覆盖3 ml的0.3%琼脂糖、0.6% Avicel或1% CMC,以直接比较这三种覆盖物的效果,如图A、B和C所示。另设独立实验,操作同图A–C所述,通过计数空斑并测定滴度,结果展示于图D(N = 3)。
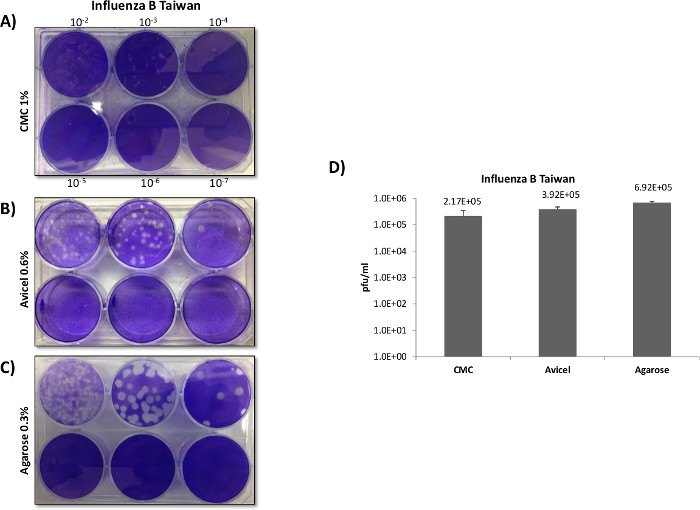
图5: 流感病毒噬斑覆盖物比较。 将MDCK细胞以每孔5 × 10⁵个细胞的密度接种于6孔板中,并使用同一样品经连续稀释后的起始液400 µl进行感染。在生长培养基或覆盖物中均未添加胎牛血清(FBS),因为FBS可通过抑制某些病毒融合所需的蛋白酶而抑制流感病毒的传播。在所有覆盖物中加入TPCK-胰蛋白酶,以促进病毒与宿主细胞的融合和侵入。感染后,分别加入3 ml的0.3%琼脂糖、0.6% Avicel或1% CMC覆盖物,以直接比较不同覆盖物的效果,如A、B和C图所示。另设独立实验,操作完全同A–C图所述,噬斑计数及滴度测定结果见D图(N = 3)。尽管对CMC中的噬斑取了平均值,但由于其边界弥散且噬斑尺寸极小,难以进行可靠计数。

图6: 高通量噬斑覆盖层实验。 将Vero细胞以每孔3 × 10⁴ 个细胞的密度接种于96孔板中,每孔加入50 µl相同系列稀释的RVFV MP12起始样品,感染1小时,设四个重复。为测试液体覆盖层在高通量条件下的可行性与可重复性,分别尝试了0.6%和1.2%的Avicel终浓度,见图A和图B。
| RVFV | VEEV | 流感病毒B型 | |
| 细胞类型 | Vero | Vero | MDCK |
| 感染时间 | 1 hr | 1 hr | 45 min |
| 孵育时间 | 3 days | 2 days | 3 days |
表1: 噬斑实验接种条件与细胞类型
| RVFV | VEEV | 流感病毒B型 | |
| 细胞类型 | Vero | Vero | MDCK |
| 培养基类型 | DMEM1 | DMEM1 | DMEM2 |
| 蚀斑培养基 | 2xEMEMA | 2xEMEMA | 2xEMEMB |
1. 添加10%胎牛血清、1% L-谷氨酰胺、1%青霉素/链霉素的杜尔贝科改良伊格尔培养基。
2. 添加1% L-谷氨酰胺、1%青霉素/链霉素、0.2%牛血清白蛋白、0.025% HEPES、50 µg/ml DEAE-葡聚糖的杜尔贝科改良伊格尔培养基。
A. 2倍最低必需培养基(500 ml)添加5%胎牛血清(25 ml)、1%最低必需氨基酸(5 ml)、1%丙酮酸钠(5 ml)、1% L-谷氨酰胺(5 ml)、2%青霉素/链霉素(10 ml)。
B. 2倍最低必需培养基(500 ml)添加0.2%牛血清白蛋白、1%最低必需氨基酸(5 ml)、50 µg/ml DEAE-葡聚糖、0.025% HEPES、TPCK处理的胰蛋白酶*。
*在配制前,向将用于与琼脂糖混合形成噬斑的每25 ml培养基中加入1 µl浓度为2 µg/ml的TPCK-胰蛋白酶储备液。
表2: 噬斑及病毒/细胞生长培养基
| RVFV | VEEV | 流感B病毒 | |
| 细胞类型 | Vero | Vero | MDCK |
| 感染时间 | 1 hr | 1 hr | 45 min |
| 孵育时间 | 3 days | 2 days | 3 days |
只要保持无菌状态,覆盖溶液在配制后不会过期。
表3: 覆盖层储备液
| 6 孔板 | 12 孔板 | 96 孔板 | |
| 每孔细胞数 | 5 x 10⁵ | 2.5 x 10⁵ | 3 x 10⁴ |
| 接种液体积(μl) | 400 | 200 | 50 |
| 覆盖液体积(ml) | 3 | 1.5 | 0.100 |
表4:培养板规格
讨论
成功进行噬斑实验最关键的因素在于针对特定病毒培养物优化实验方案,因为不同条件可能存在显著差异。需要考虑的关键点包括:宿主细胞与目标病毒的相容性、适当的病毒生长条件、足够的稀释范围以清晰区分噬斑,以及针对相应细胞和病毒选择合适的覆盖物和染色方法。
尽管委内瑞拉马脑炎病毒(VEEV)和裂谷热病毒(RVFV)均可在非常相似的条件下生长,并利用许多相同的宿主细胞类型,但它们在空斑形态和生长动力学方面存在显著差异。在使用Vero细胞进行空斑实验时(Vero细胞传统上被用作出血热病毒和甲病毒的增殖与指示细胞系),VEEV通常比RVFV达到更高的滴度,复制动力学更快,在感染后48小时即可形成较大且均一的空斑4,10–12。相比之下,RVFV需要72小时才能形成空斑,且空斑通常更小,大小不一。
与裂谷热病毒(RVFV)和委内瑞拉马脑炎病毒(VEEV)相反,流感病毒具有高度的宿主细胞特异性,通过组织培养扩增可能较为困难。对于流感病毒而言,病毒进入和融合通常由细胞表面受体与病毒糖蛋白血凝素(HA)结合而启动,HA通过与宿主细胞表面的α-唾液酸受体结合,介导病毒进入靶细胞。HA是一种三聚体糖蛋白,存在于所有流感病毒的膜包膜中,需由特定宿主细胞蛋白酶将其切割为HA1和HA2两个亚基。更为复杂的是,这些切割位点在不同病毒株之间常存在差异13。由于能够切割HA的蛋白酶仅在特定组织中表达,因此通常需在细胞培养基中添加蛋白酶,以促进病毒与选定宿主细胞的融合和进入13。TPCK-胰蛋白酶即为一种常用于细胞培养的蛋白酶,在MDCK细胞和Vero细胞中均可使用:通过蛋白水解激活病毒HA,从而在无胰蛋白酶失活血清的条件下实现多轮复制14,15。
正如本研究及其他研究所表明的,病毒生命周期的差异会影响覆盖物的选择、培养板的格式以及样本收集时间,不同类别和种类的病毒之间存在显著差异。在本研究中,对于裂谷热病毒(RVFV)和乙型流感病毒,琼脂糖覆盖物在较高滴度下产生的蚀斑比羧甲基纤维素(CMC)或液体覆盖物更清晰,进一步证明了其在多种病毒和细胞类型中的适用性。使用较低终浓度的琼脂糖可显著减少固体凝块的形成,从而简化染色步骤。总体而言,CMC作为三种测试病毒的覆盖物效果最差,对乙型流感病毒仅产生非常小且边界不清的蚀斑。尽管CMC整体表现出最不理想的特性,但在生长迅速且毒力极强的病毒中,其应用可能具有优势,因为它似乎能在滴度仅有轻微下降的情况下有效缩小蚀斑尺寸。液体覆盖物则表现出最高的通用性,其制备极为简便,操作更易,且在所有选定病毒中的表现均可与琼脂糖相媲美。在高通量96孔板体系中,由于不会发生类似传统覆盖物的凝固现象,液体覆盖物的应用与移除不受阻碍,并能提供准确且一致的结果。使用液体覆盖物时需注意其不透明的颜色特性,以及无法在收集前对蚀斑形成过程进行监测,因此该方法仅适用于复制动力学特征已知的病毒。
斑点测定条件的微小改动可能显著影响实验结果,因此始终有必要对任何新系统或技术进行评估和验证。尽管并非在所有情况下都存在经过优化和标准化的斑点测定方案,但本报告展示了传统及新型液体覆盖层在斑点测定中的通用性和操作简便性,同时为用户进一步优化提供了充分的背景支持。
披露
作者声明无任何与本实验方案或所描述产品相关的披露事项,亦无竞争利益或经济利益。
致谢
我们感谢FMC BioPolymer USA提供Avicel产品样品。本研究工作得到了国防威胁降低局(Defense Threat Reduction Agency)授予KK的资助HDTRA1-13-1-0005以及美国国立卫生研究院(NIH)研究资助1R15AI100001-01A1的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 用于组织培养的6孔CellStar板 | Greiner Bio-One | 658 160 | |
| 用于组织培养的12孔CellStar板 | Greiner Bio-One | 665 180 | |
| 用于组织培养的96孔CellStar板 | Greiner Bio-One | 655 180 | |
| 96孔2 ml深孔板 | USA Scientific | C15046314 | 用于系列稀释 |
| DMEM | Quality Biologicals | 112 013 101 | 细胞培养基/稀释液 |
| 2x EMEM(用于蚀斑实验) | Quality Biologicals | 115 073 101 | 预热至37 °C |
| MEM 100x | Cellgro | 25 025 Cl | |
| 丙酮酸钠 | Cellgro | 25 000 Cl | |
| 青霉素-链霉素 | Gibco | 15140 122 | |
| L-谷氨酰胺 | Gibco | 25030 081 | |
| HyClone FBS | Thermo Scientific | SH30910.03 | 使用前于62 °C热灭活30分钟 |
| 牛血清白蛋白 | Sigma Aldritch | A7030-50G | |
| TPCK处理的胰蛋白酶 | Sigma Aldritch | T1426-50mg | 分装保存,避免反复冻融 |
| HEPES | Gibco | 15630-080 | |
| DEAE-葡聚糖 | Sigma Aldritch | D9885-10G | |
| 结晶紫 | Sigma Aldritch | C3886-25G | |
| 甲醛溶液 | Sigma Aldritch | F8775-500ml | |
| 变性乙醇(试剂级) | Sigma Aldritch | 362808-1L | |
| Avicel RC-591 NF | FMC BioPolymer USA | RC-591 NF | 重悬时需剧烈震荡 超过>30分钟以充分混匀 |
| UltraPure琼脂糖 | Invitrogen | 16500-100 | |
| 羧甲基纤维素钠盐(中等黏度) | Sigma Aldrich | C4888 |
参考文献
- Cooper, P. D. The plaque assay of animal viruses. Adv. Virus Res. 8, 319-378 (1961).
- Dulbecco, R., Vogt, M. Some problems of animal virology as studied by the plaque technique. Cold Spring Harb. Symp. Quant. Biol. 18, 273-279 (1953).
- Hartley, J. W., Rowe, W. P. Tissue culture cytopathic and plaque assays for mouse hepatitis viruses. Proc. Soc. Exp. Biol. Med. Soc. Exp. Biol. Med. N. Y. 113, 403-406 (1963).
- Juarez, D., Long, K. C., Aguilar, P., Kochel, T. J., Halsey, E. S. Assessment of plaque assay methods for alphaviruses. J. Virol. Methods. 187, 185-189 (2013).
- Shurtleff, A., Keuhne, A., Biggins, J., Keeney, A. Use of alternative overlays in plaque assays. , USAMRIID. Fort Detrick, MD USA. (2011).
- Shurtleff, A. C., et al. Standardization of the Filovirus Plaque Assay for Use in Preclinical Studies. Viruses. 4, 3511-3530 (2012).
- Matrosovich, M., Matrosovich, T., Garten, W., Klenk, H. -D. New low-viscosity overlay medium for viral plaque assays. Virol. J. 3, 63(2006).
- Klebe, R. J., Harriss, J. V. A technically simple ‘non-lethal’ vital staining procedure for viral plaque and cell transformation assays. Arch. Virol. 81, 359-362 (1984).
- Gaush, C. R., Smith, T. F. Replication and plaque assay of influenza virus in an established line of canine kidney cells. Appl. Microbiol. 16, 588-594 (1968).
- Abiko, C., et al. Outbreak of Human Metapneumovirus Detected by Use of the Vero E6 Cell Line in Isolates Collected in Yamagata, Japan, in 2004 and 2005. J. Clin. Microbiol. 45, 1912-1919 (2004).
- Baer, A., et al. Induction of DNA damage signaling upon Rift Valley fever virus infection results in cell cycle arrest and increased viral replication. J. Biol. Chem. 287, 7399-7410 (2012).
- Austin, D., et al. p53 Activation following Rift Valley Fever Virus Infection Contributes to Cell Death and Viral Production. PLoS ONE. 7, (2012).
- Böttcher-Friebertshäuser, E., Stein, D. A., Klenk, H. -D., Garten, W. Inhibition of influenza virus infection in human airway cell cultures by an antisense peptide-conjugated morpholino oligomer targeting the hemagglutinin-activating protease TMPRSS2. J. Virol. 85, 1554-1562 (2011).
- Youil, R., et al. Comparative study of influenza virus replication in Vero and MDCK cell lines. J. Virol. Methods. 120, 23-31 (2004).
- Tobita, K., Sugiura, A., Enomoto, C., Furuyama, M. Plaque assay and primary isolation of influenza a viruses in an established line of canine kidney cells (MDCK) in the presence of trypsin. Med. Microbiol. Immunol. (Berl.). 162, 9-14 (1975).
重印与许可
标签
